RESEARCH PAPER

Effects of Methionyl-Methionine on Milk Protein Synthesis in Transwell Chamber Cultured Bovine Mammary Epithelial Cells

  • QI Yehui ,
  • HUANG Fei ,
  • DU Xinyi ,
  • LIU Guiqin ,
  • WANG Changfa ,
  • ZHOU Miaomiao , *
Expand
  • College of Agricultural Science and Engineering, Liaocheng University, Liaocheng 252000, China
* associate professor, E-mail:

Received date: 2023-04-13

  Online published: 2023-09-13

Abstract

To investigate the transport and utilization mechanism of small peptides in bovine mammary epithelial cells (BMECs), the uptake and its effect on milk protein synthesis of methionyl-methionine (Met-Met) in Transwell chamber cultured BMECs was studied in this experiment. BMECs were firstly cultured in Transwell chamber, and the 0.5 mmol/L Met-Met was added into the upper and lower chamber medium of Transwell after cell layer formed, respectively. The medium without Met-Met was used as control. The BMECs were collected after 24 hours of culture. Western blot was used to detect the protein relative expression levels of β-casein and oligopeptide transporter 2 (PepT2), and the phosphorylation levels of mammalian target of rapamycin (mTOR), ribosomal protein S6 kinase 1 (S6K1) and protein kinase B (AKT). The results showed that, after 6 days culture, the trans-epithelial electrical resistance of the BMECs layer reached the plateau stage, indicating good cell layer tightness; the addition of Met-Met in both upper and lower chambers medium of Transwell significantly increased the protein relative expression levels of β-casein and PepT2; the addition of Met-Met in the Transwell lower chamber medium significantly improved the phosphorylation levels of mTOR, S6K1 and AKT. These results indicate that the small peptides in both upper and lower chambers medium of Transwell can be absorbed and used for milk protein synthesis by BMECs, PepT2 plays an important role in the absorption of small peptides in basement membrane and the reabsorption of small peptides in apical membrane of BMECs, and Met-Met in basement membrane promotes milk protein synthesis by activating mTOR and AKT signaling pathways.

Cite this article

QI Yehui , HUANG Fei , DU Xinyi , LIU Guiqin , WANG Changfa , ZHOU Miaomiao . Effects of Methionyl-Methionine on Milk Protein Synthesis in Transwell Chamber Cultured Bovine Mammary Epithelial Cells[J]. Chinese Journal of Animal Nutrition, 2023 , 35(9) : 6026 -6032 . DOI: 10.12418/CJAN2023.553

乳腺以血液中的氨基酸为前体物质来合成乳蛋白。然而,乳腺对一些必需氨基酸的摄取量低于乳中的排出量,乳腺摄取的游离氨基酸并不能完全满足乳蛋白合成的需要[1]。为了弥补游离氨基酸的不足,乳腺必须摄取肽结合形式的氨基酸。反刍动物乳蛋白的合成过程中,多肽及小肽的作用已引起重视。研究表明,奶牛乳腺可以摄取血液中的肽结合氨基酸,乳腺酪蛋白合成所需蛋氨酸(Met)的8%~18%来源于血液中的小肽[1-2]。奶牛饲养试验发现,饲粮中添加小肽可显著增加奶牛乳汁中乳蛋白含量[3-4]。奶牛乳腺上皮细胞(bovine mammary gland epithelial cells,BMECs)体外培养研究发现,许多必需氨基酸组成的小肽均显著提高了BMECs中酪蛋白基因表达或培养液中酪蛋白浓度[5-9]。已有研究证实BMECs中有小肽转运载体2(oligopeptide transporter 2,PepT2)蛋白的表达,小肽转运载体在乳腺小肽吸收利用过程中发挥重要作用[10-11]。然而,乳腺上皮细胞属于极性细胞,其物质的吸收和乳汁的分泌具有方向性,即:从基底膜侧(血液)摄取营养底物,而从顶膜侧(腺泡)分泌乳汁颗粒。目前,相关研究所用BMECs的培养方式均为贴壁培养[5-9],不能保证细胞的极性状态,破坏了物质吸收和乳汁分泌的方向性,不能完全代表奶牛乳腺的正常生理状态。小肽转运载体是否在乳腺从血液(基底膜侧)摄取小肽过程中发挥作用需要进一步的研究。
Transwell小室,即穿透小室,可用于生物屏障的建立、细胞共培养、细胞趋化、细胞迁移和细胞侵袭等多方面的研究[12-13]。Transwell小室可放入培养板中,小室内称上室,培养板内称下室,上室内盛装上层培养液,下室内盛装下层培养液,上、下层培养液以聚碳酸酯膜相隔。细胞种在上室内,由于聚碳酸酯膜有通透性,下层培养液中的成分可以影响到上室内的细胞,从而可以研究下层培养液中的成分对细胞生长、运动等的影响。Lin等[14]利用Transwell小室培养的Caco-2细胞层研究了具有降压功能的大豆蛋白源三肽[亮氨酸-丝氨酸-色氨酸(Leu-Ser-Trp,LSW)]的转运机理,结果显示,LSW从顶膜侧到基底膜侧的转运明显高于相反方向,且完整LSW主要通过细胞旁路和小肽转运载体1(oligopeptide transporter 1,PepT1)介导的主动转运进行跨膜转运。Lacroix等[15]以Transwell小室培养的Caco-2细胞层为模型,研究了5种乳源肽的转运形式和生物活性,结果发现绝大部分乳源肽在跨膜转运过程中被肽酶水解而丧失生物活性。细胞培养结合Transwell小室被广泛应用于营养物质或药物转运研究。因此,本试验将BMECs结合Transwell小室进行极化培养,研究BMECs对Transwell上室和下室培养液中蛋氨酸二肽(Met-Met)的摄取和利用机制。

1 材料与方法

1.1 试验设计

将BMECs培养在Transwell小室(Corning,美国)中,待培养的BMECs形成细胞层后,以不添加Met-Met作为对照,分别在上室和下室培养液中添加0.5 mmol/L的Met-Met进行试验。继续培养24 h后,收集BMECs,采用Western blot检测β-酪蛋白(β-casein)、PepT2蛋白的相对表达量以及哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)、核糖体蛋白S6激酶1(ribosomal protein S6 kinase 1,S6K1)和蛋白激酶B(protein kinase B,AKT)的磷酸化水平。每个试验重复3次。

1.2 BMECs的Transwell小室培养

选取3头泌乳中后期的中国荷斯坦奶牛,于屠宰场宰杀后取乳腺腺泡组织,清洗并剪碎至1 mm3大小。参照Zhou等[6]的方法分离纯化BMECs。调整BMECs浓度为1×10⁵个/mL后,将细胞接种在12孔Tranwell小室中,分别在上室和下室中添加0.5和1.5 mL含有10%胎牛血清的DMEM(Dulbecco’s modified Eagle’s medium)-F12培养液(Gibco,美国)(添加1%谷氨酰胺、100 IU/mL青霉素、100 μg/mL链霉素、5 μg/mL胰岛素、1 μg/mL氢化可的松)。然后将细胞置于37 ℃二氧化碳培养箱进行培养,每2 d换1次培养液。待Transwell小室中培养的BMECs形成细胞层后进行后续试验。

1.3 细胞层跨膜电阻(trans-epithelial electrical resistance,TEER)测定

通过测定细胞层TEER来检测BMECs细胞层的紧密性。TEER用电阻仪(WPI EVOM,美国)测定,在使用前,其2个电极先用75%酒精浸泡5 min消毒,再用D-Hanks冲洗电极,洗去酒精。从细胞接种到Transwell滤网上第1天开始,以未接种细胞的Transwell小室为空白对照,每天同一时间用电阻仪测3个孔的细胞层TEER并记录,连续测10 d。
细胞层TEER(Ω·cm2)=(TEER细胞-TEER对照)/有效膜面积(1.12 cm2)。

1.4 Western blot

以磷酸甘油醛脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)为内参,检测β-酪蛋白、PepT2蛋白以及mTOR1、S6k1和AKT蛋白及磷酸化蛋白的相对表达量。试验结束后,收集BMECs,弃去细胞培养液,用含有完全蛋白酶抑制剂的RIPA缓冲液裂解收集的细胞。然后将样品100 ℃煮沸10 min,16 000×g离心1 min,提取细胞中总蛋白进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(sodium dodecyl sulfate-polyacrylamide gel electrophoresis,SDS-PAGE)及Western blot操作。最后将膜在吸水纸上沥干,置于平板上,放入化学发光成像仪中,拍照记录并分析。试验所用抗体分别进行稀释后用于Western blot检测,稀释倍数见表1
表1 Western blot所用抗体

Table 1 Antibodys used in Western blot

抗体
Antibodies
稀释比
Dilution ratio
生产厂家
Manufacturer
货号
Article number
磷酸甘油醛脱氢酶GAPDH 1:10 000 Abcam AB8245
小肽转运载体2 PepT2 1:1 000 Abcam AB83771
β-酪蛋白β-casein 1:500 远慕生物 GD-H1844
哺乳动物雷帕霉素靶蛋白 mTOR 1:1 000 CST 2983
磷酸化哺乳动物雷帕霉素靶蛋白 p-mTOR 1:1 000 CST 5536
蛋白激酶B AKT 1:1 000 CST 4691T
磷酸化蛋白激酶B p-AKT 1:1 000 CST 4060
核糖体蛋白S6激酶1 S6K1 1:1 000 CST 9202S
磷酸化核糖体蛋白S6激酶1 p-S6K1 1:1 000 CST 9234
兔二抗 Rabbit second antibody 1:3 000 Abmart M21002F

1.5 统计分析

本试验所有数据用GraphPad Prism 6的t检验进行分析,数据柱以平均值表示,误差线为标准差。当P<0.05时认为差异显著。

2 结果与分析

2.1 Transwell小室培养的BMECs层TEER

经测定发现,BMECs接种于Transwell滤网约6 d时细胞层TEER达到平台期(图1),反映细胞层紧密性良好。
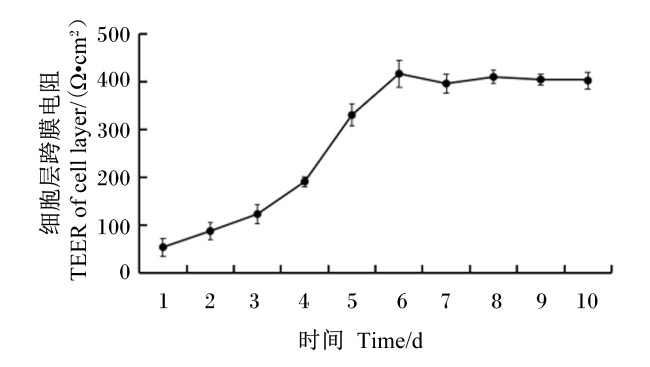
图1 奶牛乳腺上皮细胞层跨膜电阻

Fig.1 TEER of bovine mammary epithelial cell layer

2.2 Met-Met对BMECs中β-酪蛋白蛋白表达的影响

结果显示,Transwell上室和下室培养液中添加0.5 mmol/L Met-Met均可显著增加BMECs中β-酪蛋白的蛋白相对表达量(P<0.05,图2)。
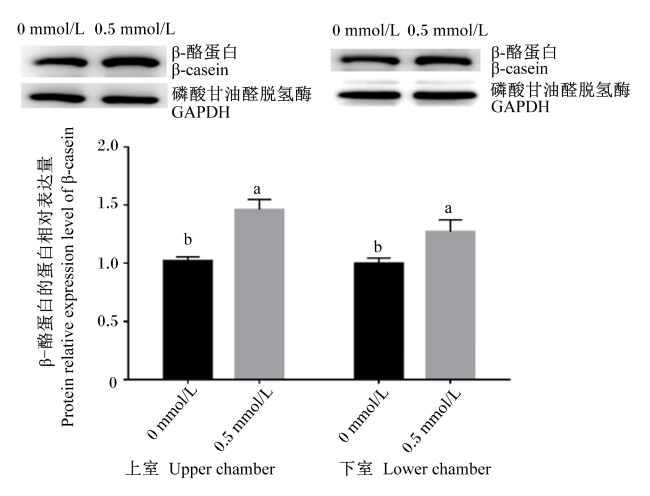
图2 Transwell上室和下室培养液中添加Met-Met对β-酪蛋白蛋白表达的影响

数据柱形标注不同小写字母表示差异显著(P<0.05)。图3图4同。

Fig.2 Effects of Met-Met in Transwell upper and lower chambers medium on β-casein protein expression

Value columns with different small letters mean significant difference (P<0.05). The same as Fig.3 and Fig.4.

2.3 Met-Met对BMECs中PepT2蛋白表达的影响

结果显示,Transwell上室和下室培养液中添加0.5 mmol/L Met-Met均显著提高了BMECs中PepT2的蛋白相对表达量(P<0.05,图3)。
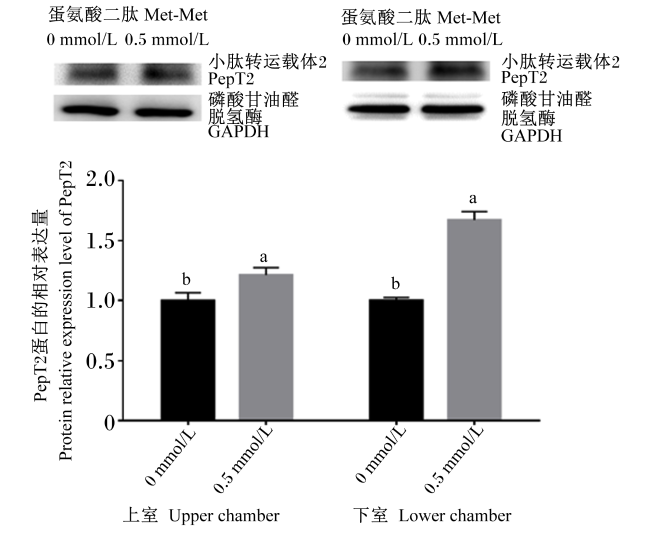
图3 Transwell上室和下室培养液中添加Met-Met对PepT2蛋白表达的影响

Fig.3 Effects of Met-Met in Transwell upper and lower chambers medium on PepT2 protein expression

2.4 Met-Met对BMECs中mTOR、S6K1和AKT磷酸化水平的影响
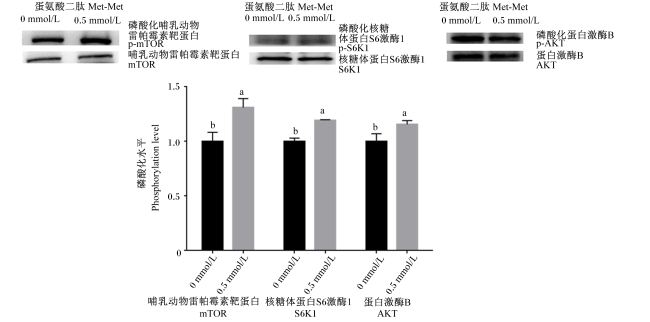
结果显示,Transwell下室培养液中添加0.5 mmol/L Met-Met显著提高了mTOR、S6K1和AKT的磷酸化水平(P<0.05,图4) 。
图4 Transwell下室培养液中添加Met-Met对mTOR、S6K1和AKT磷酸化的影响

Fig.4 Effects of Met-Met in upper and lower chambers medium on phosphorylation of mTOR, S6K1 and AKT proteins

3 讨论

乳蛋白的合成和分泌是一个复杂的生物过程,受到很多因素的影响[16]。其中,氨基酸和小肽作为乳蛋白合成的前体物质,是影响乳蛋白合成的主要因素[15]。众多研究表明小肽可以调控乳蛋白的合成[5,17]。但是BMECs上皮细胞摄取血液小肽的机制还不十分清楚。已有研究表明PepT2在BMECs小肽摄取过程中发挥重要作用[6,18]。然而,另有研究证实,PepT2在大鼠乳腺上皮细胞的顶膜侧表达,在从乳汁重吸收小肽类物质(乳蛋白水解物和肽结构类似药物)的过程中发挥作用[19-20]。所以,Met-Met等小肽对PepT2表达和乳蛋白合成的促进作用可能发生在乳腺上皮细胞顶膜侧。因为在BMECs贴壁培养模式下,添加培养液侧即为乳腺腺泡侧(顶膜侧),在培养液中添加Met-Met可使乳腺腺泡侧Met-Met浓度升高,从而增加了PepT2表达和乳蛋白合成。乳腺上皮细胞属于极性细胞,其物质的吸收和乳汁的分泌具有方向性,贴壁培养不能保证细胞的极性状态,破坏了物质吸收和乳汁分泌的方向性。小肽转运载体是否在乳腺从血液摄取小肽过程中发挥作用需要进一步的研究。
鉴于此,本研究将BMECs在Transwell小室内进行培养,探讨BMECs对上室和下室培养液中Met-Met的摄取利用。采用BMECs结合Transwell小室进行极化培养,上室代表上皮细胞顶膜侧(腺泡腔),下室代表上皮细胞基底膜侧(血液),这种屏障模型能代表BMECs的正常生理状态,便于更准确地研究小肽在BMECs中的摄取机理。试验结果表明,BMECs接种于Transwell小室培养6 d后细胞层TEER达到平台期,说明成功建立了细胞屏障,可用于跨膜转运试验。进一步研究发现,Transwell上室和下室培养液中添加Met-Met均显著增加了β-酪蛋白和PepT2的蛋白相对表达量。以上结果提示Transwell上室和下室培养液中的Met-Met均可被BMECs吸收用于乳蛋白的合成,PepT2在BMECs顶膜侧和基底膜侧小肽的摄取过程中均发挥作用。Wang等[17]研究表明,PepT2蛋白在BMECs顶膜侧和底膜侧均有表达,其在奶牛乳腺小肽摄取过程中发挥重要作用。Shennan等[19-20]研究证实,PepT2蛋白在大鼠乳腺上皮细胞的顶膜侧表达,在从乳汁重吸收小肽类物质的过程中发挥作用。本试验结果同以上研究结果一致。
被BMECs吸收后,小肽不仅可以作为底物参与乳蛋白合成,还可以作为信号分子调控乳蛋白的合成[21]。mTOR是一种哺乳动物丝氨酸/苏氨酸激酶,它能感受来自营养素(氨基酸、小肽)等的信号来调控蛋白质合成和细胞生长[22]。S6K1是mTOR的直接靶元件。活化的S6K1促进mRNAs的5’端翻译增加,这些mRNAs转录一些蛋白质翻译相关的组分(核糖体蛋白、延长因子和PolyA结合蛋白),因而可以促进蛋白质的合成[23]。AKT是调控mTOR活性的一个关键的正调控因子[24]。本研究中,Transwell下室培养液中添加Met-Met显著增加了BMECs中mTOR、S6K1和AKT的磷酸化水平,结果提示Met-Met通过激活mTOR和AKT信号通路促进了乳蛋白的合成。Wang等[17]研究结果亦表明,Met-Met通过激活BMECs中信号转导和转录激活因子5(signal transducer and activator of transcription 5,STAT5)、Janus激酶2(Janus kinase 2,JAK2)、mTOR、4E-结合蛋白1(4E-binding protein 1,4EBP1)和S6K1等信号通路元件促进细胞增殖,提高了细胞活力和β-酪蛋白的合成;进一步研究表明,抑制JAK2和mTOR信号通路降低了Met-Met引起的BMECs活力增加和乳蛋白合成[17]。另有研究发现,Met-Met可以通过激活磷酸肌醇3-激酶(phosphatidylinositide 3-kinase,PI3K)-AKT信号通路促进乳腺发育(提高42%)和泌乳过程(增加84%)[25]。本试验结果同以上研究结果一致。

4 结论

① BMECs接种于Transwell小室培养6 d后形成细胞层,建立细胞屏障。BMECs结合Transwell小室进行极化培养,上室代表腺泡腔,下室代表血液侧,比传统的贴壁培养更接近乳腺上皮细胞的生理状态,能保障乳腺上皮细胞物质吸收和乳汁分泌的方向性,便于更准确地研究小肽在BMECs中的摄取机理。
② Transwell下室和上室培养液中的Met-Met均可被BMECs吸收用于乳蛋白的合成,PepT2在Met-Met的摄取过程中均发挥作用,提示血液和腺泡腔中的小肽均可被乳腺上皮细胞PepT2吸收或重吸收并用于乳蛋白的合成。
③ Transwell下室培养液中的Met-Met通过激活mTOR和AKT信号通路促进乳蛋白的合成。
[1]
TAGARI H, WEBB K,Jr, THEURER B, et al. Mammary uptake,portal-drained visceral flux,and hepatic metabolism of free and peptide-bound amino acids in cows fed steam-flaked or dry-rolled sorghum grain diets[J]. Journal of Dairy Science, 2008, 91(2):679-697.

DOI

[2]
MABJEESH S J, KYLE C E, MACRAE J C, et al. Vascular sources of amino acids for milk protein synthesis in goats at two stages of lactation[J]. Journal of Dairy Science, 2002, 85(4):919-929.

PMID

[3]
吴丹丹, 滕乐邦, 栾正庆, 等. 小肽对奶牛瘤胃微生物蛋白产量、产奶性能和氮排泄的影响[J]. 动物营养学报, 2016, 28(4):1090-1098.

DOI

WU D D, TENG L B, LUAN Z Q, et al. Effects of small peptides on ruminal microbial protein production,milk performance and nitrogen excretion of dairy cows[J]. Chinese Journal of Animal Nutrition, 2016, 28(4):1090-1098. (in Chinese)

[4]
常兴发, 夏雪茹, 刘婷婷, 等. 复合小肽对奶牛产奶后期生产性能及乳品质的影响[J]. 饲料研究, 2020, 43(2):5-8.

CHANG X F, XIA X R, LIU T T, et al. Effect of compound peptide on product performance and milk quality of dairy cows in late milking stage[J]. Feed Research, 2020, 43(2):5-8. (in Chinese)

[5]
YANG J X, WANG C H, XU Q B, et al. Methionyl-methionine promotes α-s1 casein synthesis in bovine mammary gland explants by enhancing intracellular substrate availability and activating JAK2-STAT5 and mTOR-mediated signaling pathways[J]. Journal of Nutrition, 2015, 145(8):1748-1753.

DOI

[6]
ZHOU M M, WU Y M, LIU H Y, et al. Effects of phenylalanine and threonine oligopeptides on milk protein synthesis in cultured bovine mammary epithelial cells[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(2):215-220.

DOI PMID

[7]
常晨城. 蛋氨酸及含蛋氨酸二肽对奶牛乳腺上皮细胞内乳蛋白合成相关基因表达的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2015:39-40.

CHANG C C. Effect of methionine and dipeptides containing methionine on genes expression involved in milk protein synthesis in bovine mammary epithelial cells[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2015:39-40. (in Chinese)

[8]
郭静. 奶牛POTs的表达及小肽对乳腺上皮细胞乳蛋白合成的影响[D].硕士学位论文. 扬州: 扬州大学, 2015:1-2.

GUO J. The expression of POTs in bovine and the effect of di-peptide on milk protein synthesis in bovine mammary gland epithelial cells[D].Master’s Thesis. Yangzhou: Yangzhou University, 2015:1-2. (in Chinese)

[9]
郭春利, 丹妮, 曹琪娜, 等. 蛋氨酸三肽对奶牛乳腺上皮细胞酪蛋白和小肽转运载体基因表达量的影响[J]. 动物营养学报, 2017, 29(9):3159-3166.

GUO C L, DAN N, CAO Q N, et al. Effects of methionine tripeptide on expression levels of casein and small peptide transporters genes in bovine mammary epithelial cells[J]. Chinese Journal of Animal Nutrition, 2017, 29(9):3159-3166. (in Chinese)

[10]
ZHOU M M, WU Y M, LIU H Y, et al. Effects of tripeptides and lactogenic hormones on oligopeptide transporter 2 in bovine mammary gland[J]. Journal of Animal Physiology and Animal Nutrition, 2011, 95(6):781-789.

DOI PMID

[11]
王彩红. 小肽转运载体2在奶牛乳腺上皮细胞Met-Met摄取中的作用及其调控机制研究[D].博士学位论文. 杭州: 浙江大学, 2018:1-3.

WANG C H. The regulation of PepT2 on the uptake of Met-Met in bovine mammary epithelial cells[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2018:1-3. (in Chinese)

[12]
MA J, CAO T, CUI Y, et al. miR-223 regulates cell proliferation and invasion via targeting PDS5B in pancreatic cancer cells[J]. Molecular Therapy Nucleic Acids, 2019, 14:583-592.

DOI

[13]
SANTIAGO-TIRADO F H, KLEIN R S, DOERING T L. An in vitro brain endothelial model for studies of cryptococcal transmigration into the central nervous system[J]. Current Protocols in Microbiology, 2019, 53(1):e78.

DOI

[14]
LIN Q L, XU Q B, BAI J, et al. Transport of soybean protein-derived antihypertensive peptide LSW across Caco-2 monolayers[J]. Journal of Functional Foods, 2017, 39:96-102.

DOI

[15]
LACROIX I M E, CHEN X M, KITTS D D, et al. Investigation into the bioavailability of milk protein-derived peptides with dipeptidyl-peptidase Ⅳ inhibitory activity using Caco-2 cell monolayers[J]. Food and Function, 2017, 8(2):701-709.

DOI

[16]
NICHOLS K, BANNINK A, DOELMAN J, et al. Mammary gland metabolite utilization in response to exogenous glucose or long-chain fatty acids at low and high metabolizable protein levels[J]. Journal of Dairy Science, 2019, 102(8):7150-7167.

DOI PMID

[17]
WANG C H, ZHAO F Q, LIU J X, et al. Dipeptide (methionyl-methionine) transport and its effect on β-casein synthesis in bovine mammary epithelial cells[J]. Cellular Physiology and Biochemistry, 2018, 49(2):479-488.

DOI PMID

[18]
WANG C H, SUN Y L, ZHAO F Q, et al. Functional characterization of peptide transporters in bovine mammary epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2019, 67(1):213-219.

DOI PMID

[19]
SHENNAN D B, BOYD C A R. The functional and molecular entities underlying amino acid and peptide transport by the mammary gland under different physiological and pathological conditions[J]. Journal of Mammary Gland Biology and Neoplasia, 2014, 19(1):19-33.

DOI PMID

[20]
SHENNAN D B. Peptide transport and metabolism by the lactating mammary gland[J]. The Journal of Nutrition, 2016, 146(2):384.

[21]
ZHOU M M, XU L B, ZHAO F Q, et al. Regulation of milk protein synthesis by free and peptide-bound amino acids in dairy cows[J]. Biology, 2021, 10(10):1044.

DOI

[22]
AVRUCH J, LONG X M, ORTIZ-VEGA S, et al. Amino acid regulation of TOR complex 1[J]. American Journal of Physiology:Endocrinology and Metabolism, 2009, 296(4):E592-E602.

DOI

[23]
HAY N, SONENBERG N. Upstream and downstream of mTOR[J]. Genes & Development, 2004, 18(16):1926-1945.

DOI

[24]
LIZCANO J M, ALRUBAIE S, KIELOCH A, et al. Insulin-induced Drosophila S6 kinase activation requires phosphoinositide 3-kinase and protein kinase B[J]. Biochemical Journal, 2003, 374(Pt 2):297-306.

DOI

[25]
CHEN Q, ZHAO F Q, REN Y F, et al. Parenterally delivered methionyl-methionine dipeptide during pregnancy enhances mammogenesis and lactation performance over free methionine by activating PI3K-AKT signaling in methionine-deficient mice[J]. Journal of Nutrition, 2020, 150(5):1186-1195.

DOI PMID

Outlines

/