RESEARCH PAPER

Screening of Sheep Small Intestine Epithelial Cell Penetrating Peptide by Phage Display Technique

  • LIU Sijia ,
  • XU Xiaodong ,
  • JIANG Ning ,
  • PAN Chunyuan ,
  • SONG Jun ,
  • ZHAO Lei ,
  • ZHAO Fangfang ,
  • LI Muyang ,
  • ZHANG Aizhong , *
Expand
  • Key Laboratory of Low-Carbon Green Agriculture in Northeastern China, Ministry of Agriculture and Rural Affairs, Key Laboratory of Efficient Utilization of Feed Resources and Nutrition manipulation in Cold Region of Heilongjiang Province, College of Animal Science and Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
* professor, E-mail:

Received date: 2023-03-21

  Online published: 2023-09-13

Abstract

In order to solve the problem that antibacterial drugs cannot penetrate the cell membrane to kill intracellular pathogenic bacteria, this experiment used sheep small intestinal epithelial cells (empty intestine segment) as target cells and four rounds of in vitro bioelution by phage display technology to systematically screen the specific penetrating peptides of sheep small intestinal epithelial cells and use them as carriers of antimicrobial peptides so as to improve the penetrating ability of antimicrobial peptides. The experiment used phage display technology, and after four rounds of in vitro bioelution, the peptide that could bind to sheep small intestine epithelial cells was obtained; after four rounds of subtraction screening, the recovery rate of phage gradually increased, and the specific phage clones were effectively enriched, and the affinity of monoclonal phage to sheep small intestine epithelial cells was determined by enzyme-linked immunosorbent assay (ELISA), and those with affinity ≥2 were positive, and positive phage were screened clones were extracted, DNA was sequenced, high repetition rate sequences were selected, cell-penetrating peptides were synthesized, and control peptides with the same amino acid sequence and structure but in different combination order as the cell-penetrating peptides were synthesized and ligated with fluorescent FITC tags. The effects of cell penetrating peptide and control peptide on cell viability was measured by CCK8, and the penetration of penetrating peptide was initially observed by fluorescence microscopy, and the intracellular localization and penetration intensity of penetrating peptide were detected by laser confocal microscopy and flow cytometry. The results showed as follows: the recovery of phage increased 226-fold after four rounds of in vitro subtraction screening, and the phage bound to sheep small intestinal epithelial cells increased sequentially as the number of screening rounds increased from the first to the fourth round; detection using ELISA showed that 22 of 30 randomly selected monoclonal phages tested positive (affinity≥2); extraction of positive cloned phages for DNA sequencing analysis resulted in two amino acid sequences with high repeat rate, VLNSLID named SCPP1 and HSTTAQF named SCPP2. The cell viability results showed no effect of the two cell-penetrating peptides and their control peptide on cell viability at concentrations below 256 μmol/mL; the results of fluorescence microscopy and laser confocal showed that SCPP1 and SCPP2 could specifically penetrate the epithelial cell membrane of sheep small intestine, and SCPP1 could penetrate the nucleus and showed stronger penetration than SCPP2, while the two control peptides had no penetration ability; the results of flow cytometry showed that SCPP1. The average intracellular fluorescence intensity of SCPP1 was significantly higher than that of SCPP2, and was time-dose dependent. In this experiment, we screen the penetrating peptide (SCPP1) that can safely and specifically penetrate the epithelial cells of sheep small intestine, which can be used as a carrier of antimicrobial peptide for the treatment of intracellular bacteria in sheep intestine.

Cite this article

LIU Sijia , XU Xiaodong , JIANG Ning , PAN Chunyuan , SONG Jun , ZHAO Lei , ZHAO Fangfang , LI Muyang , ZHANG Aizhong . Screening of Sheep Small Intestine Epithelial Cell Penetrating Peptide by Phage Display Technique[J]. Chinese Journal of Animal Nutrition, 2023 , 35(9) : 6033 -6041 . DOI: 10.12418/CJAN2023.554

寄生在细胞内的致病菌被称为胞内菌,胞内菌可分为兼性胞内菌和专性胞内菌[1]。这些胞内病原体可以通过调节细胞内环境,创造合适的生态位,并绕过宿主免疫系统的杀伤[2],因此,这些病原体可导致动物的腹泻和高死亡率,是养羊业面临的主要问题。随着饲用抗生素的禁用,抗菌肽成为最有希望的替抗产品之一,然而治疗细胞内细菌感染的一个主要挑战是许多抗菌药物及抗菌肽无法穿越哺乳动物细胞膜屏障,因此,需要研发新型高效的替抗产品来杀伤胞内致病菌。细胞穿透肽(cell penetrating peptide,CPP)是一种载体工具,能够以完整的功能形式携带各种外源分子穿过细胞膜到达细胞内,有效地将大分子药物、纳米颗粒、抗菌肽等导入细胞[3],且穿透肽具有安全、无毒和靶向性的特点。因此,寻找进入羊小肠上皮细胞的穿透肽作为载体,对于羊肠道胞内菌的治疗有重要的意义。
利用噬菌体展示技术筛选细胞穿透肽,可作为一种穿透载体,使其偶联抗菌肽等抗菌药物以穿透细胞膜,实现靶向、精准杀伤胞内致病菌的作用[4]。1985年,Smith[5]首次提出了噬菌体展示技术,是选择抗体和细胞结合肽最常用的方法。噬菌体展示技术允许不同的肽库在噬菌体颗粒表面表达,并能选择与靶标特异性结合的肽,通过对噬菌体阳性克隆不断筛选可以确定靶标特异性肽,进而通过从噬菌体肽库中富集与靶标特异性结合的肽或蛋白质,进一步得到特异性靶向多肽序列[6]。近几年,噬菌体展示肽库在细胞上的生物淘洗已被证实可以成功地用于筛选特异性穿透肽[7]。Pandya等[8]以脑肿瘤细胞为靶细胞利用噬菌体展示七肽库筛选,得到了能够穿过血脑肿瘤屏障,识别并作用到肿瘤细胞,可以与脑肿瘤细胞特异性结合的多肽,可以检测和靶向治疗脑肿瘤。Wada等[9]利用噬菌体七肽库筛选前列腺癌细胞,得到特异性穿透肽LN1,通过与治疗多肽的偶联,可以促进治疗药物的靶向前列腺癌细胞,同时避免正常组织中的不良反应。目前,以噬菌体展示技术筛选细胞穿透肽多用在人的疾病治疗研究上,而在畜牧业中的研究鲜见报道。本试验旨在以羊小肠上皮细胞为靶细胞,利用噬菌体展示技术筛选出可以特异性穿透羊小肠上皮细胞的穿透肽,以此作为胞内菌抗菌药物的载体,为致病性胞内菌的防治提供新的方法和理论依据。

1 材料与方法

1.1 试验材料

噬菌体展示七肽库试剂盒购买于NEW ENGLAND BIOLABS公司,包括:10次独立淘选试验的足量肽库和大肠杆菌(E.coli)ER2738(用于M13噬菌体繁殖)。
羊小肠上皮细胞(SJECs)参考张博夫[10]的方法培养和提取。猪小肠上皮细胞系(IPEC-J2)为黑龙江八一农垦大学动物科技学院动物生化实验室保存。鼠小肠上皮细胞系(Modek)为黑龙江八一农垦大学动物科技学院动物营养实验室保存。动物小肠均选自空肠段。

1.2 试验方法

1.2.1 细胞培养

将羊小肠上皮细胞、猪小肠上皮细胞系和鼠小肠上皮细胞系分别在含有10%胎牛血清、1%双抗的DMEM-F12或DMEM培养基中进行培养。所有细胞系均在37 ℃、5% CO2培养箱中培养,细胞生长至90%时进行传代。

1.2.2 体外减数生物淘洗筛选羊小肠上皮细胞的细胞穿透肽

生长良好的羊小肠上皮细胞在贴壁生长成单层后,在含有1% BSA的DMEM-F12中培养1 h后进行淘洗。随机展示七肽的噬菌体文库体外减数筛选羊小肠上皮细胞,将2×10¹¹ PFU(斑块单位)的噬菌体文库加入到羊小肠上皮细胞中,在室温下微摇孵育1 h。孵育后,将未与羊小肠上皮细胞结合的噬菌体收集做未结合的阴性对照组。1 mL洗脱液(0.2 mol/L Glycine-HCl,pH 2.2)洗脱孵育后的羊小肠上皮细胞,在室温下微摇孵育10 min,洗脱掉未结和的噬菌体,在洗脱结束时加入中和缓冲液(1 mol/L Tris-HCl,pH 9.2)。
使用E.coli ER2738将洗脱得到的噬菌体进行扩增、纯化和滴定,使用1×10¹¹ PFU噬菌体进行下一轮生物淘洗。经过第4轮生物淘洗后,从长满噬菌斑(不足100个)的平板上随机挑选出噬菌体克隆30个,通过酶联免疫吸附法(ELISA)检测与羊小肠上皮细胞的亲和力。

1.2.3 噬菌体滴度测定

将上述洗脱液取10 μL加入20 mL E.coli中,培养至对数生长期[吸光度(OD)=0.6]。10 000 r/min离心10 min。取上清液,同等条件再次离心。80%上清液转移至新试管中,加入1/6体积的聚乙二醇/氯化钠溶液(PEG/NaCl)后4 ℃下过夜沉淀。第2天,10 000 r/min离心15 min,弃上清,10 000 r/min离心5 min,弃上清,使用1 mL的三乙醇胺缓冲盐水溶液(TBS)重悬沉淀。12 000 r/min离心10 min,取80%上清液放入新试管中,第2次沉淀加入1/6体积的PEG/NaCl,冰上孵育1 h。在12 000 r/min下离心10 min,回收噬菌体,弃上清,12 000 r/min离心5 min。200 μL TBS溶解沉淀,用于下一步的体外筛选。稀释噬菌体(107~1011倍体积稀释扩增的噬菌体上清液,101~104倍体积稀释非扩增的洗脱液)。取噬菌体稀释液的10 μL加入到200 μL E.coli中,混合均匀并在室温下放置3 min。混合后的噬菌体倒在肉汤培养基/异丙基-D-硫代半乳糖苷/5-溴-4-氯-3-吲哚基-β-D-半乳糖甘(LB/IPTG/X-GAL)平板。在37 ℃下孵育过夜,通过计算培养板上PFU数量来计算滴度,计算公式如下:
滴度=PFU数量×稀释倍数。
通过计算每轮洗脱噬菌体数量的滴度,计算噬菌体回收率,计算公式如下:
噬菌体回收率=洗脱噬菌体数量/投入噬菌体数量。

1.2.4 ELISA鉴定阳性噬菌体克隆的亲和力

将对数生长期的大肠杆菌以1:100的比例混匀在LB培养基中。将第4轮LB/IPTG/X-GAL平板上的噬菌斑随机挑选30个加入到LB培养基中,培养至对数生长期,10 000 r/min离心10 min,取上清,4 ℃贮存备用。羊小肠上皮细胞接种于96孔板(2×10⁴个细胞/孔),待细胞长满后,清洗细胞,0.25%戊二醛溶液固定细胞15 min,加入3%过氧化氢溶液(100 μL/孔),培养30 min,清洗细胞,1% BSA封闭60 min,加入1×10¹⁰ PFU单克隆噬菌体扩增液孵育1.5 h,清洗细胞,空白对照:磷酸盐缓冲液(PBS),阴性对照:第1轮未结合的噬菌体,1:5 000稀释的M13 antibody (HRP)抗体(HRP/Anti-M13抗体)(100 μL/孔),孵育1 h,清洗细胞,加入TMB显色液10~30 min,全自动酶标仪检测450 nm处的OD值。
S为将扩增噬菌体与羊小肠上皮细胞共孵育的OD值,P为未结合噬菌体与羊小肠上皮细胞共孵育的OD值,亲和力计算公式如下:
S/P=相应的OD值-PBS空白对照的OD值。
经全自动酶标仪检测亲和力≥2为阳性克隆。

1.2.5 测序及多肽合成

按M13噬菌体单链基因组DNA提取试剂盒的说明提取高亲和力的阳性克隆的DNA,将DNA提取液送到江苏艾伯森生物技术有限公司进行核苷酸测序。选取重复次数多的序列,由上海吉尔生化(上海)有限公司合成带有FITC标签的细胞穿透肽及与细胞穿透肽的氨基酸序列结构相同但顺序不同的多肽做对照多肽。

1.2.6 多肽对细胞活力的影响

在长满羊小肠上皮细胞的96孔板,加入100 μL不同终浓度(256、128、64、32、16 μmol/mL)的多肽,在37 ℃、5% CO2培养箱中培养24 h后,弃上清,清洗细胞。取10 μL CCK8溶液加入细胞,继续培养1~3 h,全自动酶标仪检测450 nm处的OD值。阴性对照组:只有细胞没有多肽;空白对照组:没有细胞和多肽,细胞存活率计算公式如下:
细胞存活率(%)=100×[OD(试验组)值-OD(空白对照组)值]/[OD(阴性对照组)值-OD(空白对照组)值]。

1.2.7 荧光显微镜观察多肽的细胞特异性穿透能力

将羊小肠上皮细胞、猪小肠上皮细胞、鼠小肠上皮细胞的浓度经细胞计数法调整至1×10⁵个细胞/mL分别加入培养皿中,37 ℃过夜培养。将含有FITC标签的多肽(16 μmol/mL)与细胞共孵育2 h,清洗细胞。使用4%多聚甲醛固定细胞15 min后,清洗细胞,加入4',6-二脒基-2-苯基吲哚(DAPI)染料(染色细胞核),染色5 min,清洗细胞,再加入1,1'-二十八烷基-3,3,3',3'-四甲基氨基氰高氯酸盐(DiL)染料(染色细胞膜),染色10 min,清洗细胞,在荧光显微镜下观察多肽的穿透能力。

1.2.8 激光共聚焦显微镜确定多肽的细胞内定位

将羊小肠上皮细胞接种于激光共聚焦皿(1×10⁵个细胞/孔),培养过夜,在细胞贴壁生长良好后,无血清培养液继续培养1 h。然后更换含有FITC标签的多肽浓度为16 μmol/mL,孵育2 h,清洗细胞,使用4%多聚甲醛固定羊小肠上皮细胞15 min后,清洗细胞,加入DAPI染料(染色细胞核),染色5 min,清洗细胞,再加入DiL染料(染色细胞膜),染色10 min,清洗细胞,激光共聚焦显微镜下观察多肽的细胞内定位。

1.2.9 流式细胞仪检测细胞穿透肽的穿膜效率

将羊小肠上皮细胞接种于6孔板(1×10⁵个细胞/孔),细胞生长至70%时,更换无血清培养液继续培养1 h。试验组加入终浓度为32、16 μmol/mL的细胞穿透肽(SCPPP1、SCPP2),继续在CO2培养箱中培养2、12 h,对照组加入无血清的培养液培养。弃上清,清洗细胞。在6孔板中加入适量的胰蛋白酶,室温消化10 min,直至肉眼观察到细胞完全脱落,PBS将细胞全部吹起并收集至15 mL离心管中。3 000 r/min离心3 min,弃上清,加300 μL PBS制成细胞悬液,上流式细胞仪器检测羊小肠上皮细胞内平均荧光强度。

1.3 数据分析

试验获得的数据采用Excel 2007进行数据处理,通过SPSS 26.0软件进行方差分析,P<0.05表示差异显著,P<0.01表示差异极显著,并用GraphPad Prism 8.0.2软件做出相应的柱状图。

2 结果与分析

2.1 羊小肠上皮细胞特异性结合噬菌体的富集

本研究以羊小肠上皮细胞为靶细胞,通过噬菌体肽库与羊小肠上皮细胞的4轮体外减数生物淘洗,鉴定出与羊小肠上皮细胞特异结合的噬菌体。从结果可以看出,噬菌体回收率在筛选过程中逐渐增加,与1轮相比,在最后1轮中增加约226倍(表1),表明噬菌体得到了有效的富集。
表1 每轮减数筛选噬菌体的回收率

Table 1 Recovery rate of phage per round of subtractive screening

筛选轮次
Screening rounds
投入量
Inputs/PFU
回收量
Recycling volume/PFU
回收率
Recovery rate
1 1.0×10¹¹ 3.0×10⁵ 3.0×10⁻⁶
2 1.0×10¹¹ 4.8×10⁶ 4.8×10⁻⁵
3 1.0×10¹¹ 1.6×10⁷ 1.6×10⁻⁴
4 1.0×10¹¹ 6.8×10⁷ 6.8×10⁻⁴

2.2 ELISA检测羊小肠上皮细胞与阳性噬菌体克隆亲和力

从最后1轮筛选后随机选取30个噬菌斑进行亲和力检测,经ELISA鉴定亲和力≥2的有21个(图1),可作为阳性克隆噬菌体用于后续试验。
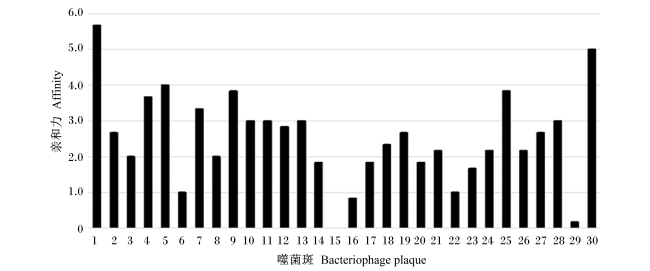
图1 ELISA检测羊小肠上皮细胞与单克隆噬菌体亲和力

Fig.1 Affinity between sheep small intestinal epithelial cells and monoclonal phage detected by ELISA

2.3 阳性单克隆噬菌体DNA测序及多肽的合成

将上述21个高亲和力的阳性单克隆噬菌体进行单链提取并进行测序,根据序列结果发现,VLNSLID和HSTTAQF序列出现频次最高,均为3次,SDYQTRY序列出现2次,其余序列出现1次,将出现频率最高的2个序列分别命名为SCPP1和SCPP2,说明这2个序列可能与羊小肠上皮细胞特异性结合有密切的关系。
进一步合成含有FITC标签的SCPP1与SCPP2,同时按照与SCPP1和SCPP2的氨基酸序列及结构相同,但组合顺序不同的多肽的原则,合成含有FITC标签的对照多肽svSCPP1和svSCPP2用于后续验证。

2.4 CCK8法检测多肽对羊小肠上皮细胞的毒性

SCPP1、SCPP2、svSCPP1、svSCPP2的羊小肠上皮细胞毒性如图2所示,从图中可以看出,在多肽浓度为64 μmol/mL时,SCPP2组的细胞存活率显著低于空白对照组(P<0.05),SCPP1、svSCPP1,svSCPP2组的细胞存活率极显著低于空白对照组(P<0.01),但细胞存活率仍在95%以上,未达到存在细胞毒性程度;在多肽浓度为128 μmol/mL以下,4个多肽组的细胞存活率均极显著低于空白对照组(P<0.01),但细胞存活率仍在90%以上;在多肽浓度为256 μmol/mL以下,4组的细胞存活率差异极显著(P<0.01),SCPP1、svSCPP2组的细胞存活率低于90%,表现出具有细胞毒性。结果显示,在多肽浓度低于256 μmol/mL时,4条多肽的细胞存活率均在90%以上,说明多肽对细胞的毒性很小,表明该多肽安全无毒。
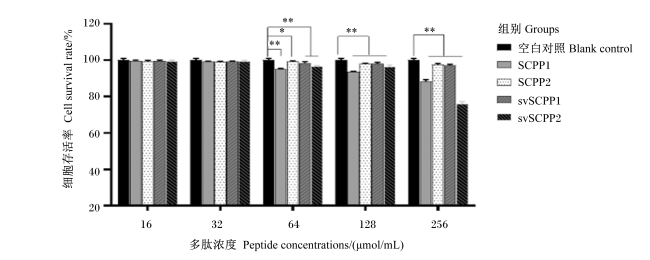
图2 CCK8法鉴定多肽的细胞存活率

*表示差异显著(P<0.05);**表示差异极显著(P<0.01)。

Fig.2 Cell survival rate of peptide detected by CCK8 method

* indicated significant difference (P<0.05); ** indicated extremely significant difference (P<0.01).

2.5 荧光显微镜观察多肽的特异性穿透

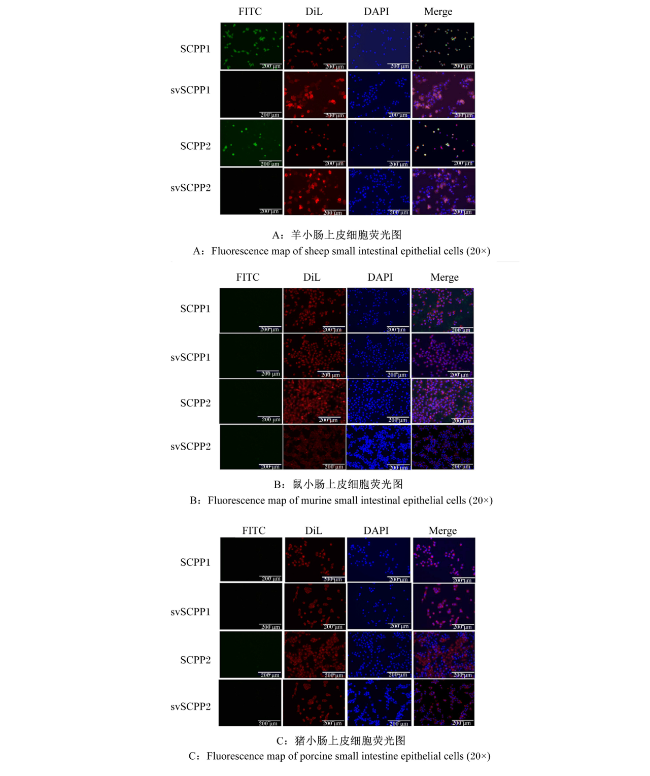
为了直接观察穿透肽对羊小肠上皮细胞的特异性,在荧光显微镜下观察多肽在羊、鼠、猪小肠上皮细胞的穿透情况。由图3-A可以看出,SCPP1、SCPP2可以穿透羊小肠上皮细胞,而对照多肽不可以穿透羊小肠上皮细胞,且SCPP1的穿透能力明显高于SCPP2。图3-B图3-C可以看出,SCPP1、SCPP2、svSCPP1、svSCPP2均不能穿透鼠小肠上皮细胞和猪小肠上皮细胞。这表明经过噬菌体展示技术筛选出的2条多肽SCPP1、SCPP2具有穿透性和特异性,且只能特异性穿透羊小肠上皮细胞。
图3 荧光显微镜下观察的穿透肽的特异性穿膜效果

FITC: 异硫氰酸荧光素 fluorescein isothiocyanate;DiL: 1,1’-双十八烷基-3,3,3’,3’-四甲基吲哚菁高氯酸盐 1,1’-dioctadecyl-3,3,3’,3’-tetramethylindocyanine perchlorate;DAPI: 4’,6-二脒基-2-苯基吲哚 4’, 6-diaminyl-2-phenylindole;Merge:合并。图4同 the same as Fig.4

Fig.3 Specific membrane penetration effect of penetrating peptide observed under fluorescence microscope

2.6 激光共聚焦显微镜确定穿透肽的细胞内定位

细胞穿透肽的羊小肠原代上皮细胞内定位如图4所示,从图中可以看出,SCPP2主要聚集在细胞质内,所以这种多肽在细胞内定位在细胞质,而SCPP1在细胞核处发生了明显的聚集,所以这种多肽在细胞内还可定位在细胞核,结果表明2种多肽均可以穿透细胞膜,进入细胞。
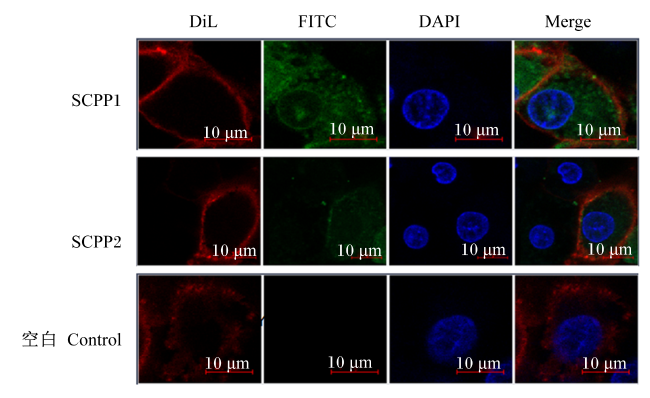
图4 穿透肽在细胞内的定位

Fig.4 Intracellular localization of penetrating peptides

2.7 流式细胞仪检测穿透肽在羊小肠上皮细胞内荧光含量

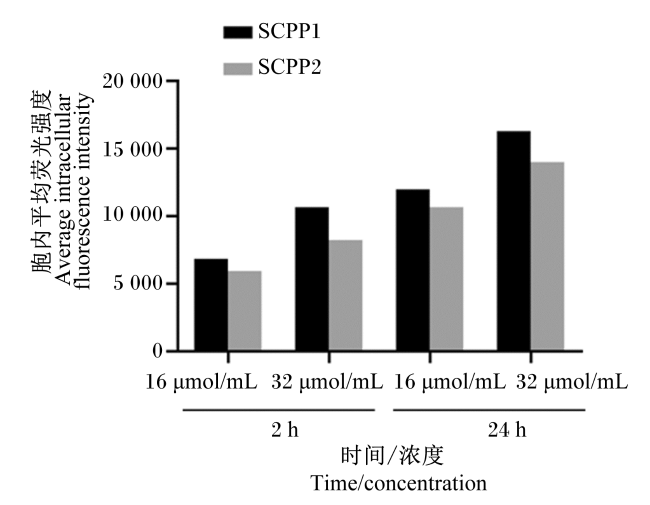
穿透肽在羊小肠原代上皮细胞内平均荧光强度如图5所示,可以看出,在相同的时间和浓度条件下,SCPP1的胞内平均荧光强度明显高于SCPP2,且胞内平均荧光强度受时间和浓度的影响,随着时间和浓度的增加其胞内平均荧光强度也增加,呈时间剂量依赖性。结果表明,SCPP1、SCPP2均可穿透羊小肠上皮细胞,且SCPP1的穿透能力更强。
图5 穿透肽的胞内平均荧光强度检测

Fig.5 Intracellular mean fluorescence intensity detection of penetrating peptides

3 讨论

噬菌体展示技术是一种通过对噬菌体DNA进行基因改造,从而在噬菌体表面展示的分子技术,其包含的遗传序列可将表型与基因型相连[11]。噬菌体展示技术通过与噬菌体外壳蛋白融合,在噬菌体表面展示多种多样的肽或蛋白质文库,与衣壳蛋白融合的配体将整合到成熟的噬菌体外壳中,并展示在噬菌体表面,而编码的遗传物质存在于噬菌体内,因其可在丝状噬菌体表面呈递大量肽和蛋白质文库,所以对于几乎任何靶标都具有高亲和力和特异性。通过丰富高亲和力的特异性结合克隆,可得到高亲和力配体,并通过DNA测序鉴定其编码序列[12],是一种可系统性筛选鉴定与靶标高亲和力多肽或蛋白质的高效工具。通过对噬菌体文库的筛选,与靶标具有高亲合力的噬菌体从噬菌体文库中分离,通过对阳性噬菌体的外源基因序列进行分析,获得与靶标特异性结合的肽[13]。通过噬菌体展示技术筛选得到的多肽,具有较高的细胞膜穿透性,具有较低的免疫原性。因此其既可用于肿瘤的早期诊断[14],也可通过连接药物在不损伤其他正常细胞的情况下实现靶向治疗[15]
2018年,Sahin等[16]以胃癌细胞为靶细胞利用噬菌体展示技术进行筛选,得到线性多肽DE532,体外试验证实DE532不仅具有穿膜功能,而且特异性靶向人胃癌细胞,不与正常的人胃上皮细胞结合,因此不会对正常细胞造成损伤。郑磊[17]利用噬菌体展示肽库的减数体外筛选法,成功筛选出了可以靶向胰腺的多肽,并利用其可以与药物结合的特性,得到了可以诊断治疗胰腺癌的多肽。
这些研究为寻找新的羊小肠上皮细胞穿透肽打下了基础,本试验以羊小肠上皮细胞为靶细胞,利用噬菌体展示技术4轮体外减数筛选,得到了与羊小肠上皮细胞特异性结合的噬菌体,在含有不到100个噬菌斑的噬菌体平板中随机挑选30株进行阳性克隆检测,通过ELISA及DNA测序分析初步鉴定有2种噬菌体序列出现频率最高:VLNSLID(SCPP1)和HSTTAQF(SCPP2)。经试验证实多肽安全无毒性,对羊小肠上皮细胞的生长无显著影响,荧光显微镜结果表明,对照多肽不能穿透羊小肠上皮细胞,SCPP1和SCPP2可以穿透羊小肠上皮细胞,但不能穿透猪小肠上皮细胞及鼠小肠上皮细胞,结果证明筛选出的多肽具有特异穿透性。这是因为在筛选过程中淘汰了没有与靶分子或者靶细胞结合的噬菌体、结合力弱的噬菌体和没有特异性结合的噬菌体,只留下那些与靶分子或者靶细胞特异性结合的噬菌体。随着筛选次数的增加和固定时间的减少,获得的数量也在增加,最终达到饱和。因此,在筛选后,回收量的显著增加表明存在与目标细胞特异性结合的噬菌体[17]。如果在筛选过程中没有特异性的噬菌体与羊小肠上皮细胞结合,则不会观察到噬菌体回收量的明显增加。激光共聚焦结果表明,SCPP1和SCPP2可以穿透羊小肠上皮细胞膜,且SCPP1的一部分可以穿透细胞核表现出比SCPP2更强的穿透性。流式细胞仪检测胞内平均荧光强度结果显示,穿透肽SCPP1的胞内平均荧光强度明显高于SCPP2,且随着时间和浓度的增加其胞内平均荧光强度也增加。其原因可能是因为SCPP1序列中含有比SCPP2更多的疏水性氨基酸,疏水性氨基酸可以通过提高穿透肽的内化效率进一步提高穿透肽的穿透能力[18]。试验结果表明,SCPP1多肽对羊小肠上皮细胞具有穿透性,在羊小肠上皮细胞中能够明显富集。使用NCBI-BLAST网站,分析氨基酸序列,结果显示,VLNSLID是以前未报道的序列。
目前,我们只验证了VLNSLID多肽对羊小肠上皮细胞的靶向性和特异性,尚需在体外、体内用多种方法进一步研究其偶联抗菌肽后的生物特性及穿透性。

4 结论

本试验通过噬菌体展示技术构建2条能够穿过羊小肠上皮细胞的穿透肽序列VLNSLID(SCPP1)和HSTTAQF(SCPP2),其中SCPP1具有穿透细胞核的效果,其穿透作用更强且穿透肽在浓度低于256 μmol/mL时安全无毒,可作为穿过羊小肠上皮细胞治疗胞内致病菌的抗菌肽递送系统的有用载体。
[1]
苏楠楠, 董贵, 刘金环, 等. 抗胞内菌感染纳米药物研究进展[J]. 中国兽药杂志, 2021, 55(7):76-85.

SU N N, DONG G, LIU J H, et al. Advances on nano-antibacterial agents against intracellular bacterial infection[J]. Chinese Journal of Veterinary Drug, 2021, 55(7):76-85. (in Chinese)

[2]
戎柯纬, 蒲熙婷, 吴思思, 等. 胞内寄生菌感染巨噬细胞机制的研究进展[J]. 华中科技大学学报(医学版), 2019, 48(3):355-360.

RONG K W, PU X T, WU S S, et al. Research progress on the mechanism of macrophage infection by intracellular parasitic bacteria[J]. Acta Medicinae Universitatis Scientiae et Technologiae Huazhong, 2019, 48(3):355-360. (in Chinese)

[3]
KAMARUZZAMAN N F, KENDALL S, GOOD L. Targeting the hard to reach:challenges and novel strategies in the treatment of intracellular bacterial infections[J]. British Journal of Pharmacology, 2017, 174(14):2225-2236.

DOI

[4]
KRISTENSEN M, BIRCH D, MØRCK NIELSEN H. Applications and challenges for use of cell-penetrating peptides as delivery vectors for peptide and protein cargos[J]. International Journal of Molecular Sciences, 2016, 17(2):185.

DOI

[5]
SMITH G P. Filamentous fusion phage: novel expression vectors that display cloned antigens on the virion surface[J]. Science, 1985, 228(4705):1315-1317.

DOI PMID

[6]
赵梦瑶, 史增芳, 宋丽丽, 等. 噬菌体展示技术在现代医药应用的研究进展[J]. 中国医药工业杂志, 2023, 54(1):19-28.

ZHAO M Y, SHI Z F, SONG L L, et al. Research progress of the application of phage display technology in modern medicine[J]. Chinese Journal of Pharmaceuticals, 2023, 54(1):19-28. (in Chinese)

[7]
KIM J M, SHE C H, POTEZ M, et al. Phage display targeting identifies EYA1 as a regulator of glioblastoma stem cell maintenance and proliferation[J]. Stem Cells, 2021, 39(7):853-865.

DOI PMID

[8]
PANDYA H, GIBO D M, GARG S, et al. An interleukin 13 receptor α 2-specific peptide homes to human glioblastoma multiforme xenografts[J]. Neuro-oncology, 2012, 14(1):6-18.

DOI PMID

[9]
WADA A, TERASHIMA T, KAGEYAMA S, et al. Efficient prostate cancer therapy with tissue-specific homing peptides identified by advanced phage display technology[J]. Molecular Therapy Oncolytics, 2019, 12:138-146.

DOI

[10]
张博夫. 丁酸钠对羔羊宿主防御肽表达及黏膜屏障功能的调控[D].硕士学位论文. 大庆: 黑龙江八一农垦大学, 2022.

ZHANG B F. The manipulation of sodium butyrate on the expression of host defense peptides and intestinal mucosal barrier function in lambs[D].Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2022. (in Chinese)

[11]
SIOUD M. Phage display libraries:from binders to targeted drug delivery and human therapeutics[J]. Molecular Biotechnology, 2019, 61(4):286-303.

DOI

[12]
HAMZEH-MIVEHROUD M, ALIZADEH A A, MORRIS M B, et al. Phage display as a technology delivering on the promise of peptide drug discovery[J]. Drug Discovery Today, 2013, 18(23/24):1144-1157.

DOI

[13]
NEWMAN M R, BENOIT D S W. In vivo translation of peptide-targeted drug delivery systems discovered by phage display[J]. Bioconjugate Chemistry, 2018, 29(7):2161-2169.

DOI

[14]
GAN B K, YONG C Y, HO K L, et al. Targeted delivery of cell penetrating peptide virus-like nanoparticles to skin cancer cells[J]. Scientific Reports, 2018, 8(1):8499.

DOI PMID

[15]
宋阳, 柳长柏. 展示技术在细胞膜穿透肽筛选、鉴定中的应用[J]. 国际药学研究杂志, 2016, 43(1):153-156.

SONG Y, LIU C B. Screening and identification of cell-penetrating peptides by display technology[J]. Journal of International Pharmaceutical Research, 2016, 43(1):153-156. (in Chinese)

[16]
SAHIN D, TAFLAN S O, YARTAS G, et al. Screening and identification of peptides specifically targeted to gastric cancer cells from a phage display peptide library[J]. Asian Pacific Journal of Cancer Prevention(APJCP), 2018, 19(4):927-932.

[17]
郑磊. 利用噬菌体展示技术筛选靶向胰腺癌细胞肽段并利用凋亡-靶向融合肽段抑制胰腺癌生长[D].博士学位论文. 杭州: 浙江大学, 2020.

ZHENG L. Screening peptides targeting pancreatic cancer cells using phage display technology and inhibiting pancreatic cancer growth[D].Ph.D.Thesis Hangzhou: Zhejiang University, 2020. (in Chinese)

[18]
MA C Y, YIN G F, YOU F, et al. A specific cell-penetrating peptide induces apoptosis in SKOV3 cells by down-regulation of Bcl-2[J]. Biotechnology Letters, 2013, 35(11):1791-1797.

PMID

Outlines

/