REVIEW

Research Progress in Regulation of Gastrointestinal Microecology in Ruminants by Bacillus licheniformis

  • HE Jintong ,
  • CHENG Yuchen ,
  • REN Wenyi ,
  • XU Xiaofeng , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*professor, E-mail:

Received date: 2023-04-28

  Online published: 2023-10-12

Abstract

Bacillus licheniformis (B. licheniformis) is a Gram-positive parthenogenic anaerobic bacterium that is resistant to high temperatures, acids and bases, bile salts, enzymes and antibacterial active substances, etc. It can not only promote animal growth, improve intestinal health and immunity, but also effectively degrade toxins and control the livestock environment, and is one of the most promising alternatives to antibiotics. In this paper, the biological properties, physiological functions of B. licheniformis and its application effects in the gastrointestinal microecology of ruminants are reviewed, with a view to providing theoretical references for the application of B. licheniformis in ruminant production practices.

Cite this article

HE Jintong , CHENG Yuchen , REN Wenyi , XU Xiaofeng . Research Progress in Regulation of Gastrointestinal Microecology in Ruminants by Bacillus licheniformis[J]. Chinese Journal of Animal Nutrition, 2023 , 35(10) : 6188 -6197 . DOI: 10.12418/CJAN2023.568

在当下“减抗”“替抗”趋势下,开发绿色、安全、高效的新型饲料添加剂是目前饲料添加剂的研究热点。芽孢杆菌是一类安全、无残留、无耐药性,同时还能通过营养调节保护动物胃肠功能、调节肠道菌群、改善肠道屏障功能的益生添加剂[1-3],是一种很好的抗生素替代品。作为一种极有发展潜力的芽孢杆菌,地衣芽孢杆菌(Bacillus licheniformis,B. licheniformis)于2003年被纳入国家《饲料添加剂品种目录》。地衣芽孢杆菌可以在高温和酸性等恶劣的外部环境中作为内生孢子存在,它的存活时间长且无需消耗营养物质,不易丧失活性,转移到良好环境中以生长态形式继续发挥营养作用[1,4],添加到畜禽饲粮中能够提高动物机体免疫能力和维持肠道微生态平衡等[3],在畜禽饲粮中具有很好的应用前景。近年来,对于地衣芽孢杆菌在反刍动物上的研究逐渐得到重视,但针对地衣芽孢杆菌在反刍动物肠道微生态调控方面的综述还相对较少。因此,本文对地衣芽孢杆菌的生物学特性、生理功能及其在反刍动物胃肠道微生态调控方面的应用效果进行综述,以期为地衣芽孢杆菌在反刍动物领域的研发和应用奠定基础。

1 地衣芽孢杆菌的生物学特性及生理功能

地衣芽孢杆菌是一种革兰氏阳性兼性厌氧的嗜热细菌,属于细菌界,厚壁菌门,芽胞杆菌科,芽胞杆菌属[4-5]。地衣芽孢杆菌可形成近中生的椭圆形芽孢,周生鞭毛稀疏,可运动,抗逆性好,能耐受胃肠的不利条件,也可在饲料加工及存放过程中保持良好的稳定性[6]。此外,地衣芽孢杆菌能产生多种抑菌物质(如杆菌肽、抗菌类蛋白等)和营养物质(如维生素、促生长因子等),能抑制肠道病原菌生长,促进机体新陈代谢[7];地衣芽孢杆菌还能分泌多种酶类,如蛋白酶、植酸酶、α-淀粉酶、葡聚糖酶等[8-11],及时补充动物缺乏的肠道内源酶,降解饲料中的抗营养因子,提高饲料利用率。并且,地衣芽孢杆菌能够通过生物夺氧机制,消耗肠道内氧气而形成厌氧环境,为肠道优势厌氧菌提供有利环境,同时抑制需氧有害菌的生长。因而,地衣芽孢杆菌作为一种对宿主健康有益的新型微生态制剂,在调控动物胃肠道微生态平衡、增强肠道及机体免疫力等方面发挥着重要作用,在畜禽生产中具有广阔的应用前景。
地衣芽孢杆菌主要从调节胃肠道菌群和增强肠道及机体免疫功能方面发挥生理功能。1)调节胃肠道菌群:地衣芽孢杆菌可以促使肠道中正常生理性厌氧菌生长,改善肠道菌群失调,恢复肠道功能。秦宋柯等[12]研究表明,饲粮中添加地衣芽孢杆菌能够减少黄羽肉鸡盲肠中的病原菌数量,增加其盲肠中的益生菌数量,进而调控其肠道健康。Ye等[13]在大菱鲆上得到了类似的研究结果。其机理是:地衣芽孢杆菌作为兼性厌氧菌,可以通过感应环境中氧浓度对细胞代谢进行调整,在有氧条件下,它所分泌的地衣素能够迅速地消耗周围的游离氧,利用生物夺氧作用形成厌氧环境,为肠道内生理性厌氧菌(如双歧杆菌、消化链球菌、乳酸杆菌、类杆菌等)的生长繁殖提供良好的生存环境[14],同时也会因为缺氧而导致需氧有害病原菌(如大肠杆菌)的生长被抑制。此外,地衣芽孢杆菌还可产生脂肽类、磷脂类等多种抑菌物质及短链脂肪酸(short chain fatty acid,SCFA),降低肠道pH,使产气荚膜梭菌、金黄色葡萄球菌等致病菌的生长受到抑制,从而维持动物肠道健康。2)增强肠道及机体免疫功能:地衣芽孢杆菌通过作用于肠道,激活肠黏膜上相关免疫组织,促使淋巴组织生长,增加抗体分泌和淋巴细胞数量,进而产生更多的诱导因子,加速免疫器官的生长发育,从而增强畜禽免疫力。研究发现,地衣芽孢杆菌产生的胞外多糖(exoplysaccharides,EPS)可通过调节脂多糖(lipopolysaccharide,LPS)刺激巨噬细胞中促炎和抗炎细胞因子的产生而发挥免疫调节作用[15]。另外,地衣芽孢杆菌通过对病原菌的竞争、排斥,抑制其在胃肠道中定植,使胃肠道中菌群结构改变,进而调控肠黏膜屏障功能[3,16]。研究发现,从羊粪分离得到的羊源性地衣芽孢杆菌能够抑制革兰氏阳性菌(如金黄色葡萄球菌)及革兰氏阴性菌(如大肠杆菌)的增殖,从牛瘤胃内容物分离的牛源性地衣芽孢杆菌对2种常见的肠道病原菌即大肠杆菌和鼠伤寒沙门氏菌具有较好的抗菌活性,能够增强机体对致病菌的抵抗力[17]。地衣芽孢杆菌还可通过调节免疫酶的基因表达和分泌,调节机体免疫功能。研究显示,饲粮中添加地衣芽孢杆菌可显著提高鸡血清总抗氧化能力(total antioxidant capacity,T-AOC)和谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性,显著降低血清丙二醛(malondialdehyde,MDA)含量[12]。此外,地衣芽孢杆菌还能生成有机氮和有机硫等,可以有效降解恶臭气体[18],有益于肠道环境的净化,发挥除臭功能,间接改善机体免疫功能。

2 地衣芽孢杆菌对反刍动物胃肠道菌群及瘤胃发酵的调控作用

反刍动物的瘤胃微生物区系是由细菌、古细菌、原生动物和真菌组成的复杂的微生物群落。这些微生物群落将复杂的纤维基质转化为挥发性脂肪酸(volatile fatty acids,VFA)和氨态氮(ammonia nitrogen,NH3-N),并合成微生物蛋白(microprotein,MCP),为动物提供能量和营养物质[19]。瘤胃NH3-N和MCP浓度的变化反映了瘤胃微生物对氮的利用情况。Jia等[20]发现,添加地衣芽孢杆菌对瘤胃pH没有显著影响,但降低了瘤胃NH3-N浓度,提高了瘤胃发酵效率。乔国华等[21]研究表明,在荷斯坦奶牛饲粮中添加地衣芽孢杆菌使瘤胃内NH3-N浓度显著降低,同时通过增加奶牛瘤胃细菌总数促进瘤胃微生物对氨的利用。鲍文龙[22]报道,荷斯坦奶牛饲粮中添加副地衣芽孢杆菌可显著提高瘤胃MCP浓度,说明添加副地衣芽孢杆菌能够促进瘤胃细菌的合成能力,进而提高MCP合成的效率。由瘤胃中碳水化合物发酵而产生的VFA(如乙酸、丙酸、丁酸等)是反刍动物主要的能量来源,也是机体合成体脂肪、乳脂肪的重要原料。研究显示,地衣芽孢杆菌的添加显著提高了杜寒杂交肉羊瘤胃液中丙酸和丁酸浓度,显著降低了乙酸浓度和乙丙比[23]。在羔羊饲粮中单独添加地衣芽孢杆菌或与酿酒酵母复合添加可使羔羊瘤胃的乙酸率降低,丙酸率增加,且差异均达到显著水平[20]。但Qiao等[24]发现,地衣芽孢杆菌增加了瘤胃中乙酸的浓度,同时丙酸的浓度保持不变。以上不一致的试验结果可能是地衣芽孢杆菌菌株或试验品种的不同所导致,有待进一步试验验证。
瘤胃中乙酸与丙酸的产量及其比例是影响甲烷(methane,CH4)生成的关键因素。乙酸可促使CH4产生,并通过嗳气排出体外,其中部分能量不能为机体所用;而作为动物体内葡萄糖来源底物的丙酸,可以为动物提供有效能[23]。CH4的产量与乙酸产量、乙丙比成正比,与丙酸产量成反比[25]。Wang等[26]研究表明,在体外发酵过程中加入地衣芽孢杆菌可使乙酸浓度和乙丙比分别下降56.4%和31.9%,同时CH4产量降低4.8%。郑玮才等[27]在绵羊饲粮中添加不同浓度的地衣芽孢杆菌,结果显示,随着地衣芽孢杆菌添加量的增加,丙酸浓度先升高后降低,CH4含量先降低后升高,且当地衣芽孢杆菌添加量为2×10¹¹ CFU/kg时丙酸浓度达到最高(4.483 mmol/L),甲烷含量达到最低(26.83%)。这可能是因为瘤胃中丙酸浓度的增加减少了CH4合成底物中可利用氢的供应量,从而影响CH4 的产量[28];亦有可能是地衣芽孢杆菌进入瘤胃后与瘤胃微生物相互作用,抑制了甲烷菌和产氢菌的活性,通过改变菌群平衡使CH4 合成量减少。地衣芽孢杆菌对反刍动物瘤胃发酵的影响见表1
表1 地衣芽孢杆菌对反刍动物瘤胃发酵的影响

Table 1 Effects of Bacillus licheniformis on rumen fermentation in ruminants

试验动物
Experimental animals
试验方法
Experimental methods
对瘤胃发酵的影响(与对照组相比)
Effects on rumen fermentation
(compared with control group)
参考文献
References
育肥羔羊
Fattening lambs
在饲粮中添加4×10⁹ CFU/kg
地衣芽孢杆菌,持续饲喂66 d
瘤胃pH无显著差异,氨态氮(NH3-N)、
乙酸浓度和乙丙比显著降低,微生物
蛋白(MCP)、丙酸和丁酸浓度显著增加
Jia等[20]
中国荷斯坦奶牛(成年牛)
Chinese Holstein cows
(adult cows)
每天每头补饲5×10¹⁰ CFU
地衣芽孢杆菌,饲养试验
分3期,每期20 d
饲喂2和4 h后瘤胃中NH3-N浓度分别
降低了20.2%和9.9%,细菌
总数显著提高
乔国华等[21]
中国荷斯坦奶牛
Chinese Holstein cows
在发酵底物中添加不同浓度
(活菌数分别为108、109、1010个)的
副地衣芽孢杆菌,体外发酵72 h
瘤胃中MCP浓度显著增加 鲍文龙[22]
杜寒杂交肉羊
Dorper×Han crossbred
meat sheep
在饲粮中添加4×10⁹ CFU/kg
地衣芽孢杆菌,持续饲喂66 d
瘤胃中丙酸和丁酸浓度分别显著提高了
25.1%和16.7%,乙酸浓度和乙丙比
分别显著下降了8.7%和27.4%
贾鹏[23]
中国荷斯坦奶牛
Chinese Holstein cows
在饲粮中添加2×10⁹ CFU/g地衣芽孢
杆菌,饲养试验分3期,每期20 d
瘤胃中乙酸浓度显著增加,
丙酸浓度无显著变化
Qiao等[24]
奶牛
Dairy cows
在发酵底物(稻草秸秆)中添加不同剂量的
地衣芽孢杆菌(0.5×10¹⁰、1.0×10¹⁰
1.5×10¹⁰ CFU/kg),体外发酵48 h
瘤胃中乙酸浓度和乙丙比分
别下降56.4%和31.9%,
甲烷(CH4)产量下降4.8%
Wang等[26]
绵羊
Rams
发酵底物中添加6×10¹¹ CFU/kg
酿酒酵母+不同水平(1×10¹¹
2×10¹¹、3×10¹¹、4×10¹¹ CFU/kg)
的地衣芽孢杆菌,体外发酵48 h
酿酒酵母添加量一定时,地衣芽孢杆菌
添加量为2×10¹¹ CFU/kg组瘤胃中丙酸
浓度最高(4.483 mmol/L),甲烷产量
最低(26.83%),发酵效果最佳
郑玮才等[27]
反刍动物胃肠道菌群对植物性饲料中纤维的降解起着至关重要的作用,而地衣芽孢杆菌能够影响动物胃肠道菌群组成,改善瘤胃内环境,维持胃肠道健康。研究显示,在杜寒杂交肉羊饲粮中添加地衣芽孢杆菌后,羔羊瘤胃微生物中拉克氏梭状芽孢杆菌属10(Lachnoclostridium 10)的相对丰度显著提高,同时瘤胃微生物中黏胶球形菌门(Lentisphaerae)和软壁菌门(Tenericutes)的相对丰度均有升高的趋势[23]。拉克氏梭状芽孢杆菌属(Lachnoclostridium)是一种能将单糖、双糖转化为乙酸的细菌,而乙酸能够通过抗炎和免疫抑制作用有效地稳定肠道内环境[29]。在早期断奶羔羊饲粮中添加地衣芽孢杆菌显著提高了羔羊空肠内容物中双歧杆菌属(Bifidobacterium)和夏普氏菌属(Sharpea)的相对丰度[30]Bifidobacterium是一类能够预防或缓解传染性腹泻的肠道益生菌,而Sharpea能够生成乳酸,通过被肠道其他菌群利用进而转化为具有抗炎和改善肠道屏障功能的丁酸[31]。以上研究结果提示地衣芽孢杆菌能够在一定程度上影响羔羊胃肠道菌群。给犊牛饲喂地衣芽孢杆菌及其复合菌可使瘤胃发酵参数的稳定性增强,8周龄犊牛瘤胃液内的细菌种类数和优势条带数进一步提高,更有利于纤维降解菌在瘤胃中的定植和增殖[32]。由此推测,地衣芽孢杆菌及其复合菌可能通过调控瘤胃内环境、增强机体对饲料环境变化的抗性,进而促进犊牛的健康成长。饲粮中添加不同地衣芽孢杆菌可使绵羊和羔羊粪便中乳酸杆菌和双歧杆菌的数量增加以及大肠杆菌、肠球菌和酵母菌的数量减少[7],说明地衣芽孢杆菌在维持良好的肠道健康方面具有潜力。卢佳伟等[33]研究发现,地衣芽孢杆菌单独添加或与枯草芽孢杆菌复合添加均可提高拟杆菌门(Bacteroidetes)的丰度,减少变形菌门(Proteobacteria)的丰度,对脂质的吸收具有促进作用,有利于维持断奶山羊的肠道屏障。

3 地衣芽孢杆菌对反刍动物肠道及机体免疫功能的影响

幼龄反刍动物肠道内一部分来自初乳的特定菌群定植在肠道内,进而促使肠黏膜相关淋巴组织成熟。倘若不能建立适当的肠道菌群,会导致肠道免疫功能受损、淋巴组织发育不全、免疫细胞及抗体水平下降等,从而引发某些肠道疾病[34]。地衣芽孢杆菌作为一种益生菌,可通过调节胃肠道微生态环境来提高机体的免疫性能[35]。地衣芽孢杆菌通过促进机体免疫器官的发育,激活淋巴细胞,使自身的免疫球蛋白含量和抗体水平提高,进而增强机体特异性和非特异性免疫应答,使巨噬细胞的吞噬活性增加,从而提高机体的免疫功能。球蛋白能阻挡细菌入侵,发挥屏障作用;白蛋白能维持血浆胶体渗透压,运输各种物质,间接影响肝脏蛋白质形成功能。研究显示,饲粮中添加地衣芽孢杆菌和枯草芽孢杆菌能够提高绵羊血液中总蛋白质、白蛋白和球蛋白含量,减少血液中胆红素和胆固醇含量,同时提高了绵羊和羔羊的杀菌指数和吞噬指数[7]。Jia等[20]研究显示,在育肥羔羊饲粮中添加地衣芽孢杆菌显著提高了羔羊血清免疫球蛋白A(immunoglobulin A,IgA)、免疫球蛋白G(immunoglobulin G,IgG)和免疫球蛋白M(immunoglobulin M,IgM)的含量,有利于增强羔羊机体的免疫能力。
氧化应激会导致动物机体免疫力下降,影响动物健康和最终产品的质量[36]。细胞因子[白细胞介素-1α(interleukin-1α,IL-1α)、白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-4(interleukin-4,IL-4)、白细胞介素-6(interleukin-6,IL-6)、白细胞介素-8(interleukin-8,IL-8)、白细胞介素-10(interleukin-10,IL-10)、白细胞介素-12(interleukin-12,IL-12)、γ-干扰素(interferon-γ,IFN-γ)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)和转生长因子(transforming growth factor,TGF)等]可以诱导和触发免疫系统反应,对应激反应的调节发挥着重要作用[37]。Toll样受体4(Toll like receptor 4,TLR4)作为一种免疫细胞表面关键的非特异性免疫受体,通过连接蛋白髓样分化因子88(myeloid differentiation protein 88,MyD88)介导下游的炎症信号,从而激活核转录因子-κB(nuclear factor-kappa B,NF-κB),然后转入细胞核,引发促炎细胞因子分泌和免疫相关细胞的细胞反应[38]。研究显示,用地衣芽孢杆菌MCC 2514进行处理可使人结肠癌细胞系HT-29细胞的免疫平衡得到改善,其依据是IL-1αIL-6、IL-8、IL-12和TNF-α的表达下调以及IL-4、IL-10、TGF-2和TGF-3的表达上调[39]。郝安琦[40]研究发现,来自犊牛瘤胃液的地衣芽孢杆菌和枯草芽孢杆菌联合应用可显著降低试验动物血清中IL-6、IFN-γTNF-α的含量,显著提高IL-4的含量。三碘甲腺原氨酸(triiodothyronine,T3)能够提高机体抗应激能力。汤志宏等[41]发现,在热应激奶牛饲粮中添加芽孢杆菌与酵母培养物混合制成的复合益生菌可增加奶牛血清中T3的含量。Jia等[20]研究表明,地衣芽孢杆菌与酿酒酵母复合添加可显著提高羔羊血清超氧化歧物酶(superoxide dismutase,SOD)和GSH-Px的活性,通过维持机体氧化平衡,清除自由基来增强羔羊抗氧化性能。Qiao等[24]发现,饲粮中添加地衣芽孢杆菌可提高反刍动物的产奶量和乳品质量,同时可减缓应激状况,增强奶牛对环境的抵抗力。这可能归因于地衣芽孢杆菌产生的多种生物活性物质,它们有助于饲料消化、免疫系统调节和肠道屏障功能增强。但也有报道称,饲粮添加白藜芦醇和地衣芽孢杆菌没有改变早期断奶羔羊机体的抗氧化能力[30],这可能与羔羊的断奶应激状态有关。地衣芽孢杆菌对反刍动物肠道及机体免疫功能的影响见表2
表2 地衣芽孢杆菌对反刍动物肠道及机体免疫功能的影响

Table 2 Effects of Bacillus licheniformis on intestinal tract and organism immune function in ruminants

试验动物
Experimental animals
试验方法
Experimental methods
作用效果(与对照组相比)
Effectiveness
(compared with control group)
参考文献
References
绵羊、羔羊
Rams and lambs
饲粮中添加不同水平[绵羊:0、1和
3 g/(头·d);羔羊:0和1 g/(头·d)]
的地衣芽孢杆菌B-2999D与枯草
芽孢杆菌复合制剂(活菌数≥
5×10⁹ CFU/g),持续饲喂30 d
试验组羔羊血液中总蛋白、球蛋白
和尿素水平分别提高了5.3%、10.8%和
6.2%;同时试验组绵羊血液中总蛋白、
白蛋白、球蛋白的水平增加,胆红素和
胆固醇水平下降;以及试验组绵羊和
羔羊的杀菌指数、吞噬指数均增加
Devyatkin等[7]
育肥羔羊
Fattening lambs
饲粮中单独添加地衣芽孢杆菌
(4×10⁹ CFU/kg)或联合添加地衣
芽孢杆菌(6×10⁹ CFU/kg)和酿酒酵母
(4×10⁹ CFU/kg),持续饲喂66 d
单独添加地衣芽孢杆菌时:血清
中免疫球蛋白A、免疫球蛋白G和免疫球
蛋白M含量分别提高了37.2%、24.6%
和35.4%;地衣芽孢杆菌与酿酒酵母
联合添加时:血清中超氧化物歧化酶
和谷胱甘肽过氧化物酶活性分别
提高了21.4%和2.9%
Jia等[20]
热应激奶牛
Heat-stressed cows
饲粮中联合添加芽孢杆菌(地衣芽孢杆
菌+枯草芽孢杆菌,活菌数>1.2×
1011 CFU/g)与酵母培养物(活菌
数>3×10⁹ CFU/g),持续饲喂42 d
血清中三碘甲腺原氨酸含量显著
提高了20%
汤志宏等[41]
奶牛
Dairy cows
饲粮中添加2×10⁹ CFU/g
地衣芽孢杆菌,持续饲喂10周
产奶量和乳蛋白百分比显著增加,
同时可改善奶牛应激状况
Qiao等[24]
断奶羔羊
Weaned lambs
补饲地衣芽孢杆菌(60 mg/kg BW,
活菌数≥2×10⁹ CFU/g),
持续饲喂63 d
血清抗氧化指标(丙二醛含量、总抗氧
化能力及过氧化氢酶、超氧化物歧
化酶和谷胱甘肽过氧化物酶活性)
均无显著变化
王世琴[30]
此外,地衣芽孢杆菌通过提高动物肠道菌群结构及微生物群落的稳定性,维持肠道生物屏障,从而有效抵御外界致病菌的侵袭,增强肠道免疫屏障功能[3]。肠道屏障的完整性在维持上皮细胞功能方面发挥着重要作用,因为上皮细胞对某些病原体及其毒素是可渗透的。参与紧密连接的跨膜蛋白[封闭蛋白(claudin)、闭合蛋白(occludin)和闭锁小蛋白(zonula occluden,ZO)]负责连接上皮细胞并调节细胞旁和细胞内的渗透性[38]。Li等[5]研究表明,地衣芽孢杆菌可通过减轻肠道损伤和改善紧密连接来维持动物肠道屏障完整性,并显著增加了乳杆菌和乳球菌的比例。在体外试验中发现,地衣芽孢杆菌PF9可以增加产肠毒素大肠杆菌F4感染后肠上皮细胞中ZO-1和occludin的表达水平[42]。地衣芽孢杆菌还可用于胃肠道疾病的治疗。研究表明,地衣芽孢杆菌与枯草芽孢杆菌联合饲喂使断奶山羊的腹泻率显著降低[33]。地衣芽孢杆菌对犊牛腹泻也具有良好的改善效果,而且与中药复方联合使用效果更好[43]。这可能是由于地衣芽孢杆菌通过促进有益微生物的定植而抑制了肠道中大肠杆菌的增殖,或是产生了能中和肠毒素的某些代谢产物。在奶牛饲粮中加入含有地衣芽孢杆菌的复合菌剂,提高了奶牛血清中可溶性CD3(sCD3)的含量,同时对促炎因子的分泌具有抑制作用,从而减轻了奶牛的炎症反应,改善了奶牛的免疫功能,使其抗病能力增强[44]。地衣芽孢杆菌对反刍动物胃肠道疾病的治疗效果见表3
表3 地衣芽孢杆菌对反刍动物胃肠道疾病的治疗效果

Table 3 Therapeutic effect of Bacillus licheniformis on gastrointestinal diseases in ruminants

试验动物
Experimental
animals
饲养时间
Feeding
period/d
添加方式及添加剂量
Adding method and
amount
试验结果(与对照组相比)
Experimental results
(compared with control group)
参考文献
References
断奶山羊
Weaned goats
40 地衣芽孢杆菌与枯草芽孢杆菌
复合添加(添加量分别为
400 mg/kg,有效活菌数均为
1×10¹¹ CFU/g)
腹泻率下降了61.7% 卢佳伟等[33]
腹泻犊牛
Diarrhea calves
5 牦牛源地衣芽孢杆菌单独
添加,2.5 g/次(108 CFU)
降低了腹泻犊牛临床评分,
改善犊牛腹泻程度
龚赛赛等[43]
腹泻犊牛
Diarrhea calves
5 2.5 g/次(108 CFU)地衣芽孢
杆菌与中药复方联合添加
降低腹泻犊牛临床评分 龚赛赛等[43]
奶牛(泌乳中期)
Dairy cows
(mid-lactation)
60 添加地衣芽孢杆菌复合菌
剂[400 g/(头·d)]
血清中可溶性CD3含量在第30天
时显著增加,白细胞介素-1β、
白细胞介素-6、白细胞介素-8、
γ-干扰素、肿瘤坏死因子-α
含量显著降低,减轻了奶牛炎症
反应,改善了其免疫功能
胡鸿喆[44]

4 地衣芽孢杆菌在反刍动物肠道内的定植研究

益生菌在动物肠道中的定植能力是其发挥作用的关键要素之一,一般定植在动物消化道表面,与病原体共同竞争附着位点[45]。而益生菌定植于宿主肠道的前提是与肠道上皮细胞组织的黏附作用,它决定着定植的成功和益生菌在宿主肠道中的持久性[46]。细菌的黏附一般要经历4个阶段,即细菌向新的底物转移、与底物的非特异性黏附、黏附素与肠上皮细胞表面受体结合发生特异性黏附以及在底物组织上的增殖。研究报道,益生菌能够黏附在宿主肠道上皮细胞微绒毛的纹状缘和黏膜层上,防止因肠蠕动而带走,同时能够刺激肠上皮细胞分泌防御素、抗菌肽、SCFA和细菌素等,从而抑制病原菌的增殖,并能产生与病原菌表面抗原相结合的分泌型免疫球蛋白A(secreted immunoglobulin A,sIgA)以保护肠黏膜免受外源微生物入侵;此外,益生菌还可与病原菌争夺生存与繁殖的吸附位点和营养物质,抑制肠道病原体的生长(图1)[47]。芽孢杆菌在其生长发育后期会在细胞中产生一种具有极低含水量和极强抗逆性的椭圆形厚壁休眠体,即为芽孢。芽孢杆菌的孢子可以在肠道中发芽、定植并充当益生菌[48]。已有研究表明,地衣芽孢杆菌可以在肠上皮细胞中定植而不会对细胞造成任何损害[49-50]。符运勤[32]为明确地衣芽孢杆菌能否于后备牛胃肠道内长期定植,他以52周龄荷斯坦后备牛为试验对象,分别于停喂地衣芽孢杆菌1、3、5、7和14 d后取粪样进行芽孢数检测,结果表明,地衣芽孢杆菌组粪便芽孢数随停喂天数的增加而显著降低,且停喂1和3 d其粪便芽孢数量较对照组明显增加,停喂5 d及5 d以后时则与对照组相比无显著差异。这说明地衣芽孢杆菌对后备牛的消化道内环境有较强的耐受性,可存活直至通过粪便排出,但不能长时间在肠道中定植。而犊牛的胃肠道微生物区系正在形成,当饲喂芽孢杆菌后,虽然它难以在机体肠系黏膜上皮中定植,但芽孢杆菌会对其他微生物的定植产生一定影响[51]。郝安琦[40]通过肠道定植试验也表明地衣芽孢杆菌不能长期定植在肠道内,会随粪便排出体内。怎样通过增加益生菌在动物肠道内的定植时间来提高益生菌的使用效率可作为进一步的研究方向。
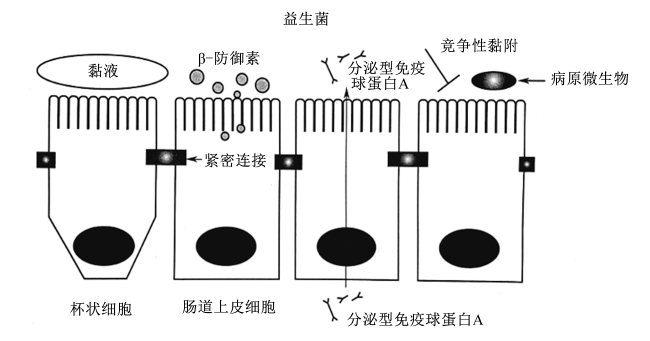
图1 益生菌与肠上皮屏障作用机制

Fig.1 Mechanism of action of probiotics and intestinal epithelial barrier[47]

5 小结

近年来,地衣芽孢杆菌作为新型微生物制剂逐渐受到广泛关注。地衣芽孢杆菌对反刍动物肠道微生态的调控发挥着一定积极作用,其对反刍动物的影响机制还尚未阐明。对地衣芽孢杆菌在反刍动物上的应用效果及作用机理进行深入系统地研究,进而筛选出不同生理阶段、不同饲喂条件和不同生产目的反刍动物所适用的地衣芽孢杆菌菌株是今后研究的重点。
[1]
HUGO R O, BERNARDO R B, ALEJANDRA C S R. Potential application of the probiotic Bacillus licheniformis as an adjuvant in the treatment of diseases in humans and animals:a systematic review[J]. Frontiers in Microbiology, 2022, 13:993451-993451.

DOI

[2]
RAMLUCKEN U, RAMCHURAN S O, MOONSAMY G, et al. A novel Bacillus based multi-strain probiotic improves growth performance and intestinal properties of Clostridium perfringens challenged broilers[J]. Poultry Science, 2020, 99(1):331-341.

DOI

[3]
WANG Y, DU W, LEI K, et al. Effects of dietary Bacillus licheniformis on gut physical barrier,immunity,and reproductive hormones of laying hens[J]. Probiotics Antimicrob Proteins, 2017, 9(3):292-299.

DOI

[4]
MAKOWSKI K, LESZCZEWICZ M, BRONCEL N, et al. Isolation,biochemical characterisation and identification of thermotolerant and cellulolytic Paenibacillus lactis and Bacillus licheniformis[J]. Food Technology and Biotechnology, 2021, 59(3):325-336.

DOI

[5]
LI L, WANG M, CHEN J, et al. Preventive effects of Bacillus licheniformis on heat stroke in rats by sustaining intestinal barrier function and modulating gut microbiota[J]. Frontiers in Microbiology, 2021, 12:630841-630841.

DOI

[6]
袁慧坤, 马倩, 袁文华, 等. 地衣芽孢杆菌的研究进展[J]. 黑龙江畜牧兽医, 2019(11): 43-45.

YUAN H K, MA Q, YUAN W H, et al. Research progress of Bacillus licheniformis[J]. Heilongjiang Animal Science and Veterinary Medicine, 2019(11):43-45. (in Chinese)

[7]
DEVYATKIN V, MISHUROV A, KOLODINA E. Probiotic effect of Bacillus subtilis B-2998D, B-3057D,and Bacillus licheniformis B-2999D complex on sheep and lambs[J]. Journal of Advanced Veterinary and Animal Research, 2021, 8(1):146-157.

[8]
SALEH A A, DAWOOD M M, BADAWI N A, et al. Effect of supplemental serine-protease from Bacillus licheniformis on growth performance and physiological change of broiler chickens[J]. Journal of Applied Animal Research, 2020, 48(1):86-92.

DOI

[9]
HONG B, KIM B G. Supplemental phytase increases phosphorus digestibility in pigs regardless of phytase source or feed pelleting[J]. Animal Feed Science and Technology, 2021, 276:114901-114901.

DOI

[10]
ZHANG G, CHEN Y, LI Q, et al. Growth-coupled evolution and high-throughput screening assisted rapid enhancement for amylase-producing Bacillus licheniformis[J]. Bioresource Technology, 2021, 337:125467-125467.

DOI

[11]
BARZKAR N, BABICH O, DAS R, et al. Marine bacterial dextranases:fundamentals and applications[J]. Molecules, 2022, 27(17):5533-5533.

DOI

[12]
秦宋柯, 崔振川, 李慧, 等. 地衣芽孢杆菌对黄羽肉鸡生长性能、免疫和抗氧化功能以及肠道菌群的影响[J]. 动物营养学报, 2023, 35(2):865-873.

DOI

QIN S K, CUI Z C, LI H, et al. Effects of Bacillus licheniformis on growth performance,immune and antioxidant functions and intestinal flora of yellow-feather broilers[J]. Chinese Journal of Animal Nutrition, 2013, 35(2):865-873. (in Chinese)

[13]
YE Y, YU D, LIU Q, et al. Nutritional composition of fresh carcass of turbot fed with Bacillus subtilis SMF1,B.licheniformis LMF1 and B.siamensis DL3 and its relationship with intestinal flora[J]. Animal Feed Science and Technology, 2023, 300:115627-115627.

DOI

[14]
PATTNAIK P, KAUSHIK J K, GROVER S, et al. Purification and characterization of a bacteriocin-like compound (Lichenin) produced anaerobically by Bacillus licheniformis isolated from water buffalo[J]. Journal Applied Microbiology, 2001, 91(4):636-645.

DOI

[15]
KOOK S Y, LEE Y, JEONG E C, et al. Immunomodulatory effects of exopolysaccharides produced by Bacillus licheniformis and Leuconostoc mesenteroides isolated from Korean kimchi[J]. Journal of Functional Foods, 2019, 54:211-219.

DOI

[16]
杜瑞, 王柏辉, 罗玉龙, 等. 益生菌调控胃肠道菌群改善肉品质的研究进展[J]. 微生物学通报, 2019, 46(9):2378-2385.

DU R, WANG B H, LUO Y L, et al. Advance in studying the effect of probiotics on gastrointestinal tract microorganism to improve meat quality[J]. Microbiology China, 2019, 46(9):2378-2385. (in Chinese)

[17]
石艳, 李军, 李常挺, 等. 地衣芽孢杆菌的分离鉴定及其抑菌活性分析[J]. 黑龙江畜牧兽医, 2023(3):62-66.

SHI Y, LI J, LI C T, et al. Isolation and identification of Bacillus licheniformis and analysis of its antibacterial activity[J]. Heilongjiang Animal Science and Veterinary Medicine, 2023(3):62-66. (in Chinese)

[18]
杨鑫, 孙浩轩, 陈影, 等. 地衣芽孢杆菌的特性及其在生猪养殖中应用的研究进展[J]. 中国饲料, 2023(1):23-28.

YANG X, SUN H X, CHEN Y, et al. Research progress on the characteristics of Bacillus licheniformis and its application in pig breeding[J]. China Feed, 2023(1):23-28. (in Chinese)

[19]
JEONG M H, LEE Y S, CHO J Y, et al. Isolation and characterization of metabolites from Bacillus licheniformis MH48 with antifungal activity against plant pathogens[J]. Microbial Pathogenesis, 2017, 110:645-653.

DOI

[20]
JIA P, CUI K, MA T, et al. Influence of dietary supplementation with Bacillus licheniformis and Saccharomyces cerevisiae as alternatives to monensin on growth performance antioxidant immunity ruminal fermentation and microbial diversity of fattening lambs[J]. Scientific Reports, 2018, 8(1):1-10.

[21]
乔国华, 单安山. 益生素对奶牛生产性能及瘤胃发酵影响的研究[J]. 中国奶牛, 2007(03):10-14.

QIAO G H, DAN A S. Study of the effect of probiotics on performance and rumen fermentation in dairy cattle[J]. China Dairy Cattle, 2007(03):10-14. (in Chinese)

[22]
鲍文龙. 酮病奶牛瘤胃微生物多样性分析与副地衣芽孢杆菌对奶牛体外瘤胃发酵特性的影响[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2021.

BAO W L. Analysis of rumen microbial diversity in ketosis cows and effect of Bacillus paralicheniformis on rumen fermentation characteristics in vitro[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2021. (in Chinese)

[23]
贾鹏. 不同生物制剂对杜寒杂交肉羊生产性能、物质消化和瘤胃微生物区系的影响[D]. 硕士学位论文. 乌鲁木齐: 新疆农业大学, 2018.

JIA P. Effect of different dirtary biological agents on growth performance,nutrient digestion and ruminal microbial flora of Dorper×thin-tailed Han crossbred mutton lambs[D]. Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2018. (in Chinese)

[24]
QIAO G H, SHAN A S, MA N, et al. Effect of supplemental Bacillus cultures on rumen fermentation and milk yield in Chinese Holstein cows[J]. Journal of Animal Physiology and Animal Nutrition, 2010, 94(4):429-436.

[25]
肖怡. 三种益生菌对肉羊甲烷排放、物质代谢和瘤胃发酵的影响[D]. 硕士学位论文. 阿拉尔: 塔里木大学, 2016.

XIAO Y. Effects of three probiotics on methane emission, nutrient metabolism and rumen fermentation in mutton sheep[D]. Master’s Thesis. Ala: Tarim University, 2016. (in Chinese)

[26]
WANG Z, HE Z, BEAUCHEMIN K A, et al. Comparison of two live Bacillus species as feed additives for improving in vitro fermentation of cereal straws[J]. Nihon Chikusan Gakkaiho, 2016, 87(1):27-36.

[27]
郑玮才, 郝小燕, 张春香, 等. 酿酒酵母和地衣芽孢杆菌对绵羊瘤胃体外发酵的影响[J]. 中国畜牧兽医, 2019, 46(11):3208-3215.

ZHENG W C, HAO X Y, ZHANG C X, et al. Effect of Saccharomyces cerevisiae and Bacillus licheniformis on rumen fermentation in sheep in vitro[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(11):3208-3215. (in Chinese)

[28]
BAN Y, GUAN L L. Implication and challenges of direct-fed microbial supplementation to improve ruminant production and health[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):316-337.

[29]
NOGAL A, LOUCA P, ZHANG X, et al. Circulating levels of the short-chain fatty acid acetate mediate the effect of the gut microbiome on visceral fat[J]. Frontiers in Microbiology, 2021, 12:711359-711359.

DOI

[30]
王世琴. 断奶应激及饲喂白藜芦醇和地衣芽孢杆菌对羔羊胃肠道发育及其微生物区系的影响[D]. 博士学位论文. 兰州: 兰州大学, 2020.

WANG S Q. Effects of weaning stress and supplementation of resveratrol and Bacillus licheniformis on gastrointestinal development and microflora in lambs[D]. Ph.D.Thesis. Lanzhou: Lanzhou University, 2020. (in Chinese)

[31]
LIN L, XIE F, SUN D, et al. Ruminal microbiome-host crosstalk stimulates the development of the ruminal epithelium in a lamb model[J]. Microbiome, 2019, 7(1):1-16.

DOI

[32]
符运勤. 地衣芽孢杆菌及其复合菌对后备牛生长性能和瘤胃内环境的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2012.

FU Y Q. Effects of Bacillus licheniformis and its combinations on growth performance and ruminal environment in replacement cattle[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2012. (in Chinese)

[33]
卢佳伟, 王金刚, 高琴, 等. 不同益生菌对断奶山羊生长性能、血清生化指标以及粪便菌群的影响[J]. 动物营养学报, 2021, 33(5):2752-2764.

DOI

LU J W, WANG J G, GAO Q, et al. Effects of different probiotics on growth performance,serum biochemical indexes and fecal microflora of weaned goats[J]. Chinese Journal of Animal Nutrition, 2021, 33(5):2752-2764. (in Chinese)

[34]
ZHOU B, YUAN Y, ZHANG S, et al. Intestinal flora and disease mutually shape the regional immune system in the intestinal tract[J]. Frontiers in Immunology, 2020, 11:575-575.

DOI PMID

[35]
PALKOVICSNÉ P N, KOVÁCS D, RÁCZ B, et al. Effects of Bacillus licheniformis and Bacillus subtilis on gut barrier function,proinflammatory response,ROS production and pathogen inhibition properties in IPEC-J2-Escherichia coli/Salmonella typhimurium co-culture[J]. Microorganisms, 2022, 10(5):936-936.

DOI

[36]
CAMILA P R, MARIA D C, ALBERTO Q, et al. Biomarkers of oxidative stress in saliva of sheep:Analytical performance and changes after an experimentally induced stress[J]. Research in Veterinary Science, 2019, 123:71-76.

DOI

[37]
GUANGXIN G, CHAO L, BIN X, et al. The efficacy of lactic acid bacteria usage in turbot Scophthalmus maximus on intestinal microbiota and expression of the immune related genes[J]. Fish and Shellfish Immunology, 2020, 100(C):90-97.

[38]
HAN Y, XU X, WANG J, et al. Dietary Bacillus licheniformis shapes the foregut microbiota,improving nutrient digestibility and intestinal health in broiler chickens[J]. Frontiers in Microbiology, 2023, 14:1113072-1113072.

DOI

[39]
ROHITH H S, HALAMI P M. The combined effect of potential probiotic Bacillus licheniformis MCC 2514 and Bifidobacterium breve NCIM 5671 towards anti-inflammatory activity on HT-29 cell lines[J]. Probiotics Antimicrob Proteins, 2023, 15(2):351-362.

DOI

[40]
郝安琦. 犊牛瘤胃芽孢杆菌分离鉴定及对小鼠腹泻模型作用的初步研究[D]. 硕士学位论文. 延吉: 延边大学, 2022.

HAO A Q. Isolation and identification of bovine rumen Bacillus and its effect on diarrhea model in mice[D]. Master’s Thesis. Yanji: Yanbian University, 2022. (in Chinese)

[41]
汤志宏, 徐宁宁, 叶均安. 复合益生菌和酵母培养物对热应激奶牛生产性能、瘤胃发酵和血清抗应激指标的影响[J]. 浙江大学学报(农业与生命科学版), 2019, 45(5):611-618.

TANG Z H, XU N N, YE J A. Effect of compound probiotics and yeast culture on milk production,rumen fermentation and serum anti-stress parameters of heat-stressed dairy cows[J]. Journal of Zhejiang University (Agriculture and Life Science), 2019, 45(5):611-618. (in Chinese)

[42]
LI Q, LI L, CHEN Y, et al. Bacillus licheniformis PF9 improves barrier function and alleviates inflammatory responses against enterotoxigenic Escherichia coli F4 infection in the porcine intestinal epithelial cells[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):86-86.

DOI

[43]
龚赛赛, 张朝, 全楚娴, 等. 自拟中药复方与牦牛源地衣芽孢杆菌联合治疗犊牛腹泻的效果[J]. 动物医学进展, 2023, 44(2):56-60.

GONG S S, ZHANG C, QUAN C X, et al. Effect of self-formulated Chinese medicine compound combined with Bacillus licheniformis of yak origin on treament of calf diarrhea[J]. Progress in Veterinary Medicine, 2023, 44(2):56-60. (in Chinese)

[44]
胡鸿喆. 复合菌剂对奶牛生产性能、血液指标及瘤胃发酵的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2021.

HU H Z. Effects of compound bacteria agent on milking performance,blood indexes and rumen fermentation in dairy cows[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2021. (in Chinese)

[45]
LIU Q, YU Z, TIAN F, et al. Surface components and metabolites of probiotics for regulation of intestinal epithelial barrier[J]. Microbial Cell Factories, 2020, 19(1):23-23.

DOI PMID

[46]
ZHAO D, WU S G, FENG W W, et al. Adhesion and colonization properties of potentially probiotic Bacillus paralicheniformis strain FA6 isolated from grass carp intestine[J]. Fisheries Science, 2020, 86(1):153-161.

DOI

[47]
MONTEAGUDO-MERA A, RASTALL R A, GIBSON G R, et al. Adhesion mechanisms mediated by probiotics and prebiotics and their potential impact on human health[J]. Appled Microbiology and Biotechnology, 2019, 103(16):6463-6472.

[48]
LI Y, LIU M, ZHOU J, et al. Bacillus licheniformis Zhengchangsheng(R) attenuates DSS-induced colitis and modulates the gut microbiota in mice[J]. Beneficial Microbes, 2019, 10(5):543-553.

DOI

[49]
ZENG Z, YUE W, KINED C, et al. Bacillus licheniformis reverses the environmental ceftriaxone sodium-induced gut microbial dysbiosis and intestinal inflammation in mice[J]. Ecotoxicology and Environmental Safety, 2023, 257:114890-114890.

DOI

[50]
HSU T C, YI P J, LEE T Y, et al. Probiotic characteristics and zearalenone-removal ability of a Bacillus licheniformis strain[J]. PLoS One, 2018, 13(4):e194866.

[51]
TAJIMA K, NONAKA I, HIGUCHI K, et al. Influence of high temperature and humidity on rumen bacterial diversity in Holstein heifers[J]. Anaerobe, 2007, 13(2):57-64.

PMID

Outlines

/