REVIEW

Sources, Functions and Detection Methods of Glycerol Backbone in Milk

  • QI Yingjie ,
  • ZHENG Nan ,
  • WANG Jiaqi ,
  • ZHANG Yangdong , *
Expand
  • State Key Laboratory of Animal Nutrition, Milk and Milk Products Inspection Center of Ministry of Agriculture and Rural Affairs, Laboratory of Quality and Safety Risk Assessment for Dairy Products of Ministry of Agriculture and Rural Affairs, Key Laboratory of Quality & Safety Control for Milk and Dairy Products of Ministry of Agriculture and Rural Affairs, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
*associate professor, E-mail:

Received date: 2023-04-07

  Online published: 2023-10-12

Abstract

Glycerol backbone is a structural component of milk fat and plays an important role in physiological functions and medical applications. This article reviewed the sources, functions and detection methods of glycerol backbone in milk, in order to provide a reference for further research on the physiological functions of glycerol backbone in milk and its relationship with human health, as well as for the development of faster and more accurate detection techniques.

Cite this article

QI Yingjie , ZHENG Nan , WANG Jiaqi , ZHANG Yangdong . Sources, Functions and Detection Methods of Glycerol Backbone in Milk[J]. Chinese Journal of Animal Nutrition, 2023 , 35(10) : 6198 -6206 . DOI: 10.12418/CJAN2023.569

脂肪是乳中重要的能量供应物质,乳脂是哺乳动物脂质的主要来源之一,也是婴幼儿膳食中脂肪的唯一来源,其成分对哺乳动物的成长和发育具有至关重要的影响。乳脂由不同脂类物质的复杂混合物组成[1],其中的脂类在乳浆中以乳脂肪球的形式分散形成乳浊液,乳脂肪球的大小和分布对乳汁的口感和质量起着决定性作用。甘油三酯在乳脂中所占比例高达98%以上[2],由1个甘油骨架和3个脂肪酸酯化形成[3]。甘油骨架是乳脂的结构成分,对乳的颜色、香味、味道、黏稠度以及结构都有重要的影响。甘油骨架可以防止乳液的分离,保证乳液的稳定性[4-5],并且在加工过程中具有润滑作用。此外,甘油骨架还可以通过改变乳的动力学性质[6],提高乳的流动性和延展性。因此,探究乳中甘油骨架的来源、作用及检测方法对深入了解乳汁合成和代谢具有非常重要的意义。

1 乳中甘油骨架的来源及其影响因素

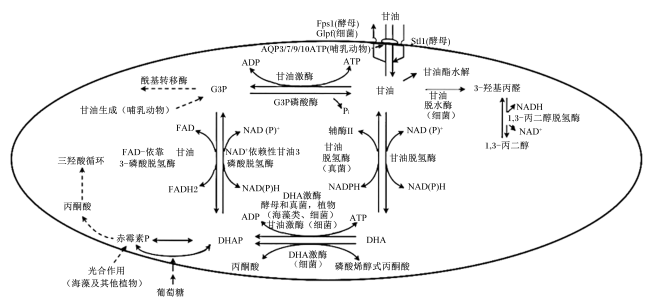
甘油骨架,也称为甘油,是一种从葡萄糖中提取的三碳分子结构物质,是乳中发现的许多重要脂质,包括甘油三酯、磷脂和鞘脂等[7]的骨架结构。乳中甘油通常有3种来源:第1种是通过葡萄糖合成甘油,即葡萄糖通过糖异生途径转化成甘油(图1)[8];第2种是通过饮食的摄入,人和动物摄入的脂肪和碳水化合物等营养物质可以在肝脏和其他组织中代谢生成甘油,并进入乳汁;第3种来源是乳腺的重新合成,即在乳腺内部的脂肪酸通过脂肪酸合成途径再次合成甘油三酯,产生甘油,并进入乳汁中。这些不同来源的甘油可以影响乳脂合成和营养价值。乳中甘油骨架的来源比例可能会因多种因素而有所变化,如饲养、季节、妊娠期、泌乳期、奶牛品种及产地等。因此,乳中甘油骨架的具体比例可能会因试验条件和研究对象的不同而有所差异,目前尚缺乏统一的数据。
图1 甘油合成途径

G3P:甘油醛-3-磷酸 glyceraldehyde-3-phosphate;Fps1:法呢基二磷酸合酶1 farnesyl diphosphate synthase 1;Glpf:甘油摄取促进蛋白 glycerol uptake facilitator protein;Stl1:糖转运蛋白样1 sugar transporter like 1;AQP:水通道蛋白 aquaporin;FAD:黄素腺嘌呤二核甘酸 flavin adenine dinucleotide;FADH2:还原型黄素腺嘌呤二核苷酸 reduced flavin adenine dinucleotide;NAD+:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide;NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide;NAD(P)+:烟酰胺腺嘌呤二核苷酸磷酸 nicotinamide adenine dinucleotide phosphate;NAD(P)H:还原型烟酰胺腺嘌呤二核苷酸磷酸 reduced nicotinamide adenine dinucleotide phosphate;DHA:二羟基丙酮 dihydroxyacetone;DHAP:二羟基丙酮磷酸 dihydroxyacetone phosphate;ADP:二磷酸腺苷 adenosine diphosphate;ATP:三磷酸腺苷 adenosine triphosphate。

Fig.1 Glycerol synthesis pathway[8]

1.1 葡萄糖合成甘油

乳中甘油骨架的主要来源是肝脏中产生并释放到血液中的葡萄糖[9]。这种葡萄糖被乳腺吸收,并用作于合成乳脂的能量和碳来源。在乳腺中,葡萄糖经过糖酵解途径,被磷酸化成为葡萄糖-6-磷酸(glucose-6-phosphate,G6P),G6P经过磷酸异构酶的作用被转化为果糖-6-磷酸(fructose-6-phosphate,F6P),F6P在酸解酶的作用下生成2分子的磷酸甘油酸(phosphoglycerate,PG)[10]。在生物体内,PG和ATP经过磷酸甘油酸激酶的催化作用,被磷酸化成为1,3-二磷酸甘油酸(1,3-bisphosphoglycerate,1,3-BPG)和ADP,其中1,3-BPG是由1,3-二磷酸甘油酸脱水酶作用后得到的二羟基丙酮磷酸(dihydroxyacetone phosphate,DHAP)[11]。DHAP可以被甘油磷酸脱氢酶(glycerol phosphate dehydrogenase,GPDH)催化转变为甘油醛-3-磷酸(glyceraldehyde-3-phosphate,G3P),G3P可以与脂肪酸结合形成甘油三酯[12],而甘油三酯是乳中发现的主要脂质类型。这个途径中,GPDH催化DHAP转化为G3P并因此提供甘油三酯生物合成前体的酶,被认为是此过程的关键酶[8]。因此,乳腺细胞主要通过葡萄糖代谢的脂肪酸合成途径合成甘油骨架,同时将其与其他脂肪酸结合形成甘油三酯,并分泌到乳汁中。

1.2 饲粮摄入

除葡萄糖外,乳中甘油骨架的其他来源包括饮食的摄入,如甘油和其他脂质[13-15]。母体食物中的甘油也可以通过肠道吸收进入母体循环系统,并最终通过乳腺细胞的代谢作用输送到乳汁中。但母体循环系统中的甘油并不是专门为乳汁合成而存在的,而是来自于全身各个组织和器官的甘油代谢产物。甘油摄取与其他不带电的小分子一样,甘油可以通过被动扩散穿过细胞质膜[16],细胞内甘油可通过甘油激酶转化为G3P,或通过甘油醛-3-磷酸脱氢酶还原DHAP而形成G3P[17]。在甘油代谢过程中,甘油激酶在肝脏中具有高度活性[18],而在脂肪组织和骨骼肌中的活性相对较低[19]。这种组织间的活性差异可能与其代谢需求和功能有关。葡萄糖通常被认为是白色和棕色脂肪组织、骨骼肌和肝脏中G3P合成的主要碳源。然而,葡萄糖和丙酮酸盐在甘油合成途径中的相对定量贡献尚未在体内进行系统检查。甘油生成,即从葡萄糖和甘油以外的前体(即丙酮酸盐、乳酸盐、丙氨酸和柠檬酸循环阴离子)从头合成G3P,长期以来一直被认为是脂肪组织中甘油三酯甘油形成的潜在途径[7]

1.3 乳腺重新合成

乳腺组织内的脂肪细胞可以合成甘油,并通过脂蛋白的转运作用输送到乳腺细胞内。在此合成过程中,又有很多酶和辅助因子的参与,例如,1)脂肪酸运输:脂肪酸从乳腺细胞内运输到乳脂肪微粒上需要脂肪酸运输蛋白的参与;2)脂肪酸酯化:酯化酶将脂肪酸与乳酸酯缩合形成脂肪酸酯;3)脂肪酸酯偶联:脂肪酸酯偶联酶将脂肪酸酯之间进行偶联,形成脂肪酸酯链;4)甘油骨架的形成:脂肪酸酯酶将脂肪酸酯链进行加工,形成甘油骨架,并将其输送到乳汁中。同样,乳腺细胞将甘油与脂肪酸结合,形成甘油三酯,并通过脂蛋白介导,运输到乳汁中。
这个过程可以在生物体内不断重复,从而不断扩大甘油骨架,增加其能量储存量。在甘油骨架形成途中,还受到许多因素的影响,如遗传、生理、营养改变、脂肪含量和脂肪酸酯的种类酶的活性等[20]。因此,在进行甘油骨架的研究时,需要考虑多种因素的影响。

2 甘油骨架的功能

甘油是一种具有多功能的化学物质,被广泛应用于制药、食品、化妆品和其他行业,甘油的作用见表1[21-25]。近年来,关注甘油的人越来越多,虽然乳中甘油的功能研究相对较少,但在生理和病理上却被广泛的研究。
表1 甘油的作用

Table 1 Functions of glycerol

作用
Functions
描述
Description
参考文献
References
润滑剂 Lubricant 甘油可以通过与水分子形成氢键来吸收和保留水分,从而起到润滑作用 [21]
保湿剂 Humectant 甘油可以吸引和锁定空气中的水分子,保持皮肤和黏膜的湿润度 [21]
温和表面活性剂 Mild surfactant 甘油可以减少其他表面活性剂的刺激性,同时保护皮肤和头发的天然油脂 [22]
增加水合状态 Increase hydration 甘油可通过减少与脱水相关的不良生理变化来提高耐力运动表现 [23]
抗氧化剂 Antioxidant 甘油可以减少自由基的生成和损伤,从而起到抗氧化作用 [24]
载体 Carrier 甘油可以作为药物和其他成分的载体,促进它们的吸收和传递 [25]

2.1 在生理上发挥水合作用和提高能量供应

乳中甘油作为乳汁的组成成分,具有多种生理作用,其中包括良好的保湿作用。根据甘油的强吸湿性,可以通过吸收周围环境中的水分来增加皮肤表面的水分含量,并通过减缓水分的蒸发速度,从而使皮肤表面的水分得以保持更长时间。甘油还可以通过渗透作用将水分从深层皮肤引导到表层皮肤,从而使皮肤达到保湿效果,增强皮肤的弹性和柔软度。此外,甘油还可以形成一层保护膜,防止水分的流失和外界的刺激,从而进一步提高皮肤和黏膜的湿润度[21]。甘油可以增强和维持水合状态,如针对冬季干燥症,甘油在增加表皮水合作用是至关重要的[22]
甘油还能提高耐力运动表现,延长耐力时间来增加功率。研究表明,脱水是耐力运动中常见的问题,会导致体温调节受损、心血管负担增加以及肌肉功能下降等不良生理变化[23]。含有甘油的饮料可以增强和维持水合状态,并可能通过减少与脱水相关的不良生理变化来提高耐力运动表现,延长耐力时间从而增加功率,从精力充沛持续到精疲力竭,最高可提高5%~24%的效率[23]
此外,甘油在生物体内还扮演着多重角色。它是脂肪的组成部分,有助于脂溶性维生素的吸收和利用,并且作为一种糖原前体,可以被人体利用为能量来源,用来维持生命活动[25];能防止细胞膜的过度脱水[26],保护乳腺细胞和细胞膜,并具有一定的抗氧化作用[24],减少细胞损伤和老化;还能作为一种温和的泻药,缓解便秘和胀气,保持肠道健康[27]。甘油还具有很多生理作用,这些作用对于生物的生长发育和免疫系统的发育都具有重要的作用。

2.2 在病理上具有诊断和调节作用

甘油作为备受青睐的医药添加剂被广泛用于口服药物中,以提高药物的协同效应和稳定性[28]。此外,甘油还可直接检测某些疾病或成为疾病检测的指标之一,在医学上具有广泛的应用前景。
血液中甘油浓度的测量可作为一种非侵入性的肝脏功能检查方法,用于早期检测肝病和监测病情进展[29]。肝脏是合成和分解甘油的主要器官,而肝脏受损或患病时其代谢和分解甘油的能力会降低,导致血液中甘油浓度升高。此外,研究还发现,血液中甘油浓度与非酒精性脂肪肝、肝纤维化等肝病的发生和进展相关[30],因此可能成为这些疾病的潜在生物标志物。但血液中甘油浓度的检测并不足以作为单一的肝病诊断标准,需结合其他临床指标和检查结果进行综合评估。
乳中甘油具有一定的免疫调节作用[31]。甘油可以作为代谢物被免疫细胞利用,如巨噬细胞、树突状细胞和T细胞等。在T细胞的分化和功能中,甘油通过参与葡萄糖-甘油循环来调节T细胞的能量代谢,从而对T细胞的增殖、分化和功能发挥调节作用,进而调节机体的免疫反应。还有一些研究表明,乳中甘油可以作为肠道微生物的碳源和能量来源,促进有益菌的生长和代谢活动[27,32]。这是因为甘油具有较低的分子量和较高的可溶性,能够被微生物快速吸收和利用,从而促进有益菌如双歧杆菌、乳酸菌等的生长。这些研究结果为进一步探索乳中甘油的免疫调节机制以及其在维护肠道健康方面的潜在应用提供了重要的理论基础。
甘油在检测疑似梅尼埃氏病的患者中有着重要意义。甘油被证实可有效改善眩晕发作,减少耳鸣引起的不适感,提高对饮食限制无反应的单侧梅尼埃氏病患者的生活质量[33]。甘油可以通过促进肠道细胞生长和修复[34]来维护肠道屏障的完整性,还能通过抑制某些细菌的生长[21]来改善特应性病和以表皮屏障功能受损为特征的皮肤疾病[22],而血清总甘油和游离甘油的水平是脂质代谢和心血管疾病风险的重要指标[35]。需要注意的是,尽管乳中甘油具有多种医学作用,但目前仍需进行更多的研究以深入探明其作用机制和临床应用价值。

3 甘油骨架的检测方法

甘油骨架又称甘油,目前甘油的检测方法主要分为:滴定法、铜离子(Cu2+)比色法、高效液相色谱法、甘油激酶法和光谱法等。

3.1 滴定法

滴定法原理为甘油与高碘酸盐反应生成甲醛和甲酸,而过量的高碘酸盐则被过量的乙二醇还原为碘酸钠和乙二醛。根据这一性质,通过测量消耗的氢氧化钠溶液的体积,便可以计算出甘油的浓度,无需使用精密仪器。此方法操作简单,准确性较高,试剂价格相对较低,因此在甘油生产中广泛应用,且便于调控发酵过程中的甘油浓度。康辉等[36]建立了一种高碘酸钠滴定法,试验结果表明,棒酸发酵液中甘油浓度为0.25~4.00 g/L,滴定法对其的测定结果稳定可靠。此外,不同的样品处理方法对测定结果的影响不大。彭晋平等[37]对8个甘油样品进行了测试,结果表明该方法具有较小误差和较高精确度。

3.2 Cu2+比色法

Cu2+比色法的测定原理为甘油在碱性(pH=11~12)条件下,与Cu2+反应生成蓝色络合物(甘油铜),该络合物在630 nm波长处有最大吸收峰。该方法利用朗伯-比尔定律制备一系列不同甘油浓度的甘油铜溶液,测定它们在630 nm处的吸光度,并制作标准曲线得到回归方程。再将待测样品与Cu2+反应,测定其吸光度并代入回归方程,计算出甘油的浓度。该方法操作简单、结果准确、检测灵敏度高,且不受外界物质影响、试剂成本低,被广泛应用于甘油浓度的测定。李盛林等[38]利用此法测定生物柴油制备过程中产生的甘油,计算生物柴油的转化率,结果表明,当甘油浓度为3%~9%时,其与吸光度的线性关系良好[相关系数(r)=0.998 4],且与气质联谱法相比较,该方法转化率的测定值差值小于0.1%。阎杰等[39]对该方法进行了优化并建立了操作简单、快速可靠的测定方法,结果显示,所建立的测定方法具有简便、快速、准确等优点,相对误差在-1.33%~4.33%,变异系数为0.546%。李玲艳等[40]在原有方法上进行了优化,并成功地将其应用于碱催化酯交换法制备生物柴油过程中,结果发现,改进后的方法具有快速、准确、便捷等优点,可以避免样品的预处理对结果的干扰,相对误差为-0.490%。

3.3 高效液相色谱法

高效液相色谱法利用流动相在固定相上的分配作用,将混合物中的组分分离并检测。检测甘油时,将样品通过化学反应转化为可以检测的流动相,采用高压输液系统将单一溶剂或混合溶剂、缓冲液等具有不同极性的流动相泵入装有固定相的色谱柱,在固定相和流动相的相互作用下,使甘油逐一分离出来,并通过检测器实现对甘油的检测。该方法具有灵敏度高、破坏性小、分离效率高、选择性好及适用范围广等优点,已成为分离小样品或分析复杂混合物的理想选择。该方法的缺点是费用高、装置复杂,对分析人员技术要求高,所需标准品量大,受外界条件影响较大。现如今,高效液相色谱法已应用于甘油三酯分离和生物样品中甘油浓度的检测[41]。李蓉等[42]采用高效液相色谱-蒸发光散射检测法来测定生物柴油中的游离甘油浓度,并研究了该方法的适用性、准确性和可靠性;研究结果表明,该方法能够在7.12~307.31 mg/kg的范围内测定生物柴油中的游离甘油浓度,回收率在96.3%~105.6%,且该方法具有较高的准确性和可重复性,为生物柴油的质量监测提供了一种有效的手段。Frieler等[43]采用高效相液色谱法准确测定了血浆和组织中的甘油和肌醇浓度,其线性范围分别为2.7~174 nmol和1.4~89 nmol,使用该方法与其他技术方法测得的结果具有良好的一致性。张倩茹等[44]使用离子色谱法对枣酒中的甘油浓度进行了测定,并考察了样品前处理和仪器分析参数等因素对测定结果的影响,结果显示加标回收率为99.25%~101.22%,同时通过分析市售的20种枣酒样品,发现其中有3种酒的甘油浓度超标,这说明该方法可以有效地用于枣酒质量的监测和控制。杨娟[45]建立了混合溶剂法直接测定蜂蜜中甘油浓度的测定方法,通过线性范围、加标回收率、精密度及与其他方法对比等项目的验证,结果表明该方法测定甘油浓度的结果准确可靠。

3.4 甘油激酶法

甘油激酶法又称为磷酸甘油氧化酶-过氧物酶法,是一种利用酶的特异性催化反应来测定甘油浓度的生化分析方法。其基本原理是利用甘油激酶催化反应将甘油和ATP催化成G3P,G3P在磷酸甘油氧化酶催化下生成DHAP和过氧化氢;过氧化物酶催化过氧化氢与4-氨基安普比林或4-氯酚反应生成紫兰色醌亚胺,在500 nm波长处有最大吸收峰,根据吸光度的变化来确定所生成的过氧化氢浓度,根据甘油的浓度与生成的过氧化氢浓度成正比,从而可以用比色法来测定甘油的浓度。甘油激酶法具有专一性强、灵敏度高、精密度好、操作便捷及检测速度快等优点,适用于测定样品组成成分比较复杂的甘油。但该方法的试剂较为昂贵,还需要配备特殊的仪器设备,比如甘油激酶反应器、显色计等,这也会增加试验成本。因此,在实际应用中需要综合考虑成本和检测需求,选择最合适的检测方法。周泽林等[46]建立了测定发酵液中甘油浓度的酶法分析方法,发现其显色线性范围为0.1~0.9 g/L,该方法对甘油具有良好的灵敏度和专一性,且准确可靠,是测定甘油浓度的理想方法。刘青等[47]使用甘油激酶试剂盒对进口和国产的葡萄酒中甘油的浓度进行测定,通过全自动酶联免疫生化分析仪进行分析,并采用高效液相色谱法验证了准确度,发现在2.0~16.7 g/L甘油浓度范围内的线性关系较好(r=0.998 9),表明采用高效液相色谱法测定甘油浓度是一种准确、快速、灵敏的方法,该研究为葡萄酒行业的质量控制和品牌建设提供了一定的理论和实践指导。司洪宇等[48]通过酶电极表征特性优化固定化模式,制备出最优甘油酶电极,该电极具有较高的灵敏度和稳定性,结果表明其测量值与高效液相色谱法相比无显著差异。

3.5 光谱法

紫外分光光度计法和近红外光谱法是常见的光谱法。光谱法具有效率高、成本低、无破坏性且无污染等优点。然而,近红外光谱法仅适用测量液体表面,难以测量深处液体的内部,还需要精密的仪器设备和复杂的数据模拟处理。此外,它易受外界因素影响,测量精度不高,在选择时需对该方法进行考虑。杨梅桂等[49]采用乙酰丙酮与甘油在碱性条件下反应,生成黄色络合物,其最大吸收波长位于410 nm处,采用分光光度法对络合物的吸光度进行测定,可以得到水中微量甘油的浓度;该方法具有灵敏度高、选择性好、重现性好等优点,并且可以消除水样中颜色的干扰,适用于水中微量甘油的测定。李燕萍等[50]首先对样品进行了预处理,然后利用光谱仪获取了近红外光谱数据,并使用多元线性回归和偏最小二乘回归等方法建立了乙醇、甘油和葡萄糖的定标模型,并对数学模型进行了优化,将该方法与高效液相色谱法进行对比发现,其具有高准确性和较低误差,可以在线监测甘油变化。李治华[51]根据偏最小二乘法建立了一种快速检测高浓度精制甘油中甘油浓度的近红外光谱校正模型,以预测集对模型进行验证,结果表明r为0.991 7,预计标准差为0.023,表明模型建立良好且预测准确;该方法可以提供及时准确的分析数据,能够满足实际生产中对甘油浓度检测精度的要求,可以满足实际生产中高浓度精制甘油中甘油浓度的检测精度要求,提供及时准确的分析数据。表2汇总了甘油骨架的检测方法。
表2 甘油骨架的检测方法

Table 2 Detection methods of glycerol backbone

检测方法
Detection methods
样品
Samples
检测结果
Detection results
参考文献
References
滴定法
Titrimetric method
棒酸发酵液 98.5%的回收率,相对标准偏差为1.69% [36]
甘油样品 较小误差和较高精确度 [37]
Cu2+比色法
Cu2+ colorimetric
method
甘油 浓度为3%~9%时,线性关系良好(r=0.998 4) [38]
生物柴油制备过程中
产生的甘油
转化率的测定值差值小于0.1%,相对误差
在-1.33%~4.33%,变异系数为0.546%
[39]
碱催化酯交换法制备
生物柴油过程中的甘油
相对误差为-0.490%,快速、准确、便捷 [40]
高效液相色谱法
HPLC method
生物柴油 最低检测限为2.50 mg/kg,最低定量限为
7.12 mg/kg,回收率为96.3%~105.6%
[42]
血浆和组织 线性范围为2.7~174 nmol和1.4~89 nmol,
结果与其他方法一致性良好
[43]
枣酒 加标回收率为99.25%~101.22 %,
可用于监测和控制枣酒质量
[44]
蜂蜜 测定结果准确可靠,可用于测定蜂蜜中甘油浓度 [45]
甘油激酶法
Glycerol kinase
method
发酵液 线性范围在0.1~0.9 g/L,表明其精确度高 [46]
进口和国产葡萄酒 在鉴别葡萄酒质量方面表现出良好的效果 [47]
生物柴油 与高效液相色谱法相比对,无显著差异 [48]
分光光度法
Spectrophotometric
method
结果显示良好 [49]
发酵液 与高效液相色谱法相比,具有高准确性和较低误差 [50]
高浓度精制甘油 预计标准差为0.023,可以提供及时准确的分析数据 [51]

4 小结与展望

甘油广泛存在于细菌到哺乳动物的生物体中。乳中甘油的生物合成与人类健康密切相关,对油料作物和产油微生物的经济价值有着重要影响。由于体外细胞和动物模型容易获得,甘油作为甘油三酯合成的甘油骨架在哺乳动物中得到了广泛的研究,包括其激活为G3P的位点、细胞间运输以及相关酶或基因对脂质代谢的调节作用。相反,甘油在为甘油三酯合成提供前体中的重要性在含油植物和微生物的脂质代谢研究中尚未被完全认识。甘油被称为生物柴油生产的副产品,近几十年来,对甘油的研究主要集中在将其用作生产增值产品的廉价碳源[52]。本文综述了乳中甘油的合成和影响因素、作用及检测方法,说明了甘油代谢对乳脂合成的重要影响。然而,关于甘油和乳脂代谢之间复杂的相互作用的信息仍然很缺乏。现代遗传和基因工程的发展为鉴定参与甘油和乳脂代谢的关键调控因子提供了可能性,可以更好地了解甘油代谢在乳脂调节中的作用,对人类健康和能源领域都有重要意义。
[1]
DEMMELMAIR H, KOLETZKO B. Lipids in human milk[J]. Best Practice & Research. Clinical Endocrinology & Metabolism, 2018, 32(1):57-68.

[2]
赵璞. 母乳化脂肪结构模拟脂质制备及其评价方法研究[D]. 硕士学位论文. 北京: 中国农业科学院, 2018.

ZHAO P. Study on human milk fat substitude preparation and its evaluation method[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2018. (in Chinese)

[3]
AMORES G, VIRTO M. Total and free fatty acids analysis in milk and dairy fat[J]. Separations, 2019, 6(1):14.

DOI

[4]
MAPHOSA Y, JIDEANI V A. Factors affecting the stability of emulsions stabilised by biopolymers[M]//KARAKUŞ S.Science and Technology Behind Nanoemulsions. London: IntechOpen, 2018.

[5]
CHEN A A, ZHANG H Y, HEMAR Y, et al. Glycerol induced stability enhancement and conformational changes of β-lactoglobulin[J]. Food Chemistry, 2020, 308:125596.

DOI

[6]
JUKKOLA A, ROJAS O J. Milk fat globules and associated membranes:colloidal properties and processing effects[J]. Advances in Colloid and Interface Science, 2017, 245:92-101.

DOI

[7]
TURKISH A, STURLEY S L. Regulation of triglyceride metabolism.I.Eukaryotic neutral lipid synthesis:“many ways to skin ACAT or a DGAT”[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2007, 292(4):G953-G957.

DOI

[8]
XUE L L, CHEN H H, JIANG J G. Implications of glycerol metabolism for lipid production[J]. Progress in Lipid Research, 2017, 68:12-25.

DOI

[9]
GENA P, BUONO N D, D’ABBICCO M, et al. Dynamical modeling of liver aquaporin-9 expression and glycerol permeability in hepatic glucose metabolism[J]. European Journal of Cell Biology, 2017, 96(1):61-69.

DOI PMID

[10]
RUDOLPH M C, MCMANAMAN J L, PHANG T L, et al. Metabolic regulation in the lactating mammary gland:a lipid synthesizing machine[J]. Physiological Genomics, 2007, 28(3):323-336.

DOI

[11]
DELLOMONACO C, CLOMBURG J M, MILLER E N, et al. Engineered reversal of the β-oxidation cycle for the synthesis of fuels and chemicals[J]. Nature, 2011, 476(7360):355-359.

DOI

[12]
COLEMAN R A, LEE D P. Enzymes of triacylglycerol synthesis and their regulation[J]. Progress in Lipid Research, 2004, 43(2):134-176.

DOI PMID

[13]
LIN H, CASTRO N M, BENNETT G N, et al. Acetyl-CoA synthetase overexpression in Escherichia coli demonstrates more efficient acetate assimilation and lower acetate accumulation:a potential tool in metabolic engineering[J]. Applied Microbiology and Biotechnology, 2006, 71(6):870-874.

DOI

[14]
GOFF H D, GRIFFITHS M W. Major advances in fresh milk and milk products:fluid milk products and frozen desserts[J]. Journal of Dairy Science, 2006, 89(4):1163-1173.

DOI

[15]
BAUMAN D E, MATHER I H, WALL R J, et al. Major advances associated with the biosynthesis of milk[J]. Journal of Dairy Science, 2006, 89(4):1235-1243.

DOI PMID

[16]
YUASA H, HAMAMOTO K, DOGU S Y, et al. Saturable absorption of glycerol in the rat intestine[J]. Biological & Pharmaceutical Bulletin, 2003, 26(11):1633-1636.

[17]
DA SILVA G P, MACK M, CONTIERO J. Glycerol:a promising and abundant carbon source for industrial microbiology[J]. Biotechnology Advances, 2009, 27(1):30-39.

DOI

[18]
郭雪娜, 诸葛斌, 诸葛健. 甘油代谢中甘油激酶的研究进展[J]. 微生物学报, 2002, 42(4):510-513.

GUO X N, ZHUGE B, ZHUGE J. Research progress on the glycerol kinase[J]. Acta Microbiologica Sinica, 2002, 42(4):510-513. (in Chinese)

[19]
KHEMICI V, PRADOS J, PETRIGNANI B, et al. The DEAD-box RNA helicase CshA is required for fatty acid homeostasis in Staphylococcus aureus[J]. PLOS Genetics, 2020, 16(7):e1008779.

DOI

[20]
CHILLIARD Y, FERLAY A, ROUEL J, et al. A review of nutritional and physiological factors affecting goat milk lipid synthesis and lipolysis[J]. Journal of Dairy Science, 2003, 86(5):1751-1770.

PMID

[21]
VERDIER-SÉVRAIN S, BONTÉ F. Skin hydration:a review on its molecular mechanisms[J]. Journal of Cosmetic Dermatology, 2007, 6(2):75-82.

DOI

[22]
FLUHR J W, DARLENSKI R, SURBER C. Glycerol and the skin:holistic approach to its origin and functions[J]. British Journal of Dermatology, 2008, 159(1):23-34.

DOI

[23]
VAN ROSENDAL S P, OSBORNE M A, FASSETT R G, et al. Physiological and performance effects of glycerol hyperhydration and rehydration[J]. Nutrition Reviews, 2009, 67(12):690-705.

DOI PMID

[24]
KHARRAT N, AISSA I, DGACHI Y, et al. Enzymatic synthesis of 1,3-dihydroxyphenylacetoyl-sn-glycerol:optimization by response surface methodology and evaluation of its antioxidant and antibacterial activities[J]. Bioorganic Chemistry, 2017, 75:347-356.

DOI

[25]
HAGENFELDT L, WAHREN J. Human forearm muscle metabolism during exercise.Ⅱ.Uptake,release and oxidation of individual FFA and glycerol[J]. Scandinavian Journal of Clinical and Laboratory Investigation, 1968, 21(3):263-276.

DOI

[26]
SCHRADER A M, CHENG C Y, ISRAELACHVILI J N, et al. Communication:contrasting effects of glycerol and DMSO on lipid membrane surface hydration dynamics and forces[J]. Journal of Chemical Physics, 2016, 145(4):041101.

DOI

[27]
GOULET E D B. Review of the effects of glycerol-containing hyperhydration solutions on gastric emptying and intestinal absorption in humans and in rats[J]. International Journal of Sport Nutrition and Exercise Metabolism, 2009, 19(5):547-560.

PMID

[28]
HABIB A, MABROUK M M, FEKRY M, et al. Glycerol as a new mobile phase modifier for green liquid chromatographic determination of ascorbic acid and glutathione in pharmaceutical tablets[J]. Journal of Pharmaceutical and Biomedical Analysis, 2022, 219:114870.

DOI

[29]
JIN E S, SHERRY A D, MALLOY C R. Interaction between the pentose phosphate pathway and gluconeogenesis from glycerol in the liver[J]. Journal of Biological Chemistry, 2014, 289(47):32593-32603.

DOI PMID

[30]
SAMUEL V T, SHULMAN G I. Nonalcoholic fatty liver disease as a nexus of metabolic and hepatic diseases[J]. Cell Metabolism, 2018, 27(1):22-41.

DOI PMID

[31]
MANDAL M K, CHANDA B, XIA Y, et al. Glycerol-3-phosphate and systemic immunity[J]. Plant Signaling & Behavior, 2011, 6(11):1871-1874.

[32]
POSSIK E, AL-MASS A, PEYOT M L, et al. New mammalian glycerol-3-phosphate phosphatase:role in β-cell,liver and adipocyte metabolism[J]. Frontiers in Endocrinology, 2021, 12:706607.

DOI

[33]
SCARPA A, CASSANDRO C, DE LUCA P, et al. Therapeutic role of intravenous glycerol for Meniere's disease.Preliminary results[J]. American Journal of Otolaryngology, 2020, 41(4):102498.

DOI

[34]
RAMIREZ GARCIA A, HURLEY K, MARASTONI G, et al. Pathogenic and commensal gut bacteria harboring glycerol/diol dehydratase metabolize glycerol and produce DNA-reactive acrolein[J]. Chemical Research in Toxicology, 2022, 35(10):1840-1850.

DOI PMID

[35]
LI H X, DONG J, CHEN W X, et al. Measurement of serum total glycerides and free glycerol by high-performance liquid chromatography[J]. Journal of Lipid Research, 2006, 47(9):2089-2096.

DOI PMID

[36]
康辉, 刘桂军, 孙凤卿, 等. 滴定法测定棒酸发酵液中甘油含量[J]. 河北工业科技, 2010, 27(3):189-191.

KANG H, LIU G J, SUN F Q, et al. Determination of glycerol content in clavulanic acid fermentation broth by titration[J]. Hebei Journal of Industrial Science & Technology, 2010, 27(3):189-191. (in Chinese)

[37]
彭晋平, 杨继红, 彭新立, 等. 高碘酸氧化滴定碘法测定甘油含量的研究[J]. 精细石油化工, 2001(4):67-68.

PENG J P, YANG J H, PENG X L, et al. Determination of the purity of glycerol with per-iodic acid as oxidant by iodometery[J]. Speciality Petrochemicals, 2001(4):67-68. (in Chinese)

[38]
李盛林, 刘守庆, 李道忠, 等. 分光光度法测定生物柴油转化率[J]. 云南化工, 2009, 36(3):71-73,82.

LI S L, LIU S Q, LI D Z, et al. Determination of biodiesel conversion rate by spectrophotometry[J]. Yunnan Chemical Technology, 2009, 36(3):71-73,82. (in Chinese)

[39]
阎杰, 丘泰球. 甘油铜比色法测定甘油含量的研究[J]. 中国油脂, 2004, 29(1):40-43.

YAN J, QIU T Q. Determination of glycerol by cupric glycerinate colorimetry[J]. China Oils and Fats, 2004, 29(1):40-43. (in Chinese)

[40]
李玲艳, 张剑, 黄智勇. 甘油铜分光光度法测定生物柴油转化率的研究[J]. 应用化工, 2012, 41(12):2163-2165,2170.

LI L Y, ZHANG J, HUANG Z Y. Study on the determination of biodiesel conversion rate by cupric glycerinate spectrophotometry[J]. Applied Chemical Industry, 2012, 41(12):2163-2165,2170. (in Chinese)

[41]
BUCHGRABER M, ULBERTH F, EMONS H, et al. Triacylglycerol profiling by using chromatographic techniques[J]. European Journal of Lipid Science and Technology, 2004, 106(9):621-648.

DOI

[42]
李蓉, 梁楠, 李曙光, 等. HPLC-ELSD法测定生物柴油中游离甘油含量[J]. 分析试验室, 2012, 31(7):36-39.

LI R, LIANG N, LI S G, et al. Determination of free glycerol content in biodiesel by HPLC-ELSD[J]. Chinese Journal of Analysis Laboratory, 2012, 31(7):36-39. (in Chinese)

[43]
FRIELER R A, MITTENESS D J, GOLOVKO M Y, et al. Quantitative determination of free glycerol and myo-inositol from plasma and tissue by high-performance liquid chromatography[J]. Journal of Chromatography B, 2009, 877(29):3667-3672.

DOI PMID

[44]
张倩茹, 贾杰, 尹蓉, 等. 离子色谱法测定枣酒中甘油含量[J]. 安徽农业科学, 2019, 47(18):201-203.

ZHANG Q R, JIA J, YIN R, et al. Determination of glycerol in jujube wine by ion chromatography[J]. Journal of Anhui Agricultural Sciences, 2019, 47(18):201-203. (in Chinese)

[45]
杨娟. 高效液相法测定蜂蜜中甘油的含量[J]. 工业微生物, 2022, 52(1):20-23.

YANG J. Determination of glycerol in honey by high performance liquid chromatography[J]. Industrial Microbiology, 2022, 52(1):20-23. (in Chinese)

[46]
周泽林, 王柱, 王宪斌. 酶法测定发酵液中甘油含量方法的研究[J]. 食品与发酵科技, 2014, 50(4):71-73.

ZHOU Z L, WANG Z, WANG X B. Study on determination of glycerin content in the fermentation liquid enzyme method[J]. Food and Fermentation Science & Technology, 2014, 50(4):71-73. (in Chinese)

[47]
刘青, 刘朝霞, 李志勇, 等. 葡萄酒中甘油含量的测定及其在品质鉴别中的应用[J]. 酿酒科技, 2015(1):77-81.

LIU Q, LIU C X, LI Z Y, et al. Determination of glycerol content in grape wine and its application in grape wine quality identification[J]. Liquor-Making Science & Technology, 2015(1):77-81. (in Chinese)

[48]
司洪宇, 王丙莲, 梁晓辉, 等. 酶电极法快速测定甘油含量的研究[J]. 中国生物工程杂志, 2016, 36(12):79-85.

SI H Y, WANG B L, LIANG X H, et al. Study of rapid determination for glycerol content by enzyme electrode[J]. China Biotechnology, 2016, 36(12):79-85. (in Chinese)

[49]
杨梅桂, 陈云锋, 周秀娟. 乙酰丙酮分光光度法测定水中微量甘油[J]. 中国卫生检验杂志, 2013, 23(6):1408-1409.

YANG M G, CHEN Y F, ZHOU X J. Determination of trace glycerol in water by acetylacetone spectrophotometric method[J]. Chinese Journal of Health Laboratory Technology, 2013, 23(6):1408-1409. (in Chinese)

[50]
李燕萍, 钱莹, 段钢. 采用近红外光谱测定木薯乙醇发酵液中乙醇、甘油和葡萄糖含量[J]. 食品与发酵工业, 2009, 35(8):117-121.

LI Y P, QIAN Y, DUAN G. Determination of alcohol,glycerol and glucose in cassava fermentation broth with NIRS[J]. Food and Fermentation Industries, 2009, 35(8):117-121. (in Chinese)

[51]
李治华. 近红外光谱法快速测定高含量精制甘油中的甘油含量[J]. 广州化工, 2012, 40(21):115-116,124.

LI Z H. Rapid determination of glycerin content in high concentration refined glycerin by NIR spectroscopy[J]. Guangzhou Chemical Industry, 2012, 40(21):115-116,124. (in Chinese)

[52]
YANG F X, HANNA M A, SUN R C. Value-added uses for crude glycerol-a byproduct of biodiesel production[J]. Biotechnology for Biofuels, 2012, 5:13.

DOI

Outlines

/