REVIEW

Research Progress on Effects of Hypoxic Stress on Fish and Nutrient Regulation Strategies

  • ZHANG Leimin , 1 ,
  • LIANG Hualiang 1, 2 ,
  • MI Haifeng 3 ,
  • REN Mingchun , 1, 2, *
Expand
  • 1 Wuxi Fisheries College, Nanjing Agricultural University, Wuxi 214081, China
  • 2 Key Laboratory of Freshwater Fisheries and Germplasm Resources Utilization, Ministry of Agriculture and Rural Affairs, Freshwater Fisheries Research Center, Chinese Academy of Fishery Sciences, Wuxi 214081, China
  • 3 Tongwei Agricultural Development Co., Ltd., Chengdu 610041, China
*professor, E-mail:

Received date: 2023-04-06

  Online published: 2023-10-12

Abstract

Oxygen is essential for the life and production of oxygen-demanding organisms, and dissolved oxygen (DO) in water is the main source of oxygen for fish and an important prerequisite for survival. Hypoxia is a phenomenon in which the DO content in the water environment is below 2 mg/L. In aquaculture, hypoxia can adversely affect the growth, metabolism and behavioral activities of fish, which in turn affects the culture effect. Fish can adapt to a certain range of hypoxia, but prolonged and deeper hypoxia can seriously damage fish or even lead to death, so some external measures are also needed to reduce or eliminate the harm of hypoxia. This paper provides an overview of the research progress on the effects of hypoxic stress on fish growth, behavior and biochemical indicators, and related gene expression processes, respectively, and summarizes some existing solutions to cope with hypoxia in aquaculture, and focuses on the application of nutrient regulation strategies, with a view to providing references for fish adversity-related research and healthy aquaculture.

Cite this article

ZHANG Leimin , LIANG Hualiang , MI Haifeng , REN Mingchun . Research Progress on Effects of Hypoxic Stress on Fish and Nutrient Regulation Strategies[J]. Chinese Journal of Animal Nutrition, 2023 , 35(10) : 6207 -6219 . DOI: 10.12418/CJAN2023.570

鱼类的各项生命活动会受到众多环境因子的影响,水体含氧量就是其中重要因子之一。溶解氧(dissolved oxygen,DO)是鱼类在水中得以生存和生长的重要条件。一般来说,低氧(hypoxia)是指由于外部环境的改变引起水体状况的变化,导致水中DO含量低于2 mg/L的现象,又称缺氧,此时的水体被称为低氧水体[1]。不同鱼类的低氧耐受能力不同,常用来评价鱼类低氧耐受能力的有效指标有临界氧分压(critical oxygen tension,Pcrit)和失去平衡点(loss of equilibrium,LOE)2种[2],且Pcrit值和LOE值的大小与鱼类的耐低氧能力呈负相关关系。例如,黄条 (Seriola aureovittata)的Pcrit值为(2.92±1.48) mg/L,当水中DO含量达到该值时,黄条 会出现应激反应[3]。Jia等[4]研究发现,当DO含量下降至5 mg/L时,大菱鲆(Scophthalmus maximus)游动出现异常,继续下降至3.34和1.30 mg/L时,达到其Pcrit值和LOE值。另外,不同规格的同种鱼类的耐低氧能力也会有差异。崔宽宽等[5]研究发现,规格不同的花鲈(Lateolabrax maculatus)具有不同的LOE值,在21~30 ℃的温度内,平均体质量为1.6~2.3 g的花鲈的LOE值为0.33~0.58 mg/L,10.1~13.3 g的花鲈的LOE值为0.30~0.38 mg/L,45.10~59.30 g的花鲈LOE值为0.16~0.23 mg/L,表明花鲈的LOE值与其体质量呈负相关关系,而与温度呈正相关关系。相似的结论在高云涛等[6]的研究结果中也有发现,50和200 g 2种规格的斑石鲷(Oplegnathus punctatus)的Pcrit值分别为(3.15±0.12) mg/L和(4.05±0.09) mg/L,LOE值分别为(0.93±0.11) mg/L和(1.16±0.08) mg/L,表明斑石鲷的低氧耐受能力与体质量密切相关,较小规格的斑石鲷具有更强的低氧耐受能力。低氧会使鱼体的生理代谢系统紊乱,影响到鱼类的各种生理生化指标水平,导致鱼体产生应激反应,从而对鱼类的生长发育以及行为活动造成不利影响[1]。大多数鱼类能够适应一定范围内DO含量的变化,但长期生活在低氧水体中则会受到损害,甚至死亡。因此,采取一定的外部调控措施,例如营养调控等,来降低低氧对水产养殖业的影响是必要的。本文就低氧对鱼类生长、行为和生理生化的影响、低氧作用的分子机理以及以营养调控措施为主的外部调控策略进行综述,以期为鱼类低氧相关研究以及水产健康养殖提供参考。

1 低氧对鱼类的影响

1.1 低氧对鱼类生长发育的影响

作为鱼类生活环境中的重要理化因子之一,水体DO对鱼类的正常生长具有重要影响。水体低氧往往会导致鱼类的肠道消化能力、食物吸收转化能力以及代谢强度的下降,使鱼类摄食减少,生长速度减慢,最终生长不良甚至死亡。例如,当水体DO含量下降时,大口黑鲈(Micropterus salmoides)的体重增长率(weight growth rate,WGR)、特定生长率(specific growth rate,SGR)和摄食量(feed intake,FI)都呈下降趋势,且重度低氧组的终末长度和饲料效率(feed efficiency,FE)显著降低[7]。对吉富罗非鱼(Oreochromis niloticus)进行研究发现,DO含量的升高使得试验鱼的成活率、WGR、SGR、肝体比、脏体比等显著提高,而鱼体血液中白细胞(white blood cell,WBC)数量、血红蛋白(hemoglobin,Hb)含量等先下降后上升,表明低氧胁迫通过影响该鱼的肝脏脂肪酸的组成等,导致其生长缓慢[8]。设置常氧(7.9 mg/L)和低氧(4.5 mg/L)2个DO含量对虹鳟鱼(Oncorhynchus mykiss)进行试验,发现低氧处理会影响虹鳟鱼的生长状况,主要表现为试验鱼的FI、SGR、耗氧量以及能量和脂肪含量的降低[9]。当DO含量为3.5 mg/L时,草鱼(Ctenopharyngodon idella)对蛋白质、能量和干物质的表观消化率显著降低,摄食也会受到影响,与之相比,在6.0 mg/L DO含量下的草鱼在WGR、蛋白质存留率(protein retention rate,PRE)、蛋白质效率(protein efficiency ratio,PER)以及FE等方面均有显著提高[10]。与对照组相比,低氧处理的尼罗罗非鱼(Nile tilapia)在FI、FE和生长性能等方面显著降低[11]。温度和盐度水平固定不变时,生活在饱和DO环境下的大西洋鲟鱼(Acipenser oxyrinchus)的死亡率接近于0,而当DO含量降为饱和DO的30%时,其估计死亡率是40%饱和DO的2倍和70%饱和DO的4倍[12]。综上所述,不同生长阶段的不同鱼类,均会受到低氧胁迫不同程度的影响,从而在生长方面表现异常。

1.2 低氧对鱼类行为活动的影响

低氧环境会引起鱼类应激并影响其生长。因此,当水中的DO含量降至鱼类生理需氧量的临界值附近时,鱼类会通过调整一系列个体行为来适应或逃离不良环境,从而减少或避免低氧的危害。常见的行为反应包括游离低氧区、跃出水面呼吸以及减少活动以降低代谢速率等。例如,常氧状态下,尼罗罗非鱼在水中的平均深度为(54.6±2.9) cm,当氧分压(partial pressure of oxygen,PO2)下降至2.1和1.3 kPa时,鱼在水中的平均深度分别上升至(42.6±1.6) cm和(23.1±9.9) cm,且后者有50%的鱼会到水体表面进行呼吸[11]。鱼类的临界游泳速度(critical swimming speed,Ucrit)是衡量鱼类有氧游泳能力的重要指标,通常会随DO含量波动而变化。在不同DO含量环境中,不同鱼类的游泳能力受到的影响各异。研究结果显示,当DO含量下降到常氧的12.5%时,鳊鱼(Parabramis pekinensis)和中华倒刺鲃(Spinibarbus sinensis)的Ucrit值下降幅度分别为53%和50%[13]。对红鳍东方鲀(Takifugu rubripes)幼鱼进行研究,发现生活在DO含量分别为2.14、4.10和5.81 mg/L的鱼,其Ucrit值显著低于对照组(7.36 mg/L)[14]。当PO2值从19.9 kPa迅速降到13.2 kPa,然后逐渐稳定在8.4 kPa的过程中,作为一种初始的回避反应,大西洋鳕鱼(Atlantic cod,Gadus morhua)的游动速度先提高了18%,然后下降了21%,并随着PO2值的下降而持续下降[15]。水中的DO含量由较高水平降为较低水平时,南方鲇鱼(Southern catfish)幼鱼的FI和活动量都会随之减少[16]。令斑马鱼(Brachy danio rerio var)在0.5 mg/L的低氧环境中生活2 h,其游动姿态逐渐失去平衡,最终停止运动保持静止[17]。综上所述,低氧胁迫会通过促使鱼类改变行为活动而对其生活和生存状态产生影响。

1.3 低氧对鱼类生理生化的影响

生活在低氧水体中的鱼类,除了行为活动会为了适应环境而改变,其机体内环境也会进行调整,在生理生化层面对低氧胁迫产生响应,诱使鱼类发生应激反应。目前的研究结果表明,低氧环境中的鱼类在生理生化方面的变化主要表现在呼吸代谢、细胞增殖与凋亡、抗氧化能力以及免疫反应等方面。对斑石鲷的研究发现,处在低氧环境中时,其呼吸频率会增加,从而提高血液WBC、红细胞(red blood cell,RBC)数量以及皮质醇(cortisol,COR)、葡萄糖(glucose,GLU)和Hb浓度,并在临界PO2值处达到最大值[6]。在对鲻鱼(Mugil cephalus)幼鱼进行的试验发现,鱼体肝脏和鳃中的丙二醛(malondialdehyde,MDA)含量与DO含量呈明显的负相关关系,且在复氧30 d后仍高于对照组,表明低氧会加剧鲻鱼肝脏和鳃组织脂质过氧化反应[18]。对黄颡鱼(Pelteobagrus fulvidraco)进行急性低氧试验后,黄颡鱼肝脏和鳃中的5-羟基色氨酸(5-hydroxytryptophan,5-HTP)、COR和MDA的含量显著升高,在抗氧化方面,总超氧化物歧化酶(total superoxide dismutase,T-SOD)和过氧化氢酶(catalase,CAT)的活性显著升高[19]。对鲫鱼(Carassius auratus)[20]和翘嘴鲌(Culter alburnus)[21]的研究表明,低氧胁迫可诱导其发生氧化应激反应,导致部分生化指标如Hb含量和乳酸脱氢酶(lactate dehydrogenase,LDH)活性等发生显著变化,从而对鱼体代谢功能产生影响。在对鲟鱼进行的试验中,低氧组鲟鱼的视网膜、视顶盖(optic tectum,OT)、垂体等的凋亡细胞水平显著高于常氧组,表明低氧对鱼类细胞有损伤影响并且可持续[22]。免疫反应方面,对东北鲟鱼(Acipenser sinensis)进行低氧应激后发现,该鱼类的血液COR、GLU含量和其他血液参数在应激后显著升高,而脾指数(splenic index,SI)在低氧应激后有所下降[23]。综上所述,鱼类可以通过调整自身生理代谢水平来应对低氧胁迫,同时这也可能是抑制其生长的一种原因。

2 低氧作用的分子机理

当水体DO含量下降至威胁鱼类正常生活和生存的水平时,鱼类体内会有一套由众多蛋白分子参与的调控机制对低氧胁迫产生响应,即低氧信号传导途径[24]。在整个低氧应答体系中,低氧诱导因子(hypoxia-inducible factor,HIF)是低氧信号传导途径中的最关键因子,由低氧诱导因子-1α(hypoxia-inducible factor-1alpha,HIF-1α)亚基或低氧诱导因子-2α(hypoxia-inducible factor-2alpha,HIF-2α)亚基与低氧诱导因子-1β(hypoxia-inducible factor-1beta,HIF-1β)亚基2个亚单位所组成,在维持动态氧的平衡和低氧条件下的氧浓度变化等方面发挥着重要作用,在目前已知的后生动物中都有表达[25]。在DO含量正常时,脯氨酸羟化酶(prolyl hydroxylase,PHD)会以氧分子作为底物对HIF-α的特异脯氨酸位点进行羟基化[26],羟基化后的HIF-α被希佩尔林道肿瘤抑制蛋白(von-Hippel-Lindau tumor suppressor protein,pVHL)识别并结合,最终通过蛋白酶体降解[27]。在低氧条件下,氧分子的缺乏导致PHD的活性受到抑制,HIF-α不能被降解,进而转运至细胞核中与HIF-β结合形成异源二聚体,该二聚体会与靶标基因上的低氧反应元件(hypoxia response element,HRE)结合,连同一些转录激活因子(如CBP/p300)共同作用,激活下游基因的表达(图1)。这些下游基因涉及到细胞的分化与凋亡、糖代谢和血管再生等方面,从而引起鱼类的一系列生理生化和机体反应[25]。例如,对大口黑鲈进行的低氧试验发现,低氧使得其体内的HIF-1α水平升高并稳定表达,同时,鱼体会通过促进肝脏血管生成来应对低氧环境带来的不适[28]。由此可见,HIF-α的水平与环境DO含量密切相关,并在调控鱼类适应低氧的过程中发挥重要作用。
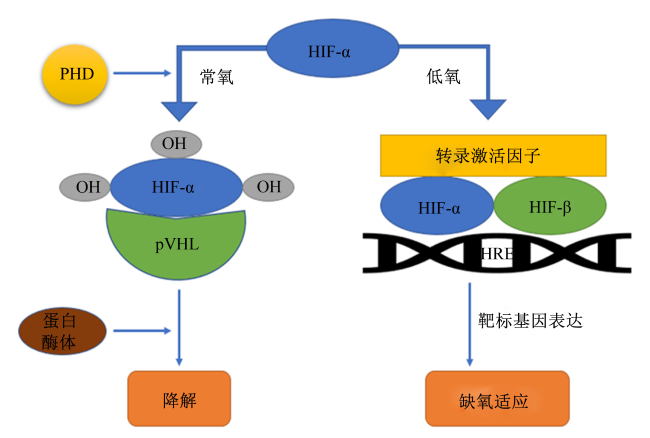
图1 低氧信号传导途径

PHD: 脯氨酸羟化酶 prolyl hydroxylase; HIF:低氧诱导因子 hypoxia-inducible factor;pVHL:希佩尔林道肿瘤抑制蛋白 von-Hippel-Lindau tumor suppressor protein; HRE:低氧反应元件 hypoxia response element。

Fig.1 Hypoxic signaling pathway

3 鱼类自身的适应机制

鱼类对低氧胁迫具有一定的适应能力。根据低氧的发生条件和鱼类对低氧进行反应的时间及结果,可以将适应机制分为急性应激反应和长期适应。

3.1 急性应激反应

急性低氧通常出现在较高养殖密度的水体中,当水温在短时间内发生变化或者水体成分发生改变时,DO含量会在短期内急剧下降,从而引起鱼类的急性应激。
首先是行为活动方面,鱼类在面对急性低氧应激时常出现的行为反应包括到水面直接呼吸、调整游动速率和改变呼吸方式等。例如,Kramer等[29]的研究表明,进行水生表面呼吸(aquatic surface respiration,ASR)是为数不多的能使鱼类在低氧条件下生存的呼吸替代方案之一,该行为极大地提高了鱼类在低氧水体中的存活率。对罗非鱼(Tilapia)的研究发现,低氧胁迫下,其游动速度会降低以作为减少能量和氧气消耗的一种适应行为[30]。多数鱼类面对低氧会增加无氧代谢,以补偿能量的减少。Virani等[31]以耗氧率(oxygen consumption rate,OCR)和血液乳酸含量为指标对大底鳉(Fundulus grandis)进行研究,发现低氧胁迫使其OCR出现下降而血液乳酸含量有所增加,说明大底鳉在低氧状态下主要进行无氧代谢以应对DO的不足。此外,鲫鱼的视网膜光诱发反应和OT的相应诱发电位在低氧环境中下降,且在复氧后恢复正常,说明低氧会抑制其体内中枢神经系统(central nervous system,CNS)的活动,同时表明鲫鱼在低氧条件下可以通过暂时关闭视觉功能以减少能量的消耗[32]
其次是形态方面,作为鱼类重要的呼吸器官,鱼鳃在鱼类应对低氧环境的过程中具有重要作用。当鲫鱼和金鱼(Carassius auratus)处于低温常氧环境时,其鱼鳃的片层主要嵌入在片层间细胞团(interlamellar cell mass,ILCM)中,而当环境中的DO含量下降至Pcrit值附近时,ILCM退化,使得鱼鳃的呼吸表面积增大,从而提高了鱼类的摄氧能力[33-34],增强其对低氧胁迫的耐受性。

3.2 长期适应策略

面对急性低氧时,鱼类能够快速地作出反应来降低低氧的影响,并随着DO含量的升高而恢复正常状态。而当长期低氧时,为了适应低氧环境,鱼类往往会通过基因突变来使自身的组织器官以及生理生化水平等发生永久性的改变[25]。通过进化来改变或者发展其他器官以增强呼吸能力是一些鱼类应对长期低氧的自然选择结果。例如,泥鳅(Misgurnus anguillicaudatus)不仅用鳃呼吸,还进化出了肠气呼吸(gastrointestinal air breathing,GAB)和皮肤等器官进行辅助呼吸[35],该机制极大地提高了泥鳅的摄氧能力。类似的还有黄鳝(Monopterus albus),其口腔、喉腔和肠道内壁表皮黏膜充满了毛细血管,吻端伸出水面就可以直接吸取空气中的氧气,把空气贮存在口腔,使口中的氧气逐渐与口腔内壁进行气体交换,因此黄鳝在DO含量很低的水中也能正常生活[36]
在生理生化方面,鱼类会通过漫长的进化来改变代谢方案以加强适应低氧的能力。例如,鲫鱼具有极强的耐低氧能力,在北欧冬季的低温低氧水体中也能够存活数月并保持活跃[37]。低氧暴露48 h后发现,鲫鱼肌肉和肝脏的蛋白质合成速率急剧下降52%~95%,这一过程可以减少能量的消耗,提高其生存能力,恢复常氧后,蛋白质合成速率也逐渐恢复[38]。另外,当鲫鱼的大脑因低氧而缺乏能量时,会启动一种机制来释放γ-氨基丁酸(γ-aminobutyric acid,GABA),这可能会抑制足够量的神经元来恢复腺嘌呤核苷三磷酸(adenosine triphosphate,ATP)水平[37]。此外,鲫鱼同样可以通过鳃的形态改变和无氧呼吸来提高耐低氧能力[39-40]。金鱼具有较强的低氧耐受性,其Hb对氧气具有极大的亲和力,在PO2值为0.35 kPa时,其Hb含量已经达到氧饱和度的50%,在中度低氧时,其动脉和静脉PO2值可分别低至0.24和0.03 kPa,且会随DO含量的恢复而恢复[41]

4 营养调控研究

在应对水体养殖过程中出现的低氧胁迫时,除了鱼类通过自身反应进行适应外,还应当通过人工手段来加强鱼类对低氧环境的承受能力,缓解或消除低氧对养殖效果的影响,从而保证养殖效益。近些年来,随着研究水平不断向微观层面深入,越来越多的营养添加剂被发现且应用至水产行业,并取得了优良效果(表1)。
表1 各种营养物质对缓解鱼类低氧应激的作用

Table 1 Effects of each nutrient on mitigation of hypoxic stress in fish

营养物质
Nutrients
研究鱼类
Studying fish
使用规格
Use specifications
功效
Efficacy
参考文献
References
蛋白质
Protein
斑马鱼
Brachy danio rerio var
46.28% 供应能量,缓解慢性低氧导致的
体重和饲料效率降低
Ma等[42]
三倍体虹鳟
Oncorhynchus mykiss
43.30% 改善低氧应急损伤,
提高抗应激能力
韩步鹰[43]
甘氨酸
Gly
圆尾斗鱼
Macropodus ocellatus
中华鳑鲏
Rhodeus sinensis
5.33~7.96 μg/mL、
0.540~0.986 μg/mL
提高存活时间,
增强抗低氧能力
李倩[45]
精氨酸
Arg
草金鱼
Carassius aurutus
中华鳑鲏
Rhodeus sinensis
14.13~14.89 μg/mL、
8.93~10.65 μg/mL
存活时间分别提升5.35%~
30.03%和4.06%~34.83%
李倩[45]
鲤鱼
Cyprinus carpio
0.70% 降低细菌性疾病的
感染率和死亡率
Varghese等[46]
牛磺酸
Tau
草鱼
Ctenopharyngodon idella
2.50 g/kg 增强急性低氧耐受性;
影响脂质代谢
Yang等[47]
草金鱼
Carassius aurutus
0.50%、1.00% 提高抗低氧存活时间,
改善抗低氧能力
魏华等[48]
γ-氨基丁
GABA
草金鱼
Carassius aurutus
0.30%、0.50% 提高抗低氧存活时间,
改善抗低氧能力
魏华等[48]
印度鲮
Cirrhinus mrigala
0.50%~1.00% 促进有氧代谢,抑制无氧
代谢,延长低氧存活时间
Varghese等[49]
脂肪
Lipid
草鱼
Ctenopharyngodon idella
3.59%、3.05% 减轻低氧环境下的肝脏
损伤和细胞凋亡等损伤
An等[50]
三倍体虹鳟
Oncorhynchus mykiss
22.80% 有助于应对低氧
损伤,增强免疫力
韩步鹰[43]
维生素C
VC
条石鲷
Oplegnathus fasciatus
斑石鲷
Oplegnathus punctatus
0~300 mg/100 g 鱼类的应激耐性与饲料中的
维生素C添加量呈正相关
石桥泰典等[51]
异育银鲫
Gibel carp
1 200 mg/kg 抑制氧化和炎症反应和
细胞凋亡,降低低氧损伤
Wu等[52]
β-葡聚糖
β-glucan
大黄鱼
Larimichthys crocea
5 mg/kg 缓解低氧胁迫诱导的氧化损伤 王永红等[55]
罗非鱼
Tilapia
0.10、
0.30 mg/L
提高存活率和调节葡萄糖
含量;调节血液学反应
De Souza等[56]
啤酒酵母提取物
YE
花鲈
Lateolabrax maculatus
0.10%~0.30% 提高生长性能,改善抗氧化
状态,提高抗低氧能力
彭凯等[57]
三萜类苷元
Triterpene
斑马鱼
Brachy danio rerio var
2.5 μg/mL 延长半数死亡所需时间,
增强抗低氧能力
夏彬彬等[58]
米曲霉益生菌
ASP
罗非鱼
Tilapia
1×10⁶
1×10⁸ CFU/g
对鱼类具有免疫调节作用,
提高其对低氧的防御能力
Dawood等[59]
咖啡因
Caffeine
罗非鱼
Tilapia
8.00% 防止无氧代谢发生,维持低氧
环境的鱼类的能量平衡
Baldissera
[60]
桑叶提取物
EML
鲫鱼
Carassius auratus
57.21 g/kg 提高鱼体抗氧化剂的活性和
水平,减轻低氧损伤
Li等[61]
替普瑞酮
Teprenone
斜带石斑鱼
Epinephelus coioides
100、
200 mg/kg
一种抗氧化状态诱导剂,诱导
鱼类对低氧产生抗性
Dong等[62]
红景天
Rhodiola rosea L.
斑马鱼
Brachy danio rerio var
0.02、
0.04 mg/L
降低鱼体内血糖乳酸含量,
具有抗低氧和抗疲劳效果
范能全等[63]

4.1 蛋白质和氨基酸

蛋白质是生命活动的物质基础,也是构成细胞的基本有机物,饲料蛋白质对鱼类的生长具有重要作用。慢性低氧会使蛋白质的分解代谢增加。因此,提高蛋白质的摄入量有利于维持鱼类在低氧环境中的正常生长。对斑马鱼进行的研究显示,在低氧条件下,高蛋白质摄入量能够促进斑马鱼对慢性低氧的适应,减轻由慢性低氧引起的体重和FE的降低,提高糖原和蛋白质的利用率,且能够通过激活HIF-1α及其下游糖酵解基因的转录来供应能量,除此之外还能缓解慢性低氧引起的肠道消化酶活性降低和微生物群失调[42]。另有研究表明,适宜饲料蛋白质水平(43.30%)有助于改善低氧对三倍体虹鳟造成的应激损伤,提高其抗应激能力并改善肌肉品质[43]
氨基酸是一种含有氨基的有机酸,同时也是构成蛋白质的基本单位,能够有效增强各种水产生物的抗应激能力,从而降低水产养殖的风险与损失。在增强鱼类耐低氧能力方面,关于甘氨酸(glycine,Gly)、精氨酸(arginine,Arg)和牛磺酸(taurine,Tau)以及GABA的研究较为成熟。Gly是鱼类的一种非必需氨基酸,属于中枢神经系统中的抑制性神经递质,游离状态的Gly能够有效保护生物体细胞。Arg作为鱼类的一种必需氨基酸,是鱼类生理和病理方面的重要内源性信息高活性分子一氧化氮(nitric oxide,NO)唯一的供氮前体,对机体心血管系统、神经系统和免疫系统有着广泛影响[44]。Tau是一种含硫氨基酸,是动物机体的内源性物质,具有抗氧化和保护生物膜等作用。GABA是一种非蛋白质氨基酸,具有镇定作用,是一种重要的抑制性保护物质。以草金鱼(Carassius aurutus)、圆尾斗鱼(Macropodus ocellatus)和中华鳑鲏(Rhodeus sinensis)为试验对象进行研究,发现当Gly含量为5.33~7.69 μg/mL和0.54~0.986 μg/mL时,分别可以显著提高圆尾斗鱼和中华鳑鲏的耐低氧能力;当Arg含量为14.13~14.89 μg/mL和8.93~10.65 μg/mL时,可以显著增强草金鱼和中华鳑鲏的耐低氧能力[45]。此外,急性低氧会使鲤鱼(Cyprinus carpio)的免疫反应被抑制,从而易发生细菌性疾病,但是向饲料中补充适宜水平的Arg后,在不同的DO含量下,都可以提高鲤鱼的存活率[46]。红细胞渗透脆性试验的溶血率与急性低氧存活时间显著相关,研究发现,适宜水平的Tau能够显著改善草鱼的红细胞渗透脆性,且随着饲料中Tau添加水平的增加,草鱼的耐急性低氧能力改善更加明显[47]。另有研究结果表明,不同含量的Tau能不同程度地提高草金鱼的耐低氧能力,其中含量为0.5%和1.0%时效果最佳。究其原因为,Tau一方面可通过增加Hb含量来提高对氧分子的运输能力,另一方面还可以在PO2值下降时提高Hb与氧的亲和能力。除了Tau,该研究同时着眼于GABA对草金鱼耐低氧能力的研究,且得到了低含量(0.1%、0.3%和0.5%)的GABA能够提高草金鱼在低氧条件下的存活时间这一结论,说明GABA对受低氧胁迫的鱼具有保护作用[48]。相似的结果在对印度鲮(Cirrhinus mrigala)的研究中也有发现,向暴露于低氧环境中的印度鲮补充GABA,可以恢复急性低氧诱导的HIF-1α的表达水平、甲状腺激素(thyroxine,T4)水平和LDH活性。低氧会引起血清代谢物如GLU和乳酸含量等的增加,而补充GABA可以有效降低它们的水平。因此,GABA可以提高鱼类在低氧条件下的存活时间[49]

4.2 脂肪

脂肪是组成生物体的重要成分,能够为生物体提供能量,具有重要的生物功能。对草鱼的研究结果显示,具有适当脂质水平的饲料可以缓解由低氧引起的不良后果,包括减轻低氧对草鱼造成的肝脏损伤并抑制肝脏细胞凋亡、减轻肝脏内质网应激并抑制肝细胞自噬,同时确定了耐低氧诱导肝脏损伤的最佳脂质水平分别为3.59%和3.05%[50]。在其他鱼类的研究中发现,适宜的饲料脂肪水平(22.80%)有助于提高三倍体虹鳟应对低氧应激损伤的能力,增强其免疫力[43]。在面对环境压力时,鱼类首先利用碳水化合物和脂类等储备能量来维持生命活动,由于鱼类对碳水化合物的利用率很低,故利用脂质提供能量是鱼类应对低氧环境的极佳选择。

4.3 维生素

维生素是生物为维持正常生理功能而需要从外部获取的一种微量有机物质,在生物的生长代谢和发育繁殖等生命活动中发挥着重要作用。有学者以卒死率为指标对条石鲷(Oplegnathus fasciatus)和斑石鲷进行研究,发现在饲料中添加适宜水平的维生素C(vitamin C,VC)可以降低鱼类在低氧环境中的卒死率,且所有低氧水平环境下鱼类的应激耐性与饲料中VC的添加量呈正相关关系[51]。而后在对异育银鲫(Carassius auratus gibelio)的研究中揭示了这种保护机制,即VC可降低鱼类下丘脑的细胞凋亡指数,抑制低氧诱导的肝脏葡萄糖调节蛋白78(glucose-regulated protein 78,GRP78)表达和内质网应激以及细胞凋亡,通过核因子E2相关因子2/Kelch样ECH关联蛋白1(Nrf2/Keap1)信号通路减轻氧化损伤、炎症和急性低氧诱导的细胞凋亡,从而增强鱼类对低氧的耐受能力[52]。吕广祺等[53]进行联合试验发现,不同含量的Tau和VC联合使用,对提高麦穗鱼(Pseudorasboraparva)的耐低氧能力作用比VC和Tau单独作用时效果好,在Tau和VC的联合作用下,麦穗鱼的耐低氧能力得到提高效果比Tau与VC单独作用相比更明显,但其作用机理尚不明确,有待于进一步深入研究。

4.4 非营养性添加剂

除了一些常见的营养物质外,多种能够用于提高鱼类耐低氧能力的非营养性添加剂也被相继发现,并通过试验研究证实了其可行性。
β-葡聚糖是一种同型多糖,具有增强免疫的效果,可以提高鱼类的机体免疫力。MDA是一种有机化合物,能够作为指示抗氧化损伤的标志性产物,其含量的增加表明低氧胁迫对鱼体造成了氧化损伤[54]。王永红等[55]研究发现,注射β-葡聚糖可以降低低氧状态下大黄鱼(Larimichthys crocea)幼鱼肝脏中MDA含量,说明β-葡聚糖能够在一定程度上缓解低氧胁迫引起的大黄鱼幼鱼氧化损伤。对罗非鱼的研究显示,水中添加0.1 mg/L的β-葡聚糖能够调节罗非鱼的血液GLU含量,增加其肠道细菌群落的丰富度,最大限度地减少低氧的影响,从而降低死亡率[56]
此外,其他研究还发现在饲料中添加0.1%~0.3%的啤酒酵母菌提取物可提高花鲈幼鱼的生长性能,改善抗氧化状态,提高抗低氧胁迫的能力[57];三萜类苷元具有抗低氧作用,可以提高斑马鱼在低氧环境中的存活率[58];饲料中添加米曲霉益生菌(aspergillus oryzae,ASP)可以提高罗非鱼在低氧胁迫前后体内抗氧化酶如SOD和谷胱甘肽过氧化物酶(glutathione peroxidase,GPX)的活性,并降低MDA的含量,从而显著提高罗非鱼对低氧胁迫的防御能力[59];使用8%的饲料咖啡因能够防治因低氧引起的一些不良反应,可作为低氧期间改善鳃内能量平衡的替代方案[60];在饲料中添加适宜浓度(57.21 g/kg)的桑叶提取物(extract of mulberry leaves,EML)可通过提高鱼鳃中谷草转氨酶(glutamate oxaloacetate transaminase,GOT)活性和红细胞中的Hb含量来改善鲫鱼的呼吸功能,抑制活性氧(reactive oxygen species,ROS)的产生和细胞成分的氧化,减少氧化损伤,提高耐低氧能力[61];对斜带石斑鱼(Epinephelus coioides)进行研究发现,在饲料中添加适量的替普瑞酮(100、200 mg/kg)能够使斜带石斑鱼产生对低氧胁迫的抵抗力,证明这是一种有效的抗低氧添加剂[62];红景天作为一种传统的中药,具有一定的抗疲劳和抗低氧作用。研究发现,低浓度的(0.02 mg/L)红景天处理可以降低斑马鱼体内的血液乳酸含量,明显延长其低氧耐受时间[63]
因此,由上述研究结果可知,通过营养调控来缓解或解决低氧胁迫导致的鱼类生存生长问题是切实可行的,并且具有广阔的应用前景。通过营养调控的途径来提高鱼类的耐低氧能力具有明显作用,但同时也存在一些局限性。例如,营养成分的含量、配比和摄入水平都有适宜的水平限度,超过或不足都会影响鱼类的生长和健康状况。此外,环境因素如水质、水温等也会对营养调控效果产生影响,只有在适宜的生态环境下鱼类才能更好地吸收与利用营养物质。

5 其他措施

5.1 养殖模式的改进

目前的水产养殖普遍采取集约化养殖模式。在该模式下,高密度的养殖鱼群和大量的饲料投入是低氧产生的重要原因。水体DO主要来自浮游植物的光合作用和大气交换,被鱼类和水中沉积物其他生物的呼吸消耗,当呼吸作用超过光合作用时会使DO含量下降。机械曝气可以避免DO含量大幅下降[64],因此,为解决集约化养殖模式带来的低氧问题,曝气系统如螺旋桨吸气泵等得到了一定的应用。适当的曝气不仅能够提高水中的DO含量,还可以改善水质和提高饲料利用率,但是目前曝气设备的使用成本较高且不能保证效果[65]。稻田养鱼是利用稻鱼共生原理,在种植水稻的田里养殖鱼类的生态种养模式。研究发现,与单养模式相比,混养模式中的水稻能够吸附水中有机物和悬浮物,降低池塘水体的总氮、总磷和钾的含量以及底泥呼吸速率,减少富营养化现象的发生,提高鱼类呼吸耗氧占比。此外,水稻还能够降低水温,提高水体中DO容纳量[66]。总的来说,稻鱼混养降低了水体DO的消耗,提高了鱼类的呼吸效率,并减少机械曝气设备的使用以降低成本,是缓解集约化养殖模式造成低氧的有效途径,具有应用至池塘养殖的可行性,值得进一步深入研究。

5.2 培育耐低氧新品种

通过杂交技术对鱼类品种进行改良是另一种提高鱼类耐低氧能力的有效手段。杂交被广泛用于通过在后代中使用新的遗传构象来改善动物和农业种群的特定性状,应用在水产养殖中具有多种益处,如提高SGR、FE和抗逆性等[67]。以溶解氧断点(breakpoint of dissolved oxygen,BPDO)为参考指标对三向杂交鲍鱼进行的研究发现,该杂交鱼的BPDO分别为(1.85±0.41) mg/L和(1.84±0.36) mg/L,而其亲本的BPDO分别为(2.15±0.40) mg/L和(2.03±0.48) mg/L。根据BPDO与耐缺氧能力呈负相关关系可知,三向杂交鲍鱼比其亲本具有更好的耐缺氧性[68]。此外,对黄颡鱼和长吻鳄(Leiocassis longirostris)的杂交后代的研究结果显示,杂交种的鳃细胞间质扩大,肝脏中空泡和肝脏组织肿胀,肠道黏膜下层扩大以及HIF相关基因与抗氧化酶活性的快速反应和激活,表明形态学、分子学及生物化学调整的复杂组合共同促成了杂交种的耐低氧性[69]。因此,通过杂交技术培育具有优良耐低氧性能的新品种鱼类,对于缓解低氧的危害,保证鱼类的正常生长以及提高养殖效果具有广阔的应用前景。

6 小结

综上所述,水体低氧作为水产养殖过程中一个普遍且不容忽视的问题,对鱼类的生长发育、行为活动和生理生化状态都会造成不利影响,严重时会导致鱼类大量死亡,使得渔获质量下降,养殖效果达不到预期,从而造成经济损失。因此,我们必须重视低氧问题并采取措施进行缓解或解决。在面对低氧胁迫时,鱼类自身具有一定的适应能力,可以通过调整呼吸和游泳方式、改变鳃的状态和调节代谢途径等来适应急性低氧应激和慢性低氧应激。然而近些年来随着水产养殖业的快速发展,集约化高密度养殖模式的广泛应用以及气候和天气变化的影响使得养殖过程中低氧出现的频率和程度均有所增加,仅靠鱼体自身的适应策略已不足以应对,因此养殖工作者也应当重视通过养殖策略的改进来提高鱼类的生活质量。在采取人工措施防治低氧方面,利用营养调控手段加强鱼类等水产动物的耐低氧能力是当前以及今后的一个重要方向。随着分子生物学技术的不断发展,对鱼类低氧胁迫的研究也由传统的探索结果规律深入到了细胞和基因水平,低氧胁迫相关的信号通路被相继发现,为从基因层面提高鱼类的耐低氧能力提供了理论依据。同时,越来越多的营养物质以及非营养性添加剂被发现并研究,证实了其可以作为饲料添加剂用以提高鱼类对低氧等环境胁迫的耐受性。
在未来的相关研究中,应当更加关注营养调控的机理研究、营养物质调控鱼类的普遍性和特异性、多种营养物质的联合作用以及营养物质与环境相互影响等方面,结合实际开发靶向营养调控技术,提高鱼类的耐低氧能力,以降低低氧对水产养殖造成的不利影响,从而促进水产行业的健康发展。
[1]
徐贺, 陈秀梅, 王桂芹, 等. 低氧胁迫在水产养殖中的研究进展[J]. 饲料工业, 2016, 37(2):33-37.

XU H, CHEN X M, WANG G Q, et al. Research progress of hypoxia on aquaculture[J]. Feed Industry, 2016, 37(2):33-37. (in Chinese)

[2]
宋银都, 唐首杰, 赵金良. 鳜幼鱼窒息点、耗氧率的初步研究[J]. 水产养殖, 2019, 40(3):3-5.

SONG Y D, TANG S J, ZHAO J L. A preliminary study on suffocation point and oxygen consumption rate of Siniperca chuatsi juveniles[J]. Journal of Aquaculture, 2019, 40(3):3-5. (in Chinese)

[3]
CANDEBAT C L, BOOTH M, WILLIAMSON J E, et al. The critical oxygen threshold of yellowtail kingfish (Seriola lalandi)[J]. Aquaculture, 2020, 516:734519.

DOI

[4]
JIA Y D, WANG J W, GAO Y T, et al. Hypoxia tolerance,hematological,and biochemical response in juvenile turbot (Scophthalmus maximus. L)[J]. Aquaculture, 2021, 535:736380.

DOI

[5]
崔宽宽, 尤宏争, 丁子元, 等. 不同规格花鲈的耗氧率与窒息点研究[J]. 科学养鱼, 2018(3):57-58.

CUI K K, YOU H Z, DING Z Y, et al. Study on oxygen consumption and asphyxiation point of different standard of common seabass[J]. Scientific Fish Farming, 2018(3):57-58. (in Chinese)

[6]
高云涛, 高云红, 李明月, 等. 斑石鲷低氧耐受能力及血液生理生化指标变化研究[J]. 渔业科学进展, 2022, 43(6):79-88.

GAO Y T, GAO Y H, LI M Y, et al. Hypoxia tolerance and alternation of blood physiological and biochemical indexes in spotted knifejaw Oplegnathus punctatus[J]. Progress in Fishery Sciences, 2022, 43(6):79-88. (in Chinese)

[7]
HE Y, YU H D, ZHANG Z Y, et al. Effects of chronic hypoxia on growth performance,antioxidant capacity and protein turnover of largemouth bass (Micropterus salmoides)[J]. Aquaculture, 2022, 561:738673.

DOI

[8]
陈德举, 强俊, 陶易凡, 等. 不同溶氧水平对吉富罗非鱼幼鱼生长、血液生化、脂肪酸组成及其抗海豚链球菌病的影响[J]. 淡水渔业, 2019, 49(4):83-89.

CHEN D J, QIANG J, TAO Y F, et al. Effects of different dissolved oxygen levels on the growth,blood biochemistry,fatty acid composition and against Streptococcus iniae infection of GIFT juvenile (Oreochromis niloticus)[J]. Freshwater Fisheries, 2019, 49(4):83-89. (in Chinese)

[9]
MAGNONI L J, EDING E, LEGUEN I, et al. Hypoxia,but not an electrolyte-imbalanced diet,reduces feed intake,growth and oxygen consumption in rainbow trout (Oncorhynchus mykiss)[J]. Scientific Reports, 2018, 8(1):4965.

DOI

[10]
GAN L, LIU Y J, TIAN L X, et al. Effects of dissolved oxygen and dietary lysine levels on growth performance,feed conversion ratio and body composition of grass carp,Ctenopharyngodon idella[J]. Aquaculture Nutrition, 2013, 19(6):860-869.

DOI

[11]
OBIRIKORANG K A, ACHEAMPONG J N, DUODU C P, et al. Growth,metabolism and respiration in Nile tilapia (Oreochromis niloticus) exposed to chronic or periodic hypoxia[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2020, 248:110768.

[12]
NIKLITSCHEK E J, SECOR D H. Dissolved oxygen,temperature and salinity effects on the ecophysiology and survival of juvenile Atlantic sturgeon in estuarine waters:Ⅱ.Model development and testing[J]. Journal of Experimental Marine Biology and Ecology, 2009, 381(Supplement):S161-S172.

DOI

[13]
赵文文, 曹振东, 付世建. 溶氧水平对鳊鱼、中华倒刺鲃幼鱼游泳能力的影响[J]. 水生生物学报, 2013, 37(2):314-320.

ZHAO W W, CAO Z D, FU S J. The effects of dissolved oxygen level on the swimming performances of juvenile Parabramis pekinensis and Spinibarbus sinensis[J]. Acta Hydrobiologica Sinica, 2013, 37(2):314-320. (in Chinese)

[14]
于晓明, 崔闻达, 陈雷, 等. 水温、盐度和溶氧对红鳍东方鲀幼鱼游泳能力的影响[J]. 中国水产科学, 2017, 24(3):543-549.

YU X M, CUI W D, CHEN L, et al. Effects of water temperature,salinity,and dissolved oxygen on the swimming ability of Japanese pufferfish,Takifugu rubripes juveniles[J]. Journal of Fishery Sciences of China, 2017, 24(3):543-549. (in Chinese)

DOI

[15]
HERBERT N A, STEFFENSEN J F. The response of Atlantic cod,Gadus morhua,to progressive hypoxia:fish swimming speed and physiological stress[J]. Marine Biology, 2005, 147(6):1403-1412.

DOI

[16]
ZHANG W, CAO Z D, PENG J L, et al. The effects of dissolved oxygen level on the metabolic interaction between digestion and locomotion in juvenile southern catfish (Silurus meridionalis Chen)[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2010, 157(3):212-219.

[17]
杨明阳. 低氧和高氧对斑马鱼胚胎心血管发育的影响[D]. 硕士学位论文. 重庆: 西南大学, 2017.

YANG M Y. The influence of hypoxia and hyperoxia on cardiovascular development in zebrafish embryo[D]. Master’s Thesis. Chongqing: Southwest University, 2017. (in Chinese)

[18]
熊向英, 黄国强, 彭银辉, 等. 低氧胁迫对鲻幼鱼生长、能量代谢和氧化应激的影响[J]. 水产学报, 2016, 40(1):73-82.

XIONG X Y, HUANG G Q, PENG Y H, et al. Effect of hypoxia on growth performance,energy metabolism and oxidative stress of Mugil cephalus[J]. Journal of Fisheries of China, 2016, 40(1):73-82. (in Chinese)

[19]
WANG M, WU F L, XIE S G, et al. Acute hypoxia and reoxygenation:effect on oxidative stress and hypoxia signal transduction in the juvenile yellow catfish (Pelteobagrus fulvidraco)[J]. Aquaculture, 2021, 531:735903.

DOI

[20]
王雪芹, 阳涛. 急性低氧应激对鲫鱼血液生化指标的影响[J]. 渔业现代化, 2021, 48(6):36-41.

WANG X Q, YANG T. Effects of acute hypoxia stress on blood biochemical indices of Carassius auratus[J]. Fishery Modernization, 2021, 48(6):36-41. (in Chinese)

[21]
徐畅. 急性低氧胁迫对翘嘴鳜部分组织酶活性及相关基因表达的影响[D]. 硕士学位论文. 南京: 南京农业大学, 2020.

XU C. Effects of acute hypoxia stress on tissue enzyme activities and related gene expression in mandarin fish (Siniperca chuatsi)[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University, 2020. (in Chinese)

[22]
LU G, MAK Y T, WAI S M, et al. Hypoxia-induced differential apoptosis in the central nervous system of the sturgeon (Acipenser shrenckii)[J]. Microscopy Research & Technique, 2005, 68(5):258-263.

[23]
NI M, WEN H S, LI J F, et al. The physiological performance and immune responses of juvenile Amur sturgeon (Acipenser schrenckii) to stocking density and hypoxia stress[J]. Fish & Shellfish Immunology, 2014, 36(2):325-335.

[24]
阮雯, 纪炜炜, 郑亮, 等. 鱼类低氧胁迫及营养调控和应对研究进展[J]. 海洋渔业, 2020, 42(6):751-761.

RUAN W, JI W W, ZHENG L, et al. On hypoxia stress in fish and its nutritional regulation and response[J]. Marine Fisheries, 2020, 42(6):751-761. (in Chinese)

[25]
XIAO W H. The hypoxia signaling pathway and hypoxic adaptation in fishes[J]. Science China Life Sciences, 2015, 58(2):148-155.

DOI

[26]
ARAGONÉS J, FRAISL P, BAES M, et al. Oxygen sensors at the crossroad of metabolism[J]. Cell Metabolism, 2009, 9(1):11-22.

DOI PMID

[27]
RIUS J, GUMA M, SCHACHTRUP C, et al. NF-κB links innate immunity to the hypoxic response through transcriptional regulation of HIF-1α[J]. Nature, 2008, 453(7196):807-811.

DOI

[28]
ZHAO L L, TANG X H, HUANG R, et al. Acute hypoxia promotes the liver angiogenesis of largemouth bass (Micropterus salmoides) by HIF-dependent pathway[J]. Fish & Shellfish Immunology, 2022, 131:264-273.

[29]
KRAMER D L, MCCLURE M. Aquatic surface respiration,a widespread adaptation to hypoxia in tropical freshwater fishes[J]. Environmental Biology of Fishes, 1982, 7(1):47-55.

DOI

[30]
LI M X, WANG X D, QI C L, et al. Metabolic response of Nile tilapia (Oreochromis niloticus) to acute and chronic hypoxia stress[J]. Aquaculture, 2018, 495:187-195.

DOI

[31]
VIRANI N A, REES B B. Oxygen consumption,blood lactate and inter-individual variation in the gulf killifish,Fundulus grandis,during hypoxia and recovery[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2000, 126(3):397-405.

[32]
JOHANSSON D, NILSSON G E, DØVING K B. Anoxic depression of light-evoked potentials in retina and optic tectum of crucian carp[J]. Neuroscience Letters, 1997, 237(2/3):73-76.

DOI

[33]
NILSSON G E, DYMOWSKA A, STECYK J A W. New insights into the plasticity of gill structure[J]. Respiratory Physiology & Neurobiology, 2012, 184(3):214-222.

DOI

[34]
TZANEVA V, VADEBONCOEUR C, TING J, et al. Effects of hypoxia-induced gill remodelling on the innervation and distribution of ionocytes in the gill of goldfish,Carassius auratus[J]. The Journal of Comparative Neurology, 2014, 522(1):118-130.

DOI

[35]
GRAHAM J B. Air-breathing fishes|The biology,diversity,and natural history of air-breathing fishes:an introduction[M]//FARRELL A P.Encyclopedia of Fish Physiology:From Genome to Environment. Amsterdam: Academic Press, 2011:1850-1860.

[36]
李瑾. 黄鳝的生物学特征及养殖技术[J]. 江西饲料, 2003(2):35.

LI J. Biological characteristics and culture technology of eels[J]. Grain Oil and Feed Technology, 2003(2):35. (in Chinese)

[37]
NILSSON G E, RENSHAW G M C. Hypoxic survival strategies in two fishes:extreme anoxia tolerance in the north European crucian carp and natural hypoxic preconditioning in a coral-reef shark[J]. Journal of Experimental Biology, 2004, 207(18):3131-3139.

DOI

[38]
SMITH R W, HOULIHAN D F, NILSSON G E, et al. Tissue-specific changes in protein synthesis rates in vivo during anoxia in crucian carp[J]. American Journal of Physiology-Regulatory,Integrative and Comparative Physiology, 1996, 271(4):R897-R904.

[39]
SOLLID J, DE ANGELIS P, GUNDERSEN K, et al. Hypoxia induces adaptive and reversible gross morphological changes in crucian carp gills[J]. Journal of Experimental Biology, 2003, 206(20):3667-3673.

DOI

[40]
SHOUBRIDGE E A, HOCHACHKA P W. Ethanol:novel end product of vertebrate anaerobic metabolism[J]. Science, 1980, 209(4453):308-309.

DOI

[41]
BURGGREN W W. “Air Gulping” improves blood oxygen transport during aquatic hypoxia in the goldfish Carassius auratus[J]. Physiological Zoology, 1982, 55(4):327-334.

DOI

[42]
MA Q, WANG X, LI L Y, et al. High protein intake promotes the adaptation to chronic hypoxia in zebrafish (Danio rerio)[J]. Aquaculture, 2021, 535:736356.

DOI

[43]
韩步鹰. 饲料蛋白质和脂肪水平对三倍体虹鳟低氧应激的影响[D]. 硕士学位论文. 西宁: 青海大学, 2019.

HAN B Y. Effects of dietary protein and lipid levels on hypoxic stress of triploid rainbow trout (Oncorhynchus mykiss)[D]. Master’s Thesis. Xining: Qinghai University, 2019. (in Chinese)

[44]
丁园, 魏智清. 甘氨酸和精氨酸对鱼抗缺氧能力的影响[J]. 黑龙江畜牧兽医(上半月), 2015(11):236-238.

DING Y, WEI Z Q. Effect of glycine and arginine on the resistance of fish to hypoxia[J]. Heilongjiang Animal Science and Veterinary Medicine, 2015(11):236-238. (in Chinese)

[45]
李倩. 甘氨酸和精氨酸对鱼类抗缺氧能力的影响[J]. 热带农业工程, 2019, 43(1):173-176.

LI Q. Effects of glycine and arginine on anti-hypoxia ability of fish[J]. Tropical Agricultural Engineering, 2019, 43(1):173-176. (in Chinese)

[46]
VARGHESE T, REJISH KUMAR V, GOPAN A, et al. Dietary arginine modulates nonspecific immune responses in Indian major carp,Cirrhinus mrigala exposed to hypoxia[J]. Aquaculture, 2020, 529:735613.

DOI

[47]
YANG H J, TIAN L X, HUANG J W, et al. Dietary taurine can improve the hypoxia-tolerance but not the growth performance in juvenile grass carp Ctenopharyngodon idellus[J]. Fish Physiology and Biochemistry, 2013, 39(5):1071-1078.

DOI

[48]
魏华, 于业辉. 牛磺酸、γ-氨基丁酸对草金鱼抗缺氧能力的影响[J]. 黑龙江畜牧兽医, 2012(7):143-145.

WEI H, YU Y H. Effects of taurine and γ-aminobutyric acid on the anti-hypoxia ability of grass carp (Ctenopharyngodon idella)[J]. Heilongjiang Animal Science and Veterinary Medicine, 2012(7):143-145. (in Chinese)

[49]
VARGHESE T, REJISH KUMAR V J, ANAND G, et al. Dietary GABA enhances hypoxia tolerance of a bottom-dwelling carp,Cirrhinus mrigala by modulating HIF-1α,thyroid hormones and metabolic responses[J]. Fish Physiology and Biochemistry, 2020, 46(1):199-212.

DOI

[50]
AN X, WU J Y, ZHOU X Q, et al. A new strategy:dietary lipids protected the liver from hypoxia injury in multiple ways in grass carp (Ctenopharyngodon idella)[J]. Aquaculture, 2022, 560:738523.

DOI

[51]
石桥泰典, 王拥军. 鱼类对低氧条件的应急耐性与饲料中添加VC的效果[J]. 国外水产, 1993(4):26-27.

ISHIBASHI T, WANG Y J. Emergency tolerance of fish to hypoxia conditions and the effect of VC addition to feed[J]. Overseas Fisheries, 1993(4):26-27. (in Chinese)

[52]
WU L Y, XU W J, LI H Y, et al. Vitamin C attenuates oxidative stress,inflammation,and apoptosis induced by acute hypoxia through the Nrf2/Keap1 signaling pathway in gibel carp (Carassius gibelio)[J]. Antioxidants, 2022, 11(5):935.

DOI

[53]
吕广祺, 魏华. 维生素C和牛磺酸对麦穗鱼抗缺氧能力的影响[J]. 黑龙江畜牧兽医, 2015(3):194-196.

LV G Q, WEI H. Effects of vitamin C and taurine on the anti-hypoxia ability of whelk[J]. Heilongjiang Animal Science and Veterinary Medicine, 2015(3):194-196. (in Chinese)

[54]
JIANG S, ZHANG W J, QIAN X B, et al. Effects of hypoxia and reoxygenation on apoptosis,oxidative stress,immune response and gut microbiota of Chinese mitten crab,Eriocheir sinensis[J]. Aquatic Toxicology, 2023, 260:106556.

DOI

[55]
王永红, 张建设, 曾霖. β-葡聚糖对低氧胁迫下大黄鱼幼鱼的保护作用及其机理[J]. 水产学报, 2018, 42(6):828-837.

WANG Y H, ZHANG J S, ZENG L. β-glucan decreases intensity of hypoxia-induced oxidative stress in large yellow croaker (Larimichthys crocea) and its corresponding mechanisms[J]. Journal of Fisheries of China, 2018, 42(6):828-837. (in Chinese)

[56]
DE SOUZA F P, DE LIMA E C S, PANDOLFI V C F, et al. Effect of β-glucan in water on growth performance,blood status and intestinal microbiota in tilapia under hypoxia[J]. Aquaculture Reports, 2020, 17:100369.

DOI

[57]
彭凯, 孙育平, 王国霞, 等. 饲料中添加啤酒酵母提取物对花鲈幼鱼生长性能、抗氧化和抗低氧胁迫能力的影响[J]. 动物营养学报, 2020, 32(1):334-345.

DOI

PENG K, SUN Y P, WANG G X, et al. Effects of dietary brewers’ yeast extract on growth performance,antioxidant and anti-hypoxic stress ability of juvenile Japanese seebass (Lateolabrax japonicus)[J]. Chinese Journal of Animal Nutrition, 2020, 32(1):334-345. (in Chinese)

[58]
夏彬彬, 陈世财, 李晓蓉, 等. 基于斑马鱼急性模型的抗缺氧活性成分筛选评价[J]. 中国临床药理学杂志, 2017, 33(8):738-741.

XIA B B, CHEN S C, LI X R, et al. Screening and evaluation of potential anti-hypoxia components based on acute zebrafish hypoxic model[J]. The Chinese Journal of Clinical Pharmacology, 2017, 33(8):738-741. (in Chinese)

[59]
DAWOOD M A O, EWEEDAH N M, MOUSTAFA E M, et al. Probiotic effects of Aspergillus oryzae on the oxidative status,heat shock protein,and immune related gene expression of Nile tilapia (Oreochromis niloticus) under hypoxia challenge[J]. Aquaculture, 2020, 520:734669.

DOI

[60]
BALDISSERA M D, SOUZA C F, PETROLLI T G, et al. Caffeine prevents hypoxia-induced dysfunction on branchial bioenergetics of Nile tilapia through phosphoryl transfer network[J]. Aquaculture, 2019, 502:1-7.

DOI

[61]
LI H T, LU L, WU M, et al. The effects of dietary extract of mulberry leaf on growth performance,hypoxia-reoxygenation stress and biochemical parameters in various organs of fish[J]. Aquaculture Reports, 2020, 18:100494.

DOI

[62]
DONG H B, ZHENG X T, KUMAR V, et al. Dietary supplementation of teprenone potentiates thermal and hypoxia tolerance as well as cellular stress protection of Epinephelus coioides juveniles reared under multiple stressors[J]. Aquaculture, 2020, 514:734413.

DOI

[63]
范能全, 彭兰, 杨武, 等. 红景天对斑马鱼游泳和耐低氧能力的影响的初步研究[J]. 药物分析杂志, 2015, 35(8):1342-1345.

FAN N Q, PENG L, YANG W, et al. Preliminary study of effects of Rhodiola on swimming performance and hypoxia tolerance of zebrafish[J]. Chinese Journal of Pharmaceutical Analysis, 2015, 35(8):1342-1345. (in Chinese)

[64]
BOYD C E, TORRANS E L, TUCKER C S. Dissolved oxygen and aeration in ictalurid catfish aquaculture[J]. Journal of the World Aquaculture Society, 2018, 49(1):7-70.

DOI

[65]
LIN C Y, SHEN Y T, TSAI Y A, et al. An analysis on the preliminary benefits of aquaculture smart aeration control[J]. IET Smart Cities, 2023, 5(1):35-40.

DOI

[66]
LI F B, SUN Z P, QI H Y, et al. Effects of rice-fish co-culture on oxygen consumption in intensive aquaculture pond[J]. Rice Science, 2019, 26(1):50-59.

DOI

[67]
付璐璐, 王峥, 王磊, 等. 近10年水产动物抗逆育种研究进展[J]. 江苏农业科学, 2020, 48(16):52-58.

FU L L, WANG Z, WANG L, et al. Research progress of resistance breeding of aquatic animals in recent ten years[J]. Jiangsu Agricultural Sciences, 2020, 48(16):52-58. (in Chinese).

[68]
XIAO Q Z, SHEN Y W, GAN Y, et al. Three-way cross hybrid abalone exhibit heterosis in growth performance,thermal tolerance,and hypoxia tolerance[J]. Aquaculture, 2022, 555:738231.

DOI

[69]
WANG H Y, LIN G, ZHOU J, et al. The hybrid Pelteobagrus fulvidraco (♀)×Leiocassis longirostris (♂) exhibits improved trait on hypoxia-tolerance[J]. Aquaculture, 2023, 562:738859.

DOI

Outlines

/