RESEARCH PAPER

Effects of Dietary Succinic Acid on Meat Quality and Muscle Fiber Type of Tan Sheep

  • ZHANG Ning ,
  • KANG Yan ,
  • REN Wenyi ,
  • CHENG Yuchen ,
  • XU Xiaofeng ,
  • ZHANG Lili , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*associate professor, E-mail:

Received date: 2023-04-23

  Online published: 2023-10-12

Abstract

The aim of this study was to investigate the effects of dietary succinic acid on meat quality and muscle fiber type of Tan sheep. Thirty-six healthy male lambs of Tan sheep with similar age (5 months of age) and body weight [(33.00±0.69) kg] were randomly divided into 4 groups with 9 lambs per group. On the basis of dry matter (DM), the dietary succinic acid supplementation levels of Tan sheep in 4 groups were 0 (control group), 0.5% (trial group Ⅰ), 1.0% (trial group Ⅱ) and 2.0% (trial group Ⅲ), respectively. The feeding experiment lasted for 70 days, including 10 days in pre-trial period and 60 days in formal trial period. After the feeding experiment, five Tan sheep were slaughtered in each group and the longissimus dorsi muscle was detected. The results showed as follows: the cooking loss and fat lightness (L*) value in the trial groups Ⅰ and Ⅱ were significantly higher than those in the control group (P<0.05). The diameter of type Ⅰ, type Ⅱa and type Ⅱb muscle fiber and cross-sectional area of type Ⅰ and type Ⅱa muscle fiber in the three trial groups were extremely significantly lower than those in the control group (P<0.01), the density of type Ⅰ muscle fiber was significantly higher than that in the control group (P<0.05), and the ratio of type Ⅱa muscle fiber was extremely significantly lower than that in the control group (P<0.01). The mRNA relative expression levels of four types of myosin heavy chain genes (MyHCs) MyHCⅠ, MyHCa, MyHCb and MyHCx in the three trial groups were extremely significantly lower than those in the control group (P<0.01). In conclusion, dietary succinic acid can reduce the expression of MyHCs and regulate the transformation of muscle fiber types in muscle fiber of longissimus dorsi muscle for Tan sheep. In addition, it can also affect the meat quality to some extent by regulating the histological characteristics of muscle fibers of Tan sheep.

Cite this article

ZHANG Ning , KANG Yan , REN Wenyi , CHENG Yuchen , XU Xiaofeng , ZHANG Lili . Effects of Dietary Succinic Acid on Meat Quality and Muscle Fiber Type of Tan Sheep[J]. Chinese Journal of Animal Nutrition, 2023 , 35(10) : 6538 -6545 . DOI: 10.12418/CJAN2023.598

琥珀酸,又名丁二酸,是所有需氧生物中三羧酸循环的代谢中间体。作为肌肉组织的基本构成单位,肌纤维的组成和类型对畜禽的生长以及肉品质起着重要作用[1-2]。琥珀酸可通过细胞膜上G蛋白偶联受体91(G-protein-coupled receptor 91,GPR91)诱导细胞内钙离子(Ca2+)浓度升高[3]。细胞内Ca2+在肌肉的生长发育、类型转化上起着重要作用,是骨骼肌中活化细胞外信号调节激酶1/2(extracellular signal-regulated kinase 1/2,ERK1/2)和促进肌管分化和蛋白质合成的重要第二信使[4-5]。Ca2+信号变化对肌肉前体细胞成肌成脂分化过程具有重要调控作用[6]。在小鼠上研究发现,琥珀酸对调控鼠骨骼肌肌纤维类型具有重要调节作用,可改变肌肉的嫩度[7]。Wang等[8]研究表明,在肌纤维类型转化过程中,琥珀酸经过细胞膜受体GPR91诱导激活磷脂酶-Cβ(phospholipase-Cβ,PLC-β),进而产生1,4,5-三磷酸肌醇(inositol triphosphate,IP3)和二酰基甘油(diacylglycerol,DG)2个第二信使,导致细胞内钙离子浓度增加,进而激活Ca2+/T细胞激活核因子(nuclear factor of activated T cells,NFAT)通路,调控肌球蛋白重链(myosin heavy chains,MyHCs)的基因表达,从而影响肌纤维类型。本试验在饲粮中添加不同水平的琥珀酸后饲喂滩羊,对滩羊背最长肌进行组织学形态特征分析及PCR定量分析,为进一步深入研究琥珀酸对滩羊肉品质及肌纤维类型的影响提供理论基础。

1 材料与方法

1.1 试验设计

选择年龄(5月龄)和体重[(33.00±0.69) kg]相近的健康滩羊公羔36只,随机分为4组,每组9只。在干物质(DM)基础上,4组滩羊饲粮中琥珀酸添加水平分别为0(对照组)、0.5%(试验Ⅰ组)、1.0%(试验Ⅱ组)、2.0%(试验Ⅲ组)。饲喂期为70 d,其中预试期10 d,正试期60 d。试验饲粮参照农业行业标准《肉羊饲养标准》(NY/T 816—2004)和生产实践配制,其组成及营养水平见表1。试验饲粮干物质、粗蛋白质、中性洗涤纤维、钙、磷含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 20806—2006、GB/T 6436—2018、GB/T 6437—2018测定,代谢能计算方法为原料代谢能乘以该原料在饲粮中所占比例,然后相加,其中原料代谢能参考《中国饲料成分及营养价值表(2022年第33版)》。试验羊单栏饲养,每天饲喂全混合日粮2次(07:00和17:00),自由饮水。
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis)%

项目
Items
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
原料 Ingredients
玉米秸秆 Corn stalk 30.00 30.00 30.00 30.00
玉米 Corn 25.00 25.00 25.00 25.00
柠条 Caragana korshinskii 15.00 15.00 15.00 15.00
豆粕 Soybean meal 10.00 10.00 10.00 11.00
胚芽粕 Germ meal 7.00 7.00 6.50 5.50
干酒糟及其可溶物 DDGS 5.50 5.00 5.00 4.00
菜籽粕 Rapeseed meal 3.00 3.00 3.00 3.00
预混料 Premix1) 3.00 3.00 3.00 3.00
糖蜜 Molasses 1.20 1.20 1.20 1.20
琥珀酸 Succinic acid 0.50 1.00 2.00
脱霉剂 Mildew removing agent 0.30 0.30 0.30 0.30
合计 Total 100.00 100.00 100.00 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 11.02 10.96 10.90 10.77
粗蛋白质 CP 14.44 14.29 14.18 14.12
中性洗涤纤维 NDF 41.98 41.84 41.68 41.22
钙 Ca 0.96 0.96 0.96 0.96
磷 P 0.40 0.40 0.40 0.39

1)预混料为每千克饲粮提供The premix provided the following per kg of diets:VA 1 600 000 IU,VD 800 000 IU,VE 1 000 IU,Cu 160 mg,Fe 500 mg,Zn 800 mg,Mn 600 mg,I 6 mg,Se 1 mg,NaCl 160 mg,Ca 200 mg,P 40 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 样本采集

在饲养试验结束后,禁食24 h,禁水2 h,每组选出5只体重接近平均体重的滩羊屠宰,取背最长肌于-20 ℃保存待测。

1.3 指标测定

1.3.1 肉品质指标测定

肉品质指标测定方法参考李斐[9]
肉色及脂肪色:用肉色测量仪器进行测量,记录数值。
pH45 min:将pH计插入宰后45 min的背最长肌肉样横切面的中心部位,待读数稳定5 s后读数,记录数据,每个部位测3次,求平均值。
剪切力:取背最长肌肉样置于80 ℃的恒温水浴锅中,水浴加热至肉的中心温度达到75 ℃,取出冷却至室温,按与肌纤维呈垂直方向切取宽度为1.5 cm的肉片。用1.27 cm直径的圆形取样器顺肌纤维方向钻切肉样块,记录嫩度仪显示的剪切力,同源样本的重复度量次数为6次,取平均值。
滴水损失:取背最长肌倒数第3~4肋间处眼肌,修整为长×宽×高=5.0 cm×3.0 cm×2.5 cm的肉块。将休整好的肉样称重(m1),一端用细铁丝钩住,放置于充气的聚乙烯薄膜食品袋中,悬吊于冰箱0~4 ℃冷藏层,放置24 h后取出肉样,拭去表层的汁液,称重(m2),按照如下公式计算滴水损失。
滴水损失(%)=[(m1-m2)/m1]×100。
失水率:取厚度为5 cm的背最长肌肉样一段(7~8 cm),采用双片刀垂直于肌纤维方向切取1.0 cm厚的肉片,平置在洁净的橡皮片上,用直径为2.523 cm的锋利圆形取样器切取一块中心部分样品,立即将上述取得的样品用感量为0.01 g的天平称重(m1),称重后将该样品置于上下各垫18层定性中速滤纸的2层纱布间,放置在35 kg的压力下加压5 min后称重(m2)按照如下公式计算失水率。
失水率(%)=[(m1-m2)/m1]×100。
蒸煮损失:取适量背最长肌肉样称重(m1),于80 ℃水浴中蒸煮45 min,将肉样冷却30 min再称重(m2),按照如下公式计算蒸煮损失。
蒸煮损失(%)=[(m1-m2)/m1]×100。
肌内脂肪含量:参照GB 5009.6—2016中酸水解法结合索氏提取法进行测定。

1.3.2 肌纤维组织形态学特性测定

肌纤维组织形态学特性测定参考罗玉龙等[10]的方法。滩羊宰后45 min内,立即取左侧胴体正数第12~13肋骨间背最长肌组织1份,沿肌纤维方向切成约0.5 cm×0.5 cm×1.0 cm大小的肉块,放入提前经液氮预冷的异戊烷中脱水30 s,然后放入液氮速冻,后放于-80 ℃冰箱中冷冻。将处理好的肌纤维样品用冰冻切片机切片后采用ATP酶染色,使用Olympus BX51显微镜和Image Pro Plus 6.0图像分析处理软件,在20×10倍下对肌纤维特性进行观察,分析肌纤维特性指标,包括肌纤维直径、面积、密度和数量。

1.3.3 肌纤维中MyHCs基因表达的检测

使用RNAiso Plus试剂(TaKaRa)按照说明书提取背最长肌总RNA,然后对提取的RNA用核酸定量仪进行定量和定性测定,并通过1.5%琼脂糖凝胶电泳检测RNA完整性。将总RNA通过Hifair® Ⅱ 1st Strand试剂盒(Yeasen Biotech)反转录为cDNA。以cDNA为模板,采用Hieff® qPCR SYBR Green Master Mix试剂盒(Yeasen Biotech)进行实时荧光定量PCR扩增。实时荧光定量PCR所用引物由西安擎科生物公司设计并合成,引物序列见表2。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。
表2 实时定量PCR所用引物

Table 2 Primers used for RT-qPCR

基因名称
Gene names
引物序列
Primer sequences (5'—3')
碱基数
Base number/bp
GenBank登录号
GenBank accession No.
肌球蛋白重链Ⅰ
MyHC
F:AAGAACCTGCTGCGGCTG
R:CCAAGATGTGGCACGGCT
18
18
XM_004010325.3
肌球蛋白重链Ⅱa
MyHCa
F:GAGGAACAATCCAATACAAATCTATCT
R:CCCATAGCATCAGGACACGA
27
20
XM_012122422.2
肌球蛋白重链Ⅱb
MyHCb
F:GACAACTCCTCTCGCTTTGG
R:GGACTGTGATCTCCCCTTGA
20
20
XM_027974884.1
肌球蛋白重链Ⅱx
MyHCx
F:AGCTGGAGAAGGAGAAGAGCGAGAT
R:TGTCTGCAGACGTGCTCTCTGAGTT
25
25
XM_004012706.4
β-肌动蛋白
β-actin
F:GAGCGCAAGTACTCCGTGTG
R:CATTTGCGGTGGACGATG
24
18
NM_001009784.1

1.4 数据处理与统计分析

试验数据用Excel 2016记录并作简单处理后,采用SPSS 23.0软件进行分析,采用单因素方差分析结合LSD法进行多重比较。P<0.05为差异显著,P<0.01为差异极显著。结果表示为平均值±标准差。

2 结果与分析

2.1 饲粮添加琥珀酸对滩羊肉品质的影响

表3可知,4组的pH45 min、失水率、滴水损失、剪切力、肌内脂肪含量及肉色差异均不显著(P>0.05);试验Ⅰ组、试验Ⅱ组的蒸煮损失显著低于对照组(P<0.05);试验Ⅰ组和试验Ⅱ组的脂肪亮度(L*)值显著低于对照组(P<0.05)。
表3 饲粮添加琥珀酸对滩羊肉品质的影响

Table 3 Effects of dietary succinic acid on meat quality of Tan sheep

项目
Items
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value
pH45 min 6.46±0.21 6.38±0.15 6.34±0.46 6.32±0.32 0.811
失水率 Water loss rate/% 48.08±1.85 47.10±1.23 47.33±1.99 46.02±3.06 0.517
滴水损失 Drip loss/% 3.01±0.19 2.97±0.06 2.73±0.32 2.21±0.12 0.917
剪切力 Shear force/N 32.71±3.94 31.35±5.13 31.94±5.41 31.96±5.49 0.831
蒸煮损失 Cooking loss/% 40.33±4.23a 34.75±2.43b 36.35±1.59b 38.19±1.83ab 0.029
肌肉红度值 Muscle a* value 11.25±2.19 10.22±0.42 10.10±1.13 10.74±1.17 0.507
肌肉黄度值 Muscle b* value 2.53±1.82 2.54±1.53 2.65±3.04 2.60±1.22 0.998
肌肉亮度值 Muscle L* value 28.09±0.91 25.25±3.30 25.73±4.30 28.21±0.10 0.233
脂肪红度值 Fat a* value 1.65±0.40 1.55±0.44 2.40±0.73 2.19±0.98 0.667
脂肪黄度值 Fat b* value 9.31±1.32 9.39±0.93 8.61±0.59 8.71±0.92 0.598
脂肪亮度值 Fat L* value 63.79±2.24a 60.25±1.57b 60.28±2.18b 62.18±1.94ab 0.035
肌内脂肪含量 IMF content/% 5.74±1.94 5.96±1.67 6.21±1.45 6.01±1.91 0.841

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean significant difference (P<0.01). The same as below.

2.2 滩羊背最长肌ATP酶染色结果

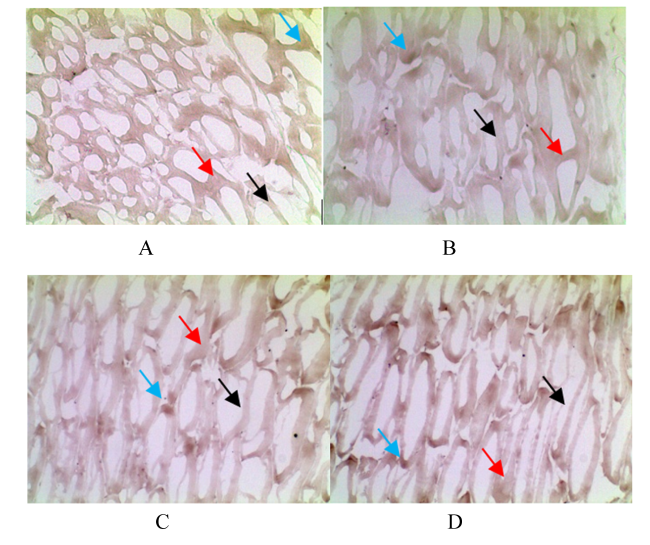
通过ATP酶染色法对各组滩羊背最长肌进行染色,染色结果如图1所示。经过ATP酶染色后,肌纤维被分成3种类型,其中颜色最深的是Ⅰ型肌纤维,颜色深度处于中间的是Ⅱa型肌纤维,颜色最浅的是Ⅱb型肌纤维。
图A ATP酶染色结果
、B、C、D分别代表对照组、试验Ⅰ组、试验Ⅱ组、试验Ⅲ组ATP酶染色后镜检图片。图中蓝色箭头代表Ⅰ型肌纤维,红色箭头代表Ⅱa型肌纤维,黑色箭头代表Ⅱb型肌纤维。

Figures ATPase staining results

A, B, C and D represent the microscopic examination pictures after ATPase staining in control group, trial group Ⅰ, trial group Ⅱ and trial group Ⅲ, respectively. In the figures, the blue arrow represents type Ⅰ muscle fiber, the red arrow represents type Ⅱa muscle fiber, and the black arrow represents type Ⅱb muscle fiber.

2.3 饲粮添加琥珀酸对滩羊肌纤维特性的影响

表4可知,3个试验组Ⅰ型、Ⅱa型和Ⅱb型肌纤维直径均极显著低于对照组(P<0.01),但3个试验组之间差异不显著(P>0.05)。3个试验组Ⅰ型和Ⅱa型肌纤维横截面积极显著低于对照组(P<0.01),Ⅱb型肌纤维横截面积与对照组差异不显著(P>0.05)。3个试验组Ⅰ型肌纤维密度显著高于对照组(P<0.05),其他2种类型肌纤维密度与对照组差异不显著(P>0.05)。3个试验组Ⅱa型肌纤维比例极显著低于对照组(P<0.01)。
表4 饲粮添加琥珀酸对滩羊肌纤维特性的影响

Table 4 Effects of dietary succinic acid on muscle fiber characteristics of Tan sheep

项目
Items
对照组
Control group
试验Ⅰ组
Trial group Ⅰ
试验Ⅱ组
Trial group Ⅱ
试验Ⅲ组
Trial group Ⅲ
P
P-value
肌纤维直径 Muscle fiber diameter/μm
Ⅰ型肌纤维 Type Ⅰ muscle fiber 107.66±9.50Aa 65.66±9.50Bb 55.00±10.00Bb 57.00±8.88Bb 0.001
Ⅱa型肌纤维 Type Ⅱa muscle fiber 106.00±9.00Aa 65.66±11.67Bb 56.00±9.16Bb 59.66±8.62Bb 0.001
Ⅱb型肌纤维 Type Ⅱb muscle fiber 113.66±15.63Aa 70.00±10.81Bb 59.66±8.62Bb 64.66±7.02Bb 0.001
肌纤维横截面积 Muscle fiber cross-sectional area/μm2
Ⅰ型肌纤维 Type Ⅰ muscle fiber 176.33±8.02Aa 147.00±9.53Bb 146.00±9.53Bb 144.33±9.50Bb 0.008
Ⅱa型肌纤维 Type Ⅱa muscle fiber 256.00±11.78Aa 207.00±18.00Bb 197.33±20.55Bb 202.33±15.01Bb 0.009
Ⅱb型肌纤维 Type Ⅱb muscle fiber 329.00±14.73 305.66±19.55 297.66±15.88 316.66±10.50 0.153
肌纤维密度 Muscle fiber density/(根/mm2)
Ⅰ型肌纤维 Type Ⅰ muscle fiber 193.00±14.52b 235.66±10.06a 228.66±13.20a 227.33±10.50a 0.011
Ⅱa型肌纤维 Type Ⅱa muscle fiber 151.66±14.50 184.00±15.71 184.66±15.94 186.00±11.13 0.053
Ⅱb型肌纤维 Type Ⅱb muscle fiber 91.66±10.26 93.33±8.62 95.33±8.50 92.66±7.09 0.961
肌纤维比例 Muscle fiber ratio/%
Ⅰ型肌纤维 Type Ⅰ muscle fiber 21.00±3.60 16.33±2.51 20.00±3.60 13.00±3.00 0.056
Ⅱa型肌纤维 Type Ⅱa muscle fiber 28.00±3.60Aa 14.66±3.05Bb 19.00±2.64Bb 18.00±3.00Bb 0.004
Ⅱb型肌纤维 Type Ⅱb muscle fiber 18.00±1.00 16.66±2.51 14.00±2.00 16.00±6.64 0.222

2.4 饲粮添加琥珀酸对滩羊肌纤维中MyHCs基因表达的影响

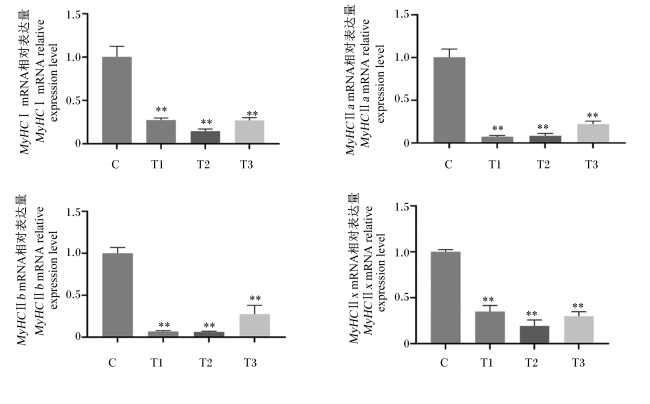
图2可知,3个试验组MyHCⅠ、MyHCaMyHCbMyHCx这4种基因的mRNA相对表达量均较对照组极显著降低(P<0.01)。随着琥珀酸添加量的上升,MyHCⅠ和MyHCx的mRNA相对表达量先降低后升高,而MyHCaMyHCb的mRNA相对表达量逐渐升高。
图2 肌纤维中肌球蛋白重链基因mRNA相对表达量

C代表对照组,T1、T2、T3分别代表试验Ⅰ组、试验Ⅱ组、试验Ⅲ组。数据柱标注“**”表示与对照组差异极显著(P<0.01)。

Fig.2 mRNA relative expression levels of MyHCs in muscle fiber

C represents control group, and T1, T2 and T3 represent trial group Ⅰ, trial group Ⅱ and trial group Ⅲ, respectively. Date columns mark with “**” indicates an extremely significant difference compared with control group (P<0.01).

3 讨论

肌肉纤维的类型和肉品质相关,肌纤维类型组成不同,宰后肌肉颜色、pH、系水力等肌肉品质性状也不同[9]。骨骼肌组织中I型肌纤维比例的增加会降低肉的颜色稳定性[10]。研究表明,Ⅱa型和Ⅱb型肌纤维比例较高的猪肉,L*值增加,持水能力降低[11-12]。本试验结果表明,3个试验组Ⅱa型和Ⅱb型肌纤维比例降低,表型测定结果也显示试验组肌肉和脂肪L*值有所下降,失水率降低导致其持水能力增加,说明添加琥珀酸后可通过降低Ⅱa型和Ⅱb型肌纤维比例来增加羊肉的持水能力。肌纤维的直径和横截面积越大,肌肉剪切力越大,即嫩度越差[13]。本研究结果显示,3个试验组Ⅰ型、Ⅱa型和Ⅱb型肌纤维直径以及Ⅰ型和Ⅱa型肌纤维横截面积均较对照组极显著降低,剪切力也有所下降,琥珀酸说明对羊肉品质有所改善。史卓言等[14]指出,豫西黑猪肌纤维横截面积和直径均极显著高于杜洛克猪,而肌纤维密度极显著低于杜洛克猪,这可能是这2个品种猪肉质口感存在差异的原因之一。本研究中,饲粮中添加琥珀酸后滩羊肌肉的肌纤维类型发生改变,肌纤维横截面积和直径均下降,肌纤维密度升高,说明肌纤维类型的改变是造成滩羊肉品质改善的原因之一,但具体原因还需进一步从分子水平研究其相关机制。
在成年哺乳动物的骨骼肌上表达有4种类型的MyHCs,分别为MyHCⅠ、MyHCaMyHCbMyHCx[15-16],它们分别对应4种不同类型的肌纤维,即Ⅰ型、Ⅱa型、Ⅱb型和Ⅱx型肌纤维,在代谢上分别与慢速氧化型、快速氧化型、快速酵解型和中间型肌纤维相对应[17-18]。Ⅰ型肌纤维具有慢收缩、氧化代谢特征,糖原含量低;Ⅱa型肌纤维是一种快速氧化糖酵解纤维,表现出介于Ⅰ型肌纤维和Ⅱx型肌纤维之间的中等收缩和代谢特性;Ⅱb型肌纤维具有快速抽动、糖酵解代谢特征、高糖原含量;而Ⅱx型纤维与Ⅱb型纤维接近,只是收缩速度较低、氧化代谢略高[19]。运动对肌肉纤维类型的转变有深远的影响,耐力训练可以使骨骼肌肌纤维类型发生转化。研究表明,中等强度和高强度的运动可能导致骨骼肌纤维类型由快向慢的转变[20],即骨骼肌从Ⅱ型转化为Ⅰ型。另有研究报道,运动的增加可以使猪的骨骼肌肌纤维类型发生转化,主要表现为Ⅱb型→Ⅱa型→Ⅱx型→Ⅰ型转化,即从酵解型肌纤维向氧化型肌纤维转化[21]。本研究中,饲粮中添加琥珀酸后,肌纤维中MyHCaMyHCbMyHCⅠ和MyHCx的mRNA相对表达量均较对照组极显著降低,且试验组肌纤维中MyHCaMyHCb的mRNA相对表达量较低,MyHCⅠ和MyHCx的mRNA相对表达量较高,说明肌纤维类型从酵解型肌纤维向氧化型肌纤维转化。另外,饲粮能量水平对肌纤维转化也有影响。
李秋艳等[22]发现,饲粮能量水平可调控乌金猪肌纤维类型基因的表达,并能引起肌纤维类型的转化,其中饲粮高能量水平下背最长肌MyHCⅠ的mRNA相对表达量最高。De Vadder等[23]在小鼠上的研究指出,琥珀酸可以通过糖异生显著改善葡萄糖和能量代谢,并且能增加机体能量消耗。因此,本试验推测可能是琥珀酸增加了能量消耗导致MyHCs基因的表达下调及肌纤维类型的转化,但具体机制还需进一步研究。
关于琥珀酸对不同类型肌肉纤维转化的机制应进一步从分子水平进行分析,后期将从肌纤维调控相关代谢通路及通路中相关基因表达方面继续研究,为滩羊肉质改善提供理论依据。

4 结论

琥珀酸可通过降低Ⅱa型和Ⅱb型肌纤维比例来增加持水能力,通过降低肌纤维直径和横截面积使剪切力下降,从而改善肉品质;琥珀酸可极显著降低肌纤维中MyHCs基因的表达并且调节肌纤维类型的转化。综合肉质表型测定结果、肌纤维组织学特性及肌纤维中MyHCs基因的表达情况,发现滩羊饲粮中琥珀酸添加量为1.0%(干物质基础)时效果较好。
[1]
KIM N K, LIM J H, SONG M J, et al. Comparisons of longissimus muscle metabolic enzymes and muscle fiber types in Korean and western pig breeds[J]. Meat Science, 2008, 78(4):455-460.

[2]
秦召, 康相涛, 李国喜. 肌纤维组织学特性与肌肉品质的关系[J]. 安徽农业科学, 2006, 34(22):5872-5873,5878.

QIN Z, KANG X S, LI G X. Relationship between histology characteristics of muscle fiber and meat quality[J]. Journal of Anhui Agricultural Sciences, 2006, 34(22):5872-5873,5878. (in Chinese)

[3]
梁冰清. 琥珀酸对肌肉生长和猪肉品质的影响[D]. 硕士学位论文. 广州: 华南农业大学, 2018.

LIANG B Q. Effects of succinate on muscle growth and pork quality[D]. Master’s Thesis. Guangzhou: South China Agricultural University, 2018. (in Chinese)

[4]
ESPINOSA A, LEIVA A, PEÑA M, et al. Myotube depolarization generates reactive oxygen species through NAD(P)H oxidase;ROS-elicited Ca2+ stimulates ERK,CREB,early genes[J]. Journal of Cellular Physiology, 2006, 209(2):379-388.

DOI

[5]
MAY C, WEIGL L, KAREL A, et al. Extracellular ATP activates ERK1/ERK2 via a metabotropic P2Y1 receptor in a Ca2+ independent manner in differentiated human skeletal muscle cells[J]. Biochemical Pharmacology, 2006, 71(10):1497-1509.

DOI

[6]
邱凯. 胞内钙离子平衡与骨骼肌前体细胞成肌成脂分化的关系研究[D]. 博士学位论文. 北京: 中国农业大学, 2018.

QIU K. Studies on the relationship between intracellular calcium ion homeostasis and the myogenic or adipogenic differentiation of precursors in skeletal muscle[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2018. (in Chinese)

[7]
ZAPPATERRA M, DESERTI M, MAZZA R, et al. A gene and protein expression study on four porcine genes related to intramuscular fat deposition[J]. Meat Science, 2016, 121:27-32.

DOI PMID

[8]
WANG T, XU Y Q, YUAN Y X, et al. Succinate induces skeletal muscle fiber remodeling via SUCNR1 signaling[J]. EMBO Reports, 2021, 22(6):e53027.

DOI

[9]
李斐. 不同处理方式的南瓜子副产物饲粮对滩羊生产性能及肉品质的影响[D]. 硕士学位论文. 银川: 宁夏大学, 2022.

LI F. Effects of pumpkin seed by-products diet with different treatment methods on production performance and meat quality of Tan sheep[D]. Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[10]
罗玉龙, 剧柠, 常江, 等. α-硫辛酸对滩羊肌纤维类型和肉品质的影响及其调控机理[J]. 农业工程学报, 2022, 38(1):333-341.

LUO Y L, JU N, CHANG J, et al. Effects of α-lipoic acid on muscle fiber type composition and meat quality of Tan sheep and underlying regulatory mechanism[J]. Transactions of the Chinese Society of Agricultural Engineering, 2022, 38(1):333-341. (in Chinese)

[11]
李忠秋. 猪肌纤维类型与肉品质特性及影响猪肌纤维类型转化的研究进展[J]. 中国畜牧杂志, 2021, 57(10):40-45.

LI Z Q. Research progress on muscle fiber types and meat quality characteristics and effect of muscle fiber type transformation in pigs[J]. Chinese Journal of Animal Science, 2021, 57(10):40-45. (in Chinese)

[12]
RENERRE M. Factors involved in the discoloration of beef meat[J]. International Journal of Food Science&Technology, 1990, 25(6):613-630.

[13]
KIM G D, JEONG J Y, JUNG E Y, et al. The influence of fiber size distribution of type Ⅱb on carcass traits and meat quality in pigs[J]. Meat Science, 2013, 94(2):267-273.

DOI

[14]
LARZUL C, LEFAUCHEUR L, ECOLAN P, et al. Phenotypic and genetic parameters for longissimus muscle fiber characteristics in relation to growth,carcass,and meat quality traits in large white pigs[J]. Journal of Animal Science, 1997, 75(12):3126-3137.

DOI

[15]
SCHIAFFINO S. Muscle fiber type diversity revealed by anti-myosin heavy chain antibodies[J]. The FEBS Journal, 2018, 285(20):3688-3694.

DOI

[16]
史卓言, 刘小平, 冀祥, 等. 豫西黑猪不同屠宰体重肌纤维组织学及成肌调控基因发育性变化[J]. 中国畜牧兽医, 2022, 49(12):4582-4592.

SHI Z Y, LIU X P, JI X, et al. Developmental changes of muscle fiber histology and myogenic regulatory genes with different slaughter weights in Yuxi black pigs[J]. China Animal Husbandry&Veterinary Medicine, 2022, 49(12):4582-4592. (in Chinese)

[17]
SCHIAFFINO S, REGGIANI C. Molecular diversity of myofibrillar proteins:gene regulation and functional significance[J]. Physiological Reviews, 1996, 76(2):371-423.

DOI

[18]
CHANG K C, FEMANDES K. Developmental expression and 5’cloning of the porcine 2x and 2b myosin heavy chain genes[J]. DNA and Cell Biology, 1997, 16(12):1429-1437.

DOI

[19]
梁婷玉, 吴建平, 刘婷, 等. 肌纤维类型分类及转化机理研究进展[J]. 肉类研究, 2018, 32(9):55-61.

LIANG T Y, WU J P, LIU T, et al. Recent progress in classification and transformation mechanism of muscle fiber types[J]. Meat Research, 2018, 32(9):55-61. (in Chinese)

[20]
JOO S T, KIM G D, HWANG Y H, et al. Control of fresh meat quality through manipulation of muscle fiber characteristics[J]. Meat Science, 2013, 95(4):828-836.

DOI PMID

[21]
刘雪明, 阎璐, 霍蔚然, 等. 肌纤维类型对肉品质的影响[J]. 当代畜牧, 2021(7):34-37.

LIU X M, YAN L, HUO W R, et al. Effect of muscle fiber type on meat quality[J]. Contemporary Animal Husbandry, 2021(7):34-37. (in Chinese)

[22]
李秋艳, 朱俊红, 贺德勇, 等. 日粮能量水平对乌金猪肌纤维类型基因表达的影响[J]. 饲料工业, 2023, 44(8):63-69.

LI Q Y, ZHU J H, HE D Y, et al. Effects of dietary energy levels on gene expression of muscle fiber types in Wujin pigs[J]. Feed Industry, 2023, 44(8):63-69. (in Chinese)

[23]
DE VADDER F, KOVATCHEVA-DATCHARY P, ZITOUN C, et al. Microbiota-produced succinate improves glucose homeostasis via intestinal gluconeogenesis[J]. Cell Metabolism, 2016, 24(1):151-157.

DOI PMID

Outlines

/