RESEARCH PAPER

Alfalfa miR168b Regulates Proliferation, Apoptosis and Lipid Droplet Production in Bovine Mammary Epithelial Cells through Target Gene Carnitine Palmityl Transferase 1A

  • JIA Jingying , 1, 2 ,
  • LIU Baobao 1, 2 ,
  • CAI Xiaoyan , 1, 2, *
Expand
  • 1 School of Agricultural, Ningxia University, Yinchuan 750021, China
  • 2 Key Laboratory of Ruminant Molecular Cell Breeding, Ningxia Hui Autonomous Region, Yinchuan 750021, China
*professor, E-mail:

Received date: 2023-04-17

  Online published: 2023-10-12

Abstract

This experiment was aimed to investigate the effects of alfalfa-derived exogenous miRNAs (mtr-miRNAs) on the proliferation and apoptosis of bovine mammary epithelial cells (BMECs) in dairy cows. The assay examined the effect of mtr-miR168b on proliferation, apoptosis and cycle of BMECs by a combination of CCK8, EdU, flow cytometry, gene and protein quantification assays. Meanwhile, the viability and apoptosis of BMECs were examined after knocking down the expression level of mtr-miR168b target genecarnitine palmityl transferase 1A (CPT1A). Transfected cells were induced and the effects of mtr-miR168b and si-CPT1A on lipid droplet synthesis in BMECs were examined by Bodipy staining and Oil Red O staining. The results were as follows: 1) mtr-miR168b overexpression highly significantly reduced the viability of BMECs (P<0.01). 2) Overexpression of mtr-miR168b highly significantly inhibited the proliferation of BMECs (P<0.01), prolonged G1 to S phase progression, and highly significantly promoted apoptosis (P<0.01). 3) mtr-miR168b overexpression in BMECs inhibited the expression levels of cell proliferation gene cyclin dependent kinase 4 (CDK4), proliferating cell nuclear antigen (PCNA), Cyclin D1 and Cyclin D2, increased the expression level of apoptosis marker gene BCL2-associated X protein (BAX), suppressed PCNA protein expression level and increased BAX protein expression level, and mtr-miR168b inhibited protein kinase B (AKT) and mammalian target protein of rapamycin (mTOR) gene expression level (P<0.01). 4) mtr-miR168b inhibited the accumulation of lipid droplets in BMECs. 5) Interference with CPT1A, the target gene of mtr-miR168b, also had an inhibitory effect on the accumulation of lipid droplets in BMECs. In conclusion, mtr-miR168b can inhibit the production of lipid droplets in BMECs by suppressing the proliferation of BMECs, promoting apoptosis, and inhibiting the production of lipid droplets in BMECs by targeting the CPT1A gene. The results of the experiment can provide technical information at the molecular level for alfalfa-derived miRNAs to regulate milk fat synthesis.[Chinese Journal of Animal Nutrition, 2023, 35(10):6699-6712]

Cite this article

JIA Jingying , LIU Baobao , CAI Xiaoyan . Alfalfa miR168b Regulates Proliferation, Apoptosis and Lipid Droplet Production in Bovine Mammary Epithelial Cells through Target Gene Carnitine Palmityl Transferase 1A[J]. Chinese Journal of Animal Nutrition, 2023 , 35(10) : 6699 -6712 . DOI: 10.12418/CJAN2023.611

奶牛乳腺由汗腺衍生而来,属于外分泌腺。总体上乳腺分为实质和间质2部分,实质主要由乳腺上皮细胞构成,具有合成、分泌和泌乳功能[1]。乳腺上皮细胞实现泌乳功能过程受到miRNAs的调节。如miR-486高表达促进了奶牛细胞的活性及增殖能力,同时增加了乳糖、乳脂以及乳蛋白的含量;miR-148a高表达显著提高了水牛乳腺上皮细胞的活力,促进了细胞增殖[2-3]。因此,研究miRNAs对乳腺上皮细胞增殖和凋亡的调节和影响,对探究miRNAs影响乳腺上皮细胞生物泌乳具有重要作用和意义。
除了牛自身miRNAs以外,在牛血液中还检测到有外源性植物miR168等miRNAs的出现[4]。生物信息分析也发现,牛、小鼠和人类样本中有植物miRNAs,其中5条植物miRNAs在牛的样本中显著高表达,这些miRNAs主要来自水稻和苜蓿[5]。苜蓿源miR5754被发现有跨界调控功能,可以通过降低人体肺腺癌转移相关转录物1(MALAT1)的稳定性减少癌细胞增殖;苜蓿中的miR162被发现具有调控牛奶乳蛋白的作用[6-7]。由此可见,苜蓿源miRNAs(mtr-miRNAs)具备遗传调节因子和类营养物质的双重特性,能够跨界对人体癌细胞及奶牛乳品质产生调控作用。因此,探究mtr-miRNAs对奶牛乳腺上皮细胞(bovine mammary epithelial cells,BMECs)增殖和凋亡的影响,对明确苜蓿对牛奶产量与品质的分子调控机制有着重要意义。
2012年,张辰宇教授在犊牛血液中检测到了植物源miR168,并且靶向低密度脂蛋白受体衔接蛋白1(LDLRAP1)调节机体脂代谢[4]。本课题组前期研究结果表明,苜蓿源miR168b(mtr-miR168b)的确可以在奶牛体内检测到,并且通过靶向奶牛体内基因发挥调控作用。奶牛乳腺上皮细胞是奶牛乳汁生成和分泌的主要部位。那么mtr-miR168b是否能够对BMECs的增殖、凋亡与脂质生成产生调控作用?本研究基于对这一问题的思考特异性高表达了mtr-miR168b并敲低了其靶基因肉碱棕榈酰转移酶1A(CPT1A)在BMECs中的表达水平,检测mtr-miR168b高表达对BMECs增殖、凋亡和细胞内脂滴生成的影响,以期为后续研究mtr-miRNAs影响牛奶产量与乳品质提供分子层面的支撑。

1 材料与方法

1.1 试验材料

BMECs和HEK-293T细胞来自课题组前期保存。

1.2 试验方法

1.2.1 细胞培养与转染

将BMECs和HEK-293T在含有胎牛血清(10%)、100 μg/mL青霉素、100 μg/mL链霉素的基础DMEM/F12培养基中培养,在5% CO2、37 ℃的恒温加湿培养箱中进行培养。基础培养基中添加5 μg/mL的胰岛素、5 μg/mL的氢化可的松和20 ng/mL的催乳素即为诱导培养基,诱导每2 d更换1次培养基,每4 d收集细胞进行后续试验。细胞转染试剂为Lipo 3000,mtr-miR168b序列模拟物(mtr-miR168b mimics)、mtr-miR168b mimics阴性对照物(NC)、靶基因干扰和干扰片段阴性对照(si-NC)片段委托生物公司合成,通过转染实现在细胞水平高表达miRNAs或干扰靶基因表达,转染48 h后收集细胞进行后续试验。对于进行诱导试验的细胞处理组,转染48 h后更换为诱导培养基进行诱导,此时记为诱导0 d。

1.2.2 细胞活力检测

在细胞转染后6、12、24、36和48 h进行CCK8检测,检测前1 h在孔内加入10 μL的CCK8溶液。1 h后使用酶标仪检测每孔细胞在450 nm处的吸光度。细胞活力计算公式如下:

细胞活力(%)= [ A ( m i m i c ) - A ( ) ] [ A ( 0 ) - A ( ) ]×100。

式中:A(mimic)为具有细胞、CCK8溶液和mimic溶液培养孔的吸光度;A(空白)为具有培养基和CCK8溶液而没有细胞培养孔的吸光度;A(0)为具有细胞而无mimic溶液的培养孔的吸光度。

1.2.3 细胞增殖检测

细胞转染48 h后进行5-乙炔基-2’脱氧尿嘧啶核苷(EdU)试验。参照EdU说明书进行试验试剂配制。使用前将配制好的EdU工作液预热至37 ℃。EdU工作液与细胞培养液等体积加入6孔板,使EdU终浓度为10 μmol/L。孵育2 h后,加入固定液固定细胞15 min。细胞清洗干净后加入通透液,室温孵育15 min。清洗干净后,每孔加入500 μL Click反应液,室温避光孵育30 min。清洗干净后,加入1×Hoechst 33342 1 mL,室温孵育10 min。再次清洗细胞,清洗干净后使用荧光倒置显微镜拍摄荧光图片。

1.2.4 细胞周期与凋亡检测

细胞转染48 h后,分别使用凋亡检测试剂盒和细胞周期和凋亡分析试剂盒,通过流式细胞仪检测细胞凋亡和细胞周期阶段。为了检测细胞凋亡,用胰蛋白酶消化细胞。终止消化后将细胞收集在1.5 mL离心管中,1 000×g离心5 min,去除上清液,并将细胞重新悬浮在1 mL磷酸盐缓冲液(PBS)中。接下来,将细胞在50 ℃的水浴中孵化适当时间刺激细胞凋亡。离心收集细胞,弃去上清液,在细胞颗粒中加入195 μL V-FITC结合液、5 μL V-FITC和10 μL碘化丙啶(PI)。在室温下黑暗中孵化20 min后,用流式细胞仪分析细胞。
为了确定细胞周期阶段,在细胞悬浮后,再次离心,丢弃PBS。加入70%乙醇,吹打混合,在4 ℃下固定24 h。固定后的细胞再次离心,吸干乙醇后弃去,加入PBS重悬并清洗细胞,然后弃去。每管细胞加入500 μL LPI染色液后,用流式细胞仪检测细胞周期。

1.2.5 实时荧光定量PCR(RT-qPCR)检测

提取转染48 h后细胞的总RNA,通过RT-qPCR对mtr-miR168b的表达水平进行检测,使用U6作为内参。同时对细胞增殖、细胞周期和细胞凋亡有关的基因表达水平进行定量检测。收集转染了si-NC和si-CPT1A的细胞进行定量,检测CPT1A表达水平敲低后对下游基因和脂质代谢标志基因表达水平的影响,使用甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因。RT-qPCR反应使用实时荧光定量PCR仪(CFX 96 Touch,Bio-Rad,美国)和TaKaRa定量试剂盒。反应体系为预混液TB Green Premix Ex Taq Ⅱ(Tli RNaseH Plus)10 μL,上、下游引物各0.4 μL,DNA样品(100 ng/μL)2 μL,加入ddH2O将反应体系补至20 μL。反应程序如下:95 ℃,3 min;95 ℃,5 s;60 ℃,30 s;39个循环,95 ℃,10 s。引物信息见表1
表1 引物信息

Table 1 Primer information

基因 Genes 引物序列 Primer sequences (5'—3')
U6 F:GCTTCGGCAGCACATATACTAAAAT
R:CGCTTCACGAATTTGCGTGTCAT
苜蓿miR168b
mtr-miR168b
F:CATGTGTCGCTTGGTGCAG
R:AGTGCAGGGTCCGAGGTATT
RT:GTCGTATCCAGTGCAGGGTCCGAGGTATTCGCACTGGATACGACTTCCCGAC
甘油醛-3-磷酸脱氢酶
GAPDH
F:GGCATCGTGGAGGGACTTATG
R:GCCAGTGAGCTTCCCGTTGAG
细胞增殖基因周期蛋白依赖性激酶4
CDK4
F:GTGACAAGTGGTGGGACAGT
R:GATACAGCCAACGCTCCACA
细胞周期蛋白D1
Cyclin D1
F:CATGAACTACCTGGACCGCT
R:TCTTGGAGAGGAAGTGCTCG
细胞周期蛋白D2
Cyclin D2
F:CACCGATGTGGATTGCCTCA
R:TCCAGCTCATCCTCCGACTT
增殖细胞核抗原
PCNA
F:GAACCTCACCAGCATGTCCA
R:ACGTGTCCGCGTTATCTTCA
Bcl2关联X蛋白
BAX
F: GAGATGAATTGGACAGTAACA
R: TTGAAGTTGCCGTCAGAA
肉碱棕榈酰转移酶2
CPT2
F:CCTTCCTTCCTGTCTTGGTATG
R:TTCAGAGGCACTCACAATGTTC
酰基辅酶A脱氢酶中链
ACADM
F:CCAAAGACAGAAAAGAAG
R:TATACAACAGACCAAAGG
极长链酰基辅酶 A脱氢酶 ACADVL F:TACCCTCAACGGAAGCAA
R:TGTTGGCACTCACCATGTAC
酰基辅酶A脱氢酶长链
ACADL
F:AGGGAAATGTATTGGTGC
R:CTGGCTGAAACTGCTATCT
过氧化物酶体增殖物活化受体γ
PPARγ
F:AAAGGAGAGCCTGAACTTGGAG
R:TCTGAACTGTGCTGTGGCAA
硬脂酰辅酶A去饱和酶1
SCD1
F:ACATTGATCCCCACCTGCAA
R:AAACGTCATTCTGGAACGGC
转录因子CCAAT增强子结合蛋白/β
CEBP/β
F:TGGTGAATAGTGCTGCCCAT
R:GGTGGTAGTTGTGGAAGCCC
固醇调控元件结合蛋白1 SREBP1 F:CAATGTGTGAGAAGGCCAGT
R:ACAAGGAGCAGGTCACACAG
脂肪酸转位酶36 CD36 F:TCCTGGACCCTGAACACT
R:ATAATGCCTTGCTGATGC
脂蛋白脂肪酶 LPL F:ACGATTATTGCTCAGCATGG
R:ACTTTGTACAGGCACAACCG
肉碱棕榈酰转移酶1A
CPT1A
F:TTGCGGCCGCCTTAAGGGACAAGCGATT
R:CCTCGAGCAGTCTGATGGAAGGGAA
蛋白激酶B
AKT
F:TCACCATTACGCCACCTGAC
R:TCCTCTCCATCCTGTGTTGG
哺乳动物雷帕霉素靶蛋白
mTOR
F:TGGACACCAACAAGGACGAC
R:TCCCACTGACCTAAACCCCA

1.2.6 蛋白质免疫印迹(Western blot)

收集转染48 h后的BMECs,用BCA蛋白测定试剂盒测定蛋白浓度。每孔加入100 μg蛋白提取物,通过10%十二烷基磺酸钠(SDS)聚丙烯酰胺凝胶电泳分离,并转移到聚偏二氟乙烯(PVDF)膜上。在室温下用阻断液阻断15 min,将膜与抗体进行孵化。使用GAPDH(AB0036, 1∶3 000, Abways)、增殖细胞核抗原(PCNA)(D220014, 1∶500, Sangon Biotech)、BAX(CY5059, 1∶500, Abways)的一级抗体,二级抗体为山羊抗兔免疫球蛋白G(IgG)(ZB-2301,1∶20 000,ZSGB-生物)。化学发光ECL Western blot系统(Tanon-5200)用于信号检测,使用ImageJ软件测量蛋白表达水平。

1.2.7 氟硼二吡咯(Bodipy)染色

使用二甲基亚砜(DMSO)配制Bodipy工作液,被转染的BMECs分别诱导至第0、4和8天时进行Bodipy染色。染色前使用4%的多聚甲醛固定细胞40 min。清洗干净后加入Bodipy工作液,室温避光染色30 min。再次清洗,加入4,6-二脒基-2-苯基吲哚(DAPI)染色液对细胞核进行染色。清洗干净后,使用荧光倒置显微镜拍摄荧光图片。

1.2.8 双荧光素酶报告靶基因

PCR扩增CPT1A的序列,使用Primer Premier 5软件设计包含mtr-miR168b种子区在内的靶基因3' UTR区引物(表1),并在引物5'端上分别添加Xho Ⅰ和Not Ⅰ的酶切位点和相应的保护碱基。目的片段经双酶切和纯化回收后,与Psicheck-2载体连接,构建CPT1A与Psicheck-2野生型(WT-CPT1A)载体。基因突变型载体(MUT-CPT1A)委托生物公司合成,酶切位点与载体同上。将mtr-miR168b mimics和mtr-miR168b NC分别与构建好的野生型和突变型载体共转染至HEK-293T细胞,转染试剂为Lipo 3 000。转染48 h后,按照双荧光素酶试剂盒说明书步骤收集细胞,对细胞的荧光素酶活性进行检测。

1.2.9 油红O染色

干扰CPT1A的细胞脂质由油红O进行染色,根据试剂公司要求进行试验操作。将诱导0、4与8 d的细胞用PBS洗涤,加入4%多聚甲醛固定15 min。PBS洗涤后加入油红O染色液对细胞中的脂质进行染色,弃去染色液,PBS清洗至无多余染色液后加入Mayer苏木素染色液对细胞核进行染色。弃去Mayer苏木素染色液后在显微镜下观察细胞脂质含量。

1.3 数据统计与分析

RT-qPCR结果用2-ΔΔCt进行处理,每组数据至少设置3个生物学重复和3个技术学重复。使用GraphPad Prism 7软件的t检验对RT-qPCR结果和双荧光结果进行差异显著性分析,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 mtr-miR168b表达水平检测

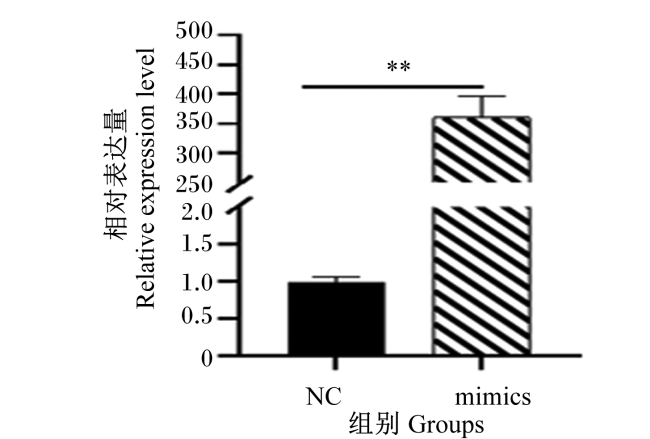
RT-qPCR检测转染mtr-miR168b mimics和NC 48 h后mtr-miR168b的表达水平。结果表明,mimics组mtr-miR168b的表达水平极显著高于NC组(P<0.01;图1)。结果证明了转染试验特异性高表达了BMECs中mtr-miR168b,为后续检测mtr-miR168b高表达对细胞增殖、凋亡和脂质代谢提供了研究基础。
图1 mtr-miR168b表达水平检测

*表示差异显著(P<0.05); **表示差异极显著(P<0.01);ns表示差异不显著(P>0.05)。下图同。

Fig.1 Detection of mtr-miR168b expression level

* mean significant difference (P<0.05), ** mean extremely significant difference (P<0.01);ns mean no significant difference(P>0.05). The same as below.

2.2 mtr-miR168b高表达抑制BMECs活力

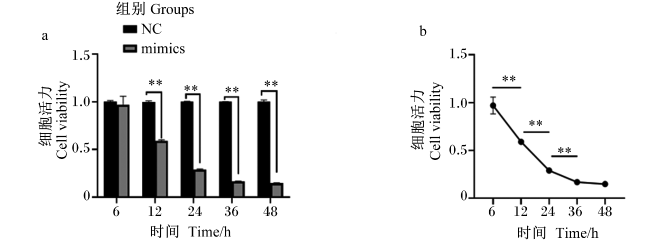
CCK8法测定mtr-miR168b高表达对BMECs活力的影响。结果表明,与NC组相比,转染mtr-miR168b mimics组的细胞活力极显著降低(P<0.01),并且随着时间的推移,细胞活力也极显著下降(P<0.01),但36 h后细胞活力不会再有显著降低趋势(P>0.05;图2)。
图2 mtr-miR168b高表达降低BMECs活力

a: 与NC组相比,mimics组细胞活力降低; b: mimics组随着时间推移细胞活力下降。

Fig.2 Overexpression of mtr-miR168b decreases vitality of BMECs

a: compared with NC group, the vitality of mimics group decreased; b: the cell vitality of mimics group decreased with time.

2.3 mtr-miR168b高表达抑制BMECs增殖

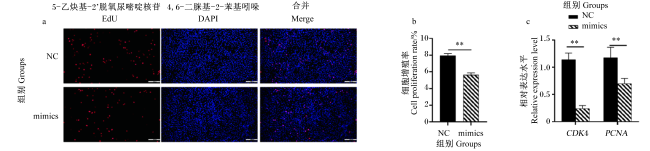
通过EdU荧光染色检测mtr-miR168b高表达后对BMECs增殖的影响。红色荧光显示的是加入染色液孵育2 h内新增长细胞的细胞质染色,蓝色荧光为全部细胞的细胞核染色(图3-a)。试验结果表明,mtr-miR168b高表达极显著抑制了细胞增殖(P<0.01;图3-b)。RT-qPCR结果表明,mtr-miR168b mimics组细胞增殖标志基因CDK4和PCNA的表达水平极显著降低(P<0.01; 图3-c)。
图3 mtr-miR168b高表达抑制BMECs增殖

CDK4:细胞增殖基因周期蛋白依赖性激酶4 cell proliferation gene cyclin dependent kinase 4;PCNA:增殖细胞核抗原 proliferating cell nuclear antigen。

a:EdU染色结果;b:细胞增殖率;c:增殖标志基因表达水平检测。a: EdU staining results; b: cell proliferation rate; c: proliferation marker gene expression level detection.

Fig.3 Overexpression of mtr-miR168b inhibits proliferation of BMECs

2.4 mtr-miR168b高表达对细胞周期的影响

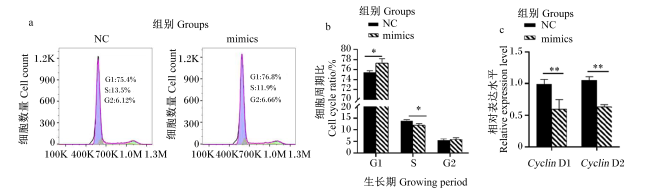
流式细胞仪检测mtr-miR168b高表达后BMECs的细胞周期。结果显示,转染mtr-miR168b后乳腺上皮细胞S期数量减少,G1期数量增加,说明G1~S期进程被延长,细胞增殖受到抑制。细胞周期标志基因Cyclin D1和Cyclin D2表达水平也极显著降低(P<0.01;图4)。
图4 mtr-miR168b高表达对BMECs细胞周期的影响

Cyclin D1:细胞周期蛋白D1;Cyclin D2:细胞周期蛋白D2。

a: 不同处理细胞周期进程;b: 不同处理细胞周期进程柱状图;c: 周期标志基因表达水平检测。

Fig.4 Effects of overexpression of mtr-miR168b on BMECs cell cycle

a: cell cycle progression of different treatments; b: histogram of cell cycle progression of different treatments; c: cycle marker gene expression level detection.

2.5 mtr-miR168b高表达促进细胞凋亡

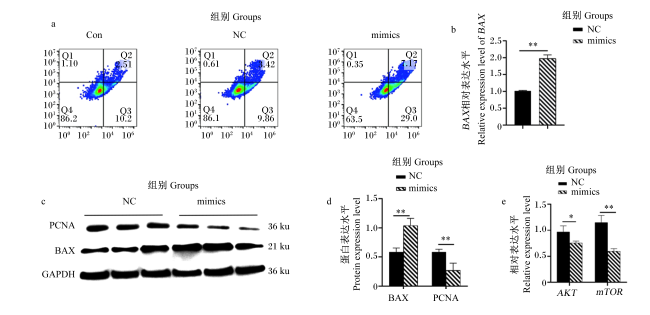
细胞凋亡结果(图5)显示,与NC组相比,mtr-miR168b高表达极显著促进了BMECs的凋亡(P<0.01);同时细胞凋亡标志基因BAX表达水平极显著增高(P<0.01)。对PCNA和BAX的蛋白的表达水平进行检测,Western blot蛋白条带显示,与NC组相比,mimics组PCNA蛋白表达水平极显著降低(P<0.01),BAX蛋白表达水平极显著增加(P<0.01),这与定量结果一致。
图5 mtr-miR168b高表达对BMECs细胞凋亡影响

BAX:Bcl2关联X蛋白;Bcl2-associated X protein;PCNA:增殖细胞核抗原 proliferating cell nuclear antigen;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase;AKT:蛋白激酶B protein kinase B;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin。

a: 细胞凋亡检测结果;b: 相关基因表达水平检测;c和d分别是PCNA和BAX蛋白表达水平检测以及蛋白灰度分析;e: 信号通路基因检检测。

Fig.5 Effects of overexpression of mtr-miR168b on apoptosis of BMECs cells

a: apoptosis detection results;b: detection of related gene expression level;c and d are PCNA and BAX protein expression level detection and protein gray analysis;e: genetic detection of signal pathway.

同时,对AKTmTOR基因进行检测,结果发现基因表达水平均有显著或极显著降低(P<0.05或 P<0.01),推测mtr-miR168b通过AKT-mTOR信号通路调控奶牛乳腺上皮细胞的增殖和凋亡(图5)。

2.6 mtr-miR168b高表达降低BMECs脂滴含量

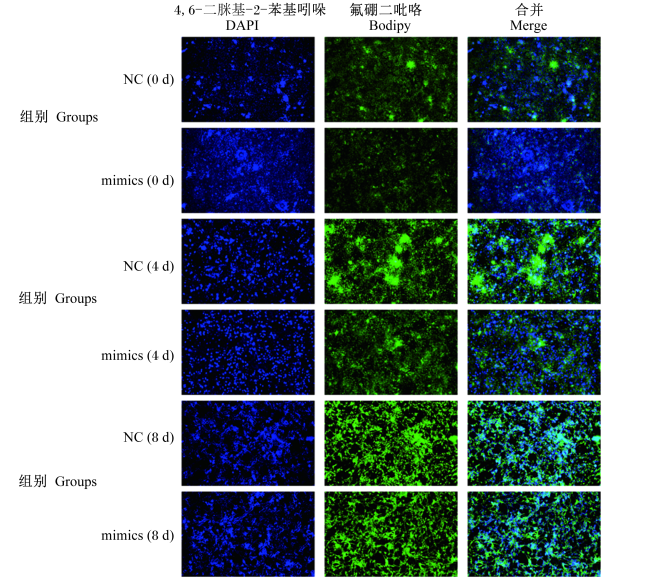
对诱导0、4和8 d的奶牛乳腺上皮细胞进行Bodipy染色。结果表明,转染mtr-miR168b mimics的细胞荧光强度均低于NC组,mtr-miR168b能够减少Bodipy着色细胞数,降低脂滴含量(图6)。
图6 mtr-miR168b高表达后Bodipy染色

Fig.6 Bodipy staining after overexpression of mtr-miR168b

2.7 mtr-miR168b靶基因验证

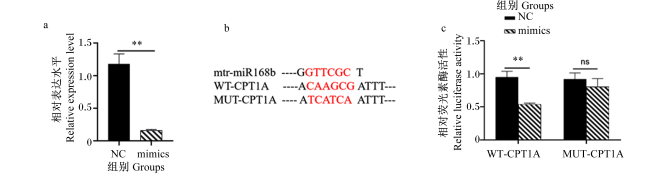
为了明确mtr-miR168b对BMECs的调控机制,通过RT-qPCR和双荧光素酶报告验证了mtr-miR168b与CPT1A基因的靶向关系。试验首先检测了mtr-miR168b高表达后细胞中CPT1A基因的表达水平。结果表明,mimics组CPT1A基因表达水平较NC组极显著降低(图7-a;P<0.01)。构建CPT1A基因野生型和突变型载体进行双荧光素酶报告靶基因(图7-b)。结果显示:WT-CPT1A+mtr-miR168b mimics组较WT-CPT1A+mtr-miR168b NC组荧光素酶活性极显著下降(P<0.01);MUT-CPT1A+mtr-miR168b mimics组与MUT-CPT1A+mtr-miR168b NC组荧光素酶活性差异不显著(图7-c;P>0.05),这证明mtr-miR168b与CPT1A基因具有靶向关系。
图7 mtr-miR168b靶基因验证

a: RT-qPCR检测CPT1A基因表达水平;b: mtr-miR168b与构建的靶基因载体序列比对;c:相对荧光素酶活性检测靶基因。

Fig.7 Validation of mtr-miR168b target gene

a: detection of CPT1A gene expression level by RT-qPCR; b: mtr-miR168b sequence comparison with the constructed target gene vector; c: relative luciferase activity assay target genes.

2.8 mtr-miR168b靶基因CPT1A干扰片段的筛选

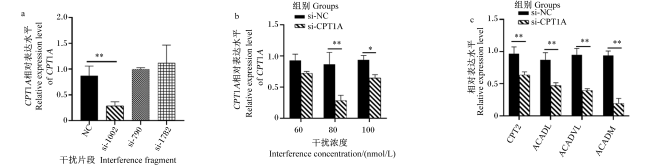
为了揭示CPT1A对BMECs脂质代谢的作用,用特异性siRNA对CPT1A进行沉默。委托公司合成3条CPT1A基因的干扰片段,转染48 h后收集细胞检测CPT1A表达水平,发现干扰1 002位点,80 nmol/L浓度下干扰效率最高(图8-a图8-b)。后续试验均按上述条件对CPT1A基因进行干扰。si-CPT1A转染后,同时对CPT1A下游基因的表达水平进行检测,发现CPT1A下游基因的表达均受到极显著抑制(P<0.01;图8-c)。
图8 CPT1A最佳干扰效率检测

CPT2:肉碱棕榈酰转移酶2 carnitine palmitoyl transferase 2;ACADL:酰基辅酶A脱氢酶长链acyl-CoA dehydrogenase long chain;ACADVL:极长链酰基辅酶 A脱氢酶 very long chain acyl-CoA dehydrogenase;ACADM:酰基辅酶A脱氢酶中链 acyl-CoA dehydrogenase middle chain。

a:CPT1A最佳干扰片段;b:最佳干扰浓度筛选;c:CPT1A下游基因表达水平检测。a: CPT1A optimal interference fragment; b: optimal interference concentration screening; c: CPT1A downstream gene expression level assay.

Fig.8 CPT1A optimal interference efficiency assay

2.9 CPT1A敲低对BMECs活力和凋亡的影响

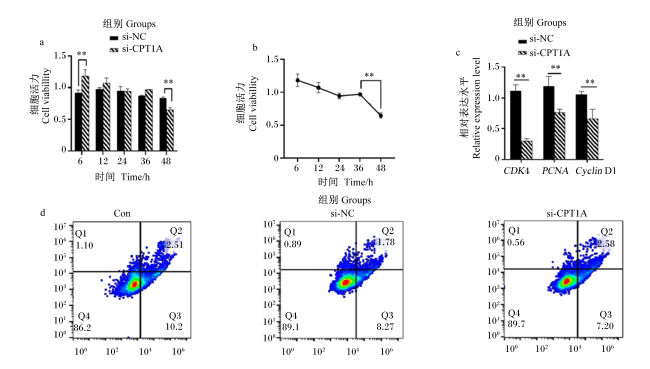
CCK8法测定CPT1A敲低对BMECs活力的影响。结果表明,与si-NC组相比,转染si-CPT1A组的细胞活力极显著降低(P<0.01),并且随着时间的推移细胞活力也极显著下降(P<0.01;图9-a、图-b)。同时,对增殖标志基因CDK4、PCNACyclin D1进行定量,定量结果显示上述基因表达水平在si-CPT1A组极显著降低(P<0.01;图9-c),这与CCK8结果一致。细胞凋亡结果显示,si-CPT1A组晚期凋亡细胞数量增加(图9-d)。上述结果趋势与mtr-miR168b高表达结果趋势一致。
图9 si-CPT1A对BMECs活力和凋亡的影响

CDK4:细胞增殖基因周期蛋白依赖性激酶4 cell proliferation gene cyclin dependent kinase 4;PCNA:增殖细胞核抗原 proliferating cell nuclear antigen;Cyclin D1:细胞周期蛋白D1。

a: si-CPT1A降低细胞活力; b: si-CPT1A组随着时间推移细胞活力变化情况; c: 细胞增殖标志基因表达水平; d: si-CPT1A对细胞凋亡的影响。

Fig.9 Effects of si-CPT1A on BMECs viability and apoptosis.

a: reduction of cell viability by si-CPT1A; b: change in cell viability over time in the si-CPT1A group; c: expression levels of cell proliferation marker genes; d: effects of si-CPT1A on apoptosis.

2.10 CPT1A敲低对BMECs脂质代谢基因和脂滴积累的影响

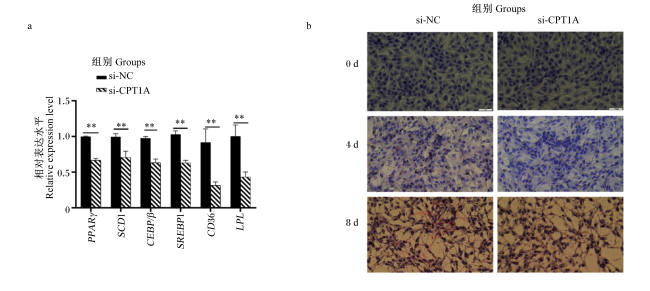
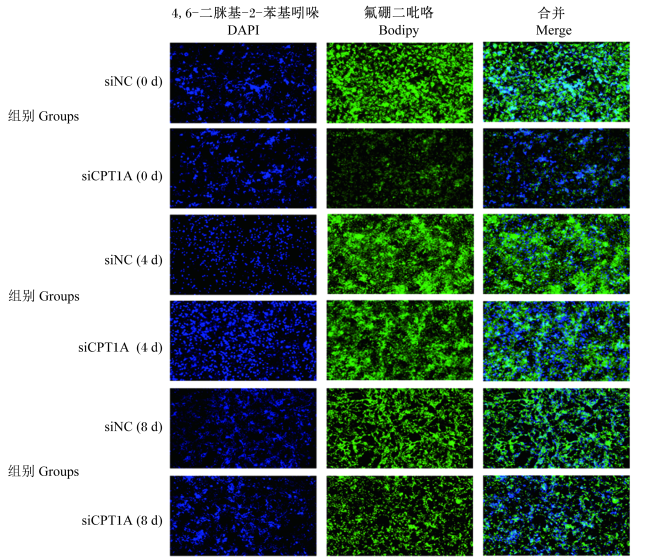
CPT1A沉默后,CD36、PPARγSCD1、CEBP/βSREBP1和LPL等基因在BMECs中的表达水平均极显著下调(P<0.01),证明CPT1A沉默后抑制了BMECs中脂质代谢过程(图10-a)。此外,油红O结果显示,si-CPT1A减少了BMECs中脂滴的生成(图10-b),Bodipy结果表明,转染si-CPT1A组的细胞荧光强度均低于si-NC组,证明si-CPT1A降低脂滴含量(图11)。上述结果表明,mtr-miR168b的靶基因CPT1A表达水平降低,可以抑制BMECs中脂肪的生成,与高表达mtr-miR168结果一致。
图10 si-CPT1A抑制BMECs成脂标志基因表达水平(a)和脂滴积累(b)

PPARγ:过氧化物酶体增殖物活化受体γ peroxisome proliferator activated receptor gamma;SCD1:硬脂酰辅酶A去饱和酶1 stearoyl CoA desaturase 1;CEBP/β:转录因子CCAAT增强子结合蛋白β transcription factor CCAAT enhancer binding protein β;SREBP1:固醇调控元件结合蛋白1 sterol regulatory element binding protein1; CD36:脂肪酸转位酶36 fatty acid translocator 36;LPL:脂蛋白脂肪酶 lipoprotein lipase。

Fig.10 si-CPT1A inhibits expression level of BMECs lipogenic marker genes (a) and lipid droplet accumulation (b)

图11 si-CPT1A后Bodipy染色

Fig.11 Bodipy staining after si-CPT1A

3 讨论

3.1 mtr-miR168b过表达调节BMECs增殖和凋亡

乳腺(乳房)能够分泌乳汁滋养新生儿,是将哺乳动物与其他动物区分开的重要器官。哺乳动物的乳腺会随着动物胚胎期、青春期和生殖期分阶段发育,同时,乳腺也是动物成年后唯一一个还能够进行分化的器官[8]
研究人员通过深入研究确定了部分miRNAs调控细胞增殖和凋亡的信号通路,明确了其调控机制。如miR-24-3p通过靶向多发性内分泌腺瘤致病因子1(MEN1)基因调节奶牛乳腺上皮细胞的增殖,并对乳蛋白含量产生影响;miR-103通过靶向磷脂酰肌醇3-激酶(PIK3R1)调节PI3K-AKT信号通路,进而增加了细胞增殖,促进了BMECs脂肪酸的合成;miR-21被上游基因信号转导和转录激活因子3(STAT3)调控,同时靶向胰岛素样生长因子结合蛋白5(IGFBP5),通过该调控网络促进奶牛乳腺上皮细胞的活力和增殖[9-11]。上述研究均为miRNAs促进细胞增殖,对奶牛泌乳具有正向影响,但同时,也有研究发现miRNAs抑制奶牛乳腺上皮细胞增殖。如miR-139高表达抑制了乳腺上皮细胞的增殖,降低了β酪蛋白的蛋白含量;miR-221和miR-15a抑制细胞增殖和活力,降低泌乳量[12-13]。这些miRNAs与本试验研究的mtr-miR168b具有相似的调控结果,即通过调控相关信号通路抑制奶牛乳腺上皮细胞的活力和增殖,促进细胞的凋亡。故根据先前研究进展,推测mtr-miR168b对奶牛乳腺上皮细胞的泌乳功能和乳品质可能也具有负向影响。这与张辰宇教授研究发现的植物miR168靶向低密度脂蛋白受体衔接蛋白1(LDLRAP1)抑制机体脂质代谢的作用相似[4]。不过苜蓿作为优质牧草,含有多种miRNAs,其他miRNAs可能对乳脂具有正向调控作用。并且miRNAs具有多靶向的调节特点,同一miRNAs靶向结合不同的基因对机体的调节作用并不一致,本试验研究结果只能表明mtr-miR168b对BMECs的调节作用,并不能代表苜蓿整体对奶牛的影响。

3.2 mtr-miR168b过表达调节BMECs增殖和凋亡的信号通路

AKT-mTOR信号通路是一个较为典型的调节细胞增殖和凋亡的通路,被完全激活的AKT-mTOR信号通路可以调节细胞的凋亡[14]。AKT-mTOR信号通路表达水平降低,会抑制细胞增殖,有助于细胞周期停滞;而激活AKT-mTOR信号通路则会促进细胞增殖[15-17]。前期课题组生物信息学分析预测结果表明,mtr-miR168b的靶基因显著富集在mTOR信号通路,并且mtr-miR168b跨界靶向的CPT1A基因处于AKT-mTOR信号通路,对其具有调节作用[18]。为了明确mtr-miR168b对细胞增殖和凋亡调节作用的信号通路,试验检测了mtr-miR168b高表达对AKTmTOR基因的调节作用,结果发现,mtr-miR168b高表达抑制了AKTmTOR的基因表达水平。此外,前期研究结果还表明,mtr-miR168b通过靶向相关靶基因参与AMP依赖的蛋白激酶(AMPK)信号通路的调节作用。细胞内ATP消耗和AMP水平增加会导致能量应激,同时激活AMPK,而长期能量应激最终会诱发细胞凋亡[19-21]。这也与本试验研究结果一致,即mtr-miR168b高表达激活了AMPK,导致能量应激,最终造成凋亡细胞数量增多。结合前期结论与本研究结果我们推测出了mtr-miR168b可能同时调控AKT-mTOR信号通路和AMPK信号通路影响细胞增殖与凋亡。
Cyclin D1和Cyclin D2表达水平降低表明细胞凋亡能力增强,细胞增殖能力减弱;PCNACDK4基因表达水平降低可抑制癌细胞增殖;BAX是凋亡标志基因,基因与蛋白表达水平升高证明细胞凋亡水平升高[22-26]。对上述增殖与凋亡标志基因和蛋白的水平检测结果提示mtr-miR168b过表达,可以抑制细胞增殖、促进细胞凋亡,这与信号通路调控结果一致。

3.3 mtr-miR168b过表达调节BMECs脂滴生成

为了探究miRNAs对BMECs脂滴生成的影响,对细胞进行了成脂诱导。随着诱导时间延长,细胞凋亡数量增多,脂滴增多,导致细胞数量减少并且黏连情况严重,Bodipy染色结果随着诱导时间的推移细胞形态不明显。但荧光图仍能看出mtr-miR168b高表达后BMECs中绿色荧光强度低于对照组,这表明mtr-miR168b高表达抑制BMECs中脂滴的生成,这会导致牛奶乳脂含量降低,与前期推论mtr-miR168b对BMECs的泌乳功能和乳品质具有负向影响一致。

3.4 mtr-miR168b靶向CPT1A调节BMECs脂滴生成

为了进一步了解mtr-miR168b的作用机制,试验通过双荧光报告验证了mtr-miR168b的靶基因CPT1A。为了明确mtr-miR168b对脂滴生成的抑制作用是否通过靶基因CPT1A发挥作用,试验模拟了mtr-miR168b高表达,CPT1A表达水平降低的情况下BMECs脂质生成的情况。敲低CPT1A表达后,定量检测发现CPT1A通路的下游基因和脂质代谢相关基因表达水平均显著降低。CPT1A的下游基因长链酰基辅酶A脱氢酶(ACADL)、超长链酰基辅酶A脱氢酶(ACADVL)和中链酰基辅酶A脱氢酶(ACADM)基因均为酰基辅酶A脱氢酶,是参与脂肪酸代谢的重要辅酶家族。ACADL是催化脂肪酸氧化中第1步的催化酶,在长链脂肪酸β氧化中起着重要作用,其不足或缺失会造成线粒体功能紊乱进而影响脂质代谢[27]ACADVLACADM基因都能够参与脂质代谢相关生物过程,影响脂肪酸和甘油的合成与分解,在脂质代谢中发挥着至关重要的作用[28-30]。基因定量、油红O染色与Bodipy染色结果均表明CPT1A低表达影响了BMECs脂代谢,抑制细胞脂质的生成,这与mtr-miR168b高表达抑制脂肪酸生成的结果一致,同时证实了研究的假设,即mtr-miR168b通过靶向CPT1A调节BMECs脂质生成。

4 结论

① 高表达mtr-miR168b显著抑制了BMECs的细胞活力,抑制了细胞的增殖,延长了细胞S~G1期,促进了细胞的凋亡,降低了AKTmTOR基因的表达水平。
② 高表达mtr-miR168b降低了BMECs中脂滴的积累。
③ 敲低mtr-miR168b的靶基因CPT1A后,BMECs活力被抑制,促进了细胞晚期凋亡,下调CPT1A下游基因表达。
④ 敲低mtr-miR168b的靶基因CPT1A后,降低了脂质代谢标志基因PPARγSCD1、CEBP/βSREBP1、CD36和LPL的表达水平,抑制了BMECs脂滴积累。
[1]
李真. 奶山羊乳腺发育过程中激素及其受体表达规律的研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2009.

LI Z. Law and role of hormones and their receptors in development of dairy goat mammary gland[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2009. (in Chinese)

[2]
鲍正攀. 调控miR-148a基因表达及5-Aza-dc处理对水牛乳腺上皮细胞增殖及泌乳相关基因表达的影响[D]. 硕士学位论文. 南宁: 广西大学, 2018.

BAO Z P. Effect of regulation of miR-148a gene expression and 5-Aza-dc on the proliferation of buffalo mammary epithelial cells and their expression of genes related to laction[D]. Master’s Thesis. Nanning: Guangxi University, 2018. (in Chinese)

[3]
李丹. miR-486对奶牛乳腺发育和泌乳功能基因Pten的表达调控[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2014.

LI D. Regulation of miR-486 to gene Pten expression in bovine mammary gland development and lactation[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2014. (in Chinese)

[4]
ZHANG L, HOU D X, CHEN X, et al. Exogenous plant MIR168a specifically targets mammalian LDLRAP1:evidence of cross-kingdom regulation by microRNA[J]. Cell Research, 2012, 22(1):107-126.

DOI

[5]
刘璐. 跨界植物microRNA鉴定方法及调控研究[D]. 硕士学位论文. 杭州: 浙江大学, 2021.

LIU L. Studies on identification and regulation of cross-kingdom plant microRNAs[D]. Master’s Thesis. Hangzhou: Zhejiang University, 2021. (in Chinese)

[6]
MARZANO F, CARATOZZOLO M F, CONSIGLIO A, et al. Plant miRNAs reduce cancer cell proliferation by targeting MALAT1 and NEAT1:a beneficial cross-kingdom interaction[J]. Frontiers in Genetics, 2020, 11:552490.

DOI

[7]
孟桂智. mtr-miR-162靶向GNG11对奶牛乳腺上皮细胞增殖和乳蛋白合成相关基因的调控作用[D]. 硕士学位论文. 银川: 宁夏大学, 2022.

MENG G Z. Regulation of mtr-miR-162 targeting GNG11 on the proliferation of bovine mammary epithelial cells and the genes related to milk protein synthesis[D]. Master’s Thesis. Yinchuan: NingXia University, 2022. (in Chinese)

[8]
MACIAS H, HINCK L. Mammary gland development[J]. Wiley Interdisciplinary Reviews:Developmental Biology, 2012, 1(4):533-557.

DOI

[9]
QIAOQIAO C, LI H H, LIU X, et al. MiR-24-3p regulates cell proliferation and milk protein synthesis of mammary epithelial cells through menin in dairy cows[J]. Journal of Cellular Physiology, 2019, 234(2):1522-1533.

DOI PMID

[10]
LIU L H, SUN B, ZHANG F, et al. lncRNA MPFAST promotes proliferation and fatty acid synthesis of bovine mammary epithelial cell by sponging miR-103 regulating PI3K-AKT pathway[J]. Journal of Agricultural and Food Chemistry, 2022, 70(38):12004-12013.

DOI PMID

[11]
ZHANG X L, CHENG Z X, WANG L X, et al. MiR-21-3p centric regulatory network in dairy cow mammary epithelial cell proliferation[J]. Journal of Agricultural and Food Chemistry, 2019, 67(40):11137-11147.

DOI PMID

[12]
JIAO B L, ZHANG X L, WANG S H, et al. MicroRNA-221 regulates proliferation of bovine mammary gland epithelial cells by targeting the STAT5a and IRS1 genes[J]. Journal of Dairy Science, 2019, 102(1):426-435.

DOI

[13]
LI H M, WANG C M, LI Q Z, et al. MiR-15a decreases bovine mammary epithelial cell viability and lactation and regulates growth hormone receptor expression[J]. Molecules, 2012, 17(10):12037-12048.

DOI

[14]
LIU G Y, SABATINI D M. mTOR at the nexus of nutrition,growth,ageing and disease[J]. Nature Reviews Molecular Cell Biology, 2020, 21(4):183-203.

DOI

[15]
WANG J Q, LAN L J, MA B L, et al. KRT17 accelerates cell proliferative and invasive potential of laryngeal squamous cell carcinoma (LSCC) through regulating AKT/mTOR and Wnt/β-catenin pathways[J]. Evidence-Based Complementary and Alternative Medicine, 2022, 2022:6176043.

[16]
LIU Y W, HU L T, LIU Q Q, et al. miR-3651 participates in the growth cycle of hepatocellular carcinoma cells and promotes the malignant metastasis via the PI3K/AKT/mTOR signalling pathway[J]. Journal of Oncology, 2022, 2022:5744999.

[17]
郑诚, 东方阳, 程蕾, 等. miR-29家族通过AKT/mTOR信号通路抑制结肠癌MC38细胞的增殖、迁移和侵袭[J]. 中国细胞生物学学报, 2022, 44(5):798-806.

ZHENG C, DONG FANG Y, CHENG L, et al. miR-29 family inhibits the proliferation,migration and invasion of colon cancer MC38 cells through the AKT/mTOR signaling pathway[J]. Chinese Journal of Cell Biology, 2022, 44(5):798-806. (in Chinese)

[18]
JIA J Y, DUAN H J, LIU B B, et al. Alfalfa Xeno-miR168b target CPT1A to regulate milk fat synthesis in bovine mammary epithelial cells[J]. Metabolites, 2023, 13(1): 76.

DOI

[19]
GREEN D R, GALLUZZI L, KROEMER G. Cell biology.Metabolic control of cell death[J]. Science, 2014, 345(6203):1250256.

DOI

[20]
EL MJIYAD N, CARO-MALDONADO A, RAMÍREZ-PEINADO S, et al. Sugar-free approaches to cancer cell killing[J]. Oncogene, 2011, 30(3):253-264.

DOI PMID

[21]
LIN A, YAO J, ZHUANG L, et al. The FoxO-BNIP3 axis exerts a unique regulation of mTORC1 and cell survival under energy stress[J]. Oncogene, 2014, 33(24):3183-3194.

DOI PMID

[22]
王弘, 张坤, 李爽, 等. 沉默Y盒结合蛋白-1表达抑制SH-SY5Y细胞增殖促其凋亡的作用与机制[J]. 现代肿瘤医学, 2018, 26(1):13-17.

WANG H, ZHANG K, LI S, et al. Silencing of Y-box binding protein-1 suppresses neuroblastoma SH-SY5Y cell prolif-erate and promotes apoptosis[J]. Journal of Modern Oncology, 2018, 26(1):13-17. (in Chinese)

[23]
沈玉莉, 王素妍, 赖玉林, 等. PCNA基因沉默表达对甲状腺癌细胞增殖和凋亡的影响及作用机制研究[J]. 肿瘤药学, 2018, 8(5):705-709.

SHEN Y L, WANG S Y, LAI Y L, et al. The effects and mechanism of silenced PCNA gene expression on proliferation and apoptosis of thyroid carcinoma cells[J]. Anti Tumor Pharmacy, 2018, 8(5):705-709. (in Chinese)

[24]
朱姝, 王平, 李丹. 微小RNA-548c-3p通过靶向调控PCNA基因表达对喉癌细胞增殖及凋亡影响的研究[J]. 中国耳鼻咽喉头颈外科, 2021, 28(7):409-414.

ZHU S, WANG P, LI D. Effect of miR-548c-3p on proliferation and apoptosis of laryngeal carcinoma cells via targeting PCNA gene[J]. Chinese Archives of Otolaryngology-Head and Neck Surgery, 2021, 28(7):409-414. (in Chinese)

[25]
ZHANG X Y, ZOU N Y, DENG W Z, et al. HMGB1 induces radioresistance through PI3K/AKT/ATM pathway in esophageal squamous cell carcinoma[J]. Molecular Biology Reports, 2022, 49(12):11933-11945.

DOI PMID

[26]
SHI G D, LONG Z L, DE LA VEGA R E, et al. Purified exosome product enhances chondrocyte survival and regeneration by modulating inflammation and promoting chondrogenesis[J]. Regenerative Medicine, 2023, 18(1):55-71.

DOI

[27]
JI H, FRIEDMAN M I. Reduced hepatocyte fatty acid oxidation in outbred rats prescreened for susceptibility to diet-induced obesity[J]. International Journal of Obesity, 2008, 32(8):1331-1334.

DOI PMID

[28]
潘琪琪. Bta-miR-224调控奶牛乳腺上皮细胞TG生成和凋亡机制的研究[D]. 硕士学位论文. 大庆: 黑龙江八一农垦大学, 2017.

PAN Q Q. The research on mechanism of Bta-miR-224 regulating triglycerideogenesis and apoptosis in dairy cow mammary epithelial cells[D]. Master’s Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2017. (in Chinese)

[29]
BRUUN G H, DOKTOR T K, ANDRESEN B S. A synonymous polymorphic variation in ACADM exon 11 affects splicing efficiency and may affect fatty acid oxidation[J]. Molecular Genetics and Metabolism, 2013, 110(1/2):122-128.

DOI

[30]
ARUNATH V, LIYANARACHCHI M S, GAJEALAN S, et al. A novel mutation in ACADVL causing very long-chain acyl-coenzyme-A dehydrogenase deficiency in a South Asian pediatric patient:a case report and review of the literature[J]. Journal of Medical Case Reports, 2021, 15(1):441.

DOI

Outlines

/