REVIEW

Research Progress on Gut Microbial Taxa and Their Mechanisms Affecting Host Fat Deposition

  • YANG Zhuqing ,
  • SONG Wanming ,
  • CHEN Congying ,
  • YU Mingjin
Expand
  • College of Animal Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China

YANG Zhuqing, senior experimentalist, E-mail:

Received date: 2023-05-17

  Online published: 2023-11-12

Abstract

Fat deposition in pigs is influenced by many factors such as genetics, diet, feeding management and gut microbiota. Fat deposition is an important economic trait, and excessive fat deposition affects carcass quality and feed utilization. More and more studies have shown that gut microbiota plays an important role in host fat deposition. In this paper, the composition of pig gut microbiota community was first summarized. And then, the gut microbial taxa that have been identified so far to affect the fat deposition in pigs were systematically summarized. The possible mechanism of the gut microbiota affecting host fat deposition was also reviewed. According to the current research progress all over the world, this paper induced the progress on the methods to improve host fat deposition by regulating the gut microbial composition, and briefly looked ahead the possible research direction in this area in the future. This review provides a reference for reducing fat deposition and increasing lean meat percentage in pigs by regulating gut microbiota in the future.

Cite this article

YANG Zhuqing , SONG Wanming , CHEN Congying , YU Mingjin . Research Progress on Gut Microbial Taxa and Their Mechanisms Affecting Host Fat Deposition[J]. Chinese Journal of Animal Nutrition, 2023 , 35(11) : 6801 -6809 . DOI: 10.12418/CJAN2023.619

脂肪是动物和人类的必需营养成分,也是机体的重要组成部分。猪是产肉动物中最易沉积脂肪的动物。猪体内脂肪沉积过多不仅影响猪肉的品质,而且降低饲料利用率,并且人摄入过量的脂肪会引起肥胖和心血管疾病等。因此,成肌与沉脂是生猪高效生产中的2个关键科学问题,包括背膘、腹脂在内的脂肪沉积性状一直是生猪生产和猪遗传改良最关注的重要经济性状之一。解析猪脂肪沉积性状形成的机理,是提高饲料利用率、实现商品猪高瘦肉率的前提和关键。遗传基础决定了猪脂肪沉积的潜力,但到目前为止,虽然多达3 819个影响猪脂肪沉积的数量性状位点(QTL)被定位[1],但还未有影响猪脂肪沉积的主效基因和因果突变位点被分离和鉴别的报道。这一方面是由于脂肪沉积属于复杂的数量性状,受微效多基因、群体异质性等影响[2];另一方面,猪脂肪沉积还受饲养方式、饲粮和营养水平以及环境等多种因素影响。近年来越来越多的研究发现,肠道微生物对猪脂肪沉积也具有重要调节作用。猪肠道中生活着500~1 000种且数以万亿计的微生物,包括细菌、真菌和病毒,它们对于整个机体的正常功能非常重要,被认为是机体内的一个重要器官。肠道微生物参与宿主免疫和对营养物质的消化吸收,影响猪的生长[3]、饲料利用[4]和抗病力[5]等。在人和小鼠中已有许多研究表明,肠道菌群与宿主脂肪沉积、肌肉生长等密切相关。因此,本文首先将综述已鉴别的影响猪脂肪沉积的肠道微生物类别及其影响猪脂肪沉积的可能机理,然后归纳通过调控肠道微生物组成改善宿主脂肪沉积的方法,并提出应用前景和展望。

1 影响猪脂肪沉积的肠道微生物类别

1.1 猪肠道微生物组成概述

猪等哺乳动物肠道内栖息着数以万亿计的微生物,主要包括细菌、真菌、古菌和病毒,它们在肠道内构成一个复杂的微生态系统[6]。猪肠道微生物组成受饲养方式、饲粮、肠道部位和不同生长阶段等多种因素影响。Pajarillo等[7]研究发现,断奶前后仔猪肠道中厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidetes)是2个最具优势的细菌门,两者相对丰度之和超过90.0%,但在断奶前后丰度会发生显著变化。断奶前,厚壁菌门和拟杆菌门的相对丰度分别为54.0%和38.7%;而断奶后,厚壁菌门和拟杆菌门的相对丰度分别为35.8%和59.6%。Yang等[8]利用10个脂肪沉积能力差异极端的莱芜猪个体胃、回肠、空肠和盲肠等4个胃肠道部位的16S rRNA基因测序数据发现,拟杆菌门、厚壁菌门、变形菌门(Proteobacteria)和放线菌门(Actinobacteria)等是猪肠道中最丰富的微生物种类,梭菌属(Clostridium)和SMB53菌属显著富集于小肠,而普雷沃氏菌属(Prevotella)、密螺旋体属(Treponema)、瘤胃球菌属(Ruminococcus)及柔嫩梭菌属(Clostridium leptum)等则在盲肠中具有更高丰度。Chen等[9]在500个来自不同猪群体、不同肠道部位和不同日龄样品中系统分析了猪肠道核心菌群组成,将在90.0%以上的样本中存在的细菌类群定义为猪肠道微生物的核心类群,结果有19个门、234个属和254个种被鉴定为核心细菌类群;在这些核心细菌类群中,有15个门、135个属和97个种在所有500个样本中都被检测到,其中这97个菌种的丰度占据了1 280个所鉴别到的菌种总丰度的92.29%,表明它们可能在猪的肠道微生态系统中具有重要作用;该项研究还分析了粪便、回肠内容物、盲肠内容物中丰度最高的20个菌种,结果发现,包括罗伊氏乳杆菌(Lactobacillus reuteri)、约氏乳杆菌(Lactobacillus johnsonii)、嗜淀粉乳杆菌(Lactobacillus amylovorus)、Ruminococcaceae bacterium、大肠杆菌(Escherichia coli)、Prevotella copri、脆弱拟杆菌(Bacteroides fragilis)、猪链球菌(Streptococcus suis)、Phascolarctobacterium succinatutens和肠道沙门氏菌(Salmonella enterica)在内的10个菌种在3个肠道部位中的丰度都位列前20,但在不同肠道部位中的丰度存在显著差异;另有16个菌种只在其中1个肠道部位中的丰度位列前20;这一结果表明,同一种细菌在不同肠道部位的相对丰度存在显著差异;在回肠和盲肠内容物中分别检测到3和5个肠道部位特异的菌种,例如,梭菌属[丁酸梭菌(Clostridium butyricum)和产气荚膜梭菌(Clostridium perfringens)]和艰难拟梭菌(Clostridioides difficile)只在回肠内大量存在。

1.2 肠道微生物影响宿主脂肪沉积的主要证据

近年来,大量的证据表明肠道微生物在调控宿主脂肪沉积方面发挥着至关重要的作用,这些最初的证据主要来源于实验小鼠和人。第1个证明肠道微生物对脂肪沉积起调节作用的证据是通过小鼠模型获得的。出生和生长在无菌环境中的无菌小鼠比生长在常规环境中的小鼠瘦;接种了常规动物盲肠微生物的无菌小鼠尽管减少了食物的摄入,但体脂仍增长了60.0%[10]。使用遗传性肥胖模型(ob/ob)小鼠试验也证实,体重的增加与肠道细菌组成的改变有关。Ley等[11]研究发现,肥胖小鼠与同窝出生的瘦小鼠相比,盲肠内容物中的拟杆菌门减少了50.0%,厚壁菌门成比例的增加,盲肠菌群组成的改变与细菌的数目、ob/ob鼠的性别及种群无关。Turnbaugh等[12]比较了肥胖和体重正常全同胞小鼠间的肠道微生物组成,指出肠道中厚壁菌门与拟杆菌门丰度比例的改变是导致2组小鼠之间能量吸收与存储以及脂肪沉积能力差异的主要因素。在人类中也发现,肥胖病人的粪便中有较多的厚壁菌和较少的拟杆菌,肥胖人群减肥1年后肠道中厚壁菌门的比例变得与体重轻的人群相近[6]。Turnbaugh等[13]在肥胖与体重正常双胞胎小鼠个体间的肠道微生物组比较研究中,再次指出了厚壁菌门与拟杆菌门的比例上升和α多样性下降可以引起能量稳态的失衡并导致体脂含量的增加。Greenblum等[14]利用肠道菌群宏基因组测序鉴别了与人肥胖相关的宏基因组功能标记及其调控网络。Zhang等[15]利用多组学手段发现,通过饮食调控肠道菌群可以缓解儿童遗传性及单纯性肥胖。
在肠道菌群对猪脂肪沉积影响方面,Yang等[8]通过比较脂肪型猪种莱芜猪空肠、回肠和盲肠的微生物组成和功能差异,首次揭示了不同肠道部位细菌和宏基因组功能通路对猪脂肪沉积的影响不同。He等[16]在二花脸猪盲肠和巴马香猪粪便中鉴别到毛螺菌科(Lachnospiraceae)、瘤胃球菌科(Rumenococcaceae)、密螺旋体属、普雷沃氏菌属和拟杆菌属(Bacteroides)与背膘厚相关,并发现这些细菌是通过发酵非消化性多糖产生的短链脂肪酸来调控宿主的能量代谢和脂肪沉积。

1.3 影响猪脂肪沉积的肠道微生物类别

在影响猪脂肪沉积的肠道微生物类别鉴定方面,目前大部分研究仅仅鉴别到一系列可能影响猪脂肪沉积的肠道细菌分类。Yang等[8]使用莱芜猪作为研究材料,分析了不同肠道部位菌群组成与莱芜猪脂肪沉积的关系,发现在高脂肪沉积莱芜猪的空肠中显著富集了Clostridium phytofermentans、约氏乳杆菌和弗格森埃希菌(Escherichia fergusonii),而在低脂肪沉积莱芜猪的空肠中显著富集了产琥珀酸菌——产琥珀酸放线杆菌(Actinobacillus succinogenes)、产琥珀酸曼氏杆菌(Mannheimia succiniciproducens)和丁酸产生菌Cellulosilyticum lentocellum;在高脂肪沉积莱芜猪回肠中显著富集了条件致病菌大肠杆菌、艰难梭菌(Clostridium difficile)和索氏梭菌(Clostridium sordellii),而在低脂肪沉积猪的回肠中则显著富集了包含多种普雷沃氏菌属和拟杆菌属在内的菌种以及产琥珀酸放线杆菌、Cellulosilyticum lentocellum等;其中大肠杆菌在高脂肪沉积莱芜猪的空肠、回肠和盲肠3个肠道部位都显著富集。Tang等[17]在恩施黑猪中研究发现,空肠和盲肠微生物群可以解释13%~31%背膘厚的表型变异,其中盲肠中的普雷沃氏菌科UCG-001(Prevotellaceae UCG-001)和另枝菌属(Alistipes),以及空肠中的狭义梭菌属1(Clostridium sensu stricto 1)提高背膘厚。Li等[18]在杂交猪中发现,粪便中颤螺菌属(Oscillospira)、消化球菌属(Peptococcus)和布雷德菌属(Bulleidia)的丰度与背膘厚度呈显著正相关,而萨特氏菌属(Sutterella)和双歧杆菌属(Bifidobacterium)的丰度与背膘厚呈显著负相关。Chen等[19]鉴别到Prevotella copri增加猪脂肪沉积、降低瘦肉率,将从试验猪中分离培养的Prevotella copri进行无菌小鼠灌胃试验,证实Prevotella copri是增加脂肪沉积降低瘦肉率的因果菌种,并阐明其作用机理。但到目前为止,除Prevotella copri外,鉴别到的影响猪脂肪沉积并初步解析其作用机理的因果菌种还非常少。表1列举了部分已报道的影响猪脂肪沉积的肠道微生物类别[8,17-20]
表1 部分已报道的影响猪脂肪沉积的微生物类别

Table 1 Partial list of gut microbial taxa that have been reported to affect pig fat deposition

脂肪沉积表型
Fat deposition phenotype
相关微生物类别
Related gut microbial taxa
参考文献
梭菌属、乳酸杆菌属(Lactobacillus)肠型 Lu等[20]
背膘厚 梭菌属和埃希氏杆菌属(Escherichia)等属的相关菌种 Yang等[8]
Backfat thickness 普雷沃氏菌科UCG-001、另枝菌属和狭义梭菌属1等 Tang等[17]
颤螺菌属、消化球菌属、布雷德菌属、萨特氏菌属和双歧杆菌属等 Li等[18]
背膘厚、瘦肉率
Backfat thickness, lean meat percentage
Prevotella copri Chen等[19]

1.4 Prevotella copri——增加猪脂肪沉积的菌种

普雷沃氏菌属为拟杆菌目(Bacteroidales)、普雷沃氏菌科(Prevotellaceae)的一个属,属于厌氧革兰氏阴性菌,为多形态杆菌,不产芽孢[21],是肠道中的核心优势菌。Prevotella copri是普雷沃氏菌属中的重要菌种,在对人的研究中,Tett等[22]对从公开数据库获得的来自世界不同大洲的宏基因组数据(超过6 800个)进行大规模Meta分析,同时结合分离培养的人肠道Prevotella copri菌株测序数据,共鉴别到>1 000个Prevotella copri基因组,这些菌株形成的Prevotella copri复合体可以分成4个在基因组成上显著不同的分化枝(clades,亚种),不同亚种在肠道中的频率和丰度与饮食相关。Prevotella copri各菌株对宿主健康的影响还与饮食方式有关,西式饮食使具有较高leuB基因频率的Prevotella copri菌株增加,而leuB基因与支链氨基酸生物合成有关,导致宿主葡萄糖耐受不良、肥胖和2型糖尿病[23]
普雷沃氏菌属也是猪肠道中的核心菌属,具有很高的丰度[24]。相对于人肠道菌群研究中的Prevotella copri热点,对猪肠道中的普雷沃氏菌属,特别是对Prevotella copri的研究还较少。Ren等[25]发现,饲喂高直链淀粉/支链淀粉比例饲粮的育肥猪,普雷沃氏菌属富集肠型有益于肠道健康。Ramayo-Caldas等[3]在518头60日龄猪粪便样品中分析了猪的肠型和微生态共丰度网络对猪生长速度的影响,发现普雷沃氏菌属处于微生态共丰度网络的核心位置,并且与瘤胃球菌属和密螺旋体属密切相关,肠型会影响60日龄体重和平均日增重,普雷沃氏菌属肠型有更高的体重和平均日增重。Yang等[4]在杜洛克猪群体中发现,普雷沃氏菌属肠型显著提高平均日采食量,但降低饲料利用率,对采食时间和采食次数没有显著影响。Chen等[19]在698头使用配合饲料饲喂的商品杜洛克猪中分析了肠道微生物组与猪瘦肉率的相关性,发现Prevotella copri是影响猪脂肪沉积和瘦肉率的关键菌种,肥猪肠道内Prevotella copri丰度显著更高;宏基因组测序和血清代谢组分析发现,高丰度的Prevotella copri增加了宏基因组中与脂多糖合成、支链氨基酸合成、芳香族氨基酸和花生四烯酸代谢相关基因丰度,血清代谢组中肥胖相关代谢产物,如脂多糖、支链氨基酸、芳香族氨基酸和花生四烯酸的代谢物等的含量也确实显著增加;高Prevotella copri丰度产生的代谢物导致肠道屏障通透性和慢性炎症反应增加;使用无菌小鼠进行灌胃试验并配合使用高纤维饲粮、普通饲粮和高脂饲粮的研究,证实了从试验猪中分离出的Prevotella copri是一个增加宿主脂肪沉积因果菌株,并与使用的饲粮相关。研究还发现,Prevotella copri定植通过Toll样受体4(Toll-like receptor 4,TLR4)和哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路激活宿主慢性炎症反应,并显著上调与脂肪生成和脂肪积累相关的基因表达,但减弱与脂肪分解、脂质转运和肌肉生长相关的基因表达[19]

2 肠道菌群影响宿主脂肪沉积的机理

到目前为止,鉴别得到的影响猪脂肪沉积的关键菌种(株)还比较少,因此相对于人和小鼠,对猪肠道菌群影响宿主脂肪沉积的机理研究也比较少。总结现有的在人、猪和鼠中的研究报道,肠道菌群可能主要通过以下途径(机理)影响宿主的脂肪沉积。
其一,肠道菌群通过发酵食物中宿主自身不能消化、分解的物质,将其转化为短链脂肪酸等小分子物质,从而为宿主提供能量,促进猪的脂肪合成和存储[10]。通过比较“胖”“瘦”小鼠肠道菌群的宏基因组发现,来源于肥胖小鼠的肠道菌群包含编码特异性分解难消化多糖的酶基因,如α-半乳糖苷酶、β-半乳糖苷酶、丙酮酸甲酸裂解酶和KO0656。相对于瘦鼠,胖鼠的结肠内容物中含有更多的短链脂肪酸,粪便中的卡路里更少,提示肥胖的动物从食物中摄取更多的能量[12]。Zhao等[26]研究发现,17个碳水化合物代谢酶基因家族在肥猪中富集。
其二,肠道菌群通过调节宿主基因表达从而影响猪脂肪沉积。例如,肠上皮细胞可产生一种脂蛋白脂酶(lipoprotein lipase,LPL)的抑制因子——禁食诱导脂肪因子(fasting induced adipose factor,Fiaf);肠道菌群可通过抑制Fiaf基因表达,促进LPL表达,从而促进脂肪细胞中甘油三酯贮存[27]。肠道菌群还可通过促进脂肪合成基因和固醇调节元件结合蛋白1基因的表达,从而促进甘油三酯在肝脏脂肪细胞中积聚[28]。另外,肠道菌群通过降低肝脏和肌肉的单磷酸腺苷活化蛋白激酶(adenosine monophosphate activated protein kinase,AMPK),从而抑制依赖AMPK的脂肪酸氧化作用[28]。但肠道菌群通过何种成分/代谢物或通过何种途径调节宿主不同组织基因表达还有待深入研究。
其三,肠道细菌内毒素或代谢物通过激活宿主的慢性炎症反应,增加脂肪沉积。如猪肠道中Prevotella copri产生的内毒素脂多糖和代谢物支链氨基酸、芳香族氨基酸和花生四烯酸等通过血液循环作用于脂肪及肌肉组织,通过TLR4和mTOR信号通路激活宿主的慢性炎症反应,显著上调与脂肪生成及脂肪积累相关基因的表达,同时抑制与脂肪分解、脂质运输和肌肉生长相关基因的表达,导致脂肪积累[19](图1)。在肠道菌群影响人肥胖的机理研究中也发现,在肥胖和胰岛素抵抗的人肠道中,具有支链氨基酸生物合成能力的肠道微生物类别[如Prevotella copri和普通拟杆菌(Bacteroides vulgatus)]没有编码向细菌内转运这些支链氨基酸的蛋白的基因,导致宿主血清中支链氨基酸含量升高和慢性炎症反应,脂肪沉积增加[23]。把肥胖人肠道中分离的产脂多糖内毒素的肠杆菌移植到无菌小鼠后能增加小鼠血清内毒素含量,诱导炎症反应和脂肪沉积[29]。而与之相反的是,由肠道微生物产生的具有抗炎活性的代谢物如丁酸,则能抑制炎症反应,减少脂肪沉积。例如,Zhao等[26]发现,碳水化合物代谢酶基因家族在肥猪中富集,而低脂肪沉积猪肠道中具有较高的产丁酸菌丰度,促进了丁酸盐的形成,从而减少了脂肪沉积。
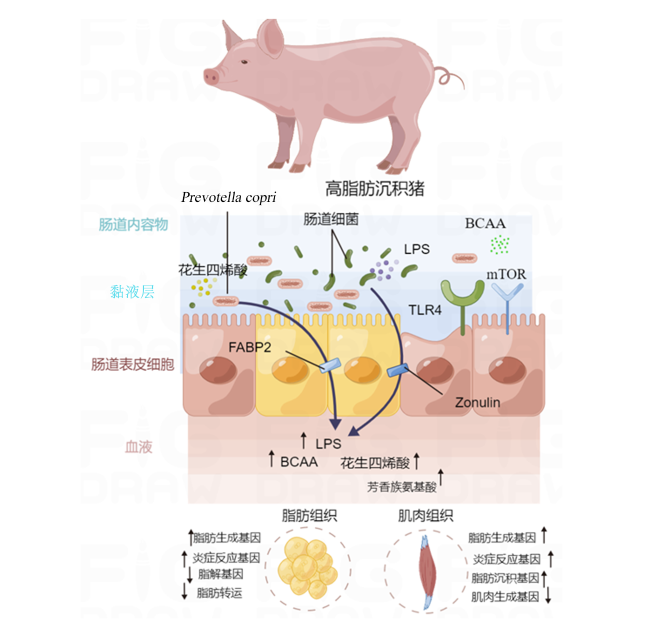
图1 Prevotella copri增加猪脂肪沉积降低瘦肉率的机理

BCAA:支链氨基酸 branched chain amino acid;LPS:脂多糖 lipopolysaccharide;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;TLR4:Toll样受体4 Toll-like receptor 4;FABP2:脂肪酸结合蛋白 fatty acid-binding protein;Zonulin:连蛋白。

Fig.1 Mechanism of Prevotella copri increasing pig fat deposition and decreasing lean meat percentage[19]

3 通过调控肠道微生物组成改善宿主脂肪沉积的方法

3.1 粪菌移植

粪菌移植也叫粪便微生物移植、粪便细菌疗法等,是人肠道疾病的一种疗法,其通过移植健康捐赠者的粪便细菌到病人消化道来达到治病的目的。粪菌移植有助于恢复患者肠道微生物群的平衡[30]。在肠道微生物对宿主脂肪沉积的影响研究中,粪菌移植最早是用来证实肠道菌群对宿主肥胖的影响和因果关系的。例如,Ridaura等[31]将成年女性双胞胎中肥胖个体的粪便移植给无菌小鼠后导致小鼠代谢改变,体脂量增加和出现肥胖相关的代谢表型。
Yan等[32]分别将荣昌猪(更易脂肪沉积)和约克夏猪(瘦肉型)的粪便移植给无菌小鼠,发现粪菌移植小鼠的肠道微生物群组成与其供体猪具有高度相似性,与约克夏猪及其受体小鼠相比,荣昌猪及其受体小鼠表现出更高的体脂量和更强的脂肪生成能力。Yang等[33]将长白猪和金华猪的粪便移植给抗生素处理后的小鼠,与接受了长白猪粪便的小鼠相比,接受了更易脂肪沉积金华猪的粪便的小鼠肝脏中脂质和甘油三酯含量以及LPL活性均有所提高。Qi等[34]研究比较了肥猪粪便微生物移植和结肠内容物微生物移植对新生仔猪的不同影响,发现结肠内容物菌群移植和粪便菌群移植均能促进断奶仔猪生长和改善肠道功能,粪便菌群移植更有利于仔猪增重和体脂沉积。上述研究均提示,通过粪菌移植可以通过改变受体的肠道菌群组成从而改善猪或小鼠的脂肪生成和沉积能力。
不过,虽然粪菌移植改变受体脂肪沉积在研究上取得一定进展,但在生猪生产中实际应用还存在不少障碍,包括粪菌供体选择、移植粪便的制备技术、粪菌移植相关技术优化、受体遗传、饲养方式、微生物群组成和潜在病原微生物等问题。受体肠道微生物多样性和特定物种的存在都会影响粪菌移植后菌群的定植[35]

3.2 使用益生菌

益生菌作为一种微生物制剂,常常作为添加剂添加到猪饲料中,其主要目的是促进猪的生长,改善机体的免疫功能,提高饲料转化率,同时还能避免对环境造成污染,因此在生猪养殖业中得到了广泛的应用。益生菌最主要的作用也是最常见的作用就是调节动物消化道的菌群组成,维持胃肠道的菌群平衡。益生菌在宿主的肠道内除了可以发挥拮抗作用,阻断病原菌的黏附和繁殖外,还可以产生多种有益的代谢物质,如氨基酸、B族维生素和促生长因子等。在益生菌调控猪脂肪沉积方面,Cui等[36]发现,饲粮中添加枯草芽孢杆菌能通过调节肠道中拟杆菌门与厚壁菌门的比例来影响脂质代谢,提高育肥猪的生长性能,上调皮下脂肪的脂质代谢。在沙子岭猪肠道中显著富集的约氏乳杆菌,在杜长大猪肠道中定植后促进了杜长大猪的脂质代谢和肥胖[37]。但到目前为止,专门用于调控猪脂肪沉积的益生菌还非常少,需要进一步开发和鉴别相关益生菌,并阐明其作用机理。

3.3 使用特定的饲料和饲料添加剂

当前,畜牧生产中通常通过添加特定饲料成分或添加剂来调控动物生产性能,如生长、脂肪沉积等。例如,在低蛋白质饲粮中添加构树全株发酵饲料可抑制育肥猪背部脂肪合成,降低体脂重量,改善肠道微生物组成,提高结肠中乙酸和丙酸含量[38]。饲粮中添加粗纤维对猪盲肠和空肠细菌结构和组成具有显著影响,盲肠代谢物可进一步影响宿主的健康、生长和屠宰性能[39]。Maj等[40]使用53日龄的利比亚猪作为试验动物,比较了饲喂蔗糖和高果糖玉米糖浆对猪脂肪沉积和甘油三酯血症的影响,发现与富含蔗糖的饲料相比,高果糖玉米糖浆饲喂导致的果糖摄入增加了幼龄伊比利亚猪的结肠丁酸盐、血浆甘油三酯和皮下脂质含量;肠道微生物组分析发现,高果糖玉米糖浆组和蔗糖组之间微生物组成的平均差异为24.8%,主要与产生短链脂肪酸的细菌变化有关。Nguyen Cong等[41]以24头杂交育肥猪作为试验材料,评价含酒糟副产物饲粮对育肥猪生长性能、胴体特性和肠道菌群的影响,发现在育肥猪饲粮中添加30%的酒糟副产物可调节结肠微生物群组成,促进动物生长和脂肪沉积。
在特定饲料添加剂通过调控猪肠道菌群组成从而影响脂肪沉积等重要经济性状方面,饲粮中添加维生素E、富硒酵母和大豆异黄酮复合抗氧化剂可通过调节肠道菌群,提高猪饲料利用率和抗氧化能力,改变背膘厚度和肉品质[42]。饲粮中添加丁酸钠和烟酸可提高断奶仔猪生产性能,改善粪便微生物群[43]。高烟酸摄入量通过调节脂质代谢和肠道菌群提高宁乡猪瘦肉率,减少脂肪沉积[44]。总体来讲,使用特定的饲料和饲料添加剂来调控肠道菌群组成从而较少猪脂肪沉积还缺乏系统研究,其具体的作用机理也还有待深入研究。

4 小结

猪的重要经济性状,如脂肪沉积性状等同时受遗传、肠道微生物组成及饲养管理等多种因素的影响。肠道菌群与宿主之间存在广泛互作,一方面,宿主的基因表达、免疫反应、营养与代谢产物等会影响肠道菌群组成。因此,定位和鉴别影响猪肠道微生物组成的主效基因和因果突变,并阐明其作用机理,对影响猪脂肪沉积的相关肠道微生物定植和丰度精准调控具有重要作用。同时,需要结合宿主的消化代谢特征,研究能够调控特定肠道菌群组成的营养物质和饲料添加剂等,从而研发通过添加特定的饲料添加剂来调控猪脂肪沉积的技术。另一方面,肠道菌群与宿主消化、代谢和免疫等密切相关。肠道菌群能消化宿主不能消化的膳食纤维等,其代谢产物可以通过表观遗传等途径改变宿主基因表达来影响宿主脂肪沉积等表型形成[43]。因此,结合宏基因组测序、菌株分离培养、代谢组、表观组和宿主不同组织基因表达数据等采用多组学手段解析肠道菌群影响猪脂肪沉积的机理,开发能减少脂肪沉积的益生菌来调控猪脂肪沉积具有重要的研究和应用前景。
综上所述,肠道微生物组成对猪脂肪沉积具有重要作用,鉴别影响猪脂肪沉积的肠道关键菌株并解析其作用机理,同时结合宿主遗传对猪肠道菌群组成的影响,从而从宿主遗传和肠道菌群互作入手系统解析肠道菌群对猪脂肪沉积性状的影响。在此基础上,采用菌群移植以及使用益生菌、益生元和各种饲料添加剂等手段建立降低猪脂肪沉积、提高瘦肉率的肠道微生物调控技术,为生猪生产提供创新性技术。
[1]
HU Z L, PARK C A, REECY J M. Bringing the animal QTLdb and CorrDB into the future:meeting new challenges and providing updated services[J]. Nucleic Acids Research, 2022, 50(D1):D956-D961.

DOI

[2]
AI H, REN J, ZHANG Z, et al. Detection of quantitative trait loci for growth- and fatness-related traits in a large-scale white Duroc×Erhualian intercross pig population[J]. Animal Genetics, 2012, 43(4):383-391.

DOI

[3]
RAMAYO-CALDAS Y, MACH N, LEPAGE P, et al. Phylogenetic network analysis applied to pig gut microbiota identifies an ecosystem structure linked with growth traits[J]. ISME Journal, 2016, 10(12):2973-2977.

DOI

[4]
YANG H, HUANG X C, FANG S M, et al. Unraveling the fecal microbiota and metagenomic functional capacity associated with feed efficiency in pigs[J]. Frontiers in Microbiology, 2017, 8:1555.

DOI PMID

[5]
SHANG P, WEI M B, DUAN M Q, et al. Healthy gut microbiome composition enhances disease resistance and fat deposition in Tibetan pigs[J]. Frontiers in Microbiology, 2022, 13:965292.

DOI

[6]
SENDER R, FUCHS S, MILO R. Are we really vastly outnumbered? Revisiting the ratio of bacterial to host cells in humans[J]. Cell, 2016, 164(3):337-340.

DOI PMID

[7]
PAJARILLO E A B, CHAE J P, BALOLONG M P, et al. Assessment of fecal bacterial diversity among healthy piglets during the weaning transition[J]. Journal of General and Applied Microbiology, 2014, 60(4):140-146.

DOI PMID

[8]
YANG H, HUANG X C, FANG S M, et al. Uncovering the composition of microbial community structure and metagenomics among three gut locations in pigs with distinct fatness[J]. Scientific Reports, 2016, 6:27427.

DOI PMID

[9]
CHEN C Y, ZHOU Y Y, FU H, et al. Expanded catalog of microbial genes and metagenome-assembled genomes from the pig gut microbiome[J]. Nature Communications, 2021, 12(1):1106.

DOI PMID

[10]
BÄCKHED F, DING H, WANG T, et al. The gut microbiota as an environmental factor that regulates fat storage[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(44):15718-15723.

DOI PMID

[11]
LEY R E, BÄCKHED F, TURNBAUGH P, et al. Obesity alters gut microbial ecology[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(31):11070-11075.

DOI PMID

[12]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

DOI

[13]
TURNBAUGH P J, HAMADY M, YATSUNENKO T, et al. A core gut microbiome in obese and lean twins[J]. Nature, 2009, 457(7228):480-484.

DOI

[14]
GREENBLUM S, TURNBAUGH P J, BORENSTEIN E. Metagenomic systems biology of the human gut microbiome reveals topological shifts associated with obesity and inflammatory bowel disease[J]. Proceedings of the National Academy of Sciences of the United States of America, 2012, 109(2):594-599.

DOI PMID

[15]
ZHANG C H, YIN A H, LI H D, et al. Dietary modulation of gut microbiota contributes to alleviation of both genetic and simple obesity in children[J]. eBioMedicine, 2015, 2(8):968-984.

DOI PMID

[16]
HE M Z, FANG S M, HUANG X C, et al. Evaluating the contribution of gut microbiota to the variation of porcine fatness with the cecum and fecal samples[J]. Frontiers in Microbiology, 2016, 7:2108.

DOI PMID

[17]
TANG S, XIN Y, MA Y L, et al. Screening of microbes associated with swine growth and fat deposition traits across the intestinal tract[J]. Frontiers in Microbiology, 2020, 11:586776.

DOI

[18]
LI X, LI M Y, HAN J Y, et al. Correlation between fat accumulation and fecal microbiota in crossbred pigs[J]. Journal of Microbiology, 2022, 60(11):1077-1085.

DOI

[19]
CHEN C Y, FANG S M, WEI H, et al. Prevotella copri increases fat accumulation in pigs fed with formula diets[J]. Microbiome, 2021, 9(1):175.

DOI

[20]
LU D, TIEZZI F, SCHILLEBEECKX C, et al. Host contributes to longitudinal diversity of fecal microbiota in swine selected for lean growth[J]. Microbiome, 2018, 6(1):4.

DOI PMID

[21]
SHAH H N, COLLINS D M. Prevotella,a new genus to include Bacteroides melaninogenicus and related species formerly classified in the genus Bacteroides[J]. International Journal of Systematic Bacteriology, 1990, 40(2):205-208.

DOI

[22]
TETT A, HUANG K D, ASNICAR F, et al. The Prevotella copri complex comprises four distinct clades underrepresented in westernized populations[J]. Cell Host & Microbe, 2019, 26(5):666-679.e7.

[23]
PEDERSEN H K, GUDMUNDSDOTTIR V, NIELSEN H B, et al. Human gut microbes impact host serum metabolome and insulin sensitivity[J]. Nature, 2016, 535(7612):376-381.

DOI

[24]
HOLMAN D B, BRUNELLE B W, TRACHSEL J, et al. Meta-analysis to define a core microbiota in the swine gut[J]. mSystems, 2017, 2(3):e00004-e00017.

[25]
REN W, YAN H L, YU B, et al. Prevotella-rich enterotype may benefit gut health in finishing pigs fed diet with a high amylose-to-amylopectin ratio[J]. Animal Nutrition, 2021, 7(2):400-411.

DOI PMID

[26]
ZHAO G M, XIANG Y, WANG X L, et al. Exploring the possible link between the gut microbiome and fat deposition in pigs[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:1098892.

[27]
WHON T W, SHIN N R, JUNG M J, et al. Conditionally pathogenic gut microbes promote larval growth by increasing redox-dependent fat storage in high-sugar diet-fed drosophila[J]. Antioxidants Redox Signaling, 2017, 27(16):1361-1380.

DOI

[28]
BÄCKHED F, MANCHESTER J K, SEMENKOVICH C F, et al. Mechanisms underlying the resistance to diet-induced obesity in germ-free mice[J]. Proceedings of the National Academy of Sciences of the United States of America, 2007, 104(3):979-984.

DOI PMID

[29]
ZHAO L P. The gut microbiota and obesity:from correlation to causality[J]. Nature Reviews Microbiology, 2013, 11(9):639-647.

DOI

[30]
BORODY T J, KHORUTS A. Fecal microbiota transplantation and emerging applications[J]. Nature Reviews Gastroenterology & Hepatology, 2011, 9(2):88-96.

[31]
RIDAURA V K, FAITH J J, REY F E, et al. Gut microbiota from twins discordant for obesity modulate metabolism in mice[J]. Science, 2013, 341(6150):1241214.

DOI

[32]
YAN H L, DIAO H, XIAO Y, et al. Gut microbiota can transfer fiber characteristics and lipid metabolic profiles of skeletal muscle from pigs to germ-free mice[J]. Scientific Reports, 2016, 6:31786.

DOI PMID

[33]
YANG H, XIANG Y, ROBINSON K, et al. Gut microbiota is a major contributor to adiposity in pigs[J]. Frontiers in Microbiology, 2018, 9:3045.

DOI PMID

[34]
QI R L, ZHANG Z, WANG J, et al. Introduction of colonic and fecal microbiota from an adult pig differently affects the growth,gut health,intestinal microbiota and blood metabolome of newborn piglets[J]. Frontiers in Microbiology, 2021, 12:623673.

DOI

[35]
DANNE C, ROLHION N, SOKOL H. Recipient factors in faecal microbiota transplantation:one stool does not fit all[J]. Nature Reviews Gastroenterology & Hepatology, 2021, 18(7):503-513.

[36]
CUI C, SHEN C J, JIA G, et al. Effect of dietary Bacillus subtilis on proportion of Bacteroidetes and Firmicutes in swine intestine and lipid metabolism[J]. Genetics and Molecular Research, 2013, 12(2):1766-1776.

DOI

[37]
MA J, DUAN Y H, LI R, et al. Gut microbial profiles and the role in lipid metabolism in Shaziling pigs[J]. Animal Nutrition, 2022, 9:345-356.

DOI PMID

[38]
段格艳, 宋博, 陈晓安, 等. 低蛋白质饲粮中添加构树全株发酵饲料对育肥猪脂肪沉积和肠道微生物组成的影响[J]. 动物营养学报, 2022, 34(4):2186-2195.

DOI

DUAN G Y, SONG B, CHEN X A, et al. Effects of low-protein diet supplemented with fermented Broussonetia papyrifera feed on fat deposition and gut microbiota composition of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2186-2195. (in Chinese)

[39]
WU G F, TANG X A, FAN C, et al. Gastrointestinal tract and dietary fiber driven alterations of gut microbiota and metabolites in Durco×Bamei crossbred pigs[J]. Frontiers in Nutrition, 2021, 8:806646.

DOI

[40]
MAJ M, HARBOTTLE B, THOMAS P A, et al. Consumption of high-fructose corn syrup compared with sucrose promotes adiposity and increased triglyceridemia but comparable NAFLD severity in juvenile Iberian pigs[J]. Journal of Nutrition, 2021, 151(5):1139-1149.

DOI PMID

[41]
NGUYEN CONG O, BERNARD T, PHAM KIM D, et al. Growth performance,carcass quality characteristics and colonic microbiota profiles in finishing pigs fed diets with different inclusion levels of rice distillers’ by-product[J]. Animal Science Journal, 2019, 90(8):948-960.

DOI

[42]
ZHU C, YANG J S, NIE X Y, et al. Influences of dietary vitamin E,selenium-enriched yeast,and soy isoflavone supplementation on growth performance,antioxidant capacity,carcass traits,meat quality and gut microbiota in finishing pigs[J]. Antioxidants, 2022, 11(8):1510.

DOI

[43]
ZHEN R, LIU C Y, WEI C W, et al. Effect of different dosages of sodium butyrate and niacin on growth,faecal microbiota and vitamin B metabolism in weaned piglets[J]. Journal of Applied Microbiology, 2022, 132(6):4466-4475.

DOI

[44]
WANG Z B, ZENG X L, ZHANG C, et al. Higher niacin intakes improve the lean meat rate of Ningxiang pigs by regulating lipid metabolism and gut microbiota[J]. Frontiers in Nutrition, 2022, 9:959039.

DOI

Outlines

/