Original article

Screening and Identification of Target Genes of mtr-miR156a in Bovine Mammary Gland Epithelial Cells and Its Regulation on Milk Protein Biosynthesis in Dairy Cows

  • LIU Baobao , 1, 2 ,
  • JIA Jingying 1, 2 ,
  • MENG Guizhi 1, 2 ,
  • LIU Zujiang 1, 2 ,
  • MA Yun 1, 2 ,
  • CAI Xiaoyan , 1, 2, *
Expand
  • 1 School of Agricultural, Ningxia University, Yinchuan 750021, China
  • 2 Key Laboratory of Ruminant Molecular Cell Breeding, Ningxia Hui Autonomous Region, Yinchuan 750021, China
* professor, E-mail:

Received date: 2023-05-17

  Online published: 2023-11-12

Abstract

The aim of this experiment was to explore the target genes of alfalfa miR156a (mtr-miR156a) in bovine mammary gland epithelial cells (BMECs) and its regulation on milk protein synthesis, so as to provide a research basis for further study on the regulation of milk protein synthesis by exogenous plant microRNA (miRNA). Firstly, the candidate target genes of mtr-miR156a regulating protein synthesis were predicted and screened through the online websites of Lianchuan Bio-Cloud Platform, TargetScan and RNAhybrid, then the recombinant plasmids of the candidate target genes serine/threonine-protein phosphatase 2A 56 kDa regulatory subunit delta isoform (PPP2R5D) and phosphoinositide-3-kinase regulatory subunit 2 (PIK3R2) were constructed, and the target genes were identified by dual-luciferase verification. Finally, the real-time fluorescence quantitative PCR (qRT-PCR) and enzyme linked immunosorbent assay (ELISA) were used to detect the effects of overexpression of mtr-miR156a on milk protein synthesis-related gene expression and casein-coding gene mRNA and protein expression in BMECs. The results showed as follows: 1) dual-luciferase reporter gene and qRT-PCR identified that mtr-miR156a could target PPP2R5D and PIK3R2 and extremely significantly reduced their expression levels (P<0.01). 2) Compared with mimic NC, overexpression of mtr-miR156a extremely significantly decreased the relative expression levels of pyruvate dehydrogenase kinase 1 (PDK1), ribosomal protein S6 kinase beta-1 (S6K1), eukaryotic translation initiation factor 4B (eIF4B), ribosomal protein S6 (RPS6), tuberous sclerosis complex 2 (TSC2), Ras homolog enriched in brain (RHEB), mammalian target of rapamycin (mTOR) and eukaryotic translation initiation factor 4E (eIF4E) (P<0.01), while extremely significantly increased the relative expression levels of protein kinase B1 (Akt1) and eukaryotic translation initiation factor 4E binding protein 1 (EIF4EBP1) (P<0.01). 3) Compared with mimic NC, overexpression of mtr-miR156a extremely increased the relative expression levels of casein alpha S1 (CSN1S1), casein alpha S2 (CSN1S2), casein beta (CSN2) and casein kappa (CSN3) (P<0.01). 4) The results of ELISA showed that compared with mimic NC, overexpression of mtr-miR156a significantly increased the contents of α casein and β casein in the supernatant of BMECs culture medium (P<0.05), and extremely significantly increased the κ casein content in the supernatant (P<0.01). To sum up, mtr-miR156a can involve in the regulation of casein in BMECs by targeting PPP2R5D and PIK3R2 in the phosphatidylinositol-3-hydroxykinase (PI3K)/protein kinase B (Akt)/mTOR signaling pathway, regulating the expression of PDK1, S6K1, eIF4B, RPS6, Akt1, TSC2, RHEB, mTOR, eIF4E, EIF4EBP1 and other genes in PI3K/Akt/mTOR signaling pathway, and up-regulating the mRNA and protein expression levels of casein coding genes.

Cite this article

LIU Baobao , JIA Jingying , MENG Guizhi , LIU Zujiang , MA Yun , CAI Xiaoyan . Screening and Identification of Target Genes of mtr-miR156a in Bovine Mammary Gland Epithelial Cells and Its Regulation on Milk Protein Biosynthesis in Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2023 , 35(11) : 7355 -7367 . DOI: 10.12418/CJAN2023.669

微小RNA(microRNA,miRNA)是一类在生物中高度保守的、长度为18~25个核苷酸(nt)的单链非编码小分子RNA。早在1993年,试验验证了秀丽隐杆线虫miRNA lin-4的碱基可以与lin-14基因的3'非翻译区(UTR)的碱基互补配对结合,从而下调基因lin-14的翻译,这一研究成果初步揭示了miRNA发挥调控作用的方式,即与靶基因结合抑制靶基因翻译或降解靶mRNA,从而降低靶基因表达水平,影响基因功能[1]。miRNA的发现打破了之前对于基因调节生物过程的传统认知,miRNA及其相关的调控机制成为分子研究的一大热点。越来越多的研究表明,miRNA不仅可以靶向调控生物体内源性基因表达,还可以跨界调节其他物种体内的生物发生过程。如干燥坚果中的miR159a和miR156c通过靶向肿瘤坏死因子受体超家族成员1A(TNFRSF1A)mRNA,抑制白色和棕色脂肪细胞中的肿瘤坏死因子-α(TNF-α)通路,进而减少小鼠脂肪组织的炎症,增加小鼠棕色和皮下脂肪库的积累[2]。经典的跨界调控有水稻来源的miR168通过靶向小鼠肝脏内的低密度脂蛋白受体衔接蛋白1(LDLRAP1)减缓血液中低密度脂蛋白的清除,且植物源性miR156a被发现存在于牛血液中[3]。苜蓿是奶牛高乳蛋白的重要保障,苜蓿miR156a(mtr-miR156a)是随苜蓿被采食进入奶牛体内的初级代谢产物之一,本课题组前期研究发现其存在于奶牛血清和乳清外泌体中,但其对奶牛乳腺上皮细胞(bovine mammary gland epithelial cells,BMECs)中乳蛋白合成的调控及机制尚不清楚,这阻碍了进一步高效利用苜蓿养分提升奶牛乳蛋白的进程。因此,本研究以mtr-miR156a为主要研究对象,并借助生物信息学分析联合现代分子手段,对“mtr-miR156a-BMECs-酪蛋白基因表达”进行研究,揭示mtr-miR156a在BMECs的靶基因及对乳蛋白合成的调控作用,为后续进一步开展mtr-miR156a调控奶牛乳蛋白的分子调控作用奠定基础。

1 材料与方法

1.1 试验材料

1.1.1 试验样品

BMECs、psiCHECK-2载体和人胚胎肾细胞293T(HEK-293T)来自宁夏大学宁夏反刍动物分子细胞育种重点实验室前期保存。

1.1.2 主要试剂

TRIzol(TaKaRa,日本)、反转录试剂盒(诺唯赞,中国)、荧光定量试剂盒(诺唯赞,中国)、限制性内切酶Xho Ⅰ和Not Ⅰ(TaKaRa,日本)、DNA片段纯化回收试剂盒(天根,中国)、感受态细胞(天根,中国)、质粒提取试剂盒(OMEGA,美国)、DMEM/F12培养基(雅酶,中国),胎牛血清(BI,澳大利亚)、双荧光素酶报告试剂盒(Promega,美国)、mtr-miR156a mimic和mimic NC序列(通用生物,中国)、牛α酪蛋白酶联免疫吸附测定试剂盒(茁彩生物,中国)、牛β酪蛋白酶联免疫吸附测定试剂盒(茁彩生物,中国)和牛κ酪蛋白酶联免疫吸附测定试剂盒(茁彩生物,中国)。

1.2 试验方法

1.2.1 细胞RNA提取及cDNA逆转录

采用TRIzol裂解法提取过表达mtr-miR156a 48 h后BMECs的总RNA,并置于-80 ℃保存。通过琼脂糖凝胶电泳检测RNA的完整性,利用多功能酶标仪检测RNA的吸光度(OD)值以及浓度。选取OD值在1.8~2.0,并且凝胶电泳完整的RNA样本,按照cDNA第1链合成试剂盒说明书将提取的总RNA逆转录合成cDNA,并置于-20 ℃保存。

1.2.2 生物信息学分析

从生物信息学数据库TargetScan提供的牛基因信息以及联川生物云平台(https://www.omicstudio.cn/index)进行mtr-miR156a靶基因预测。对靶基因进行基因本体(GO)和京都基因与基因组百科全书(KEGG)通路富集分析,筛选出参与调控乳蛋白合成相关信号通路。在预测到的所有相关信号通路中筛选出mtr-miR156a调控乳蛋白合成相关的靶基因,并在RNAhybrid在线网站上进行比对,最终筛选出符合自由能阈值的靶基因。

1.2.3 3' UTR引物设计和扩增

丝氨酸/苏氨酸蛋白磷酸酶2A 56 kDa调节亚基delta亚型(PPP2R5D)和磷酸肌醇3激酶调控亚单位2(PIK3R2)基因3' UTR序列通过NCBI网站检索下载。使用Primer Premier 5软件设计包含mtr-miR156a种子区结合位点的3' UTR扩增引物,并分别在上游、下游加入Xho ⅠNot Ⅰ酶切位点,引物信息见表1,由通用生物系统(安徽)有限公司合成。
表1 3' UTR引物信息

Table 1 3' UTR primer information

基因名称Gene names 引物序列Primer sequences (5'—3')
丝氨酸/苏氨酸蛋白磷酸酶2A 56 kDa调节亚基delta亚型
PPP2R5D
F:CCGCTCGAGCTGCGCCTAGTACAGACAGG
R:ATAAGAATGCGGCCGCCCACCGGCTAATTCACTCC
磷酸肌醇3激酶调控亚单位2 PIK3R2 F:CCGCTCGAGTTCTGTCCCCTGCTGTCA
R:ATAAGAATGCGGCCGCACGGCTGAGGTTCTTGGA
U6 F:GCTTCGGCAGCACATATACTAAAAT
R:CGCTTCACGAATTTGCGTGTCAT
mtr-miR156a F:TCCCGTGACAGAAGAGAGAG
R:GGGTCCGAGGTATTCGCACT
PCR扩增反应体系为cDNA模板1 μL,染料10 μL,上游、下游引物各1 μL,加入ddH2O将反应体系补全至20 μL。反应程序如下:95 ℃,3 min;95 ℃,15 s;60 ℃,20 s;35个循环;72 ℃,60 s;72 ℃,5 min。反应结束后将PCR产物进行琼脂糖凝胶电泳,在凝胶成像仪中选择有目的片段的凝胶块,利用DNA片段纯化回收试剂盒进行纯化回收。

1.2.4 载体构建

用限制性内切酶Xho Ⅰ和Not Ⅰ对扩增片段与psiCHECK-2载体进行酶切,取纯化后的酶切产物使用T4 DNA连接酶进行连接。构建PPP2R5DPIK3R2基因与psiCHECK-2野生型(PPP2R5D-Wt和PIK3R2-Wt)载体;突变型(PPP2R5D-Mut和PIK3R2-Mut)载体构建方法同上,通过突变结合位点扩增引物构建突变型载体,对构建的野生型和突变型载体送至北京奥科鼎盛生物科技有限公司进行测序检测。

1.2.5 双荧光素酶活性检测

将mtr-miR156a mimic和mimic NC分别与构建好的基因野生型和突变型载体共转染至HEK-293T,转染试剂为Lipo 3000,转染方法与说明书一致。转染48 h后,按照双荧光素酶试剂盒说明书处理细胞,使用多功能酶标仪对细胞的荧光素酶活性进行检测。

1.2.6 实时荧光定量PCR(qRT-PCR)

通过NCBI官网检索PPP2R5DPIK3R2基因和磷脂酰肌醇-3-羟激酶(PI3K)/蛋白激酶B(Akt)/哺乳动物雷帕霉素靶蛋白(mTOR)信号通路中相关基因以及酪蛋白基因的序列,使用Primer Premier 5软件设计荧光定量上游和下游引物及内参引物,并通过NCBI在线网站进行单一性比对,以磷酸甘油醛脱氢酶(GAPDH)作为内参基因,引物由通用生物系统(安徽)有限公司合成,引物信息见表2
表2 qRT-PCR引物信息

Table 2 qRT-PCR primer information

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
丝氨酸/苏氨酸蛋白磷酸酶2A 56 kDa调节亚基delta亚型PPP2R5D F:GAGCGTGCCCTCTATTACTG
R:TCAGCCCGTGGATTGTCT
139
磷酸肌醇3激酶调控亚单位2 PIK3R2 F:GGAGGAGGTAAACGAGAAACTG
R:GGAGGAGGTAAACGAGAAACTG
272
蛋白激酶B1 Akt1 F:GAGGAGATGGAGGTGTCGCT
R:GCTGTGGCCTTCTCCTTCAC
125
结节性硬化症复合物亚基2 TSC2 F:GCCTCCTTGGAGGATGTGAA
R:TGGCTGACCAGCATCTCATA
116
酪蛋白alpha S1 CSN1S1 F:ATGTGCCCTCTGAGCGTTAC
R:AGGCACCAGATGGATAGGC
195
酪蛋白alpha S2 CSN1S2 F:TGCTGTTCCCATTACTCCC
R:TCTGGTAACGCTGGCTGA
173
酪蛋白beta CSN2 F:GAGGAATCTATTACACGCATCA
R:TTTGTGGGAGGCTGTTAT
160
酪蛋白kappa CSN3 F:GCCCAGGAGCAAAACCAAGA
R:GGACTTGGCAGGCACAGTAT
264
脑富集Ras同源物RHEB F:ACAGCTGGGCAGGATGAATA
R:GACTCTGCTAACGCTTTCCCT
239
哺乳动物雷帕霉素靶蛋白mTOR F:AAAGGCATGTTCGAGGTGCT
R:GCTGCTTGGAGATTCGTCTG
211
真核翻译起始因子4E结合蛋白1 EIF4EBP1 F:CACTAGCCCTACAGGCGAT
R:GCTGGTGTCCACGAAGAAGA
298
核糖体蛋白S6 RPS6 F:GAACATCTCTTTCCCGGCCA
R:AGGGGCTTTCGCACAACATA
477
真核翻译起始因子4E eIF4E F:AACGAGGAGGACGATGGCTA
R:AGCCGCTCTTAGTAGCTGTG
303
真核翻译起始因子4B eIF4B F:GTAGAAGAGCGGCTACAGA
R:GTTCCCGTTCCTGAGTTT
124
丙酮酸脱氢酶激酶1 PDK1 F:TGGTGGAAAAGGCAAAGGA
R:TGTGATAGAGGTGGGATGGTA
221
核糖体蛋白S6激酶beta-1 S6K1 F:CACCTGTTGACAGCCCAGAT
R:CGAGGGGATCGGATTTTTGG
139
磷酸甘油醛脱氢酶GAPDH F:GGCATCGTGGAGGGACTTATG
R:GCCAGTGAGCTTCCCGTTGAG
186
周期蛋白依赖性激酶4 CDK4 F:GTGACAAGTGGTGGGACAGT
R:GATACAGCCAACGCTCCACA
168
周期蛋白D1 CyclinD1 F:CATGAACTACCTGGACCGCT
R:TCTTGGAGAGGAAGTGCTCG
260
周期蛋白D2 CyclinD2 F:CACCGATGTGGATTGCCTCA
R:TCCAGCTCATCCTCCGACTT
117
增殖细胞核抗原PCNA F:TCCAGAACAAGAGTATAGC
R:TACAACAGCATCTCCAAT
94

1.2.7 酶联免疫吸附试验(ELISA)

将mtr-miR156a mimic和mimic NC在BMECs中过表达48 h后,按照ELISA检测试剂盒说明书处理样品,通过多功能酶标仪检测450 nm处的OD值,并绘制标准曲线,分析过表达mtr-miR156a后BMECs培养液上清液中酪蛋白的含量。

1.3 数据统计分析

每组数据至少设置3个生物学重复和3个技术学重复。qRT-PCR结果采用2-ΔΔCt进行表示,使用GraphPad Prism 7软件的t检验对qRT-PCR结果和双荧光素酶结果作图并进行差异显著性分析,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 生物信息学分析预测mtr-miR156a靶基因

通过在线生物学软件分析预测mtr-miR156a在奶牛体内靶基因,并对预测的靶基因进行KEGG通路富集分析,结果发现,靶基因主要富集在脂肪酸降解通路、Ras信号通路和丝裂原活化蛋白激酶(MAPK)信号通路,还包括富集在PI3K/Akt/mTOR信号通路,其中预测候选靶基因数量有28个,表明mtr-miR156a可能对奶牛体内脂肪酸降解、细胞生长和分化以及蛋白质合成和分泌等都具有调控作用。

2.2 mtr-miR156a调控蛋白质合成相关靶基因的筛选

在预测到的所有靶基因中筛选出mtr-miR156a调控蛋白质合成相关的17个靶基因,包括热休克蛋白90α家族B类成员1(HSP90AB1)、促红细胞生成素产生肝细胞受体A2(EPHA2)、白细胞介素-4受体(IL4R)、PIK3R2、鸟嘌呤核苷酸结合蛋白亚基β4(GNB4)、Janus激酶1(JAK1)、鸟嘌呤核苷酸结合蛋白亚基β5(GNB5)、血管内皮生长因子A(VEGFA)、PPP2R5D、成纤维细胞生长因子2(FGF2)、MET原癌基因受体酪氨酸激酶(MET)、血小板衍生的生长因子亚基A(PDGFA)、成纤维细胞生长因子5(FGF5)、KIT配体(KITLG)、血小板反应蛋白2(THBS2)、Janus激酶3(JAK3)和Ras相关C3肉毒杆菌毒素底物1(RAC1),然后在RNAhybrid在线网站上进行比对,最终筛选出8个候选靶基因3' UTR与mtr-miR156a种子区碱基全部结合且符合自由能阈值的靶基因,预测这些靶基因可能参与乳蛋白合成代谢。
表3 候选靶基因信息

Table 3 Candidate target gene information

候选靶基因名称
Candidate target gene name
候选靶基因3' UTR与mtr-miR156a种子区结合碱基数量
Number of bases binding to 3' UTR of candidate
target genes and mtr-miR156a seed region/个
自由能阈值
Free energy
threshold/
(kcal/mol)
热休克蛋白90α家族B类成员1 HSP90AB1 7 -20.2
促红细胞生成素产生肝细胞受体A2 EPHA2 7 -20.7
白细胞介素-4受体IL4R 3 -20.3
磷酸肌醇3激酶调控亚单位2 PIK3R2 7 -26.3
鸟嘌呤核苷酸结合蛋白亚基β4 GNB4 6 -24.2
Janus激酶1 JAK1 5 -24.4
鸟嘌呤核苷酸结合蛋白亚基β5 GNB5 7 -21.6
血管内皮生长因子A VEGFA 3 -20.9
丝氨酸/苏氨酸蛋白磷酸酶2A 56 kDa
调节亚基delta亚型
PPP2R5D
7 -20.9
成纤维细胞生长因子2 FGF2 7 -27.1
MET原癌基因受体酪氨酸激酶MET 7 -22.0
血小板衍生的生长因子亚基A PDGFA 5 -22.5
成纤维细胞生长因子5 FGF5 4 -21.6
KIT配体KITLG 6 -21.3
血小板反应蛋白2 THBS2 7 -22.5
Janus激酶3 JAK3 4 -26.3
Ras相关C3肉毒杆菌毒素底物1 RAC1 6 -23.6

1 kcal≈4.184 kJ。

2.3 候选靶基因PPP2R5DPIK3R2重组质粒的构建

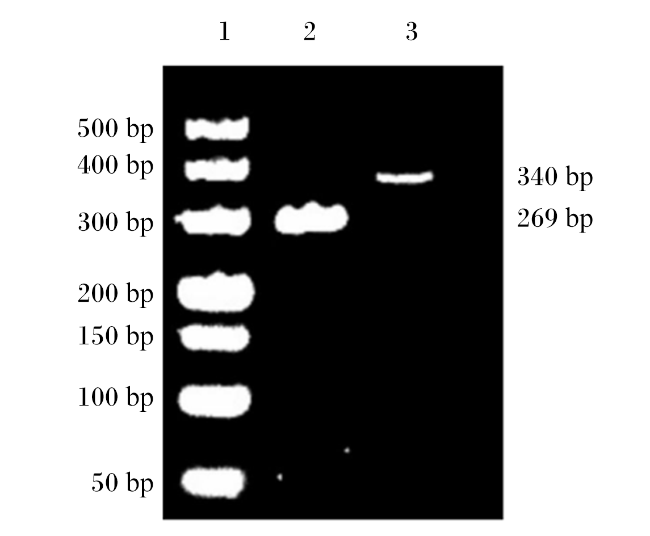
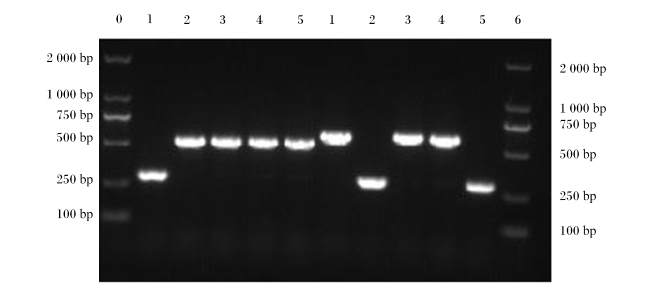
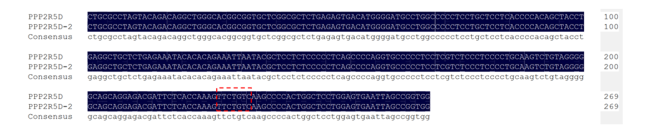
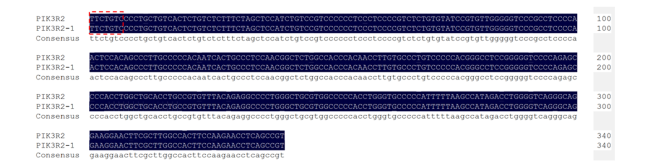
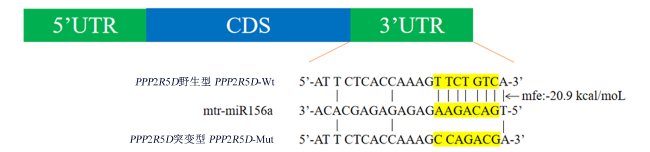
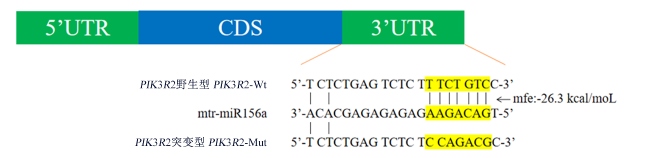
图1所示,通过PCR仪扩增、琼脂糖凝胶电泳以及在凝胶成像仪中显示后,加了Xho Ⅰ和Not Ⅰ酶切位点的PPP2R5DPIK3R2产物长度分别为269和340 bp。经过DNA片段纯化回收、双酶切、载体连接和细菌转化后,菌液PCR如图2所示,PPP2R5D在左侧第2、3、4和5泳道的片段大小为555 bp左右,与目的片段大小一致;PIK3R2在右侧第1、3和4泳道的片段大小为626 bp左右,与目的片段大小一致,因此使用相对应编号的新鲜菌液送检进行DNA碱基测序。测序结果如图3图4所示,通过DNAMAN 5.2.9软件进行序列比对分析发现,PPP2R5D-2的测序结果与PPP2R5D的3' UTR序列一致,PIK3R2-1的测序结果与PIK3R2的3' UTR序列一致,图中用红色虚框标注的是mtr-miR156a种子区与mRNA的结合位点,表明PPP2R5DPIK3R2野生型重组质粒(psiCHECK-2-PPP2R5D-Wt和psiCHECK-2-PIK3R2-Wt)构建成功。构建突变型重组质粒时将PPP2R5DPIK3R2结合位点碱基TTCTGTC突变为CCAGACG,如图5图6所示。
图1 PCR扩增3' UTR序列琼脂糖凝胶电泳图

第1泳道是DNA marker,第2泳道是PPP2R5D的3' UTR扩增产物琼脂糖凝胶电泳图,第3泳道是PIK3R2的3' UTR扩增产物琼脂糖凝胶电泳图。

Fig.1 Agarose gel electrophoresis of 3' UTR sequence amplified by PCR

Lane 1 was DNA marker, lane 2 was agarose gel electrophoretogram of 3' UTR amplification product of PPP2R5D, and lane 3 was agarose gel electrophoretogram of 3' UTR amplification product of PIK3R2.

图2 菌液PCR扩增重组质粒琼脂糖凝胶电泳图

左侧第0泳道和右侧第6泳道是DNA marker,左侧第1、2、3、4和5泳道是PPP2R5D菌液PCR产物琼脂糖凝胶电泳图,右侧第1、2、3、4和5泳道是PIK3R2菌液PCR产物琼脂糖凝胶电泳图。

Fig.2 Agarose gel electrophoresis of recombinant plasmid amplified by PCR from bacterial solution

Lane 0 on the left and lane 6 on the right were DNA markers; lanes 1, 2, 3, 4 and 5 on the left were agarose gel electrophoretogram of PCR products of PPP2R5D bacterial solution, and lanes 1, 2, 3, 4 and 5 on the right are agarose gel electrophoretogram of PCR products of PIK3R2 bacterial solution.

图3 psiCHECK-2-PPP2R5D-Wt与PPP2R5D的3' UTR序列对比图

第1行为PPP2R5D的3' UTR序列,第2行为psiCHECK-2-PPP2R5D-Wt测序序列,第3行为共同序列。

Fig.3 Comparison of 3' UTR sequences of psiCHECK-2-PPP2R5D-Wt and PPP2R5D

The first line was PPP2R5D 3' UTR sequences, the second line was psiCHECK-2-PPP2R5D-Wt sequences, and the third line was consensus sequences.

图4 psiCHECK-2-PIK3R2-Wt与PIK3R2的3' UTR序列对比图

第1行为PIK3R2的3' UTR序列,第2行为psiCHECK-2-PIK3R2-Wt测序序列,第3行为共同序列。

Fig.4 Comparison of 3' UTR sequences of psiCHECK-2-PIK3R2-Wt and PIK3R2

The first line was PIK3R2 3' UTR sequences, the second line was psiCHECK-2-PIK3R2-Wt sequences, and the third line was consensus sequences.

图5 mtr-miR156a与PPP2R5D结合位点和自由结合能值以及PPP2R5D突变型载体突变位点

5' UTR:5' 非翻译区 5' untranslated region;CDS:编码DNA序列 coding DNA sequence;3' UTR:3' 非翻译区 3' untranslated region;mfe:最小自由能 minimum free energy。图6同 the same as Fig.6

Fig.5 Binding sites and free binding energy values of mtr-miR156a and PPP2R5D as well as mutation sites of PPP2R5D mutant vector

图6 mtr-miR156a与PIK3R2结合位点和自由结合能值以及PIK3R2突变型载体突变位点

Fig.6 Binding sites and free binding energy values of mtr-miR156a and PIK3R2 as well as mutation sites of PIK3R2 mutant vector

2.4 mtr-miR156a与PPP2R5DPIK3R2结合位点的分析鉴定

图7所示,在所有筛选出来的靶基因中,PPP2R5DPIK3R2与mtr-miR156a的种子区碱基全部结合,且自由结合能值较大,分别为-20.9和-26.3 kcal/moL(1 kcal≈4.184 kJ),因此选择PPP2R5DPIK3R2进行双荧光素酶报告检测。
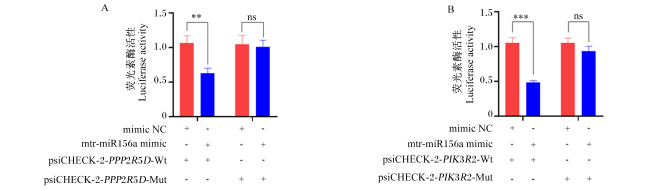
图7 mtr-miR156a与PPP2R5DPIK3R2基因双荧光素酶活性检测结果

A:mtr-miR156a靶向结合PPP2R5D后双荧光素酶活性检测结果;B:mtr-miR156a靶向结合PIK3R2后双荧光素酶活性检测结果。

*表示P<0.05,**表示P<0.01,***表示P<0.001,ns表示无显著差异(P>0.05)。下图同。

Fig.7 Detection results of dual-luciferase activity of mtr-miR156a with PPP2R5D and PIK3R2 genes

A: assay results of dual-luciferase activity after mtr-miR156a targeted binding to PPP2R5D: B: assay results of dual-luciferase activity after mtr-miR156a targeted binding to PIK3R2.

* mean P<0.05, ** mean P<0.01, *** mean P<0.001, and ns mean no significant difference (P>0.05). The same as below.

2.5 mtr-miR156a与候选靶基因靶向关系的鉴定

利用双荧光素酶报告基因试验验证mtr-miR156a与PPP2R5DPIK3R2的靶向关系。如图7-A所示,与psiCHECK-2-PPP2R5D-Wt与mimic NC共转染相比,将psiCHECK-2-PPP2R5D-Wt与mtr-miR156a mimic共转染HEK-293T,荧光素酶活性降低了大约40%(P<0.01);而与psiCHECK-2-PPP2R5D-Mut与mimic NC共转染相比,psiCHECK-2-PPP2R5D-Mut与mtr-miR156a mimic共转染HEK-293T,荧光素酶活性差异不显著(P>0.05)。如图7-B所示,与psiCHECK-2-PIK3R2-Wt与mimic NC共转染相比,将psiCHECK2-PIK3R2-Wt与mtr-miR156a mimic共转染HEK-293T,荧光素酶活性降低了大约40%(P<0.01);而与psiCHECK-2-PIK3R2-Mut与mimic NC共转染相比,psiCHECK-2-PIK3R2-Mut和mtr-miR156a mimic共转染HEK-293T,荧光素酶活性差异不显著(P>0.05)。

2.6 过表达mtr-miR156a对BMECs中PPP2R5DPIK3R2表达的影响

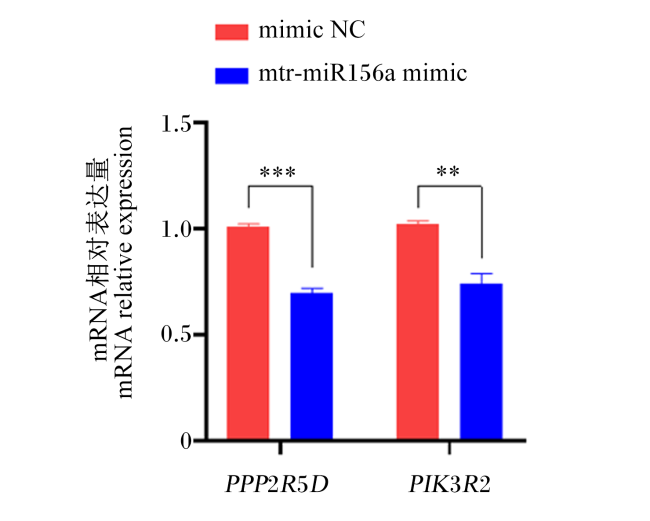
图8所示,进一步通过qRT-PCR检测发现,在BMECs中过表达mtr-miR156a后,PPP2R5DPIK3R2相对表达量都极显著下降(P<0.01)。这表明在BMECs中mtr-miR156a可以特异性靶向结合PPP2R5DPIK3R2并下调其表达。
图8 过表达mtr-miR156a对BMECs中PPP2R5DPIK3R2表达的影响

PPP2R5D:丝氨酸/苏氨酸蛋白磷酸酶2A 56 kDa调节亚基delta亚型 serine/threonine-protein phosphatase 2A 56 kDa regulatory subunit delta isoform;PIK3R2:磷酸肌醇3激酶调控亚单位2 phosphoinositide-3-kinase regulatory subunit 2。

Fig.8 Effects of overexpression of mtr-miR156a on expression of PPP2R5D and PIK3R2 in BMECs

2.7 过表达mtr-miR156a对BMECs乳蛋白合成通路相关基因表达的影响
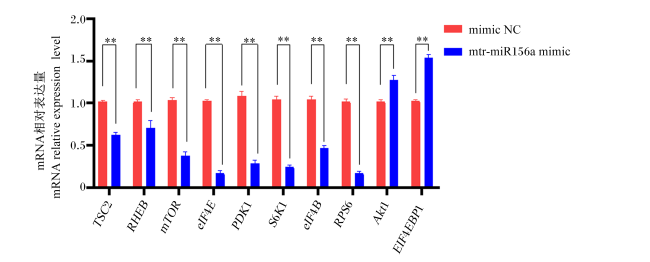
图9所示,在BMECs中过表达mtr-miR156a,与mimic NC处理相比,mtr-miR156a mimic处理极显著降低丙酮酸脱氢酶激酶1(PDK1)、核糖体蛋白S6激酶beta-1(S6K1)、真核翻译起始因子4B(eIF4B)、核糖体蛋白S6(RPS6)、结节性硬化症复合物亚基2(TSC2)、脑富集Ras同源物(RHEB)、mTOR和真核翻译起始因子4E(eIF4E)相对表达量(P<0.01),极显著提高蛋白激酶B1(Akt1)和真核翻译起始因子4E结合蛋白1(EIF4EBP1)相对表达量(P<0.01)。这表明mtr-miR156a通过靶向结合PPP2R5DPIK3R2会影响PI3K/Akt/mTOR信号通路中PDK1、S6K1、eIF4BRPS6、Akt1、TSC2、RHEBmTOReIF4EEIF4EBP1等基因的表达。
图9 过表达mtr-miR156a对BMECs乳蛋白合成通路相关基因表达的影响

TSC2:结节性硬化症复合物亚基2 tuberous sclerosis complex 2;RHEB:脑富集Ras同源物 Ras homolog enriched in brain;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;eIF4E:真核翻译起始因子4E eukaryotic translation initiation factor 4E;PDK1:丙酮酸脱氢酶激酶1 pyruvate dehydrogenase kinase 1;S6K1:核糖体蛋白S6激酶beta-1 ribosomal protein S6 kinase beta-1;eIF4B:真核翻译起始因子4B eukaryotic translation initiation factor 4B;RPS6:核糖体蛋白S6 ribosomal protein S6;Akt1:蛋白激酶B1 protein kinase B1;EIF4EBP1:真核翻译起始因子4E结合蛋白1 eukaryotic translation initiation factor 4E binding protein 1。

Fig.9 Effects of overexpression of mtr-miR156a on expression of genes related to milk protein synthesis pathway in BMECs

2.8 过表达mtr-miR156a对BMECs中酪蛋白基因表达的影响

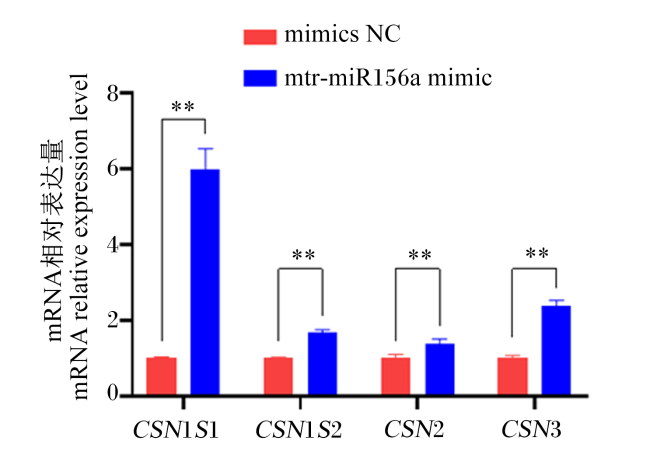
进一步探究过表达mtr-miR156a对BMECs中酪蛋白基因表达的影响,将mtr-miR156 mimic和mimic NC转染BMECs 48 h后,通过qRT-PCR检测酪蛋白基因的表达,结果如图10所示。与mimic NC处理相比,mtr-miR156a mimic处理极显著提高酪蛋白alpha S1(CSN1S1)、酪蛋白alpha S2(CSN1S2)、酪蛋白beta(CSN2)和酪蛋白kappa(CSN3)相对表达量(P<0.01),这表明在BMECs中,过表达mtr-miR156a会促进α酪蛋白、β酪蛋白和κ酪蛋白在mRNA水平上的表达。
图10 过表达mtr-miR156a对BMECs中酪蛋白基因表达的影响

CSN1S1:酪蛋白alpha S1 casein alpha S1;CSN1S2:酪蛋白alpha S2 casein alpha S2;CSN2:酪蛋白beta casein beta;CSN3:酪蛋白kappa casein kappa。

Fig.10 Effects of overexpression of mtr-miR156a on expression of casein genes in BMECs

2.9 过表达mtr-miR156a对BMECs培养液上清液中酪蛋白含量的影响

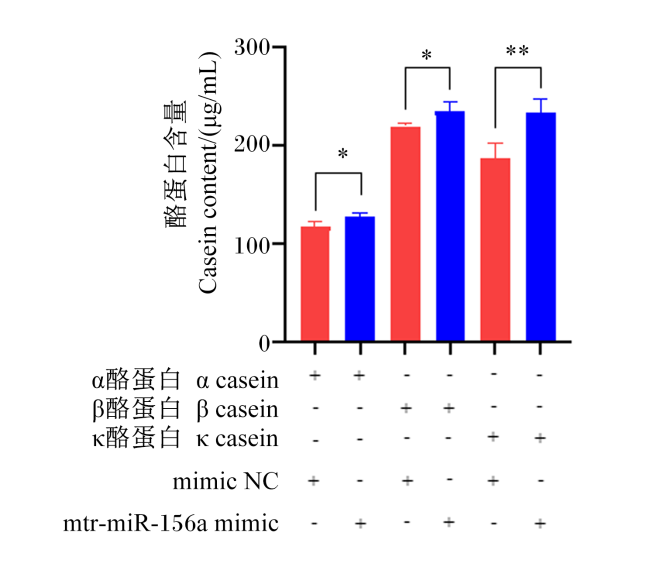
进一步检测过表达mtr-miR156a对BMECs培养液上清液中酪蛋白含量的影响,通过ELISA法检测α酪蛋白、β酪蛋白和κ酪蛋白含量,结果如图11所示,与mimic NC处理相比,mtr-miR156a mimic处理显著提高上清液中α酪蛋白和β酪蛋白含量(P<0.05),极显著提高上清液中κ酪蛋白含量(P<0.01),这与mRNA水平上的表达趋势一致,表明mtr-miR156a会促进BMECs中α酪蛋白、β酪蛋白和κ酪蛋白的合成。
图11 过表达mtr-miR156a对BMECs培养液上清液中酪蛋白含量的影响

Fig.11 Effects of overexpression of mtr-miR156a on casein contents in supernatant of BMECs culture medium

3 讨论

奶牛泌乳期乳腺上皮细胞的代谢活动,受乳汁合成及分泌机制的即时调整,并受一些重要的泌乳基因转录调控的影响[4]。miRNA在BMECs生长和乳蛋白合成及泌乳阶段起着重要的调控作用,但外源性植物miRNA的具体调控机制尚未得到深入研究,因此探索苜蓿miR156a在BMECs的靶基因及其对乳蛋白合成的调控具有重要意义,可为优质乳生产营养调控技术提供新思路。

3.1 mtr-miR156a在BMECs中靶基因PPP2R5DPIK3R2的发现

miRNA作用方式主要是通过碱基互补配对结合到靶基因mRNA的3' UTR上,导致mRNA发生翻译抑制或脱腺苷化和降解[5]。本研究主要通过联川生物云平台和TargentScan 2个在线网站,预测mtr-miR156a在牛体内的靶基因,初步筛选出了mtr-miR156a的17个参与蛋白质合成代谢的候选靶基因,并通过RNAhybrid发现了8个候选靶基因mRNA,其中有的基因没有与mtr-miR156a的种子区全部结合,或者最小结合自由能值较大,结合不稳定,这为靶基因鉴定过程增加了难度。最终筛选出PPP2R5DPIK3R2进行验证,通过双荧光素酶报告基因鉴定发现,PPP2R5DPIK3R2可以与mtr-miR156a靶向结合,进一步通过qRT-PCR试验进行验证,发现mtr-miR156a显著抑制了PPP2R5DPIK3R2在mRNA水平上的表达,因此确定了PPP2R5DPIK3R2是mtr-miR156a在BMECs中的靶基因。
PPP2R5D位于牛第23号染色体上,全长23 307 bp,包含16个外显子,mRNA全长2 965 bp,编码DNA序列(CDS)全长1 803 bp,编码600个氨基酸。PPP2R5D参与人神经发育障碍等[6-7]PIK3R2位于牛第7号染色体上,全长12 618 bp,包含16个外显子,mRNA全长3 705 bp,CDS全长2 175 bp,编码724个氨基酸。PIK3R2是PI3K的一种普遍存在的亚型[8]PIK3R2被认为是肿瘤驱动因子,可以作为多种癌症的标志物[9]PPP2R5DPIK3R2都位于PI3K/Akt/mTOR信号通路。PI3K/Akt/mTOR信号通路对动物乳蛋白合成与分泌发挥着调控作用[10],但在奶牛乳蛋白合成的研究中,尚未见PPP2R5DPIK3R2调控机制方面的研究报道,有待进一步的研究与挖掘。
PI3K/Akt/mTOR信号通路与乳蛋白合成密切相关。如卵巢癌G蛋白偶联受体1(OGR1)可以通过阻断山羊乳腺上皮细胞中的PI3K/Akt/mTOR信号通路来抑制山羊乳腺上皮细胞的增殖并下调β酪蛋白的合成[11];chi-miR3031可通过下调胰岛素样生长因子结合蛋白5(IGFBP5)表达水平激活PI3K/Akt/mTOR通路并改善β酪蛋白的表达[12];miR-574-5p通过下调丝裂原活化蛋白激酶激酶激酶9(MAP3K9)和蛋白激酶B3(Akt3)抑制PI3K/Akt/mTOR通路的哺乳动物靶点,进而减少山羊乳腺上皮细胞中β酪蛋白的合成[13]。本试验通过双荧光素酶报告验证了外源植物mtr-miR156a可以跨界靶向PPP2R5DPIK3R2这2个位于PI3K/Akt/mTOR信号通路的基因,而在PI3K/Akt/mTOR信号通路中,PPP2R5DPIK3R2作为Akt1、EIF4EBP1、PDK1、S6K1、eIF4BRPS6、TSC2、RHEBmTOReIF4E的上游基因,也会调控其基因的表达最终调控BMECs中乳蛋白的合成。这为进一步探究外源植物mtr-miR156对奶牛乳蛋白的调控作用的分子机制提供了可进一步深入研究的信号通路。

3.2 mtr-miR156a可促进奶牛牛奶中乳蛋白的合成

牛奶是人类重要的营养物质,提高牛奶品质已是家畜遗传改良的重要目标之一,表观遗传学修饰已被证明与乳腺发育有关,但其影响的潜在机制尚且未知。乳蛋白在生物体内的来源主要有2种,一种是由乳腺上皮细胞利用血液中游离氨基酸或小肽从头合成[14],这部分占乳蛋白中的绝大多数,包括酪蛋白、α-乳清蛋白和β-乳球蛋白[15];另一种则是经血液转运而来,如免疫球蛋白和血清蛋白[16]。泌乳奶牛乳腺具有很高的代谢活性,乳腺中蛋白质合成量约占整个机体全部蛋白质合成量的40%以上。影响泌乳奶牛乳中蛋白质含量和产量的因素有很多,但主要受到遗传、营养、环境和管理等因素影响。近年来随着分子生物学技术的发展,发现乳蛋白合成受到一个复杂的信号转导系统调控,主要包括氨基酸转运载体系统、乳蛋白合成的转录调控系统及翻译调控系统[17]。在相关的研究中,miRNA也被发现参与了奶牛乳腺的发育和泌乳功能[18-20]。miRNA可以作用于泌乳相关激素受体的靶基因后调控乳蛋白合成,如在BMECs中miR-15a可以通过与生长激素受体(GHR)的mRNA结合并抑制其表达,进而抑制BMECs的增殖和酪蛋白的合成[21]。此外,miRNA还可以直接调控编码乳成分合成基因的表达。在对奶山羊的酪蛋白基因CSN1S1、CSN1S2、CSN2和CSN3的3' UTR进行重测序后发现了5个单核苷酸多态性(SNP)位点,并且这些位点正好位于预测的多种miRNA种子序列的互补区[22]。miRNA可能通过与此区域的突变相互作用,调节乳中各种酪蛋白。酪蛋白在奶牛乳蛋白成分中所占的比例较高,有研究通过收集细胞上清液使用β酪蛋白ELISA试剂盒进行β酪蛋白含量检测[23]。因此,本研究也选择通过检测酪蛋白基因的表达和含量来探究mtr-miR156a对奶牛乳蛋白合成的调控机制。本研究结果表明,过表达mtr-miR156a会促进BMECs中CSN1S1、CSN1S2、CSN2和CSN3 mRNA的表达和提高BMECs培养液中酪蛋白的含量,由此发现mtr-miR156a可以促进BMECs中酪蛋白的合成。另有研究表明,一些内源性的miRNA也会调控奶牛乳蛋白的合成,如miR-29可以靶向BMECs中DNA甲基转移酶3A(DNMT3A)和DNA甲基转移酶3B(DNMT3B)促进酪蛋白、乳脂和乳糖的标志基因表达,对BMECs的泌乳能力具有积极的作用[24]。miR-486可以靶向磷酸酶与张力蛋白同源物(PTEN)刺激BMECs增殖并分泌酪蛋白、乳脂和乳糖,促进奶牛乳蛋白的合成和分泌[25]。miR-139通过靶向信号转导与转录激活因子(STAT)5/Akt/mTOR信号通路中GHR和胰岛素样生长因子1受体(IGF1R),抑制BMECs中酪蛋白的合成和表达[26]。miR-221通过靶向PI3K/Akt/mTOR信号通路和Janus激酶(JAK)/STAT信号通路中的关键基因STAT5a和胰岛素受体底物1(IRS1),抑制BMECs的增殖,参与奶牛乳蛋白的合成与乳腺的发育[27]
乳蛋白不仅是影响乳品质的关键因素,也是育种的主要目标性状,乳蛋白的合成涉及多基因网络调控和信号转导。本研究发现,mtr-miR156a可提高牛奶中酪蛋白编码基因在mRNA和蛋白水平的表达,一方面可为揭示苜蓿分子提高奶牛乳蛋白调控机制和进一步高效利用苜蓿分子提高奶牛乳蛋白含量提供科学依据;另一方面,也可为深入研究其他外源性饲料miRNA调控奶牛乳品质形成提供参考。

4 结论

① 本研究发现了mtr-miR156a在BMECs中的PPP2R5DPIK3R2这2个靶基因,且这2个靶基因位于PI3K/Akt/mTOR信号通路。
② 过表达mtr-miR156a可极显著上调Akt1和EIF4EBP1表达,极显著下调PDK1、S6K1、eIF4BRPS6、TSC2、RHEBmTOReIF4E等表达。
③ 过表达mtr-miR156a会极显著上调酪蛋白编码基因CSN1S1、CSN1S2、CSN2和CSN3在mRNA水平上的表达,促进α酪蛋白、β酪蛋白和κ酪蛋白的合成。
[1]
WIGHTMAN B, HA I, RUVKUN G. Posttranscriptional regulation of the heterochronic gene lin-14 by lin-4 mediates temporal pattern formation in C. elegans[J]. Cell, 1993, 75(5):855-862.

DOI PMID

[2]
AQUILANO K, CECI V, GISMONDI A, et al. Adipocyte metabolism is improved by TNF receptor-targeting small RNAs identified from dried nuts[J]. Communications Biology, 2019, 2(1):317.

DOI PMID

[3]
ZHANG L, HOU D X, CHEN X, et al. Exogenous plant MIR168a specifically targets mammalian LDLRAP1:evidence of cross-kingdom regulation by microRNA[J]. Cell Research, 2012, 22(1):107-126.

DOI

[4]
STEFANON B, COLITTI M, GABAI G, et al. Mammary apoptosis and lactation persistency in dairy animals[J]. The Journal of Dairy Research, 2002, 69(1):37-52.

DOI

[5]
王延博. miRNA非经典作用模式及机制研究[D]. 博士学位论文. 南京: 南京大学, 2018.

WANG Y B. Study on the unconventional function of miRNA[D]. Ph.D. Thesis. Nanjing: Nanjing University, 2018. (in Chinese)

[6]
LIU R H, HUANG Y H, LI C Y, et al. A novel nonsense mutation in PPP2R5D is associated with neurodevelopmental disorders and shows incomplete penetrance in a Chinese pedigree[J]. Clinical Neurology and Neurosurgery, 2022, 223:107524.

DOI

[7]
OYAMA N, VANEYNDE P, REYNHOUT S, et al. Clinical,neuroimaging and molecular characteristics of PPP2R5D-related neurodevelopmental disorders:an expanded series with functional characterisation and genotype-phenotype analysis[J]. Journal of Medical Genetics, 2023, 60(5):511-522.

DOI

[8]
VALLEJO-DÍAZ J, CHAGOYEN M, OLAZABAL-MORÁN M, et al. The opposing roles of PIK3R1/p85α and PIK3R2/p85β in cancer[J]. Trends in Cancer, 2019, 5(4):233-244.

DOI

[9]
LIU Y N, WANG D, LI Z J, et al. Pan-cancer analysis on the role of PIK3R1 and PIK3R2 in human tumors[J]. Scientific Reports, 2022, 12(1):5924.

DOI PMID

[10]
ERSAHIN T, TUNCBAG N, CETIN-ATALAY R. The PI3K/AKT/mTOR interactive pathway[J]. Molecular BioSystems, 2015, 11(7):1946-1954.

DOI PMID

[11]
ZHU C, WANG L L, ZHU J R, et al. OGR1 negatively regulates β-casein and triglyceride synthesis and cell proliferation via the PI3K/AKT/mTOR signaling pathway in goat mammary epithelial cells[J]. Animal Biotechnology, 2021, 32(5):627-636.

DOI

[12]
CHEN K W, HOU J X, SONG Y X, et al. Chi-miR-3031 regulates beta-casein via the PI3K/AKT-mTOR signaling pathway in goat mammary epithelial cells (GMECs)[J]. BMC Veterinary Research, 2018, 14(1):369.

DOI PMID

[13]
LIU Y H, HOU J X, ZHANG M, et al. Circ-016910 sponges miR-574-5p to regulate cell physiology and milk synthesis via MAPK and PI3K/AKT-mTOR pathways in GMECs[J]. Journal of Cellular Physiology, 2020, 235(5):4198-4216.

DOI PMID

[14]
DAVIS S R, MEPHAM T B. Metabolism of L-(U-14C) valine,L-(U-14C) leucine,L-(U-14C) histidine and L-(U-14C) phenylalanine by the isolated perfused lactating guinea-pig mammary gland[J]. Biochemical Journal, 1976, 156(3):553-560.

DOI

[15]
丁洛阳. 精氨酸酶调控奶牛乳腺中酪蛋白合成的分子机制[D]. 硕士学位论文. 扬州: 扬州大学, 2016.

DING L Y. Regulatory mechanism of arginase on casein synthesis in bovine mammary gland[D].Master's Thesis. Yangzhou: Yangzhou University, 2016. (in Chinese)

[16]
厉学武, 吕娟, 王利华, 等. 乳蛋白影响因素及营养调控的研究技术[J]. 饲料工业, 2009, 30(15):10-13.

LI X W, LV J, WANG L H, et al. Nutrition manipulation technique of lactoprotein and influencing factors[J]. Feed Industry, 2009, 30(15):10-13. (in Chinese)

[17]
HERSHEY J W B, SONENBERG N, MATHEWS M B. Principles of translational control[J]. Cold Spring Harbor Perspectives in Biology, 2019, 11(9):a032607.

DOI

[18]
DYSIN A P, BARKOVA O Y, POZOVNIKOVA M V. The role of microRNAs in the mammary gland development,health,and function of cattle,goats,and sheep[J]. Non-Coding RNA, 2021, 7(4):78.

DOI

[19]
HOU J X, AN X P, SONG Y X, et al. Detection and comparison of microRNAs in the caprine mammary gland tissues of colostrum and common milk stages[J]. BMC Genetics, 2017, 18(1):38.

DOI PMID

[20]
SANDHU G K, MILEVSKIY M J G, WILSON W, et al. Non-coding RNAs in mammary gland development and disease[J]. Advances in Experimental Medicine and Biology, 2016, 886:121-153.

DOI PMID

[21]
LI H M, WANG C M, LI Q Z, et al. MiR-15a decreases bovine mammary epithelial cell viability and lactation and regulates growth hormone receptor expression[J]. Molecules, 2012, 17(10):12037-12048.

DOI

[22]
ZIDI A, AMILLS M, TOMÁS A, et al. Short communication:genetic variability in the predicted microRNA target sites of caprine casein genes[J]. Journal of Dairy Science, 2010, 93(4):1749-1753.

DOI

[23]
DENG T X, WU J Y, ABDEL-SHAFY H, et al. Comparative genomic analysis of the thiolase family and functional characterization of the acetyl-coenzyme A acyltransferase-1 gene for milk biosynthesis and production of buffalo and cattle[J]. Journal of Agricultural and Food Chemistry, 2023, 71(7):3325-3337.

DOI

[24]
BIAN Y J, LEI Y, WANG C M, et al. Epigenetic regulation of miR-29s affects the lactation activity of dairy cow mammary epithelial cells[J]. Journal of Cellular Physiology, 2015, 230(9):2152-2163.

DOI PMID

[25]
LI D, XIE X J, WANG J, et al. MiR-486 regulates lactation and targets the PTEN gene in cow mammary glands[J]. PLoS One, 2015, 10(3):e0118284.

DOI

[26]
CUI Y J, SUN X, JIN L F, et al. MiR-139 suppresses β-casein synthesis and proliferation in bovine mammary epithelial cells by targeting the GHR and IGF1R signaling pathways[J]. BMC Veterinary Research, 2017, 13(1):350.

DOI PMID

[27]
JIAO B L, ZHANG X L, WANG S H, et al. MicroRNA-221 regulates proliferation of bovine mammary gland epithelial cells by targeting the STAT5a and IRS1 genes[J]. Journal of Dairy Science, 2019, 102(1):426-435.

DOI PMID

Outlines

/