REVIEW

Physiological Functions of n-6 Polyunsaturated Fatty Acids and Its Application in Beef Cattle Production

  • JIA Zhenwei , 1 ,
  • DU Liyin 1 ,
  • XIE Zhanfeng 2 ,
  • LYU Shichun 2
Expand
  • 1 Key Laboratory of Perinatal Disease Prevention and Control of Herbivorous Livestock, College of Animal Science and Technology, Inner Mongolia Minzu University, Tongliao 028043, China
  • 2 Lianmeng Farming Professional Cooperative in Horqin District of Tongliao City, Inner Mongolia Autonomous Region, Tongliao 028024, China

JIA Zhenwei, professor, E-mail:

Received date: 2023-06-22

  Online published: 2023-12-11

Abstract

n-6 polyunsaturated fatty acids are essential fatty acids for animals, which are closely related to lipid metabolism, immune function and reproductive performance. Many studies have shown that dietary supplementation of n-6 polyunsaturated fatty acids can not only promote the establishment of cow pregnancy and increase the conception rate, but also benefit fetal development, postnatal offspring health and growth performance, and improve the performance and meat quality of finishing cattle. In view of this, this paper reviewed the physiological functions of n-6 polyunsaturated fatty acids and elaborates on their application in beef cattle production, aiming to provide theoretical references for the scientific and reasonable application of n-6 polyunsaturated fatty acids to improve the reproductive function, health, and performance of beef cattle.

Cite this article

JIA Zhenwei , DU Liyin , XIE Zhanfeng , LYU Shichun . Physiological Functions of n-6 Polyunsaturated Fatty Acids and Its Application in Beef Cattle Production[J]. Chinese Journal of Animal Nutrition, 2023 , 35(12) : 7481 -7491 . DOI: 10.12418/CJAN2023.680

多不饱和脂肪酸(polyunsaturated fatty acids, PUFA)是动物机体必需脂肪酸,包括n-3、n-6、n-7和n-9系列PUFA,其中n-3PUFA和n-6PUFA不仅作为能源物质通过氧化代谢为动物细胞供能,也作为功能性营养素调节机体脂代谢、促进动物健康生长、增强机体免疫机能以及提高动物繁殖性能[1]。普遍认为,n-6PUFA广泛存在于植物油脂中,但仅有少量植物油脂中含有n-3PUFA,畜禽养殖过程中容易出现饲粮中n-6PUFA水平较高、n-3PUFA水平较低的情况,将影响畜禽机体的健康和产品品质。因此,目前国内外学者主要集中研究畜禽生产中n-3PUFA生理功能以及n-6PUFA/n-3PUFA比例平衡的营养作用[2-5],但对n-6PUFA的生理功能及其在畜禽生产中的应用关注相对较少。
n-6PUFA是动物的必需脂肪酸,与机体脂代谢、免疫机能和繁殖性能密切相关,参与调节动物健康及产品品质。研究表明,母牛妊娠早期饲粮补饲含有丰富的n-6PUFA的大豆油钙盐(calcium salts of soybean oil, CSSO)能够提高受胎率[6]。研究已证明,母源PUFA可通过胎盘转运至胎儿,进而影响胎儿的生长与发育[7]。更重要的是,妊娠后期母牛饲粮中补饲CSSO有利益于胎儿发育、犊牛健康和成年后的生长发育与生产性能,提示n-6PUFA发挥了胎儿程序化作用[8]。由此可见,n-6PUFA作为功能性营养素添加于肉牛饲粮中,有利于提高肉牛生产效率。基于以上原因,本文综述了n-6PUFA的生理功能,重点阐述其在肉牛生产中的应用,为生产上科学合理地应用n-6PUFA提升肉牛繁殖机能、改善健康和生产性能提供理论基础。

1 n-6PUFA主要种类和来源

n-6PUFA典型特征是其距羧基最远端的双键在倒数第6个碳原子。n-6PUFA主要包括短链的亚油酸、γ-亚麻酸和长链的花生四烯酸等(表1),其中亚油酸是合成n-6PUFA的起始脂肪酸,通过碳链延长、去饱和而增加碳链长度和不饱和度,从而生成后续的系列n-6PUFA[9]。亚油酸和γ-亚麻酸共存于葵花籽油、玉米油、大豆油等植物油脂中,但不同种类植物油中两者比例和含量相差较大,花生四烯酸的来源主要有蛋黄、动物脏器和深海鱼油等[10]。但由于瘤胃微生物的氢化作用,牛和羊等反刍动物饲粮中添加PUFA,使其利用效率较低,且直接添加PUFA对瘤胃微生物有一定程度的负效应,降低瘤胃纤维素的降解率,改变瘤胃微生物区系[11]。因此,反刍动物饲粮中添加PUFA需要对其进行保护处理,目前PUFA过瘤胃保护技术主要包括:甲醛蛋白包被技术、钙化处理技术、酰胺化处理技术、微胶囊技术等[12]

2 n-6PUFA主要生理功能

2.1 调控脂代谢

亚油酸是植物油脂中广泛存在的n-6PUFA,研究表明,饲粮添加适宜水平的亚油酸能够降低血液中总胆固醇和低密度脂蛋白(low-density lipoprotein, LDL)胆固醇含量,这似乎是亚油酸通过上调肝脏LDL受体基因和蛋白表达,从而促进肝脏清除循环血中的LDL[13]。目前已确定,亚油酸可能通过激活过氧化物酶体增殖物激活受体(peroxisome proliferator-activated receptors,PPARs)而增强肝脏X受体α(liver X receptor alpha, LXRα)基因的转录,LXRα能够促进编码调节胆固醇转化为胆汁酸途径的胆固醇7α-羟化酶(cholesterol 7α-hydroxylase, CYP7)基因表达,而且,针对于肝细胞利用胆固醇合成胆汁酸,LXRα数量和活性也随之增加,提示亚油酸可能通过增强CYP7的活性而催化胆固醇。另外,甾醇调节元件结合蛋白(sterol-regulatory element binding proteins,SREBPs)属于核受体超家族,通过调节胆固醇和脂肪酸代谢在调节脂质稳态中发挥关键作用。研究发现,SREBPs能够促进参与胆固醇吸收和胆固醇、脂肪酸及甘油三酯合成的基因表达,但其蛋白活性受SREBP裂解激活蛋白(SREBP cleavage-activating protein, SCAP)调控[14]。SCAP在内质网内与SREBPs结合后而进入高尔基体,SCAP裂解SREBPs而将其激活。更重要的是,研究发现亚油酸通过激活SCAP而增强SREBPs活性,进而上调低密度脂蛋白受体(low-density lipoprotein receptor, LDLR)表达而有利于清除循环血中的LDL胆固醇[15]。前蛋白转化酶枯草杆菌蛋白酶/kexin 9型(proprotein convertase subtilisin/kexin type 9, PCSK9)是一种主要由肝脏合成分泌的丝氨酸蛋白酶,能够与LDLR结合使其降解,亚油酸能够抑制PCSK9与LDLR结合,促进LDLR维持在肝细胞膜上,有利于进一步清除循环血中的LDL胆固醇[16]
另外,过氧化物酶体增殖物激活受体γ(peroxisome proliferators-activated receptors gamma,PPARγ)是核激素受体家族中的配体激活受体,参与调控早期胚胎滋养层细胞脂肪酸吸收和代谢、细胞增殖和分化,其在启动早期胚胎延长方面发挥了关键作用。母牛人工授精后早期胚胎妊娠识别和胚胎附植期间,子宫内膜上皮细胞分泌脂质进入子宫腔中的子宫乳。目前研究认为,子宫乳中含有丰富的n-6PUFA,早期胚胎滋养层吸收n-6PUFA能够激活PPARγ,PPARγ活化后能够上调诸多调控脂质合成和代谢的相关基因的表达,进而促进早期胚胎发育和胎盘的形成[17]

2.2 影响生殖激素的分泌

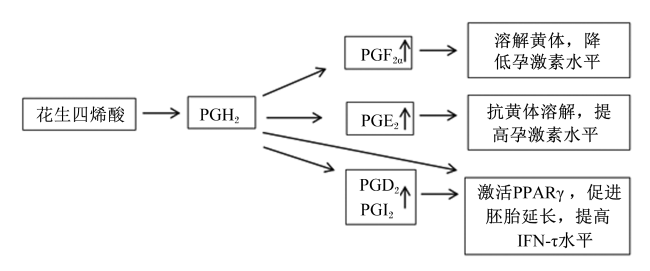
花生四烯酸是动物细胞膜磷脂的重要组成部分,细胞膜磷脂在胞质磷脂酶的作用下释放花生四烯酸,并在环氧合酶-1和2的作用下生成前列腺素H2(prostaglandin H2, PGH2)。随后,PGH2在特定前列腺素合酶的作用下生成PGF、PGE2、PGD2和PGI2等下游PG(图1)。众所周知,子宫内膜是PG的重要来源,PGF是大多数哺乳动物溶解黄体的主要因子,能够溶解母畜生理性黄体和病理性黄体,降低机体孕激素水平,并解除孕激素对下丘脑释放促性腺激素释放激素的抑制作用,诱导母畜恢复正常的发情周期。近年研究发现,PGF不仅具有溶解黄体的功能,而且可以降低机体孕激素水平,也参与调控早期胚胎发育和胚胎附植[18]
图1 花生四烯酸对生殖激素分泌的调节机制

PGH2:前列腺素H2 prostaglandin H2; PGF: 前列腺素F prostaglandin F; PGE2:前列腺素E2 prostaglandin E2; PGD2:前列腺素D2 prostaglandin D2;PGI2:前列腺素I2 prostaglandin I2; PPARγ:过氧化物酶体增殖物激活受体γ peroxisome proliferators-activated receptors gamma;IFN-τ:干扰素-Tau interferon-Tau。↑表示升高,↓表示降低 ↑ mean increased,and ↓mean decreased。

Fig.1 Regulatory mechanism of arachidonic acid on reproductive hormone secretion

雌性动物受胎早期,子宫上皮细胞利用花生四烯酸合成PGE2,具有抗黄体溶解的作用,通过影响一氧化氮的分泌而加速子宫卵巢血液循环,作用于卵巢黄体而促进其表达促黄体素受体,进而增强黄体合成孕激素,有利益于早期胚胎发育和胚胎附植[19]。另外,研究发现,雌性动物卵巢颗粒细胞、输卵管上皮细胞和早期胚胎也能利用花生四烯酸合成PGE2,其中卵巢颗粒细胞合成的PGE2,不仅通过介导促黄体激素信号而参与调控卵丘细胞扩散、卵母细胞减数分裂成熟和排卵过程,也能调节卵丘细胞外基质分解而促进精子进入卵母细胞[20],输卵管上皮细胞合成的PGE2具有免疫抑制潜力,能够抑制中性粒细胞胞外诱捕网的形成,提高精子存活和运动能力以及与卵子结合能力,进而提高受精率[21],早期胚胎细胞分泌PGE2作用于子宫内膜上皮细胞,通过调控参与细胞生长、分化和子宫容受性方面相关基因表达而促进胚胎附植[22]
此外,花生四烯酸及其代谢产物PGH2、PGD2和PGI2能够激活PPARγ而增强早期胚胎脂质代谢,从而促进胚胎延长,且牛、羊等反刍动物早期胚胎延长期间,胚胎滋养层细胞分泌干扰素-Tau(IFN-τ),作用于子宫内膜上皮细胞通过抑制催产素受体表达而阻止PGF的脉冲分泌,进而阻止其溶解黄体,有利于黄体持续分泌较高水平的孕酮而维持妊娠[23]。研究发现,IFN-τ能够促进子宫内膜花生四烯酸合成PGE2,降低PGF水平,提高PGE2/PGF比例,进一步阻止黄体溶解,促进孕激素的合成[24]

2.3 参与炎症反应

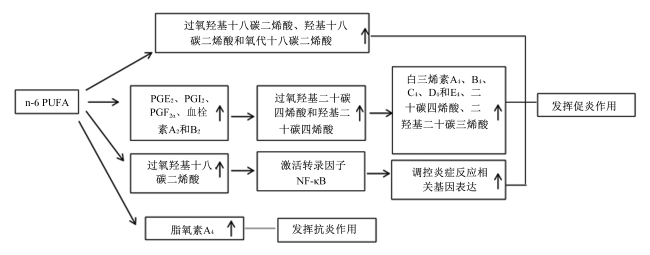
炎症是机体对于外界刺激或者身体内刺激的防御反应,能够修复机体带来的损伤,并维持内环境的稳态。动物受到应激或病原感染后,将引起代谢紊乱,并激活炎症信号通路而释放多种炎性因子。普遍认为,n-6PUFA是促进机体炎症反应的关键因子, 尤其花生四烯酸,通过环氧合酶2和系列前列腺素合酶的代谢途径生成PGE2、PGI2、PGF、血栓素A2和B2,经由脂氧合酶代谢途径生成过氧羟基二十碳四烯酸和羟基二十碳四烯酸,随后这些代谢物产生4系列的白三烯素A4、B4、C4、D4和E4,或通过细胞色素p450途径合成二十碳四烯酸和二羟基二十碳三烯酸[25](图2)。另外,亚油酸是合成花生四烯酸的前体脂肪酸,研究发现,亚油酸可通过环氧合酶2和脂氧合酶代谢途径生成过氧羟基十八碳二烯酸、羟基十八碳二烯酸和氧代十八碳二烯酸而参与调控炎症反应[26]
图2 n-6PUFA对炎症反应的调节机制

n-6PUFA: n-6多不饱和脂肪酸n-6 polyunsaturated fatty acids; PGE2:前列腺素E2 prostaglandin E2; PGI2:前列腺素I2 prostaglandin I2; PGF:前列腺素F prostaglandin F;NF-κB:核因子-κB nuclear factor-kappa B。↑表示升高,↓表示降低 ↑ mean increased,and ↓mean decreased。

Fig.2 Regulatory mechanism of n-6 PUFA on inflammatory reaction

PGE2被认为是强有力的促炎作用因子,不仅具有诱导发热、提高血管壁通透性、增强血管舒张、引起疼痛反应等作用,也能通过激活环氧合酶2而增强本身的合成,促进巨噬细胞合成白细胞介素-6。血栓素B2是一种强效的血管收缩剂和血小板活化剂。另外,4系列的白三烯素也是促炎作用的重要因子。例如,中性粒细胞和巨噬细胞产生的白三烯素B4具有促进白细胞趋化、黏附和脱颗粒,增强血管通透性产生疼痛感和炎症介质(超氧化物和炎症细胞因子)等功能[27]。肥大细胞、嗜酸性粒细胞和嗜碱性粒细胞产生的白三烯素C4、D4和E4通过影响小动脉和支气管收缩,增强血管通透性、黏液分泌、过敏和皮肤扩张而参与炎症反应过程调控[20]。花生四烯酸代谢不仅产生上述关键的促炎因子,且一些代谢产物也具有抗炎作用。例如,PGE2显著降低了脂多糖诱导体外培养人血细胞产生的肿瘤坏死因子(TNF)-α水平[28]。重要的是,PGE2通过增强15-脂氧合酶活性能够诱导脂氧素A4的产生,进而发挥抗炎作用[29]。此外,尽管亚油酸的代谢产物过氧羟基十八碳二烯酸能够激活核因子-κB(NF-κB)促进调控炎症反应相关基因表达而诱导炎症反应(图2),但摄入亚油酸未与血浆炎症标志物C-反应蛋白、白细胞介素-6和TNF受体水平呈显著正相关[30]。这些研究结果说明,n-6PUFA调节炎症反应的作用及其具体机制尚不十分明确,仍需深入探究。

2.4 其他功能

n-6PUFA不仅可通过氧化代谢为动物细胞提供能量,也是生物膜的重要组成部分,维持细胞质膜的完整性和流动性具有重要作用,且PUFA及其代谢产物作为重要的信号分子参与动物机体许多生理功能的调控。另外,花生四烯酸是单核细胞、巨噬细胞和淋巴细胞等免疫细胞膜含量最丰富的PUFA,研究发现,花生四烯酸代谢物广泛参与免疫细胞发育和功能的调控,包括T细胞增殖、巨噬细胞M2极化和Th1细胞因子的产生等[31-33]。研究发现,泌乳母鼠饲粮同时补充花生四烯酸和二十二碳六烯酸,促进了其后代免疫系统的发育,提示n-3PUFA和n-6PUFA协同作用有利于机体免疫系统发育[34]
另外,目前研究已明确,诸多花生四烯酸代谢产物参与调节免疫功能。例如,PGE2对T细胞激活存在剂量依赖反应,低浓度的PGE2抑制T细胞的增殖和分化,而高浓度的PGE2促进T细胞的增殖[35]。然而,PGD2对免疫细胞的影响依赖不同类型的受体,PGD2结合前列腺素D1(prostaglandin D1,DP1)受体促进T细胞凋亡,而其与DP2受体结合而抑制辅助性T细胞2凋亡[36]。此外,白三烯素D4和E4能够增强辅助性T细胞2的活性及其相关免疫因子的分泌,且在PGD2存在的条件下,白三烯素D4和E4免疫调节作用更强[37]

3 n-6PUFA在肉牛生产中的应用

3.1 提高肉牛繁殖机能

目前普遍认为,母牛带犊繁育体系是肉牛生产的基础,而母牛繁殖性能是决定肉牛产业经济效益的重要因素。肉牛人工授精后卵母细胞能够维持较高的受精率,但受胎后出现早期胚胎死亡现象,导致母牛受胎率较低,是肉牛生产的主要挑战。因此,采取有效措施促进母牛人工授精后胚胎发育、降低妊娠丢失十分必要。子宫是胚胎发育的独特场所,目前已明确,通过母体营养影响子宫内营养环境而调控早期胚胎发育是提升母牛繁殖机能的重要手段。近年代谢组研究发现,肉母牛早期胚胎发育期间,受胎率高的母牛子宫乳中不饱和脂肪酸含量显著高于受胎率低的肉牛,说明子宫内膜上皮腺体分泌不饱和脂肪酸是早期胚胎发育的重要营养素[38]。如上所述,n-3和n-6PUFA是重要的功能性不饱和脂肪酸,目前研究认为,肉母牛饲粮补充n-3PUFA,能够抑制子宫内膜合成PGF而促进妊娠识别和胚胎附植[39-40],但早期研究认为,n-6PUFA能够促进子宫内膜细胞合成PGF而诱导黄体溶解,不利于妊娠早期胚胎发育[41]。因此,饲粮补充n-6PUFA最初被认为对肉牛的繁殖性能有害。值得关注的是,CSSO含有丰富的过瘤胃n-6PUFA,Brandão 等[6]研究发现,肉母牛人工授精后饲粮补充CSSO(100 g/d)21 d,相对于补充饱和脂肪酸(87 g/d)和石粉(13 g/d)的对照,显著提高了受胎率。Lopes等[42]研究表明,放牧肉用母牛人工授精后饲粮补充CSSO(100 g/d)28 d,相对于补充棕榈酸皂钙(100 g/d)和未补充脂肪酸的对照,显著提高了受胎率。这些结果提示,母牛饲粮补充n-6PUFA似乎未损害其繁殖机能,且母牛受胎率的提高可能与早期胚胎发育时期n-6PUFA促进妊娠建立密切相关,而与其为胚胎发育供能无关,因为棕榈酸皂钙作为能源物质并未提高受胎率[42]
为了深入了解n-6PUFA影响母牛受胎率的作用机制,Cooke等[43]调查母牛饲粮补充n-6PUFA后,这些脂肪酸进入生殖组织情况及其调控妊娠相关的生理反应,将放牧母牛人工授精后的饲粮补充CSSO(100 g/d),饲喂19 d后屠宰,发现大量的亚油酸及其相关n-6PUFA进入血浆、子宫内膜、黄体和孕体中,说明补充CSSO可能增加了亚油酸的摄入量和肠道吸收量,进而亚油酸被整合、延长、去饱和,并积累到生殖组织中。更重要的是,Cipriano等[44]聚焦母牛妊娠期间妊娠信号传导至母体组织的孕体与子宫内膜互作反应,将放牧母牛人工授精后的饲粮补充CSSO(100 g/d),第15天通过用生理盐水经宫颈冲洗获取孕体和黄体同侧子宫角的子宫内膜进行活检获取内膜组织,第20天采集全血进行后续相关试验,发现饲粮补充CSSO不仅显著增加了孕体的长度、上调了孕体PGE合成酶和IFN-τ基因的mRNA表达量,也上调了全血中IFN-τ敏感相关基因的mRNA表达量,这些研究结果揭示,母牛人工授精后饲粮补充n-6PUFA可增强妊娠识别期孕体发育及其IFN-τ的分泌,进而提升受胎率,且孕体的长度增加和IFN-τ基因的mRNA表达量增加可能与花生四烯酸积累和PGE合成酶mRNA表达量增加相关,促进花生四烯酸代谢产生PGE2,与IFN-τ协同调节子宫内膜功能,这对受孕发育及其向母体传递妊娠信号至关重要。但饲粮补充CSSO未显著提高子宫内膜细胞PGE合成酶和IFN-τ基因的mRNA表达量,提示母牛妊娠识别期,n-6PUFA可能对子宫内膜影响较小,其主要通过特异性的影响孕体发育而提升受胎率[44]

3.2 调节肉牛发育和生产性能

胚胎期、胎儿期和新生儿期是动物生命中重要的发育阶段。此阶段母体营养状态将长期影响后代的生长、发育和代谢功能,被认为是发育过程中的程序化。雌性动物体内卵母细胞发育成熟、受精后胚胎发育至分娩阶段,胚胎和胎儿的发育对母体的营养状况十分敏感,甚至新生犊牛出生后早期,发育可塑性仍受到母体效应的影响。饲粮脂肪酸通过调节代谢组织中的基因表达而影响动物的发育程序化。目前认为,n-6PUFA能够促进肌肉内脂肪的积累。胎儿期是动物骨骼肌和肌内脂肪细胞发育至关重要的阶段[45]。因此,母牛在妊娠期补充n-6PUFA可能潜在增强胎儿的脂肪生成,从而有利于犊牛出生后发育至生命后期肌肉形成大理石花纹[46]
尽管饲粮PUFA作为功能营养素对早期胚胎和胎儿发育至关重要,但迄今为止,大多数研究主要集中于母体能量和蛋白质的摄入对其子代生长发育及代谢影响,而关于母源PUFA营养所发挥的母体效应关注较少。研究发现,妊娠后期母牛饲粮补充含有n-3和n-6PUFA的脂肪酸钙盐,相对于对照,显著提高了犊牛的日增重、热胴体重量、大理石花纹评分和背最长肌(longissimus muscle, LM)的面积,说明n-3和n-6PUFA对出生后犊牛生长实施了发育过程的程序化影响,但具体机制尚不明确,需要深入研究[47]。基于n-6PUFA具有促进机体促脂肪生成的作用,Brandão等[8]在妊娠后期母牛饲粮补充了CSSO,发现母牛及其新生犊牛血浆中亚油酸和总n-6PUFA含量显著高于对照(补充饱和脂肪酸),说明母体外周血脂肪酸通过胎盘转移到胎儿。而且,妊娠后期母牛饲粮补充CSSO也增加了犊牛初乳和血浆中免疫球蛋白G(IgG)的含量,降低了呼吸道疾病的发病率,提示母牛受胎期间饲粮补充n-6PUFA可能持久影响犊牛的免疫能力和发育[4]。另外,Brandão等[8]也发现,母牛饲粮补充CSSO提高了新生犊牛LM脂肪酸结合蛋白4(fatty acid binding protein 4, FABP4)、硬脂酰辅酶A去饱和酶(stearoyl coenzyme A desaturase, SCD)和PPARγ等与脂肪生成和肌肉发育相关的基因表达。目前已明确,n-6PUFA能够激活PPAR-γ诱导FABP4和SCD等脂肪生成基因表达而调节肉牛肌间脂肪的形成。这些研究结果说明,母牛饲粮补充CSSO,增加了母源n-6PUFA转移至胎儿的供应量,进而促进参与脂肪细胞分化和脂肪生成的基因表达。肌分化因子1(myogenic differentiation 1, MyoD1)和肌细胞生成素是肌细胞表达的肌源性调节因子,通过与现有肌肉纤维的融合分化而影响家畜出生后的肌肉生长。重要的是,Brandão等[8]研究发现,母牛饲粮补充CSSO,上调了新生犊牛LM的MyoD1和肌细胞生成素基因表达。配对盒蛋白7(paired box protein 7, PAX7)在新生动物肌肉生长过程中对肌肉卫星细胞的扩增和分化至关重要。值得注意的是,Shao等[48]研究发现,母牛饲粮补充含有丰富n-6PUFA的钙盐,显著提高了新生犊牛LM的PAX7基因表达。这些研究结果提示,妊娠母牛饲粮补充n-6PUFA通过促进胎儿肌肉细胞的分化和发育,从而增强成肌细胞的增殖,促进肌肉生成。但目前关于n-6PUFA影响胎儿脂肪细胞发育和肌肉生成具体机制尚不甚清楚,仍需进一步研究。尽管母牛妊娠期间补充n-6PUFA能够影响胎儿肌肉和脂肪的生成,但研究发现,母牛饲粮补充丰富的亚油酸仅提高后代育肥阶段饲料转化效率,未显著影响育肥肉牛胴体特性以及参与肌肉和脂肪组织发育的基因的表达,提示母源饲粮补充n-6PUFA可能对其后代肉牛育肥阶段肌肉和脂肪组织发育的影响较小[49]
动物出生后早期对营养干预的生物反应被定义为代谢印记,将持久影响出生后生长发育期间机体的生理功能。鉴于n-6PUFA脂肪酸在发育可塑性时期刺激脂肪细胞发育和肌肉生成的潜力,有研究将CSSO添加于犊牛发育早期饲粮中,用于增强胴体品质。例如,研究发现,犊牛出生后早期发育期间,饲粮补充n-6PUFA降低了肌内脂肪细胞平均直径,促进肌内脂肪组织增殖,说明n-6PUFA促进了肌肉脂肪细胞增生和分化[50]。但研究发现,犊牛5月龄时,饲粮补充n-6PUFA 110 d后屠宰,增加了腰肉牛排中的脂质含量,改善了大理石花纹[50],而犊牛7月龄时补充n-6PUFA,屠宰后未影响牛排肉质[51]。这些结果提示,年轻的动物似乎更容易受到n-6PUFA脂肪酸的代谢印记影响,在生命早期补充这些脂肪酸可能会产生更多的未分化干细胞,从而促进脂肪形成和分化。而且,研究发现,与对照相比,2月龄舍饲犊牛补饲CSSO显著提高了LM的FABP4、脂肪酸合成酶、PPAR-γSCD等基因的mRNA表达量,但犊牛断奶后饲粮补充CSSO未影响标志肌肉品质相关基因的表达,进一步说明,在生命早期通过CSSO补充n-6PUFA可影响肉牛肌肉内的脂肪生成,且在随后生长期间持续发挥作用[52]
此外,Nascimento等[53]研究发现,与对照组相比(未补充脂质),育肥公牛饲粮补充CSSO(主要含有n-6PUFA)或补充棕榈油、大豆油和棉籽油的混合钙盐(calcium salts of a mixture of palm, soybean, and cottonseed oils, CSMIX),显著提高了能量摄入量、饲喂效率、日增重和胴体品质,但育肥公牛饲粮补充CSSO,相对于饲粮补充CSMIX,未显著提升公牛生长性能和胴体品质。由于CSMIX主要含有饱和脂肪酸和单不饱和脂肪酸,而n-6PUFA相对较少,据此推测,饲粮添加n-6PUFA可能是通过改善能量密度而提升育肥公牛生长性能和胴体品质。然而,最近研究发现,育肥公牛饲粮补充CSMIX,相对于补充棕榈油钙盐和未补充脂质的对照,显著提高了日增重、饲喂效率、LM的面积、血清和LM的n-6PUFA含量,但具体机制尚不十分明确,由于CSMIX的n-6PUFA含量相对高于棕榈油钙盐,提示n-6PUFA可能在调控肉牛生长性能和胴体品质方面发挥了除供能之外的其他功能性的作用[54]

3.3 提升肉牛健康

目前研究已明确,反刍动物后代免疫机能和健康状况与妊娠后期母体补充PUFA改善胎儿发育和初乳品质密切相关。例如,研究发现母牛妊娠后期饲粮补充过瘤胃保护n-6PUFA提高了犊牛采食初乳后IgG吸收效率和血清IgG含量,降低了断奶前犊牛直肠温度[55-56]。重要的是,目前已确定,母畜初乳PUFA进入新生幼畜肠道细胞后能够上调IgG受体数量,进而促进肠道吸收IgG。另外,研究表明,母牛妊娠后期饲粮补充n-6PUFA,其所生的犊牛呼吸道疾病发病率较低[8]。这些研究结果提示,母牛妊娠后期饲粮补充过瘤胃保护n-6PUFA提升了所生犊牛免疫机能和健康,这与犊牛出生后高效吸收初乳IgG密切相关,进而影响随后犊牛的免疫机能和健康,降低其发病率和死亡率。但目前关于母源妊娠后期补充n-6PUFA对新生反刍动物肠道生理变化的影响研究较少,尚需深入探究。
此外,犊牛断奶和生长育肥牛运输进入饲养场是肉牛饲养过程中普遍存在的关键应激事件。肉牛受到断奶、饲粮改变、长途运输或混群等生理和物理性应激源刺激,诱导神经内分泌发生变化和炎症反应,直接损害牛的免疫机能,导致其呼吸道疾病发病率较高、生产性能下降。基于n-6PUFA调控动物机体的免疫机能特性,饲粮补充n-6PUFA可能是提升断奶犊牛和运输进入饲养场初期阶段育肥牛机体免疫机能的一种重要手段。值得注意的是,研究发现,生长育肥牛运输至饲养场后,以CSSO的形式补充n-6PUFA,降低了机体血浆炎症标志物的含量,说明n-6PUFA缓解了肉牛应激反应,但降低了肉牛采食量和日增重[57],进一步的研究发现,生长育肥牛运输进入饲养场前饲喂补充瘤胃保护n-6PUFA饲粮28 d,其进入饲养场后再饲喂补充瘤胃保护n-6PUFA能够显著提高育肥早期阶段日增重,可能通过降低机体促炎细胞因子分泌而缓解应激反应,进而提升肉牛的健康水平[58]

4 小结

综上所述,n-6PUFA在调控动物脂代谢、炎症反应、生物膜结构与功能以及免疫功能方面发挥了重要作用。n-6PUFA是促进机体炎症反应的关键因子,但其相关代谢产物也具有抗炎作用,但其抗炎作用及其具体机制尚不甚清楚,有待于进一步研究。n-6PUFA作为重要的功能性营养素,主要以CSSO的过瘤胃形式在肉牛饲粮中补充,通过特异性地影响孕体发育而提升受胎率,但关于其如何通过影响子宫内膜生理功能而促进胚胎附植及妊娠建立的研究甚少,未来需要深入研究。
另外,n-6PUFA在母牛娠妊后期和产后早期的犊牛发育可塑性时期实施发育过程中的程序化作用,可持久影响子代的健康、生长发育及生产性能。而且,n-6PUFA补饲于生长牛的饲粮中,可增强免疫活性、促进生长发育和改善胴体品质。因此,肉牛饲粮补充n-6PUFA可能是提高肉牛生产效率的有效途径,但关于不同添加量对肉牛繁殖性能、健康和生长性能影响的研究鲜见报道,尚需深入研究。
[1]
ROQUE-JIMÉNEZ J A, ROSA-VELÁZQUEZ M, PINOS-RODRÍGUEZ J M, et al. Role of long chain fatty acids in developmental programming in ruminants[J]. Animals, 2021, 11(3):762.

DOI

[2]
EBRAHIMI M, RAJION M A, JAFARI S, et al. Effects of dietary n-6∶n-3 polyunsaturated fatty acid ratios on meat quality,carcass characteristics,tissue fatty acid profiles,and expression of lipogenic genes in growing goats[J]. PLoS One, 2018, 13(8):e0188369.

DOI

[3]
薛永强, 余苗, 马永喜, 等. ω-3多不饱和脂肪酸对畜禽生理功能的影响及其应用的研究进展[J]. 动物营养学报, 2021, 33(9):4870-4881.

DOI

XUE Y Q, YU M, MA Y X, et al. Research progress on effects of ω-3 polyunsaturated fatty acids on physiological function of livestock and poultry and their application[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):4870-4881. (in Chinese)

[4]
徐文双, 王宝维, 张名爱, 等. 饲粮中n-6/n-3多不饱和脂肪酸比值对肉鹅生长性能、屠宰性能、血清脂质指标、肠道组织形态和胸肌脂肪酸组成的影响[J]. 动物营养学报, 2023, 35(3):1649-1657.

DOI

XU W S, WANG B W, ZHANG M A, et al. Effects of dietary n-6/n-3 polyunsaturated fatty acid ratio on growth performance,slaughter performance,serum lipid indices,intestinal morphology and breast muscle fatty acid composition of meat geese[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1649-1657. (in Chinese)

[5]
魏芳, 蒋苏苏, 田程程, 等. 添加植物油降低饲粮n-6/n-3多不饱和脂肪酸比值对生长肥育猪脂肪沉积和脂肪酸组成及脂代谢相关基因表达的影响[J]. 动物营养学报, 2023, 35(5):2867-2881.

DOI

WEI F, JIANG S S, TIAN C C et al. Effects of reducing dietary n-6/n-3 polyunsaturated fatty acid ratio with vegetable oil supplementation on fat deposition,fatty acid composition and expression of genes involved in lipid metabolism of growing-finishing pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):2867-2881. (in Chinese)

[6]
BRANDÃO A P, COOKE R F, SCHUBACH K M, et al. Supplementing Ca salts of soybean oil after artificial insemination increases pregnancy success in Bos taurus beef cows[J]. Journal of Animal Science, 2018, 96(7):2838-2850.

DOI

[7]
TAJONAR K, GONZALEZ-RONQUILLO M, RELLING A, et al. Toward assessing the role of dietary fatty acids in lamb’s neurological and cognitive development[J]. Frontiers in Veterinary Science, 2023, 10:1081141.

DOI

[8]
BRANDÃO A P, COOKE R F, SCHUBACH K M, et al. Supplementing Ca salts of soybean oil to late-gestating beef cows:impacts on performance and physiological responses of the offspring[J]. Journal of Animal Science, 2020, 98(8):skaa247.

DOI

[9]
SAINI R K, KEUM Y S. Omega-3 and omega-6 polyunsaturated fatty acids:dietary sources,metabolism,and significance-a review[J]. Life Sciences, 2018, 203:255-267.

[10]
GÓMEZ CANDELA C, BERMEJO LÓPEZ L M, LORIA KOHEN V. Importance of a balanced omega 6/omega 3 ratio for the maintenance of health:nutritional recommendations[J]. Nutricion Hospitalaria, 2011, 26(2):323-329.

[11]
姜雅慧, 卜登攀, 杨红建, 等. 不饱和脂肪酸在瘤胃氢化的微生物学机制研究进展[J]. 华北农学报, 2015, 30(S1):376-382.

DOI

JIANG Y H, BU D P, YANG H J, et al. The advance research of the microbial biohydrogenation mechanism of unsaturated fatty acid in rumen[J]. Acta Agriculturae Boreali-Sinica, 2015, 30(S1):376-382. (in Chinese)

[12]
赵建, 张振斌, 孙桂芬, 等. 反刍动物日粮中油脂产品的加工工艺及其应用效果研究进展[J]. 中国畜牧杂志, 2022, 58(7):35-41.

ZHAO J, ZHANG Z B, SUN G F, et al. Research progress on processing technology and utilization effect of oil products in ruminant diet[J]. Chinese Journal of Animal Science, 2022, 58(7):35-41. (in Chinese)

[13]
FROYEN E, BURNS-WHITMORE B. The effects of linoleic acid consumption on lipid risk markers for cardiovascular disease in healthy individuals:a review of human intervention trials[J]. Nutrients, 2020, 12(8):2329.

DOI

[14]
SHIMANO H, SATO R. SREBP-regulated lipid metabolism:convergent physiology-divergent pathophysiology[J]. Nature Reviews Endocrinology, 2017, 13(12):710-730.

DOI

[15]
LEE S H, LEE J H, IM S S. The cellular function of SCAP in metabolic signaling[J]. Experimental and Molecular Medicine, 2020, 52(5):724-729.

DOI PMID

[16]
DOI T, HORI M, HARADA-SHIBA M, et al. Patients with LDLR and PCSK9 gene variants experienced higher incidence of cardiovascular outcomes in heterozygous familial hypercholesterolemia[J]. Journal of the American Heart Association, 2021, 10(4):e018263.

DOI

[17]
RIBEIRO E S, SANTOS J E P, THATCHER W W. Role of lipids on elongation of the preimplantation conceptus in ruminants[J]. Reproduction, 2016, 152(4):R115-R126.

DOI

[18]
KACZYNSKI P, KOWALEWSKI M P, WACLAWIK A. Prostaglandin F2α promotes angiogenesis and embryo-maternal interactions during implantation[J]. Reproduction, 2016, 151(5):539-552.

DOI PMID

[19]
NIRINGIYUMUKIZA J D, CAI H C, XIANG W P. Prostaglandin E2 involvement in mammalian female fertility:ovulation,fertilization,embryo development and early implantation[J]. Reproductive Biology and Endocrinology, 2018, 16(1):43.

DOI

[20]
BEN-AMI I, FREIMANN S, ARMON L, et al. PGE2 up-regulates EGF-like growth factor biosynthesis in human granulosa cells:new insights into the coordination between PGE2 and LH in ovulation[J]. Molecular Human Reproduction, 2006, 12(10):593-599.

DOI

[21]
YOUSEF M S, MAREY M A, HAMBRUCH N, et al. Sperm binding to oviduct epithelial cells enhances TGFB1 and IL10 expressions in epithelial cells as well as neutrophils in vitro:prostaglandin E2 as a main regulator of anti-inflammatory response in the bovine oviduct[J]. PLoS One, 2016, 11(9):e0162309.

DOI

[22]
VILELLA F, RAMIREZ L, BERLANGA O, et al. PGE2 and PGF concentrations in human endometrial fluid as biomarkers for embryonic implantation[J]. The Journal of Clinical Endocrinology & Metabolism, 2013, 98(10):4123-4132.

DOI

[23]
BROOKS K, BURNS G, SPENCER T E. Conceptus elongation in ruminants:roles of progesterone,prostaglandin,interferon tau and cortisol[J]. Journal of Animal Science and Biotechnology, 2014, 5(1):53.

DOI

[24]
GUZELOGLU A, MICHEL F, THATCHER W W. Differential effects of interferon-tau on the prostaglandin synthetic pathway in bovine endometrial cells treated with phorbol ester[J]. Journal of Dairy Science, 2004, 87(7):2032-2041.

DOI PMID

[25]
DJURICIC I, CALDER P C. Beneficial outcomes of omega-6 and omega-3 polyunsaturated fatty acids on human health:an update for 2021[J]. Nutrients, 2021, 13(7):2421.

DOI

[26]
VANGAVETI V N, JANSEN H, KENNEDY R L, et al. Hydroxyoctadecadienoic acids:oxidised derivatives of linoleic acid and their role in inflammation associated with metabolic syndrome and cancer[J]. European Journal of Pharmacology, 2016, 785:70-76.

DOI

[27]
INNES J K, CALDER P C. Omega-6 fatty acids and inflammation[J]. Prostaglandins,Leukotrienes and Essential Fatty Acids, 2018, 132:41-48.

DOI

[28]
MILES E A, ALLEN E, CALDER P C. In vitro effects of eicosanoids derived from different 20-carbon fatty acids on production of monocyte-derived cytokines in human whole blood cultures[J]. Cytokine, 2002, 20(5):215-223.

DOI

[29]
VACHIER I, CHANEZ P, BONNANS C, et al. Endogenous anti-inflammatory mediators from arachidonate in human neutrophils[J]. Biochemical and Biophysical Research Communications, 2002, 290(1):219-224.

PMID

[30]
PISCHON T, HANKINSON S E, HOTAMISLIGIL G S, et al. Habitual dietary intake of n-3 and n-6 fatty acids in relation to inflammatory markers among US men and women[J]. Circulation, 2003, 108(2):155-160.

DOI

[31]
ZAFRANSKAYA M, NIZHEHARODAVA D, YURKEVICH M, et al. PGE2 contributes to in vitro MSC-mediated inhibition of non-specific and antigen-specific T cell proliferation in MS patients[J]. Scandinavian Journal of Immunology, 2013, 78(5):455-462.

DOI

[32]
XU M, WANG X H, LI Y N, et al. Arachidonic acid metabolism controls macrophage alternative activation through regulating oxidative phosphorylation in PPARγ dependent manner[J]. Frontiers in Immunology, 2021, 12:618501.

DOI

[33]
SAJIKI Y, KONNAI S, IKENAKA Y, et al. Prostaglandin-related immune suppression in cattle[J]. Veterinary Immunology and Immunopathology, 2021, 236:110238.

DOI PMID

[34]
PATEL D, GORUK S, RICHARD C, et al. Combined supplementation with arachidonic and docosahexaenoic acids in T helper type-2 skewed brown Norway rat offspring is beneficial in the induction of oral tolerance toward ovalbumin and immune system development[J]. Journal of Nutrition, 2022, 152(9):2165-2178.

DOI PMID

[35]
SREERAMKUMAR V, FRESNO M, CUESTA N. Prostaglandin E2 and T cells:friends or foes?[J]. Immunology and Cell Biology, 2012, 90(6):579-586.

DOI

[36]
RAMAN P, KAPLAN B L F, KAMINSKI N E. 15-deoxy-Δ12,14-prostaglandin J2-glycerol,a putative metabolite of 2-arachidonyl glycerol and a peroxisome proliferator-activated receptor γ ligand,modulates nuclear factor of activated T cells[J]. Journal of Pharmacology and Experimental Therapeutics, 2012, 342(3):816-826.

DOI

[37]
XUE L Z, BARROW A, FLEMING V M, et al. Leukotriene E4 activates human Th2 cells for exaggerated proinflammatory cytokine production in response to prostaglandin D2[J]. Journal of Immunology, 2012, 188(2):694-702.

DOI PMID

[38]
MORAES J G N, BEHURA S K, GEARY T W, et al. Analysis of the uterine lumen in fertility-classified heifers:Ⅰ.Glucose,prostaglandins,and lipids[J]. Biology of Reproduction, 2020, 102(2):456-474.

DOI

[39]
RICHARDSON G F, MCNIVEN M A, PETIT H V, et al. The effects of dietary omega fatty acids on pregnancy rate,plasma prostaglandin metabolite levels,serum progesterone levels,and milk fatty-acid profile in beef cows[J]. Canadian Journal of Veterinary Research, 2013, 77(4):314-318.

[40]
SURLIS C, CORMICAN P, WATERS S M, et al. Effects of dietary n-3-PUFA supplementation,post-insemination plane of nutrition and pregnancy status on the endometrial transcriptome of beef heifers[J]. Scientific Reports, 2020, 10(1):20798.

DOI

[41]
HESS B W, MOSS G E, RULE D C. A decade of developments in the area of fat supplementation research with beef cattle and sheep[J]. Journal of Animal Science, 2008,86 (Suppl.14):E188-E204.

[42]
LOPES C N, COOKE R F, REIS M M, et al. Strategic supplementation of calcium salts of polyunsaturated fatty acids to enhance reproductive performance of Bos indicus beef cows[J]. Journal of Animal Science, 2011, 89(10):3116-3124.

DOI PMID

[43]
COOKE R F, CAPPELLOZZA B I, GUARNIERI FILHO T A, et al. Effects of calcium salts of soybean oil on factors that influence pregnancy establishment in Bos indicus beef cows[J]. Journal of Animal Science, 2014, 92(5):2239-2250.

DOI PMID

[44]
CIPRIANO R S, COOKE R F, RODRIGUES A D, et al. Post-artificial insemination supplementation with calcium salts of soybean oil influences pregnancy establishment factors in beef cows[J]. Journal of Animal Science, 2016, 94(11):4892-4902.

DOI PMID

[45]
ZHANG Y, OTOMARU K, OSHIMA K Z N, et al. Effects of low and high levels of maternal nutrition consumed for the entirety of gestation on the development of muscle,adipose tissue,bone,and the organs of Wagyu cattle fetuses[J]. Animal Science Journal, 2021, 92(1):e13600.

DOI

[46]
COSTA T C, GIONBELLI M P, DUARTE M D S. Fetal programming in ruminant animals:understanding the skeletal muscle development to improve meat quality[J]. Animal Frontiers, 2021, 11(6):66-73.

DOI

[47]
MARQUES R S, COOKE R F, RODRIGUES M C, et al. Effects of supplementing calcium salts of polyunsaturated fatty acids to late-gestating beef cows on performance and physiological responses of the offspring[J]. Journal of Animal Science, 2017, 95(12):5347-5357.

DOI PMID

[48]
SHAO T Q, MCCANN J C, SHIKE D W. Effects of late gestation supplements differing in fatty acid amount and profile to beef cows on cow performance,steer progeny growth performance through weaning,and relative mRNA expression of genes associated with muscle and adipose tissue development[J]. Animals, 2023, 13(3):437.

DOI

[49]
SHAO T Q, MCCANN J C, SHIKE D W. Effects of supplements differing in fatty acid profile to late gestational beef cows on steer progeny finishing phase growth performance,carcass characteristics,and mRNA expression of myogenic and adipogenic genes[J]. Animals, 2021, 11(7):1904.

DOI

[50]
MANGRUM K S, TUTTLE G, DUCKETT S K, et al. The effect of supplementing rumen undegradable unsaturated fatty acids on marbling in early-weaned steers[J]. Journal of Animal Science, 2016, 94(2):833-844.

DOI PMID

[51]
TIPTON J E, LEWIS L K, RICKS R E, et al. The effects of age at weaning and length of lipid supplementation on growth,metabolites,and marbling of young steers[J]. Animals, 2020, 10(10):1819.

DOI

[52]
SCHUBACH K M, COOKE R F, BRANDÃO A P, et al. Supplementing calcium salts of soybean oil to beef steers early in life to enhance carcass development and quality[J]. Journal of Animal Science, 2019, 97(10):4182-4192.

DOI

[53]
NASCIMENTO F A, SILVA N C, PRADOS L F, et al. Calcium salts of fatty acids with varying fatty acid profiles in diets of feedlot-finished Bos indicus bulls:impacts on intake,digestibility,performance,and carcass and meat characteristics[J]. Journal of Animal Science, 2020, 98(12):skaa382.

DOI

[54]
COOKE R F, COLOMBO E A, MACKEY S J, et al. Productive and physiological responses of feedlot cattle receiving different sources of Ca salts of fatty acids in the finishing diet[J]. Journal of Animal Science, 2023, 101:skac404.

DOI

[55]
GARCIA M, GRECO L F, FAVORETO M G, et al. Effect of supplementing fat to pregnant nonlactating cows on colostral fatty acid profile and passive immunity of the newborn calf[J]. Journal of Dairy Science, 2014, 97(1):392-405.

DOI PMID

[56]
JOLAZADEH A R, MOHAMMADABADI T, DEHGHAN-BANADAKY M, et al. Effect of supplementation fat during the last 3 weeks of uterine life and the preweaning period on performance,ruminal fermentation,blood metabolites,passive immunity and health of the newborn calf[J]. British Journal of Nutrition, 2019, 122(12):1346-1358.

DOI

[57]
ARAUJO D B, COOKE R F, HANSEN G R, et al. Effects of rumen-protected polyunsaturated fatty acid supplementation on performance and physiological responses of growing cattle after transportation and feedlot entry[J]. Journal of Animal Science, 2010, 88(12):4120-4132.

DOI PMID

[58]
COOKE R F, BOHNERT D W, MORIEL P, et al. Effects of polyunsaturated fatty acid supplementation on ruminal in situ forage degradability,performance,and physiological responses of feeder cattle[J]. Journal of Animal Science, 2011, 89(11):3677-3689.

DOI

Outlines

/