REVIEW

Research Progress on Antioxidant Function of Tauroursodeoxycholic Acid

  • JIANG Min , 1 ,
  • WANG Zheqi 2 ,
  • JIN Xiao 1 ,
  • XU Yuanqing , 1, *
Expand
  • 1 College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
  • 2 Institute of Grassland Research, Chinese Academy of Agricultural Sciences, Hohhot 010010, China
* lecturer, E-mail:

Received date: 2023-05-23

  Online published: 2023-12-11

Abstract

Tauroursodeoxycholic acid (TUDCA) is a product of the combination of ursodeoxycholic acid and taurine. It is mainly found in bear bile and has been shown to have biological activities such as anti-oxidation, anti-inflammatory and immune regulation. In the past few decades, TUDCA has become a highly concerned natural compound, which has been used in many fields for its potential biological activity and pharmacological effects. In order to understand the antioxidant activity of TUDCA more comprehensively, this paper reviews the antioxidant activity of TUDCA and its regulation pathway, to provide reference for the application of TUDCA as feed additive in animal husbandry production.

Cite this article

JIANG Min , WANG Zheqi , JIN Xiao , XU Yuanqing . Research Progress on Antioxidant Function of Tauroursodeoxycholic Acid[J]. Chinese Journal of Animal Nutrition, 2023 , 35(12) : 7633 -7640 . DOI: 10.12418/CJAN2023.693

氧化应激是指机体受到外界刺激,活性氧(reactive oxygen species,ROS)产生过多或发生代谢障碍并超过内源性抗氧化防御系统对其消除能力时,过剩的ROS会破坏机体氧化系统与抗氧化系统之间的平衡,参与氧化核酸、蛋白质、脂肪等生物大分子的过程[1]。研究发现,氧化应激可以通过调控相关信号通路,影响细胞核基因的表达,进而损伤细胞和组织,甚至导致动物死亡[2]
牛磺熊去氧胆酸(tauroursodeoxycholic acid,TUDCA)是一种无毒的亲水胆汁酸,是熊去氧胆酸和牛磺酸的结合产物,主要存在于熊胆中,在人体中的含量较低,具有解痉、抗惊厥、抗炎、抗氧化及溶胆石等作用[3],因而临床上主要用于治疗胆囊胆固醇结石、原发性胆汁性肝硬化等[4]。已有研究表明,TUDCA在治疗原发性胆汁性胆管炎方面具有与熊去氧胆酸(ursodeoxycholic acid,UDCA)相同的安全性和耐受性,甚至能更好地缓解疾病症状[5]。近年来,大量研究表明TUDCA具有缓解氧化应激的活性,因此本文就TUDCA抗氧化活性以及其机理的研究进展进行了总结。

1 TUDCA简介

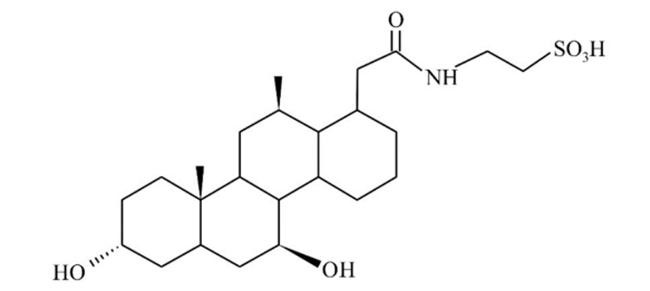
熊胆作为传统中药,具有清热解毒、利胆排毒、抗炎消炎等作用,已被用来治疗各种疾病,且历史悠久。熊胆中主要成分包括TUDCA、牛磺鹅去氧胆酸(taurochenodeoxycholic acid,TCDCA)、UDCA、鹅去氧胆酸(chenodeoxycholic acid,CDCA)[6];其中,TUDCA具有明显的抗氧化和抗炎作用,被认为是神经退行性疾病的潜在治疗药物,最重要的是TUDCA可以通过血脑屏障对大脑进行保护[7]。TUDCA是一种无毒的亲水胆汁酸,是熊去氧胆酸和牛磺酸的结合产物,在人体中的含量较低,其化学名为3α,7β-二羟基-胆烷酰-N-牛磺酸,分子式为C26H45NO6S,相对分子质量为499.70[8],分子结构如图1所示。最早获取TUDCA的方法是通过提取动物的胆汁,但因为取材方式在国际上备受争议,随后我国颁布了相关条例禁止采用活熊取胆法获取熊胆汁酸。近年来,化学半合成法、酶催化法以及微生物转化法成为了TUDCA主要获取途径[9]
图1 TUDCA分子结构

Fig.1 Molecular structure of TUDCA[13]

2 TUDCA的抗氧化活性

机体产生适当的ROS有利于机体代谢调节、细胞增殖和细胞信号传递等,但是过多的ROS会导致氧化应激,破坏细胞内部环境,引起细胞膜脂质过氧化,产生大量的丙二醛(malondialdehyde,MDA),导致细胞膜、蛋白质和DNA的氧化损伤,甚至引发疾病。严重的氧化损伤会导致各种疾病的发生和发展,例如癌症、心血管疾病、神经退行性疾病、自身免疫性疾病等[10-12]。近年来许多研究发现,TUDCA具有清除ROS的能力。

2.1 体外抗氧化活性

TUDCA本身具有氧化还原反应的能力,可以直接清除ROS,也可以通过调节线粒体膜的稳定性及B淋巴细胞瘤-2(B-cell lymphoma-2,Bcl-2)、B细胞淋巴瘤-2相关X蛋白(B-cell lymphoma-2 associated X protein,Bax)、细胞色素C(cytochrome C,CytC)和半胱氨酸蛋白酶(cysteinyl aspartate specific proteinase,Caspase)的表达来减轻氧化应激和减少由ROS引起的细胞损伤,并且在体内、体外都发挥着重要的抗氧化作用[10]。线粒体作为细胞的能量中心和氧化还原反应的主要场所,在氧化还原平衡过程中起着重要作用。Viana等[14]研究发现,TUDCA能够通过抑制线粒体凋亡基因Bax易位,阻止CytC释放到细胞质中,恢复线粒体的膜动态稳定和ATP产生,缓解氧化应激引起的细胞凋亡。此外,TUDCA还可以通过恢复线粒体的细胞呼吸和减少线粒体ROS的产生来保护线粒体的功能稳定性,从而减轻氧化应激对线粒体的损伤[15]。氧化应激可以刺激内质网(endoplasmic reticulum,ER)应激,而ER应激也可以导致氧化应激和细胞凋亡[16-17]。因此,TUDCA也可以通过抑制ER应激通路的激活来减轻氧化应激的程度,进而保护细胞免受氧化损伤[18]
体外细胞试验表明,TUDCA具有良好的抗氧化活性。Pioltine等[19]研究发现,在体外成熟的牛卵母细胞培养基中添加200 μmol/L TUDCA表现出良好的ROS清除活性,并且增加了卵母细胞中过氧化氢酶(catalase,CAT)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)和血红素氧合酶-1(heme oxygenase,HO-1)mRNA的相对丰度。另一项研究发现,TUDCA能够抑制体外培养牛卵母细胞中ROS的产生以及ER应激和促凋亡基因的表达,刺激线粒体代谢功能来增强葡萄糖代谢,增加Bcl-2和谷胱甘肽(glutathione,GSH)表达,提高囊胚发育率,并降低凋亡细胞的百分比,并且在IVC培养基中添加10 μmol/L效果最佳[20]。此外,TUDCA通过减少ROS和MDA的产生,上调抗氧化基因的表达以及增加GSH的产生,显著提高了过氧化氢(hydrogen peroxide,H2O2)处理的人视网膜色素细胞的抗氧化能力[21]。在脂多糖(lipopolysaccharide,LPS)处理的小鼠小肠上皮细胞(IEC-6细胞)中,TUDCA增加了磷酸化蛋白激酶B(phosphorylated protein kinase B,p-Akt)的表达,使得CCAAT增强子结合蛋白同源蛋白(CCAAT enhancer binding protein homologous protein,CHOP)活性降低,从而抑制LSP诱导的IEC-6细胞坏死[22]

2.2 体内抗氧化活性

当体内产生的ROS超过机体清除能力时,就会导致细胞膜氧化、蛋白质和DNA的氧化损伤、细胞增殖和凋亡的失衡。但是机体存在的一些抗氧化酶[超氧化物歧化酶(superoxide dismutase,SOD)、CAT、GSH-Px]和抗氧化非酶物质(褪黑素、类胡萝卜素、维生素C、维生素E等)可以清除机体多余的ROS,保护细胞免受氧化损伤。SOD是机体重要的抗氧化酶,可以将超氧阴离子(superoxide anion,$\mathrm{O}_2^{-}$)歧化为氧气(oxygen,O2)和H2O2[23];GSH-Px和CAT是一种低分子清除剂,可清除O2-和H2O2[24-25]。相关体内研究发现,TUDCA通过调节体内抗氧化系统来发挥抗氧化作用。
目前关于TUDCA体内抗氧化的研究主要集中在大鼠和小鼠模型上,给药途径分为口服、腹部注射和皮下注射,其中口服的剂量在50~500 mg/kg,腹部注射的剂量在6~400 mg/kg,皮下注射的剂量在7 mg/kg左右,并且口服利用率约为65%[26]。研究发现,无论以哪种方式给药,都能调控抗氧化酶转录和活性,从不同程度上发挥作用,缓解氧化损伤[10,26]

3 抗氧化通路

3.1 Kelch样环氧氯丙烷相关蛋白1(Kelch like ECH associated protein 1,Keap1)-核转录因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)-抗氧化反应元件(antioxidant response element,ARE)调控途径
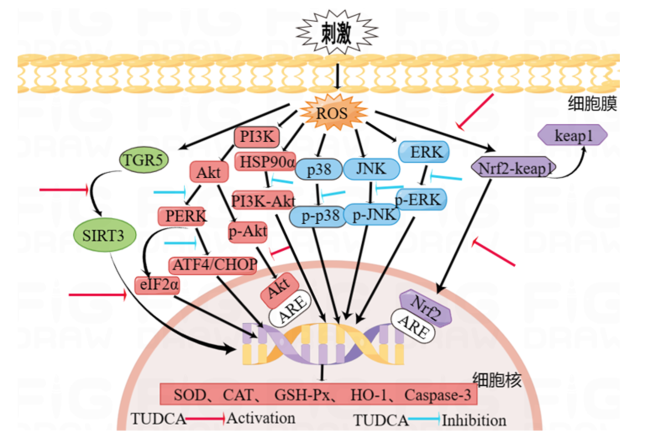
Keap1-Nrf2信号通路是维持细胞内氧化还原平衡的重要途径,其中Keap1是Nrf2的负调控蛋白,而ARE是Nrf2的上游启动子区域。在正常情况下,Nrf2被Keap1绑定,形成Nrf2-Keap1复合物,防止Nrf2进入细胞核,并限制其转录活性;当细胞受到氧化应激、物理性刺激以及化学性刺激等信号时,会诱导Nrf2从Keap1上释放出来,随后Nrf2进入细胞核与ARE结合,启动抗氧化和解毒相关基因的转录和表达,并促进细胞内抗氧化能力的提高[27]。体内体外试验结果均表明,TUDCA可通过Nrf2途径提高GSH-Px活性,抑制ROS的生成。Moreira等[10]研究发现,神经毒素1-甲基-4-苯基-1,2,3,6-四氢吡啶(1-methyl-4-phenyl-1,2,3,6-tetrahydropyridine,MPTP)处理小鼠1 h后,其中脑和纹状体中ROS含量分别增加13%和20%;而TUDAC可以通过激活Nrf2信号通路,进一步增强下游抗氧化酶HO-1和GSH-Px的表达,降低人神经母细胞(SH-SY5Y细胞)中α-突触核蛋白诱导的氧化应激(图2);并且在处理前和处理后加入TUDCA均能降低细胞内MPTP诱导产生的ROS含量。同样,TUDCA可以通过激活Nrf2通路增加利福平(rifampicin,RFP)诱导的肝母细胞瘤细胞(HepG2细胞)中CAT、GSH-Px和SOD活性,降低MDA含量[11]。研究还发现,TUDCA通过与Keap1结合,破坏Nrf2-Keap1之间的相互作用,释放Nrf2进入细胞核与ARE相结合,启动下游多种抗氧化酶的合成,从而缓解氧化应激[28]。此外,氧化应激会导致Bax将CytC释放到细胞质中,激活Caspase诱导细胞凋亡[29-30],而TUDAC通过激活Nrf2通路抑制CHOP-死亡受体5(death receptor 5,DR5)-Caspase-8细胞凋亡途径,降低CHOP的表达,达到减少DR5转录和Caspase-8活化的目的,从而抑制细胞凋亡[31]。此外,TUDCA还可以通过Nrf2信号通路抑制急性脑梗死大鼠血清MDA和氧化低密度脂蛋白(oxidized low-density lipoprotein,ox-LDL)的表达,增加SOD和GSH-Px活性,改变炎症反应中的脂质过氧化,缓解氧化应激损伤,并下调凋亡蛋白(BaxCaspase-3)的表达,减少关节软骨损伤大鼠线粒体细胞凋亡[12]
图2 TUDCA抗氧化机理示意图

ROS:活性氧 reactive oxygen species;TGR5:武田G蛋白偶联受体5 Takeda G protein-coupled receptor 5;SIRT3:沉默调节蛋白3 sirtuin 3;PI3K:磷脂酰肌醇3-激酶 phosphatidylinositol 3-kinase;Akt:蛋白激酶B protein kinase B;p-Akt:磷酸化蛋白激酶B phosphorylated protein kinase B;PERK:蛋白激酶R-样内质网激酶 protein kinase R-like endoplasmic reticulum kinase;ATF4:激活转录因子4 activating transcription factor 4;CHOP:CCAAT增强子结合蛋白同源蛋白 CCAAT enhancer binding protein homologous protein;eIF2α:真核起始因子2 eukaryotic initiation factor-2α;ERK:信号调节蛋白激酶 extracellular signal-regulated kinase;p-ERK:磷酸化信号调节蛋白激酶 phosphorylated extracellular signal-regulated kinase;p38:p38丝裂原激活蛋白酶 p38 mitogen-activated protein kinases;p-p38:磷酸化p38丝裂原激活蛋白酶 phosphorylated p38 mitogen-activated protein kinases;p-JNK:磷酸化c-Jun N端激酶 phosphorylated c-Jun N-terminal kinase;JNK:c-Jun N端激酶 c-Jun N-terminal kinase;Nrf2:核转录因子E2相关因子2 nuclear factor erythroid 2-related factor 2;keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch like ECH associated protein 1;ARE:抗氧化反应元件 antioxidant response element;SOD:超氧化物歧化酶 superoxide dismutase;CAT:过氧化氢酶 catalase;HO-1:血红素氧合酶-1 heme oxygenase-1;GSH-Px:谷胱甘肽过氧化物酶 glutathione peroxidase;Caspase-3:半胱氨酸蛋白酶-3 cysteinyl aspartate specific proteinase-3;HSP90α:热休克蛋白90α heat shock protein 90α;TUDCA:牛磺熊去氧胆酸 tauroursodeoxycholic acid;Activation:激活;Inhibition:抑制。

Fig.2 Schematic antioxidation mechanism diagram of TUDCA

3.2 磷脂酰肌醇-3-激酶(phosphatidylinositol-3-kinase,PI3K)-蛋白激酶B(protein kinase B,Akt)调控途径

PI3K-Akt途径是一个重要的信号通路,参与了诸多细胞代谢过程,包括细胞增殖、存活、分化、代谢调节等。PI3K-Akt途径在细胞内的诱导与激活可以调控多种重要信号转导通路[32]。通过激活PI3K-Akt途径,Akt可以直接磷酸化并激活,使其从细胞质转移到细胞核中与ARE结合,从而增加抗氧化酶HO-1的表达[33],抑制ROS生成,从而增强细胞的抗氧化能力。Zhang等[34]研究发现,热休克蛋白90(heat shock protein 90,HSP90)已被证实是在缺氧、活性氧和热量等多种应激后从细胞分泌的,HSP90α激活PI3K-Akt途径导致ER应激,造成肺部纤维化,而ER应激抑制剂TUDCA可以调节该通路,有效降低血清中HSP90α含量,缓解ER应激(图2)。TUDCA处理乙酰胆碱诱导的糖尿病小鼠后,PI3K-Akt途径被激活且Akt活性明显增加,使得组织内ROS的生成量和MDA的含量都降低,从而缓解ER应激[35]。Akt磷酸化可以改变下游分子Bcl-2、BaxCaspase-3的表达来减弱细胞凋亡。蛋白激酶R样内质网激酶(protein kinase R-like endoplasmic reticulum kinase,PERK)、肌醇需求酶1(inositol-requiring enzyme 1,IRE1)和激活转录因子6(activating transcription factor 6,ATF6)是内质网膜上能激活未折叠蛋白反应(unfolded protein response,UPR)的3种效应蛋白,其中PERK是ER应激的调节中枢,能够促进激活转录因子4(activating transcription factor 4,ATF4)和CHOP激活诱导细胞凋亡,而TUDCA可以通过激活Akt通路抑制PERK的活性,进而抑制PERK-ATF4-CHOP通路,从而增加Bcl-2/Bax的比值,降低ATF4、Caspase-12和CHOP的表达水平,消除ER应激并减少小鼠创伤性脑损伤后的神经元细胞的凋亡[36]。此外,TUDCA还能通过激活Akt通路来调节PERK-真核起始因子2(eukaryotic initiation factor-2α,eIF2α)途径诱导的ER应激,降低了CHOP、磷酸化蛋白激酶R样内质网激酶(phosphorylated protein kinase R-like endoplasmic reticulum kinase,p-PERK)和磷酸化真核起始因子2(phosphorylated eukaryotic initiation factor-2α,p-eIF2α)蛋白的表达水平以及血清肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)和白细胞介素-6(interleukin-6,IL-6)含量,从而减少坏死性小肠结肠炎小鼠模型肠道细胞凋亡[22]

3.3 丝裂原活化蛋白激酶(mitogen-activated protein kinases,MAPK)调控途径

MAPK途径广泛存在于机体细胞中,是细胞增殖、应激、凋亡、炎症等转导通路的共同交汇通路[37],在抗氧化方面起到重要作用。最经典的MAPK信号通路包括细胞外信号调节蛋白激酶(extracellular signal-regulated kinase,ERK)通路、c-Jun N端激酶(c-Jun N-terminal kinase,JNK)通路以及p38丝裂原活化蛋白激酶(p38 mitogen-activated protein kinases,p38)通路。氧化应激可以激活MAPK信号通路,导致JNK、ERK和p38的磷酸化水平分别增强[38],而TUDCA可以通过调控MAPK通路缓解氧化应激(图2)。Han等[39]研究发现,TUDCA诱导的小鼠M2巨噬细胞抑制MAPK信号通路中ERK、JNK和p38的磷酸化,减少促炎因子白细胞介素-1β(interleukin-1β,IL-1β)、TNF-αIL-6的表达,改善了脊髓损伤大鼠脊髓的组织病理学损伤,并促进了脊髓的功能恢复。TUDCA还可以通过抑制p38通路,降低小鼠肠道上皮应激标志物葡萄糖调节蛋白78(glucose regulated protein 78,GRP78)和炎症因子白细胞介素-8(interleukin-8,IL-8)的表达,达到缓解三硝基苯磺酸(trinitrobenzene sulfonic acid,TNBS)诱导的小鼠肠道ER应激导致的炎症性肠病的目的[40]。此外,研究还发现LPS可能通过p38与Toll样受体4(Toll-like receptor 4,TLR4)结合激活下游通路,促进TNF-α、IL-1β和IL-8等炎症因子的产生和分泌,而TUDCA可以调控p38通路降低这些炎症因子的分泌[41]

3.4 武田G蛋白偶联受体5(Takeda G protein-coupled receptor 5,TGR5)-沉默调节蛋白3(sirtuin 3,SIRT3)途径

TGR5是一种质膜结合的G蛋白偶联胆汁酸受体,SIRT3是位于线粒体中的沉默信息调节因子蛋白家族的成员,通过抑制细胞凋亡来防止神经元缺血[42]。TUDCA是TGR5的激动剂,可以通过激活TGR5及其下游信号通路起作用[43]。Dicks等[44]研究发现,TGR5是TUDCA用于细胞DNA损伤修复中的必要组分,TUDCA通过刺激TGR5信号传导来减少紫外线辐射暴露后的DNA损伤和ER应激(图2),且TUDCA-TGR5信号通路协调调节基因组损伤反应(genome damage response,GDR)和UPR通路来增加DNA修复中DNA依赖蛋白激酶的催化亚基、p53结合蛋白1(p53-binding protein 1,53BP1)以及X-框结合蛋白1重组蛋白(X-box binding protein 1,XBP1)的含量来减少DNA损伤。随后进一步研究发现,TUDCA可以通过TGR5受体缓解葡萄糖引起的猪胚胎氧化应激和UPR引起的ER应激,并且TUDCA在胚胎中是通过TGR5信号传导而不是与细胞内蛋白质直接作用,所以抑制TGR5受体会干扰TUDCA促进DNA损伤修复的能力[45]。除此之外,激活TGR5通路可以诱导SIRT3的表达,并增加SIRT3的翻译后修饰,从而增强SIRT3激活抗氧化酶的能力。Wu等[46]研究表明,TUDCA可以在自发性蛛网膜下腔出血后通过激活TGR5-SIRT3信号通路增加Bcl-2的表达,并降低Bax和裂解的Caspase-3的表达,从而减轻蛛网膜下腔出血后神经元细胞的凋亡,并改善神经功能。

4 小结

TUDCA是存在于动物胆汁中的亲水性天然抗氧化物,因其毒性极小、安全性高被用于多种实验室试验和临床试验。大量研究证实了TUDCA可以通过Keap1-Nrf2-ARE、PI3K-Akt、MAPK、TGR5-SIRT3等途径调控抗氧化酶系统和非酶系统,清除体内多余ROS,从而缓解氧化损伤。基于TUDCA具有多种生物活性特征,其具有作为饲料添加剂应用于畜牧生产中的潜力,以提高畜禽的生长性能和改善畜禽健康。然而,目前对于TUDCA抗氧化的研究还局限在细胞及小鼠和大鼠等模型动物层面上,关于在家畜和家禽方面的研究尚未见报道,因此,进行进一步研究来寻找TUDCA的最佳作用剂量和作用时间并运用到畜禽生产上是很有必要的。
[1]
CIRCU M L, AW T Y. Reactive oxygen species,cellular redox systems,and apoptosis[J]. Free Radical Biology & Medicine, 2010, 48(6):749-762.

DOI

[2]
王延海, 张雷明, 冯艳艳. 大黄素改善高糖条件中人肾小球血管内皮细胞炎症、氧化应激及凋亡作用的研究[J]. 中国临床药理学杂志, 2023, 39(10):1422-1426.

WANG Y H, ZHANG L M, FENG Y Y. Effect of emodin on improving the inflammation,oxidative stress and apoptosis of human glomerular endothelial cells in high glucose conditions[J]. The Chinese Journal of Clinical Pharmacology, 2023, 39(10):1422-1426. (in Chinese)

[3]
RODRIGUES C M, KREN B T, STEER C J, et al. Tauroursodeoxycholate increases rat liver ursodeoxycholate levels and limits lithocholate formation better than ursodeoxycholate[J]. Gastroenterology, 1995, 109(2):564-572.

DOI PMID

[4]
傅贤波, 林三仁, 范竹萍, 等. 牛磺熊去氧胆酸溶解胆囊胆固醇结石有效性和安全性——随机、双盲、安慰剂对照、多中心临床研究[J]. 中国微创外科杂志, 2007, 7(12):1159-1163.

FU X B, LIN S R, FAN Z P, et al. Efficacy and safety of tauroursodeoxycholic acid (taurolite) for dissolution of cholesterol gallstones:multicenter double-blind randomized-controlled trial[J]. Chinese Journal of Minimally Invasive Surgery, 2007, 7(12):1159-1163. (in Chinese)

[5]
MA H, ZENG M D, HAN Y, et al. A multicenter,randomized,double-blind trial comparing the efficacy and safety of TUDCA and UDCA in Chinese patients with primary biliary cholangitis[J]. Medicine, 2016, 95(47):e5391.

DOI

[6]
袁斌, 任颖龙, 马莉, 等. 胆汁酸类成分替代中药熊胆的药性分析[J]. 中国中药杂志, 2014, 39(4):738-743.

YUAN B, REN Y L, MA L, et al. Analysis on replacement of traditional Chinese medicine bear bile with bile acids based on drug properties[J]. China Journal of Chinese Materia Medica, 2014, 39(4):738-743. (in Chinese)

[7]
RODRIGUES C M P, SOLA S, NAN Z H, et al. Tauroursodeoxycholic acid reduces apoptosis and protects against neurological injury after acute hemorrhagic stroke in rats[J]. Proceedings of the National Academy of Sciences of the United States of America, 2003, 100(10):6087-6092.

DOI PMID

[8]
李继珩, 许东, 牟晓虹. 牛磺熊去氧胆酸结构及性质的研究[J]. 中国药科大学学报, 1993(3):145-149.

LI J H, XU D, MU X H. Studies on structure and properties of tauroursodeoxycholic acid[J]. Journal of China Pharmaceutical University, 1993(3):145-149. (in Chinese)

[9]
史杰, 陈思, 赵淑娟. 牛磺熊去氧胆酸的获取方法及药理研究进展[J]. 上海中医药大学学报, 2017, 31(2):89-94.

SHI J, CHEN S, ZHAO S J. Research progress on the preparation and pharmacology of tauroursodesoxycholic acid[J]. Acta Universitatis Traditionis Medicalis Sinensis Pharmacologiaeque Shanghai, 2017, 31(2):89-94. (in Chinese)

[10]
MOREIRA S, FONSECA I, NUNES M J, et al. Nrf2 activation by tauroursodeoxycholic acid in experimental models of Parkinson’s disease[J]. Experimental Neurology, 2017, 295:77-87.

DOI

[11]
ZHANG W P, CHEN L H, FENG H, et al. Rifampicin-induced injury in HepG2 cells is alleviated by TUDCA via increasing bile acid transporters expression and enhancing the Nrf2-mediated adaptive response[J]. Free Radical Biology and Medicine, 2017, 112:24-35.

DOI PMID

[12]
BIAN K Y, JIN H F, SUN W, et al. DCA can improve the ACI-induced neurological impairment through negative regulation of Nrf2 signaling pathway[J]. European Review for Medical and Pharmacological Sciences, 2019, 23(1):343-351.

DOI PMID

[13]
王鹏, 朱荣菊. 牛磺熊去氧胆酸的合成进展[J]. 氨基酸和生物资源, 2013, 35(2):46-50.

WANG P, ZHU R J. Progress on synthesis of tauroursodeoxycholic acid[J]. Amino Acids and Biotic Resources, 2013, 35(2):46-50. (in Chinese)

[14]
VIANA R J S, NUNES A F, CASTRO R E, et al. Tauroursodeoxycholic acid prevents E22Q Alzheimer's Abeta toxicity in human cerebral endothelial cells[J]. Cellular and Molecular Life Sciences, 2009, 66(6):1094-1104.

DOI PMID

[15]
XU X X, JIN K, BAIS A S, et al. Uncompensated mitochondrial oxidative stress underlies heart failure in an iPSC-derived model of congenital heart disease[J]. Cell Stem Cell, 2022, 29(5):840-855.e7.

DOI PMID

[16]
ZEESHAN H M A, LEE G H, KIM H R, et al. Endoplasmic reticulum stress and associated ROS[J]. International Journal of Molecular Sciences, 2016, 17(3):327.

DOI PMID

[17]
GU S Y, CHEN C Z, JIANG X J, et al. ROS-mediated endoplasmic reticulum stress and mitochondrial dysfunction underlie apoptosis induced by resveratrol and arsenic trioxide in A549 cells[J]. Chemico-Biological Interactions, 2016, 245:100-109.

DOI PMID

[18]
CHEN F Y, GE Z, LI N, et al. TUDCA protects against tunicamycin-induced apoptosis of dorsal root ganglion neurons by suppressing activation of ER stress[J]. Experimental and Therapeutic Medicine, 2022, 24(2):509.

DOI PMID

[19]
PIOLTINE E M, COSTA C B, BARBOSA LATORRACA L, et al. Treatment of in vitro-matured bovine oocytes with tauroursodeoxycholic acid modulates the oxidative stress signaling pathway[J]. Frontiers in Cell and Developmental Biology, 2021, 9:623852.

DOI

[20]
KHATUN H, IHARA Y, TAKAKURA K, et al. Role of endoplasmic reticulum stress on developmental competency and cryo-tolerance in bovine embryos[J]. Theriogenology, 2020, 142:131-137.

DOI PMID

[21]
ALHASANI R H, ALMARHOUN M, ZHOU X Z, et al. Tauroursodeoxycholic acid protects retinal pigment epithelial cells from oxidative injury and endoplasmic reticulum stress in vitro[J]. Biomedicines, 2020, 8(9):367.

DOI

[22]
LI P, FU D, SHENG Q F, et al. TUDCA attenuates intestinal injury and inhibits endoplasmic reticulum stress-mediated intestinal cell apoptosis in necrotizing enterocolitis[J]. International Immunopharmacology, 2019, 74:105665.

DOI

[23]
YUN Y S, LEE Y N. Purification and some properties of superoxide dismutase from Deinococcus radiophilus,the UV-resistant bacterium[J]. Extremophiles, 2004, 8(3):237-242.

DOI

[24]
CHELIKANI P, FITA I, LOEWEN P C. Diversity of structures and properties among catalases[J]. Cellular and Molecular Life Sciences CMLS, 2004, 61(2):192-208.

DOI

[25]
张艺, 叶升. 还原型谷胱甘肽生理功能及其临床应用[J]. 生命的化学, 2020, 40(12):2226-2235.

ZHANG Y, YE S. Physiological functions and clinical applications of glutathione[J]. Chemistry of Life, 2020, 40(12):2226-2235. (in Chinese)

[26]
YANG J S, KIM J T, JEON J, et al. Changes in hepatic gene expression upon oral administration of taurine-conjugated ursodeoxycholic acid in ob/ob mice[J]. PLoS One, 2010, 5(11):e13858.

DOI

[27]
梁新妹, 王云平, 李丹, 等. Keap1-Nrf2信号通路在机体氧化应激损伤防护中的研究进展[J]. 中国医药导报, 2022, 19(35):40-44.

LIANG X M, WANG Y P, LI D, et al. Research progress of Keap1-Nrf2 signaling pathway in oxidative stress damage protection[J]. China Medical Herald, 2022, 19(35):40-44. (in Chinese)

[28]
ZHANG Y, CHENG Y, LIU J, et al. Tauroursodeoxycholic acid functions as a critical effector mediating insulin sensitization of metformin in obese mice[J]. Redox Biology, 2022, 57:102481.

DOI

[29]
JOURDAIN A, MARTINOU J C. Mitochondrial outer-membrane permeabilization and remodelling in apoptosis[J]. International Journal of Biochemistry and Cell Biology, 2009, 41(10):1884-1889.

DOI

[30]
BRUNELLE J K, LETAI A. Control of mitochondrial apoptosis by the Bcl-2 family[J]. Journal of Cell Science, 2009, 122(Pt 4):437-441.

DOI PMID

[31]
SONG G C, WENG F Y, ZOU B, et al. Potential therapeutic action of tauroursodeoxycholic acid against cholestatic liver injury via hepatic Fxr/Nrf2 and CHOP-DR5-caspase-8 pathway[J]. Clinical Science, 2023, 137(7):561-577.

DOI

[32]
许云姣, 吴文笛, 张志毕, 等. 基于P13K/Akt及NF-κB信号通路探讨大鼠应激性溃疡的关键保护因子[J]. 云南中医中药杂志, 2021, 42(6):79-83.

XU Y J, WU W D, ZHANG Z B, et al. Study on the key protective factors of stress ulcer based on PI3K/AKt and NF-κB signaling pathways in rats[J]. Yunnan Journal of Traditional Chinese Medicine and Materia Medica, 2021, 42(6):79-83. (in Chinese)

[33]
周礼华, 常见荣, 高扬丽, 等. 原花青素B2通过调控PI3K/Akt/Nrf2信号通路减轻氯氰菊酯所致神经元损伤[J]. 南方医科大学学报, 2021, 41(8):1158-1164.

ZHOU L H, CHANG J R, GAO Y L, et al. Procyanidin B2 protects neurons from cypermethrin-induced oxidative stress through the PI3K/Akt/Nrf2 signaling pathway[J]. Journal of Southern Medical University, 2021, 41(8):1158-1164. (in Chinese)

[34]
ZHANG J M, ZHONG W S, LIU Y Y, et al. Extracellular HSP90α interacts with ER stress to promote fibroblasts activation through PI3K/AKT pathway in pulmonary fibrosis[J]. Frontiers in Pharmacology, 2021, 12:708462.

DOI

[35]
MUSTAPHA S, AZEMI A K, WAN AHMAD W A N, et al. Inhibition of endoplasmic reticulum stress improves acetylcholine-mediated relaxation in the aorta of type-2 diabetic rats[J]. Molecules, 2022, 27(16):5107.

DOI

[36]
SUN D D, GU G, WANG J H, et al. Administration of tauroursodeoxycholic acid attenuates early brain injury via Akt pathway activation[J]. Frontiers in Cellular Neuroscience, 2017, 11:193.

DOI PMID

[37]
陈欣悦, 边文超, 赵晴, 等. MAPK信号通路在血管性痴呆中研究进展[J]. 中国老年学杂志, 2023, 43(5):1267-1270.

CHEN X Y, BIAN W C, ZHAO Q, et al. Research progress of MAPK signaling pathway in vascular dementia[J]. Chinese Journal of Gerontology, 2023, 43(5):1267-1270. (in Chinese)

[38]
CAO X Y, FU M Y, BI R C, et al. Cadmium induced BEAS-2B cells apoptosis and mitochondria damage via MAPK signaling pathway[J]. Chemosphere, 2021, 263:128346.

DOI

[39]
HAN G H, KIM S J, KO W K, et al. Transplantation of tauroursodeoxycholic acid-inducing M2-phenotype macrophages promotes an anti-neuroinflammatory effect and functional recovery after spinal cord injury in rats[J]. Cell Proliferation, 2021, 54(6):e13050.

DOI

[40]
LONG Y, ZHAO Y, MA X Q, et al. Endoplasmic reticulum stress contributed to inflammatory bowel disease by activating p38 MAPK pathway[J]. European Journal of Histochemistry, 2022, 66(2):3415.

[41]
HU T, ZHAO Y, LONG Y, et al. TLR4 promoted endoplasmic reticulum stress induced inflammatory bowel disease via the activation of p38 MAPK pathway[J]. Bioscience Reports, 2022, 42(4):BSR20220307.

DOI

[42]
FENG L Y, GAO J M, LIU Y G, et al. Icariside II alleviates oxygen-glucose deprivation and reoxygenation-induced PC12 cell oxidative injury by activating Nrf2/SIRT3 signaling pathway[J]. Biomedicine & Pharmacotherapy, 2018, 103:9-17.

DOI

[43]
YANGUAS-CASÁS N, BARREDA-MANSO M A, NIETO-SAMPEDRO M, et al. TUDCA:an agonist of the bile acid receptor GPBAR1/TGR5 with anti-inflammatory effects in microglial cells[J]. Journal of Cellular Physiology, 2017, 232(8):2231-2245.

DOI

[44]
DICKS N, GUTIERREZ K, CURRIN L, et al. Tauroursodeoxycholic acid acts via TGR5 receptor to facilitate DNA damage repair and improve early porcine embryo development[J]. Molecular Reproduction and Development, 2020, 87(1):161-173.

DOI PMID

[45]
DICKS N, GUTIERREZ K, CURRIN L, et al. Tauroursodeoxycholic acid/TGR5 signaling promotes survival and early development of glucose-stressed porcine embryos[J]. Biology of Reproduction, 2021, 105(1):76-86.

DOI PMID

[46]
WU H H, YU N N, WANG X, et al. Tauroursodeoxycholic acid attenuates neuronal apoptosis via the TGR5/SIRT3 pathway after subarachnoid hemorrhage in rats[J]. Biological Research, 2020, 53(1):56.

DOI

Outlines

/