RESEARCH PAPER

Effects of Yeast β-Glucan on Performance, Rumen Fermentation Parameters and Microflora Structure of Dairy Cows in Middle Lactation Period

  • GAO Pengxiang ,
  • PAN Yucong ,
  • FANG Luoyun , * ,
  • ZHAO Luyu ,
  • JIANG Linshu , *
Expand
  • Beijing Key Laboratory of Dairy Cow Nutrition, College of Animal Science and Technology, Beijing University of Agricultural, Beijing 102206, China
* FANG Luoyun, associate professor, E-mail: ;
JIANG Linshu, professor, E-mail:

Received date: 2023-06-22

  Online published: 2023-12-11

Abstract

The aim of this study was to investigate the effects of adding different levels of yeast β-glucan on performance, rumen fermentation parameters and microflora structure of dairy cows in middle lactation period. Selecting 30 healthy dairy cows [similar parity was (2.74±0.71), milk production was (40.32±5.66) kg/d, and days in milk was (95.15±46.25) d] in middle lactation period were randomly divided into 3 groups with 10 heads in each group. Dairy cows in the control group (C group) were fed total mixed diet (TMR), and those in the experimental groups (L and H groups) were supplemented with 20 and 40 g/(d·head) yeast β-glucan, respectively. At days 1, 15, 30, 45 and 60 of the formal trial period, milk and rumen fluid samples were collected to determine the performance, rumen fermentation parameters and rumen microflora structure. The results showed as follows:1) milk yield of cows in L group was significantly higher than that in C group (P<0.01), and milk fat percentage, 4% milk fat corrected milk yield and lactose percentage in L and H groups were significantly higher than those in C group (P<0.05). 2) Compared with C group, the contents of acetic acid and butyric acid in rumen in L group were significantly increased (P<0.05), but the contents of propionic acid, ammonia nitrogen and acetic acid/propionic acid were not significantly different (P>0.05). 3)Based on 16S rRNA high-throughput sequencing technology, it was determined that Firmicutes and Bacteroidota were the dominant bacteria in the rumen of dairy cows in the 3 groups at the phylum level. At the generic level, Prevotella was the dominant bacteria. A total of 56 distinct species were detected in rumen fluid of dairy cows by LEfSe analysis (linear discriminant analysis≥2, P<0.05), of which 24 species played an important role in C group and 32 species played an important role in L group. In conclusion, dietary supplementation of yeast β-glucan can significantly improve milk yield and milk quality of dairy cows during middle lactation period, and also have certain effects on rumen fermentation process and microflora structure.

Cite this article

GAO Pengxiang , PAN Yucong , FANG Luoyun , ZHAO Luyu , JIANG Linshu . Effects of Yeast β-Glucan on Performance, Rumen Fermentation Parameters and Microflora Structure of Dairy Cows in Middle Lactation Period[J]. Chinese Journal of Animal Nutrition, 2023 , 35(12) : 7865 -7878 . DOI: 10.12418/CJAN2023.714

泌乳中期是奶牛泌乳周期中的重要阶段,在此期间,奶牛采食量达到峰值,产奶量由泌乳高峰逐步下降,为保证奶牛下一阶段的生产性能和健康水平,应更关注奶牛瘤胃健康及微生物健康水平。瘤胃是奶牛机体最重要的生物反应器,瘤胃的健康直接影响奶牛健康和牛乳品质,如普雷沃氏菌属(Prevotella)和瘤胃球菌属(Ruminococcus)可以通过影响瘤胃L-酪氨酸和L-色氨酸来调节乳蛋白的合成,从而增加奶牛产奶量和乳中蛋白质含量[1]。β-1,3-1葡聚糖简称β-葡聚糖,是燕麦和其他谷物的细胞壁多糖之一,也是酵母提取物中主要活性成分[2]。据报道,饲喂酵母β-葡聚糖能够显著提高奶牛产奶性能和饲料转化效率,同时维持瘤胃内pH和瘤胃微生物环境恒定。目前,β-葡聚糖已被认定为一种益生元用于人类饮食中,有调节免疫、促进胃肠道健康和稳态等有益作用。在畜牧业应用领域,酵母β-葡聚糖也具有提高动物生长性能、提高抗氧化能力、维持瘤胃健康等积极作用。例如Ma等[3]发现,饲喂犊牛75 mg/kg酵母β-葡聚糖显著提高了犊牛平均日增重(ADG)和料重比(F/G)。饲喂1.5 g/kg的酵母β-葡聚糖显著降低了肉牛血浆中脂多糖(LPS)含量和血清淀粉样蛋白A(SAA)的含量,同时改善了肉牛的瘤胃环境,进一步减少肉牛瘤胃亚急性酸中毒的风险[4]。然而,关于酵母β-葡聚糖研究主要集中于肉牛和犊牛,对泌乳中期奶牛的研究相对较少,且关于补充饲喂酵母β-葡聚糖对泌乳中期奶牛生产性能和瘤胃菌群代谢的影响尚不清楚。因此,本试验通过补充饲喂不同水平的酵母β-葡聚糖,探究其对奶牛生产性能的影响,并采用16S rRNA高通量测序技术揭示酵母β-葡聚糖对奶牛瘤胃微生物区系结构的调控作用,以期为酵母培养物及酵母β-葡聚糖的开发应用提供理论基础。

1 材料与方法

1.1 试验材料

酵母β-葡聚糖购自西安某科技有限公司,纯度为80%,相对分子质量为70~80,为浅黄色至棕色粉末,其他主要成分为水分、粗灰分及其他多糖等物质。

1.2 试验设计

饲养试验在北京某牛场进行,采用随机区组设计,将30头胎次(2.74±0.71)、产奶量[(40.32±5.66) kg/d]、泌乳日龄[(95.15±46.25) d]相近的健康荷斯坦奶牛随机分为3组(每组10头,分别记为C组、L组、H组)。C组奶牛饲喂全混合日粮(TMR),根据前期试验确定,L组奶牛在饲喂TMR的基础上使用牛用口腔投药枪每头每天投喂20 g酵母β-葡聚糖,H组奶牛在饲喂TMR的基础上每头每天投喂40 g酵母β-葡聚糖。
饲养试验共计75 d,其中预试期15 d,正试期60 d。采用阿菲金管道式挤奶系统记录产奶量。饲粮组成及营养水平见表1。饲粮营养水平测定方法如下:依据GB/T 6433—2006测定粗脂肪含量,依据GB/T 6432—2018测定粗蛋白质含量,依据GB/T 6436—2018测定钙含量,依据GB/T 6437—2018测定磷含量,依据GB/T 20806—2022测定中性洗涤纤维含量,依据NY/T 1459—2022测定酸性洗涤纤维含量。
表1 饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 24.53
进口苜蓿Imported alfalfa 14.31
羊草Leymus chinensis 10.20
豆粕Soybean meal 12.32
玉米Corn 15.73
压片玉米Flaked corn 8.17
棉籽粕Cottonseed meal 3.31
甜菜粕Sugar beet pellet 4.81
干酒糟及其可溶物DDGS 3.11
预混料Premix1) 3.51
合计Total 100.00
营养水平Nutrient levels2)
产奶净能NEL/(MJ/kg) 7.13
粗蛋白质CP 17.36
粗脂肪EE 4.56
酸性洗涤纤维ADF 18.50
中性洗涤纤维NDF 31.34
钙Ca 0.68
磷P 0.41

1)每千克预混料含有One kg of premix contained the following: Cu 1 250 mg,Zn 4 900 mg,Mn 1 760 mg,I 50 mg,Se 61 mg,VA 240 000 IU,VD 338 000 IU,VE 1 000 IU。

2)产奶净能为计算值,其他营养水平为实测值。NEL was a calculated value,while the other nutrient levels were measured values.

1.3 样品采集与测定

1.3.1 奶样采集与测定

正试期第1、15、30、45、60天采集早、中、晚奶样。挤奶前擦干乳房,弃去头3把奶,使用奶牛生产性能测定(DHI)奶样瓶采集。将早、中、晚奶样按照4∶3∶3的比例进行混合,置于50 mL离心管中,加入2-溴-2-硝基-1,3-丙二醇作为防腐剂,混匀于4 ℃保存,使用FTA型乳成分分析仪测定牛奶中常规指标乳脂率、乳糖率、乳蛋白率。

1.3.2 瘤胃液采集与指标测定

在正试期第1、15、30、45、60天晨饲后2 h,使用口腔插管采集瘤胃液,并经4层纱布过滤后立即使用pH计(Testo 205,Lenzkirch,德国)测定pH。其余一部分保存于-20 ℃冰箱中,采用安捷伦7980B型气相色谱仪测定瘤胃液中挥发性脂肪酸(VFA)含量,采用UV-1601型紫外可见光分光光度计,参考冯宗慈等[8]的靛酚蓝-分光光度法测定氨态氮含量;另一部分分装置于2 mL冻存管中,保存在液氮中,用于进一步测定瘤胃微生物区系结构。

1.3.3 瘤胃微生物多样性测定

试验结果表明补充饲喂20 g/(d·头)酵母β-葡聚糖对奶牛生产性能的改善效果更为显著。因此,只在C组和L组中检测瘤胃微生物区系结构的差异。
1)DNA提取与检测。利用1%琼脂糖凝胶电泳检测抽提的基因组DNA,使用NanoDrop2000(Thermo Scientific,美国)对DNA浓度进行检测。2)扩增及测序。PCR采用TransGen AP221-02:TransStart Fastpfu DNA Polymerase(ABI GeneAmp® 9700型)进行扩增,每个样本3个重复,将同一样本的PCR产物混合后用2%琼脂糖凝胶电泳检测,使用AxyPrepDNA凝胶回收试剂盒(AXYGEN公司)切胶回收PCR产物,用QuantiFluorTM -ST蓝色荧光定量系统(Promega公司)进行检测定量。3)用LEfSe软件对reads进行拼接,通过Up-arse软件将相近性≥97%的序列聚类到1个操作分类单元(OTU)上并进行注释,使用R软件(vision 3.2.2)计算样品间UniFrac距离,分析微生物群落beta多样性。

1.4 数据分析

使用Excel 2010对试验数据进行初步整理,再使用SPSS 21.0统计分析软件进行单因素方差分析(one-way ANOVA),采用LSD法进行组间多重比较,P<0.01表示差异极显著,P≤0.05表示差异显著。Illumina PE250测序得到的PE reads首先根据overlap关系进行拼接,同时对序列质量进行质控和过滤,之后进行OTU聚类分析和物种分类学分析,基于OTU聚类分析结果,对OTU进行多种多样性指数分析。

2 结果与分析

2.1 酵母β-葡聚糖对泌乳中期奶牛生产性能的影响

表2可知,L组和H组的奶牛产奶量极显著高于C组(P<0.01)。此外,饲喂酵母β-葡聚糖组中,4%乳脂校正奶产量、乳脂率和乳糖率均显著高于C组(P≤0.05)。进一步对比分析发现,补充饲喂20 g/(d·头)酵母β-葡聚糖对奶牛生产性能的改善效果更为显著。
表2 酵母β-葡聚糖对泌乳中期奶牛生产性能的影响

Table 2 Effects of yeast β-glucan on performance of dairy cows in middle lactation period

项目
Items
C组
C group
L组
L group
H组
H group
SEM P
P-value
产奶量Milk yield/(kg/d) 39.65Bb 41.25Aa 41.31Aa 0.12 <0.01
4%乳脂校正奶产量4% FCM yield/(kg/d) 37.28b 40.26a 39.20ab 0.28 0.03
乳脂率Milk fat percentage/% 3.60b 3.84a 3.66ab 0.04 0.04
乳蛋白率Milk protein percentage/% 3.19 3.17 3.15 0.02 0.79
乳糖率Lactose percentage/% 4.99b 5.05a 5.01ab 0.01 0.05

同行数据肩标不同小写字母表示差异显著(P≤0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with different small letter superscripts mean significant difference(P≤0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 酵母β-葡聚糖对泌乳中期奶牛瘤胃发酵参数的影响

表3可知,与C组相比,L组泌乳奶牛瘤胃液中乙酸和丁酸含量均显著增加(P<0.05);H组泌乳奶牛瘤胃液中丁酸含量显著增加(P<0.05);C组、L组、H组泌乳奶牛瘤胃液中的pH、氨态氮、丙酸、异戊酸、总挥发性脂肪酸含量和乙酸/丙酸无显著差异(P>0.05)。
表3 酵母β-葡聚糖对泌乳中期奶牛瘤胃发酵参数的影响

Table 3 Effects of yeast β-glucan on rumen fermentation parameters of dairy cows in middle lactation period

项目
Items
C组
C group
L组
L group
H组
H group
SEM P
P-value
pH 6.51 6.41 6.47 0.02 0.09
氨态氮Ammoniacal nitrogen/(mg/dL) 15.67 16.54 14.56 0.58 0.16
乙酸Acetate/(mmol/L) 58.19b 61.65a 59.62b 0.56 0.04
丙酸Propionate/(mmol/L) 22.57 23.36 23.74 0.29 0.20
乙酸/丙酸Acetate/propionate 2.60 2.66 2.54 0.23 0.15
丁酸Butyrate/(mmol/L) 11.44b 12.57a 12.14a 0.17 0.03
异戊酸Isovalerate/(mmol/L) 1.87 2.11 1.97 0.04 0.08
戊酸Valerate/(mmol/L) 1.66 1.89 1.85 0.04 0.09
总挥发性脂肪酸TVFA/(mmol/L) 95.73 101.50 99.32 0.97 0.08

2.3 酵母β-葡聚糖对泌乳中期奶牛瘤胃微生物区系结构的影响

2.3.1 ɑ多样性分析
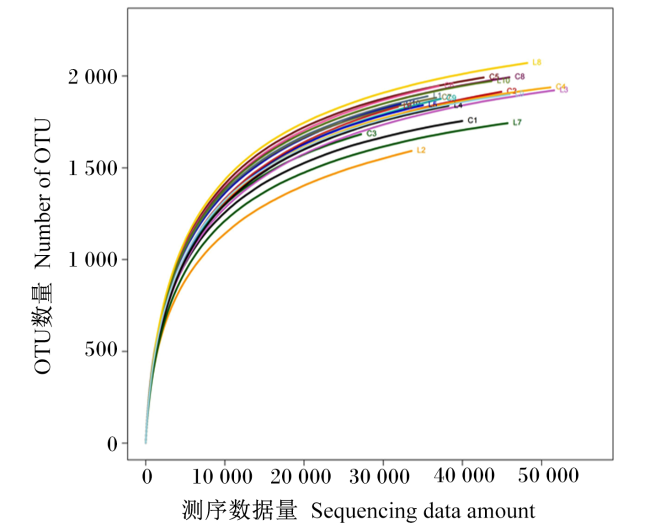
图1稀释曲线可知,随着测序数据量的增加,曲线趋于平缓,表明数据量符合后续检测要求。由表4可知,L组和C组覆盖度指数均大于0.99,表明试验样本序列覆盖度满足要求,本次测序结果能够代表瘤胃微生物的真实情况。Chao 1指数、Shannon指数和Simpson指数在C组、L组中无显著差异(P>0.05)。
图1 稀释曲线

Fig.1 Rarefaction curve

表4 酵母β-葡聚糖对泌乳中期奶牛瘤胃微生物多样性指数的影响

Table 4 Effects of yeast β-glucan on rumen microbial diversity indexes of dairy cows in middle lactation period

项目Items C组C group L组L group SEM PP-value
Chao1指数Chao1 index 2 118.60 2 086.20 1.11 0.49
香浓指数Shannon index 6.13 6.02 0.12 0.12
辛普森指数Simpson index 0.009 9 0.012 0 0.001 3 0.40
覆盖度指数Coverage index 0.99 0.99 0.02 0.68

2.3.2 瘤胃细菌菌群组成分析

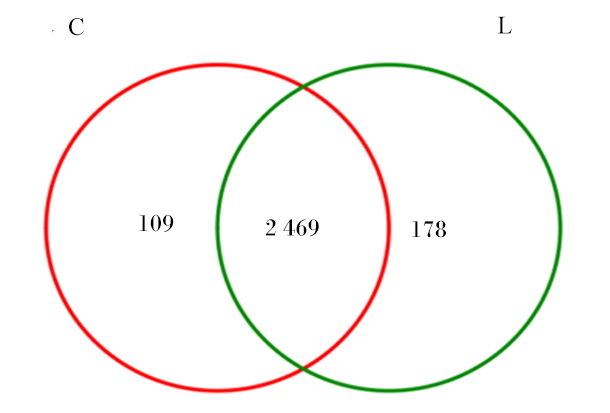
图2可知,2组共检测到2 756个OTU,其中C组特有OTU 109个,L组特有OTU 178个,分别占总OTU数的4.05%和6.46%。与C组相比,L组泌乳中期奶牛瘤胃细菌菌群组成发生了改变。
图2 Venn图

C:C组 C group;L:L组 L group。下图同 the same as below。

Fig.2 Venn diagram

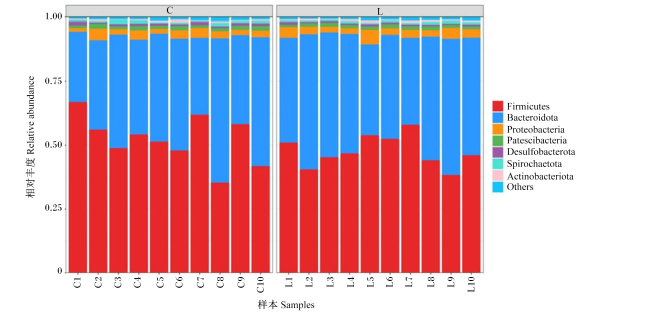
图3表5分别为2组泌乳中期奶牛瘤胃细菌菌群在门水平上的组成及相对丰度>1%的菌门的相对丰度。基于分类学对OTU进行分析发现,在门水平上,C组与L组检测出7个共有菌门。厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、变形菌门(Proteobacteria)、Patescibacteria是相对丰度较高的4个菌门(相对丰度>1%),4个菌门的相对丰度总和占微生物总丰度的96.5%以上,尤其是拟杆菌门与厚壁菌门,二者相对丰度的总和占比91%以上,为奶牛瘤胃微生物中的2个优势菌门。此外,与C组相比,L组拟杆菌门、厚壁菌门的相对丰度差异不显著(P>0.05),但拟杆菌门的相对丰度有升高的趋势,厚壁菌门的相对丰度有降低的趋势。
图3 微生物群落柱状图(门水平)

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Desulfobacterota:脱硫杆菌门;Actinobacteriota:放线菌门;Others:其他。

Fig.3 Microbial community histogram (phylum level)

表5 优势菌门及其相对丰度变化

Table 5 Dominant bacteria phyla and their relative abundance change %

项目Items C组C group L组L group SEM PP-value
拟杆菌门Bacteroidota 40.17 44.75 1.81 0.21
厚壁菌门Firmicutes 52.26 47.63 1.80 0.21
Patescibacteria 1.41 1.29 0.06 0.31
变形菌门Proteobacteria 2.82 3.31 0.23 0.31
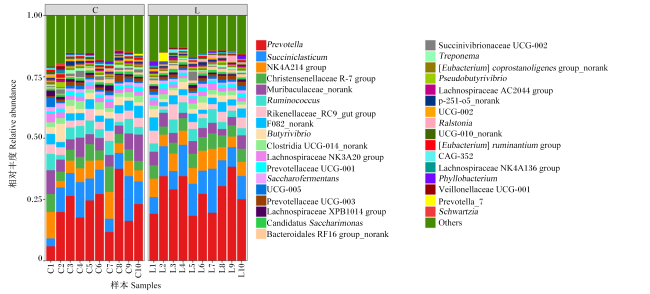
图4表6分别为C组与L组泌乳期奶牛瘤胃微生物在属水平上的组成以及相对丰度前18位菌属的相对丰度变化。在C组、L组泌乳期奶牛瘤胃中共存在385个菌属,其中普雷沃氏菌属(Prevotella)、解琥珀酸菌属(Succiniclasticum)、NK4A214群(NK4A214 group)、克里斯藤森菌科R-7群(Christensenellaceae R-7 group)、Muribaculaceae_norank这5个菌属的相对丰度均大于5%。普雷沃菌氏属相对丰度在C组、L组中分别占比22.03%、27.62%,为属水平的优势菌属。由表7可以看出,与C组相比,L组泌乳期奶牛瘤胃中Muribaculaceae_norank、琥珀酸弧菌科UCG-002(Succinivibrionaceae UCG-002)、未分类梭菌纲 UCG-014(Clostridia UCG-014_norank)的相对丰度显著下降(P<0.05);理研菌科_RC9_肠道群(Rikenellaceae_RC9_gut_group)、拟杆菌目RF16未分类群(Bacteroidales RF16 group_norank)相对丰度升高(0.05<P<0.10)。
图4 微生物群落柱状图(属水平)

Prevotella:普雷沃氏菌属;Succiniclasticum:解琥珀酸菌属;NK4A214 group:NK4A214群;Christensenellaceae R-7 group:克里斯藤森菌科R-7群;Ruminococcus:瘤胃球菌属:Rikenellaceae_RC9_gut group:理研菌科_RC9_肠道群;F082_norank:F082未分类;Butyrivibrio:丁酸弧菌属:Clostridia UCG-014_norank:未分类梭菌纲 UCG-014;Lachnospiraceae NK3A20 group:毛螺菌科NK3A20群;Prevotellaceae UCG-001:普雷沃氏菌科UCG-001;Saccharofermentans:产乙酸糖发酵菌属;Prevotellaceae UCG-003:普雷沃氏菌科UCG-003;Lachnospiraceae XPB1014 group:毛螺菌科XPB1014群;Candidatus Saccharimonas:候选单胞生糖菌属;Bacteroidales RF16 group_norank:拟杆菌目RF16未分类群;Succinivibrionaceae UCG-002:琥珀酸弧菌科UCG-002;Treponema:密螺旋体属;[Eubacterium] coprostanoligenes group_norank:产粪甾醇真杆菌属未分类群;Pseudobutyrivibrio:假丁酸弧菌属;Lachnospiraceae AC2044 group:毛螺菌科AC2044群;p-251-o5_norank:p-251-o5未分组; UCG-010_norank:UCG-010未分组;[Eubacterium] ruminantium group:啮齿真杆菌属群;Lachnospiraceae NK4A136 group:毛螺菌科NK4A136群;Phyllobacterium:叶杆菌属;Veillonellaceae UCG-001:韦荣球菌科UCG-001;Prevotella_7:普雷沃氏菌属_7;Schwartzia:施瓦茨氏菌属;Others:其他。

Fig.4 Microbial community histogram (genus level)

表6 优势菌属及其相对丰度的变化

Table 6 Dominant bacteria genera and their relative abundance change %

项目
Items
C组
C group
L组
L group
SEM P
P-value
普雷沃氏菌属Prevotella 22.03 27.62 2.01 0.08
解琥珀酸菌属Succiniclasticum 9.54 9.93 0.69 0.60
Muribaculaceae_norank 6.10a 4.20b 0.48 0.05
NK4A214群NK4A214 group 5.62 6.61 0.46 0.16
克里斯藤森菌科R-7群Christensenellaceae R-7 group 4.71 5.10 0.42 0.41
瘤胃球菌属Ruminococcus 4.93 3.81 0.33 0.06
F082未分类F082_norank 3.59 3.11 0.24 0.32
理研菌科_RC9_肠道群Rikenellaceae_RC9_gut group 3.25 4.17 0.27 0.07
丁酸弧菌属Butyrivibrio 2.90 2.16 0.30 0.23
未分类梭菌纲UCG-014 Clostridia UCG-014_norank 2.47a 1.59b 0.13 0.03
毛螺菌科NK3A20群Lachnospiraceae NK3A20 group 2.01 1.81 0.14 0.48
普雷沃氏菌科UCG-001 Prevotellaceae UCG-001 1.41 1.33 0.08 0.63
产乙酸糖发酵菌属Saccharofermentans 1.39 1.10 0.08 0.08
UCG-005 1.31 1.07 0.15 0.45
普雷沃氏菌科UCG-003 Prevotellaceae UCG-003 1.16 1.21 0.10 0.80
毛螺菌科XPB1014群Lachnospiraceae XPB1014 group 1.11 0.78 0.10 0.14
琥珀酸弧菌科UCG-002 Succinivibrionaceae UCG-002 1.28a 0.52b 0.20 0.01
拟杆菌目RF16未分类菌群Bacteroidales RF16 group_norank 0.75 1.11 0.10 0.06
表7 2组中起重要作用的差异物种

Table 7 Differential species that play an important role in the two groups

物种
Species
符号
Letter1)
相对丰度
Relative
abundance2)
组别
Groups
LDA值
LDA value
P
P-value
维氏菌目Vicinamibacterales a 2.18 C 2.00 0.03
维氏菌纲Vicinamibacteria b 2.38 C 2.11 0.04
微杆菌科Microbacteriaceae c 2.61 L 2.10 0.05
微球菌目Micrococcales d 2.63 L 2.11 0.04
噬几丁质菌科Chitinophagaceae e 2.19 L 2.01 <0.01
噬几丁质菌属Chitinophagales f 2.96 L 2.48 0.01
黄杆菌目Flavobacteriales g 2.41 L 2.17 0.04
NS11_12_marine_group h 2.34 L 2.10 <0.01
鞘氨醇杆菌目Sphingobacteriales i 2.35 L 2.10 0.01
Bradymonadales j 3.64 C 2.97 <0.01
脱硫单胞菌纲Desulfuromonadia k 3.64 C 2.97 <0.01
纤维杆菌科Fibrobacteraceae l 2.80 C 2.08 0.03
纤维菌杆目Fibrobacterales m 2.80 C 2.08 0.03
纤维菌杆门Fibrobacteria n 2.80 C 2.08 0.03
RF39 o 3.41 C 2.56 <0.01
未分类梭菌纲UCG-014 Clostridia UCG-014_norank p 4.35 C 3.40 0.05
柄杆菌科Caulobacteraceae q 2.61 L 2.17 0.03
生丝单胞菌科Hyphomonadaceae r 2.63 C 2.33 0.02
Micropepsaceae s 2.91 L 2.59 0.00
Micropepsales t 2.91 L 2.59 0.00
鞘脂单胞菌科Sphingomonadaceae u 2.93 L 2.29 0.01
鞘脂单胞菌目Sphingomonadales v 2.93 L 2.29 0.01
伯克氏菌科Burkholderiaceae w 3.89 L 3.38 0.01
伯克氏菌目Burkholderiales x 3.95 L 3.40 0.00
Steroidobacteraceae y 2.49 C 2.23 0.01
Steroidobacterales z 2.49 C 2.22 0.01
罗河杆菌科Rhodanobacteraceae a0 3.39 L 2.91 0.01
黄色单胞菌科Xanthomonadaceae a1 2.60 L 2.31 0.01
黄色单胞菌目Xanthomonadales a2 3.46 L 3.00 0.01
疣微菌科Verrucomicrobiaceae a3 2.61 L 2.27 0.03
疣微菌目Verrucomicrobiales a4 2.64 L 2.20 0.04
疣微菌纲Verrucomicrobiae a5 2.66 L 2.23 0.03

1)表示与进化分枝图中的字母对应;2)表示差异物种在差异组的相对丰度。

1) corresponds to a letter in the evolutionary branching diagram; 2) represents the relative abundance of different species in different groups.

2.3.3 beta多样性比较分析

2.3.3.1 基于UniFrac的聚类树分析
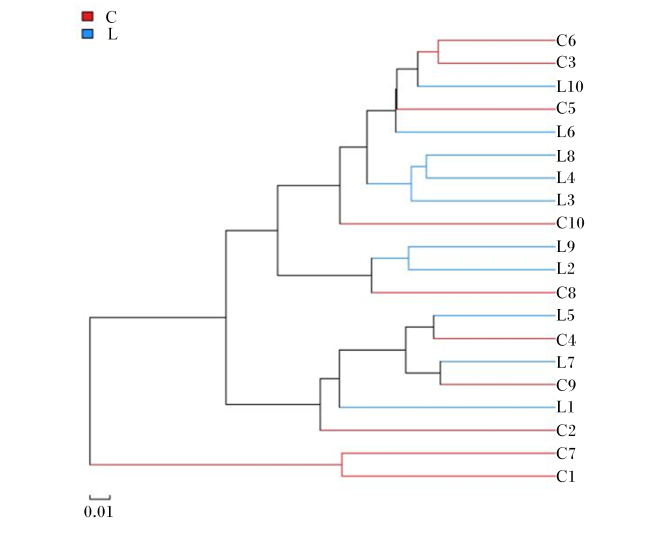
图5为泌乳中期荷斯坦奶牛瘤胃细菌菌群在进化上的相似性或差异性。基于进化树树枝的距离和聚类的远近能够将进化相似性或差异性可视化。由图5可知,L组树枝的距离短,聚类近,C组与之相反,树枝的距离长,聚类远。这表明L组瘤胃细菌菌群在进化上具有相似性。酵母β-葡聚糖能够调控瘤胃细菌菌群组成,使瘤胃内的细菌菌群组成趋一化。
图5 微生物进化树分析图

Fig.5 Microbial evolution tree analysis diagram

2.3.3.2 基于beta多样性距离的非度量多维尺度分析(NMDS)

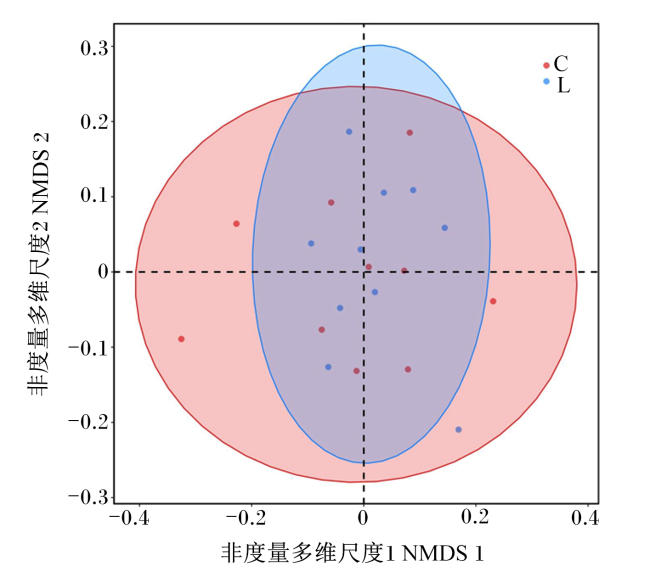
NMDS分析不同于微生物进化树分析,NMDS分析用空间内的点代表不同的样本,将样本间的差异折射到空间点的距离上。由图6可以看出,C组的红点分布散,彼此间的距离大,而L组的蓝点分布聚集,彼此间的距离小。这表明与C组相比,L组的瘤胃细菌菌群在进化上具有更大的相似性。
图6 NMDS分析图

红色的点代表C组样本,蓝色的点代表L组样本。

Fig.6 NMDS analysis diagram

The red dots represent samples in C group, while the blue dots represent samples in L group.

2.3.3.3 LEfSe分析

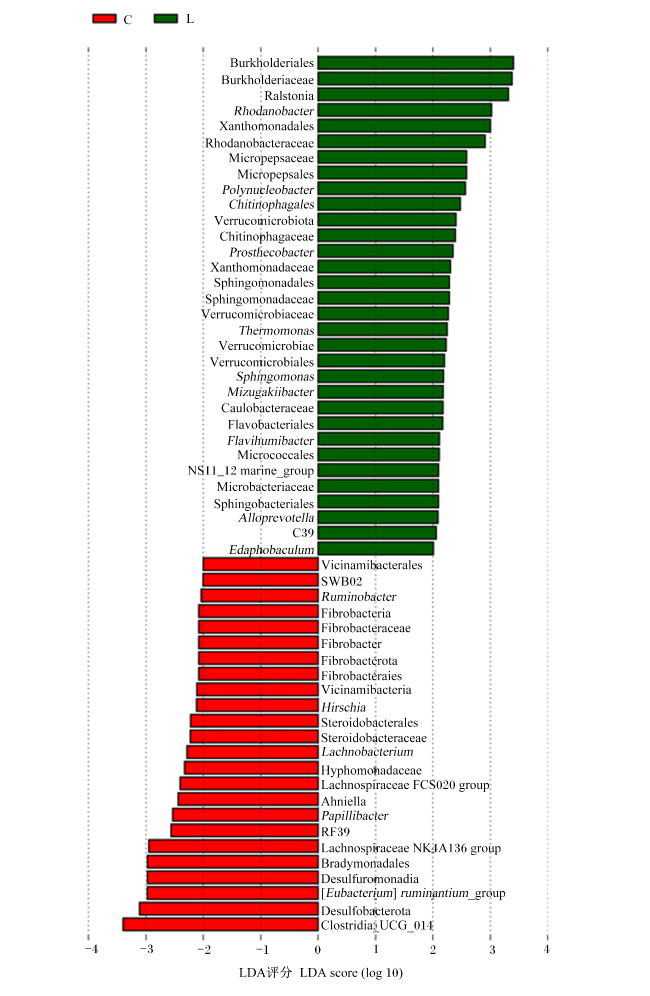
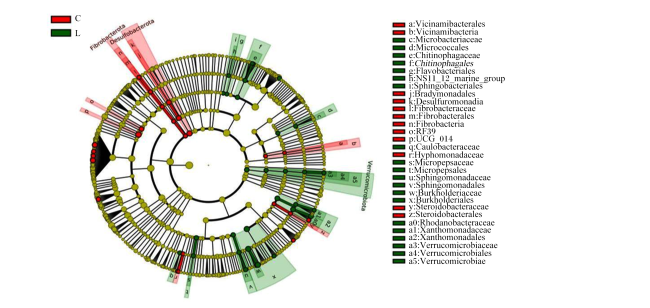
图7可以看出,在2组中共存在56种差异物种,其中C组存在24种差异物种,L组存在32种差异物种。从图8可以发现,在C组中起重要作用的差异物种有12种,在L组中起重要作用的差异物种有20种。结果表明,酵母β-葡聚糖能够影响瘤胃细菌菌群的丰度。表9罗列了在2组中发挥重要作用的差异物种。
图7 LDA分析柱图

Burkholderiales:伯克氏菌目;Burkholderiaceae:伯克氏菌科;Rhodanobacter:罗河杆菌属;Xanthomonadales:黄色单胞菌目;Rhodanobacteraceae:罗河杆菌科; Polynucleobacter:多核杆菌属;Chitinophagales:噬几丁质菌属;Verrucomicrobiota:疣微菌门;Chitinophagaceae:噬几丁质菌科;Prosthecobacter:突柄杆菌属;Xanthomonadaceae:黄色单胞菌科;Sphingomonadales:鞘脂单胞菌目;Sphingomonadaceae:鞘脂单胞菌科;Verrucomicrobiaceae:疣微菌科;Thermomonas:热单胞菌属;Verrucomicrobiae:疣微菌纲;Verrucomicrobiales:疣微菌目;Sphingomonas:鞘氨醇菌属;Mizugakiibacter:水恒杆菌属;Caulobacteraceae:柄杆菌科;Flavobacteriales:黄杆菌目;Flavihumibacter:黄湿杆菌属;Micrococcales:微球菌目; Microbacteriaceae:微球菌科;Sphingobacteriales:鞘氨醇杆菌目;Alloprevotella:肠道拉瓦异普雷沃氏菌属; Edaphobacter:酸杆菌属;Vicinamibacterales:维氏菌目;Ruminobacter:瘤胃杆菌属; Fibrobacteraceae:纤维杆菌科;Fibrobacterota:纤维杆菌门;Fibrobacteraies:纤维杆菌纲;Vicinamibacteria:维氏菌纲;Hirschia:海氏菌属; Lachnobacterium:毛螺旋菌属;Hyphomonadaceae:生丝单胞菌科;Lachnospiraceae FCS020 group:毛螺菌科FCS020群;Papillibacter:帕匹杆菌属; Lachnospiraceae NK4A136 group:毛螺菌科NK4A136群; Desulfuromonadia:脱硫单胞菌纲;[Eubacterium] ruminantium_group:啮齿真杆菌属群;Desulfobacterota:脱硫杆菌门;Clostridia UCG-014_norank:未分类梭菌纲 UCG-014。

Fig.7 LDA analysis column diagram

图8 进化分枝图

Vicinamibacterales:维氏菌目;Vicinamibacteria:维氏菌纲;Microbacteriaceae:微球菌科;Micrococcales:微球菌目;Chitinophagaceae:噬几丁质菌科;Chitinophagales:噬几丁质菌属;Flavobacteriales:黄杆菌目; Sphingobacteriales:鞘氨醇杆菌目;Desulfuromonadia:脱硫单胞菌纲;Fibrobacteraceae:纤维杆菌科;Fibrobacterales:纤维杆菌目;Fibrobacteria:纤维杆菌纲;Clostridia UCG-014_norank:未分类梭菌纲 UCG-014;Caulobacteraceae:柄杆菌科;Hyphomonadaceae:生丝单胞菌科; Sphingomonadaceae:鞘脂单胞菌科;Sphingomonadales:鞘脂单胞菌目;Burkholderiaceae:伯克氏菌科;Burkholderiales:伯克氏菌目; Rhodanobacteraceae:罗河杆菌科;Xanthomonadaceae:黄色单胞菌科;Xanthomonadales:黄色单胞菌目;Verrucomicrobiaceae:疣微菌科;Verrucomicrobiales:疣微菌目;Verrucomicrobiae:疣微菌纲。

Fig.8 Evolutionary branching diagram

3 讨论

3.1 酵母β-葡聚糖对泌乳中期奶牛生产性能的影响

生产性能既是泌乳期奶牛健康状况的重要体现,也是影响牛场经济效益的重要因素。Xia等[5]研究发现,β-1,3-葡聚糖(含量为50%)能够显著提高围产期奶牛的产奶量,改善乳品质,表现为初乳中体细胞数的降低和免疫球蛋白含量的提高。本试验中,酵母β-葡聚糖极显著提高了泌乳中期奶牛的产奶量,且增加了乳脂率及乳糖率。上述研究结果表明,酵母β-葡聚糖能够提高泌乳中期奶牛的产奶量及乳品质,这意味着有更多饲粮来源的营养物质被机体代谢用于乳腺组织中乳脂、乳蛋白、乳糖的合成。本试验前期研究发现,乳中体细胞数能够反映乳品质、乳腺健康和机体免疫情况[6]。综上可知,酵母β-葡聚糖能够显著提高泌乳中期奶牛的产奶量。

3.2 酵母β-葡聚糖对泌乳中期奶牛瘤胃发酵参数的影响

瘤胃在奶牛消化过程中起着关键作用,为微生物的生存与繁殖提供了场所和必要的营养物质,瘤胃内的微生物群通过发酵TMR中的粗纤维、粗蛋白质等营养物质产生短链脂肪酸、氨态氮等物质,满足机体自身的营养与能量需求。瘤胃微生物易受瘤胃pH影响。瘤胃pH过低能够抑制微生物的生长和繁殖,改变瘤胃发酵参数。Cherdthong等[7]研究发现,酵母β-葡聚糖对泰国本地肉牛的瘤胃pH无显著影响。李冲等[8]研究发现,酵母β-葡聚糖不影响羔羊瘤胃内的酸性环境。Wang等[9]研究发现,酵母β-葡聚糖能够显著降低围产期奶牛瘤胃pH。本试验结果表明,L组的酵母β-葡聚糖降低了泌乳中期奶牛瘤胃pH。酵母β-葡聚糖在不同研究中对瘤胃pH的影响不同,可能与研究对象不同的生理条件有关。而本试验中,酵母β-葡聚糖能够降低瘤胃pH可能与瘤胃中乙酸含量显著升高有关。乙酸、丙酸、丁酸是瘤胃内主要的挥发性脂肪酸[10]。Kido等[11]研究发现,饲喂β-葡聚糖的犊牛在断奶后4周的瘤胃总挥发性脂肪酸和丁酸含量显著升高。在以谷物为基础的饲粮中添加甘露寡糖(酵母β-葡聚糖和甘露聚糖)可提高肉牛瘤胃内异丁酸含量。本试验结果表明,酵母β-葡聚糖显著提高了瘤胃乙酸、丁酸含量,改善了泌乳中期奶牛瘤胃发酵参数。尽管酵母β-葡聚糖在犊牛、肉牛、奶牛中的应用效果不同,但都能够用来证实酵母β-葡聚糖能够改善其发酵参数。研究表明,乙酸是乳脂合成的重要前体物,且乙酸含量与产奶量具有显著正相关关系[12]。瘤胃内丁酸含量低,但相比于乙酸、丙酸,丁酸更易被瘤胃上皮细胞吸收利用,有助于乙酸、丙酸的吸收利用。此外,犊牛瘤胃内丁酸含量较高时有助于胃肠道发育,提高隐窝比[11]。异丁酸、异戊酸含量在肉牛瘤胃中相对较高,这是因为肉牛瘤胃微生物在发酵饲粮中蛋白质过程中会产生异酸(异丁酸、异戊酸)[4]

3.3 酵母β-葡聚糖对泌乳中期奶牛瘤胃微生物区系结构的影响

瘤胃微生物发酵有机物产生菌体蛋白、挥发性脂肪酸等是反刍动物宿主的能量和蛋白质需求的重要部分。瘤胃微生物区系是高度多样化的,其组成取决于饲粮的类型和数量,宿主物种及其生理状态。有研究表明,当覆盖度大于97%就能反映试验数据是可靠的[13]。在本试验中,C组、L组的覆盖度均在0.97以上,说明试验数据真实有效。此外,在2组间未发现Chao1指数、Shannon指数与Simpson指数差异显著,表明酵母β-葡聚糖不影响泌乳中期奶牛瘤胃微生物的丰度和多样性。
研究表明,厚壁菌门与拟杆菌门是泌乳奶牛瘤胃微生物中相对丰度较高的优势菌门[14-15]。厚壁菌门和拟杆菌门是奶牛瘤胃中重要的纤维降解菌门,它们能够降解复杂的植物多糖并产生挥发性脂肪酸,二者相对丰度总和在2组中几乎不变,均高于92%。与C组相比,L组奶牛瘤胃中的厚壁菌门的相对丰度降低了4.63%,拟杆菌门的相对丰度提高了4.58%。本试验结果表明,酵母β-葡聚糖改变了泌乳期奶牛瘤胃微生物中优势菌门的相对丰度。
研究发现,在属水平上,普雷沃氏菌属是泌乳奶牛瘤胃微生物中相对丰度最高的优势菌属[16]。本研究结果表明,普雷沃氏菌属在C组中相对丰度为22.03%;L组中相对丰度为27.62%。普雷沃氏菌属在高纤维饲料中含量更丰富,能够降解半纤维素、果胶、淀粉或蛋白质作为能量来源生产琥珀酸盐和乙酸盐[17-19]。在本研究中,与C组相比,L组Muribaculaceae_norank的相对丰度提高。Muribaculaceae也被称为S24-7家族,与碳水化合物降解密切相关。研究指出,瘤胃液pH与Muribaculaceae_norank相对丰度呈正相关[20]。这可能解释了试验中观察到的瘤胃pH下降的原因。在本研究中,厚壁菌门中琥珀酸菌属占优势。琥珀酸菌属发酵琥珀酸并将其转化为丙酸[21-22],丙酸盐是泌乳奶牛肝脏糖异生的主要前体,占总葡萄糖的45%~60%[23]。与C组相比,L组纤维降解菌Muribaculaceae_norank、梭状芽孢杆菌属UCG-014未分类、琥珀酸弧菌科UCG-002的相对丰度显著降低,但观察到瘤胃乙酸含量不降反升,这可能与普雷沃氏菌属、理研菌科_RC9_肠道群、拟杆菌目RF16未分类菌群的相对丰度增加有关。有研究表明,理研菌科具有降解结构性碳水化合物的作用,普雷沃氏菌属能够降解半纤维素生产琥珀酸盐和乙酸盐[24-25]。因此,推测酵母β-葡聚糖改变瘤胃内不同纤维降解菌的相对丰度,改变纤维降解的作用方式。
通过LEfSe分析,可以观察到本试验中酵母β-葡聚糖显著影响了泌乳中期奶牛瘤胃内56种细菌菌群(基于纲、目、科、属水平)的相对丰度。相对丰度增加的微生物群落主要有:疣微菌纲、疣微菌目、疣微菌科、微球菌目、微球菌科、黄色单胞菌目、黄色单胞菌科、鞘脂单胞菌目、鞘脂单胞菌科、伯克氏菌目、伯克氏菌科;相对丰度降低的微生物群落有:纤维杆菌目、纤维杆菌科及未分类梭菌纲 UCG-014。这些微生物群落对于维持瘤胃内环境的稳态、提高营养物质的消化代谢、保障机体健康发挥了不可忽视的作用[26-27]。有研究表明,疣微菌纲微生物嗜酸能够在低pH环境中生长繁殖,和微球菌目微生物合成烯烃和脂肪酸[28]。伯克氏菌目/科、黄色单胞菌目能够降解纤维素。有研究发现,黄色单胞菌目能够分泌肽聚糖水解酶,增强对非结构性碳水化合物的降解速率[29-30]。纤维杆菌目由不同的纤维分解菌组成,具有纤维降解活性[31]。这表明酵母β-葡聚糖改变了瘤胃微生物的组成。从beta多样性的分析结果来看,酵母β-葡聚糖对瘤胃微生物组成的改变使其在微生物进化上具有相似性。

4 结论

本研究揭示了酵母β-葡聚糖在泌乳中期奶牛瘤胃中的重要作用。酵母β-葡聚糖显著影响了瘤胃的发酵参数,包括降低了瘤胃的pH,促进了挥发性脂肪酸如乙酸和丁酸的积累,有助于保持瘤胃的酸性环境,以维持微生物的正常生长和发酵活性。此外,酵母β-葡聚糖还对奶牛瘤胃微生物区系结构产生了显著影响,导致一些菌群的相对丰度发生了变化,这可能进一步影响了瘤胃内环境的稳定性。然而,仍需进一步研究酵母β-葡聚糖在不同生理状态下的作用机制以及其在实际饲养中的应用潜力。
[1]
ZHANG C G, WANG M Y, LIU H F, et al. Multi-omics reveals that the host-microbiome metabolism crosstalk of differential rumen bacterial enterotypes can regulate the milk protein synthesis of dairy cows[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):63.

DOI PMID

[2]
夏俊良, 张永亮, 陈婷. 饲用酵母产品及应用研究进展[J]. 广东畜牧兽医科技, 2022, 47(2):51-57.

DOI

XIA J L, ZHANG Y L, CHEN T. Research progress in the application of feed yeast product[J]. Guangdong Journal of Animal and Veterinary Science, 2022, 47(2):51-57. (in Chinese)

DOI

[3]
MA T, TU Y, ZHANG N, et al. Effects of dietary yeast β-glucan on nutrient digestibility and serum profiles in pre-ruminant Holstein calves[J]. Journal of Integrative Agriculture, 2015, 14(4):749-757.

DOI

[4]
GARCIA DIAZ T, FERRIANI BRANCO A, JACOVACI F A, et al. Use of live yeast and mannan-oligosaccharides in grain-based diets for cattle:ruminal parameters,nutrient digestibility,and inflammatory response[J]. PLoS One, 2018, 13(11):e0207127.

DOI

[5]
XIA W H, WANG L, NIU X D, et al. Supplementation with beta-1,3-glucan improves productivity,immunity and antioxidative status in transition Holstein cows[J]. Research in Veterinary Science, 2021, 134:120-126.

DOI

[6]
詹经纬, 童津津, 熊本海, 等. 奶牛乳腺健康与乳中体细胞数之间关系的研究进展[J]. 动物营养学报, 2021, 33(3):1299-1305.

DOI

ZHAN J W, TONG J J, XIONG B H, et al. Research progress on relationship of mammary gland health and milk somatic cell count of dairy cows[J]. Chinese Journal of Animal Nutrition, 2021, 33(3):1299-1305. (in Chinese)

[7]
CHERDTHONG A, SEANKAMSORN A, SURIYAPHA C, et al. Effect of beta-glucan supplementation on feed intake,digestibility of nutrients and ruminal fermentation in Thai native beef cattle[J]. Journal of Animal Physiology and Animal Nutrition, 2018, 102(6):1509-1514.

DOI

[8]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of colorimetric method for determination of ammonia nitrogen content in rumen fluid[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[9]
WANG Y, NAN X M, ZHAO Y G, et al. Dietary supplementation of inulin ameliorates subclinical mastitis via regulation of rumen microbial community and metabolites in dairy cows[J]. Microbiology Spectrum, 2021, 9(2):e0010521.

DOI

[10]
BERGMAN E N. Energy contributions of volatile fatty acids from the gastrointestinal tract in various species[J]. Physiological Reviews, 1990, 70(2):567-590.

DOI PMID

[11]
KIDO K, TEJIMA S, HARAMIISHI M, et al. Provision of beta-glucan prebiotics (cellooligosaccharides and kraft pulp) to calves from pre- to post-weaning period on pasture[J]. Animal Science Journal, 2019, 90(12):1537-1543.

DOI PMID

[12]
郭晨阳. 植物复合提取物对奶牛瘤胃发酵、产奶性能和细菌区系的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2020.

GUO C Y. Effects of compound plant extracts on rumen fermentation,milk production performance and bacterial flora in dairy cows[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2020. (in Chinese)

[13]
MAO S Y, ZHANG R Y, WANG D S, et al. The diversity of the fecal bacterial community and its relationship with the concentration of volatile fatty acids in the feces during subacute rumen acidosis in dairy cows[J]. BMC Veterinary Research, 2012, 8:237.

DOI PMID

[14]
WALLACE R J, SASSON G, GARNSWORTHY P C, et al. A heritable subset of the core rumen microbiome dictates dairy cow productivity and emissions[J]. Science Advances, 2019, 5(7):eaav8391.

DOI

[15]
PITTA D W, INDUGU N, BAKER L, et al. Symposium review:understanding diet-microbe interactions to enhance productivity of dairy cows[J]. Journal of Dairy Science, 2018, 101(8):7661-7679.

DOI

[16]
冶文兴. 稻草替代部分比例青贮对奶牛瘤胃发酵、菌群结构以及血液生化指标的影响[D]. 硕士学位论文. 银川: 宁夏大学, 2020.

YE W X. Study the changes of rumen fermentation,serum biochemical parameters and flora structure on dairy cows with rice straw replaces partial proportion silage[D]. Master’s Thesis. Yinchuan: Ningxia University, 2020. (in Chinese)

[17]
STEVENSON D M, WEIMER P J. Dominance of Prevotella and low abundance of classical ruminal bacterial species in the bovine rumen revealed by relative quantification real-time PCR[J]. Applied Microbiology and Biotechnology, 2007, 75(1):165-174.

DOI

[18]
JAMI E, ISRAEL A, KOTSER A, et al. Exploring the bovine rumen bacterial community from birth to adulthood[J]. ISME Journal, 2013, 7(6):1069-1079.

DOI PMID

[19]
BEKELE A Z, KOIKE S, KOBAYASHI Y. Genetic diversity and diet specificity of ruminal Prevotella revealed by 16S rRNA gene-based analysis[J]. FEMS Microbiology Letters, 2010, 305(1):49-57.

DOI

[20]
SUN Z Q, YU Z, WANG B. Perilla frutescens leaf alters the rumen microbial community of lactating dairy cows[J]. Microorganisms, 2019, 7(11):562.

DOI

[21]
FERNANDO S C, PURVIS H T 2ND, NAJAR F Z, et al. Rumen microbial population dynamics during adaptation to a high-grain diet[J]. Applied and Environmental Microbiology, 2010, 76(22):7482-7490.

DOI PMID

[22]
SHABAT S K B, SASSON G, DORON-FAIGENBOIM A, et al. Specific microbiome-dependent mechanisms underlie the energy harvest efficiency of ruminants[J]. ISME Journal, 2016, 10(12):2958-2972.

DOI PMID

[23]
MARTIN S A. Manipulation of ruminal fermentation with organic acids:a review[J]. Journal of Animal Science, 1998, 76(12):3123-3132.

DOI

[24]
WANG Y Y, SHEN Q M, ZHONG S, et al. Comparison of rumen microbiota and serum biochemical indices in white cashmere goats fed ensiled or sun-dried mulberry leaves[J]. Microorganisms, 2020, 8(7):981.

DOI

[25]
HENDERSON G, COX F, GANESH S, et al. Erratum:rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2016, 6:19175.

DOI

[26]
FORSTER R J, GONG J, TEATHER R M. Group-specific 16S rRNA hybridization probes for determinative and community structure studies of Butyrivibrio fibrisolvens in the rumen[J]. Applied and Environmental Microbiology, 1997, 63(4):1256-1260.

DOI

[27]
PLÖGER S, STUMPFF F, PENNER G B, et al. Microbial butyrate and its role for barrier function in the gastrointestinal tract[J]. Annals of the New York Academy of Sciences, 2012, 1258:52-59.

DOI PMID

[28]
SURGER M, ANGELOV A, LIEBL W. Distribution and diversity of olefins and olefin-biosynthesis genes in Gram-positive bacteria[J]. Biotechnology for Biofuels, 2020, 13:70.

DOI PMID

[29]
SI M R, WANG Y, ZHANG B, et al. The type VI secretion system engages a redox-regulated dual-functional heme transporter for zinc acquisition[J]. Cell Reports, 2017, 20(4):949-959.

DOI PMID

[30]
WANG T T, SI M R, SONG Y H, et al. Type VI secretion system transports Zn2+ to combat multiple stresses and host immunity[J]. PLoS Pathogens, 2015, 11(7):e1005020.

DOI

[31]
ZHANG X M, MEDRANO R F, WANG M, et al. Corn oil supplementation enhances hydrogen use for biohydrogenation,inhibits methanogenesis,and alters fermentation pathways and the microbial community in the rumen of goats[J]. Journal of Animal Science, 2019, 97(12):4999-5008.

DOI

Outlines

/