RESEARCH PAPER

Alleviation Effect of Diallyl Disulfide on Oxidative Stress Damage in Hu Sheep Rumen Epithelial Cells Induced by Hydrogen Peroxide

  • ZHANG Qingyue , 1 ,
  • HUANG Li 1 ,
  • WANG Yumei 1 ,
  • TANG Yingying 1 ,
  • YANG Chunlei 2 ,
  • ZHANG Zijun 1 ,
  • ZHU Wen , 1, *
Expand
  • 1 College of Animal Science and Technology, Anhui Agricultural University, Hefei 230036, China
  • 2 College of Biotechnology and Bioengineering, Zhejiang University of Technology, Hangzhou 310014, China
* associate professor, E-mail:

Received date: 2023-06-15

  Online published: 2023-12-11

Abstract

This study aimed to investigate the free radical scavenging ability of diallyl disulfide (DADS) and its protective effect against hydrogen peroxide (H2O2)-induced oxidative stress in Hu sheep rumen epithelial cells (RECs). Hu sheep RECs were treated with different concentrations (0, 50, 100, 150, 200 and 250 μmol/L) of H2O2 and different concentrations (0, 25, 50, 75, 100, 150 and 200 μmol/L) of DADS for 24 hours. Cell viability was assessed using the CCK-8 assay, and intracellular reactive oxygen species (ROS) content was measured using fluorescent probes. Appropriate concentrations of H2O2 for establishing an oxidative stress model in Hu sheep RECs and safe concentration range of DADS were determined. Subsequently, the RECs were pretreated with different concentrations (0, 25, 75 and 150 μmol/L) of DADS for 2 hours, followed by treatment with 200 μmol/L H2O2 for 24 hours. Cell viability and intracellular ROS content were assessed. The total antioxidant capacity (T-AOC), the content of malondialdehyde (MDA), and the activities of catalase (CAT), superoxide dismutase (SOD) and glutathione peroxidase (GPX) in Hu sheep RECs were measured using assay kits. Real-time fluorescence quantitative PCR (qRT-PCR) was performed to evaluate the mRNA relative expression levels of SOD, CAT and GPX. The results showed as follows: compared with the blank control group (0 μmol/L H2O2), 200 μmol/L H2O2 significantly decreased cell viability and significantly increased intracellular ROS content (P<0.05), inducing oxidative stress in Hu sheep RECs. Compared with the blank control group (0 μmol/L DADS), DADS at concentrations ranging from 25 to 150 μmol/L did not significantly affect the cell viability (P>0.05). Compared to the blank control group (0 μmol/L H2O2 and 0 μmol/L DADS), 200 μmol/L H2O2 significantly decreased cell viability (P<0.05), significantly increased intracellular ROS and MDA contents (P<0.05), and significantly reduced intracellular T-AOC, the mRNA relative expression level and the activity of SOD (P<0.05); compared with the oxidative stress model group (induced by 200 μmol/L H2O2), pretreatment of Hu sheep RECs with 75 and 150 μmol/L DADS significantly reduced intracellular ROS and MDA contents (P<0.05), and significantly increased intracellular T-AOC, the mRNA relative expression level and the activity of SOD (P<0.05). In conclusion, appropriate concentrations of DADS can effectively alleviate H2O2-induced oxidative stress in Hu sheep RECs.

Cite this article

ZHANG Qingyue , HUANG Li , WANG Yumei , TANG Yingying , YANG Chunlei , ZHANG Zijun , ZHU Wen . Alleviation Effect of Diallyl Disulfide on Oxidative Stress Damage in Hu Sheep Rumen Epithelial Cells Induced by Hydrogen Peroxide[J]. Chinese Journal of Animal Nutrition, 2023 , 35(12) : 8036 -8045 . DOI: 10.12418/CJAN2023.728

氧化应激是指机体的一种细胞代谢失衡状态,这种失衡状态是由于氧自由基(reactive oxygen,ROS)含量过高或抗氧化系统功能损伤造成的[1]。氧化应激会引起反刍动物采食量降低、养分消化减少、生长受阻、产品品质下降、免疫功能下降、机体健康受损,从而造成巨大的经济损失[2]。在现代集约化和规模化的肉羊养殖业中,动物生产力和经济效益得到了极大提高,但也不可避免存在诸多因素诱发机体产生氧化应激,如营养(不足或失衡、换料)、环境(热应激、冷应激)、生理状况(断奶、妊娠)、动物群体(饲养密度)、疾病(病原侵袭、疫苗以及药物注射)和长途运输等[3]。因此,做好肉羊抗氧化管理,维持机体氧化还原平衡状态至关重要。
健康的瘤胃是反刍动物饲养的核心,贯穿于反刍动物的各个生长、生产周期之中。研究发现,在热应激引起的氧化应激状态下,奶山羊瘤胃乳头坏死、脱落,瘤胃背囊、腹囊的绒毛长度和宽度均小于正常情况,应激时间越长,影响越严重[4]。在亚急性瘤胃酸中毒诱导的氧化应激条件下,山羊瘤胃上皮形态以及吸收、屏障和免疫功能均受到影响[5]。由此可见,瘤胃上皮细胞氧化应激损伤在生产中较为普遍。遭受氧化损伤的瘤胃上皮细胞在增殖、分化、凋亡、坏死等许多生理、病理过程发生改变,并引起细胞中基因转录、蛋白表达、细胞信号转导、酶和生物大分子活性改变,最终影响动物健康与生产[6-7]
通过营养调控缓解动物机体氧化损伤是集约化养殖条件下保持畜禽健康高效生产与繁殖的重要手段。大蒜广泛应用于调味品、功能性食品和中药等行业,研究发现大蒜提取物能降低或清除ROS,具有较强的抗氧化功能[8]。大蒜素是大蒜起抗氧化作用的主要活性物质,是一类含硫化合物的总称,二烯丙基二硫醚(dimethyl disulfide,DADS)是其主要成分之一[9]。研究表明,大蒜素可直接通过磷脂膜进入细胞,具有抗氧化、抗菌和抗炎等作用,是近几年医学领域的研究热点,其抗氧化作用包括降低ROS和丙二醛(malondialdehyde,MDA)含量,提高过氧化氢酶(catalase,CAT)、谷胱甘肽还原酶(glutathione reductase,GR)和谷胱甘肽过氧化物酶(glutathione peroxidase,GPX)等抗氧化酶活性[10]。利用大蒜素及其主要成分缓解畜牧生产中的氧化应激损伤已见少量报道,但多限于单胃动物[11-12],而在反刍动物上有关大蒜素的研究主要是对甲烷减排和瘤胃发酵的影响方面[13-14]。本试验旨在探究DADS对过氧化氢(hydrogen peroxide,H2O2)诱导的湖羊瘤胃上皮细胞(rumen epithelial cells,RECs)自由基清除能力及其对瘤胃上皮细胞氧化应激的保护作用,为保护瘤胃健康提供科学依据。

1 材料与方法

1.1 试验材料

湖羊瘤胃上皮细胞由浙江工业大学生物技术与生物工程学院提供;使用二甲基亚砜溶解DADS标准品(分子式为C6H10S2,纯度≥98.0%,#SMB00378,美国Sigma公司)。

1.2 细胞培养

湖羊瘤胃上皮细胞使用添加有10%胎牛血清和1%青链霉素双抗的DMEM/F12高糖培养基(BL305A,Biosharp,北京兰杰柯科技有限公司)进行培养,待细胞长至80%左右时,使用0.25%的胰酶进行消化传代培养。

1.3 DADS安全浓度范围筛选

将湖羊瘤胃上皮细胞接种在96孔板中(5×10⁴个/孔),设置DADS添加浓度,分别为0、25、50、75、100、150、200 μmol/L,在37 ℃、5%的二氧化碳(CO2)培养箱中培养24 h,用CCK-8试剂盒(K1018,美国APExBIO公司)检测细胞活力,确定DADS的安全浓度范围。

1.4 H2O2诱导浓度筛选

湖羊瘤胃上皮细胞使用胰酶消化后,进行计数,并以5×10⁴个/孔的密度接种到96孔板中,置于37 ℃、5%的CO2培养箱中,待细胞长至80%左右,以0、50、100、150、200、250 μmol/L的浓度梯度添加H2O2(CAS登记号:7722-84-1,美国Sigma公司),继续培养24 h,用CCK-8试剂盒检测细胞活力。

1.5 DADS干预H2O2诱导湖羊瘤胃上皮细胞试验设计

采用单因素完全随机试验设计,通过1.4确定H2O2的诱导浓度为200 μmol/L。将湖羊瘤胃上皮细胞随机分为6组,用不同浓度(0、25、50、75、100、150 μmol/L)的DADS处理细胞2 h后,加入诱导浓度的H2O2共同处理24 h。

1.6 测定指标与方法

1.6.1 抗氧化指标检测

抗氧化指标采用生化法进行检测。待细胞培养结束后使用磷酸盐缓冲液(PBS)冲洗2遍细胞,收集细胞样品备用。使用BCA蛋白浓度测定试剂盒(上海翌圣生物科技有限公司)测定蛋白含量。总抗氧化能力(total antioxidant capacity,T-AOC)(No. A015-2-1)、MDA(No. A003-4-1)含量以及CAT(No.A007-1-1)、超氧化物歧化酶(superoxide dismutase,SOD)(No. A001-3-2)、GPX(No. A005-1-2)活性均采用南京建成生物工程研究所生产的试剂盒检测。ROS含量采用索莱宝生物技术公司生产的ROS检测试剂盒(No. D6470)测定,具体操作为:待细胞培养结束后向其中加入2',7'-二氢二氯荧光素二乙酸酯(DCFH-DA)探针,培养25 min,在倒置荧光显微镜下观察细胞的绿色荧光,用Image J软件分析荧光强度。

1.6.2 实时荧光定量PCR(RT-qPCR)

使用Trizol法提取细胞总RNA,分别使用NanoPhotometer Spectrophotometer和Qubit 2.0 检测提取的RNA的纯度和浓度。使用Primer 5.0软件设计扩增引物(表1),将提取的总RNA反转录合成cDNA,并以此为模板,以β-肌动蛋白(β-actin)为内参,进行qRT-PCR。qRT-PCR 的反应体系、反应程序以及目的基因mRNA相对表达量的计算均参照Li等[15]
表1 qRT-PCR引物序列

Table 1 qRT-PCR primer sequences

基因
Genes
引物序列
Primer sequences(5'—3')
产物长度
Product length/bp
β-肌动蛋白
β-actin
F:CCATCGGCAATGAGCGGTTCC
R:CGTGTTGGCGTAGAGGTCCTTG
146
超氧化物歧化酶
SOD
F:ACGTCGCCGAGGAGAAGTACC
R:GGGGCTCAGATTTGTCCAGAAGATG
134
过氧化氢酶
CAT
F:AGCCTGCGTCCTGAGTCTCTG
R:ATCCATATCCGTTCATGTGCCTGTG
91
谷胱甘肽过氧化物酶
GPX
F:CGCACGGTGTACGCCTTCTC
R:GCAGGTCATTCATCTGGGTGTAGTC
148

1.7 统计分析

试验数据使用SPSS 23.0软件进行单因素方差分析(one-way ANOVA),采用Duncan氏法进行多重比较。P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 DADS安全浓度范围筛选结果

图1所示,DADS浓度在0~150 μmol/L时,细胞活力均在90%以上,且各浓度之间差异不显著(P>0.05);而当DADS浓度达到200 μmol/L时,细胞活力为64.3%,较空白对照组(DADS浓度为0 μmol/L)显著降低(P<0.05),因此确定DADS安全浓度范围为0~150 μmol/L。
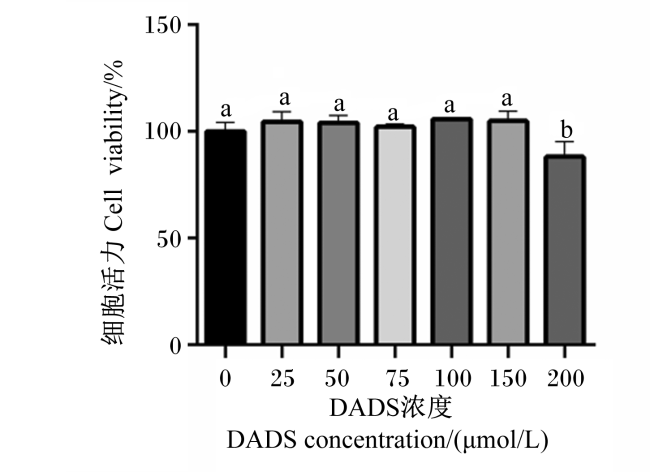
图1 不同浓度DADS对湖羊瘤胃上皮细胞活力的影响

数据柱形标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of different concentrations of DADS on viability of Hu sheep RECs

Value columns with different small letters mean significant difference (P<0.05). The same as below.

2.2 H2O2诱导浓度筛选结果

图2所示,H2O2浓度在0~150 μmol/L时,细胞活力均在90%以上,且各浓度之间差异不显著(P>0.05);当H2O2浓度达到200 μmol/L时,细胞活力较空白对照组(H2O2浓度为0 μmol/L)显著降低(P<0.05)。
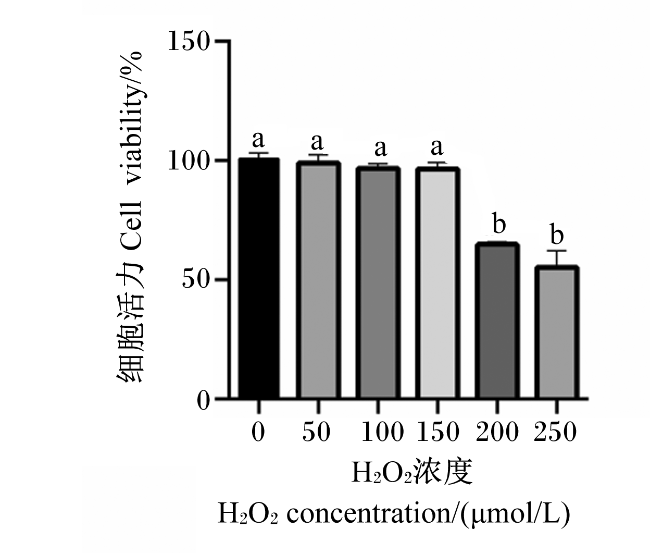
图2 不同浓度H2O2对湖羊瘤胃上皮细胞活力的影响

Fig.2 Effects of different concentrations of H2O2 on viability of Hu sheep RECs

图3所示,与空白对照组(H2O2浓度为0 μmol/L)相比,湖羊瘤胃上皮细胞经不同浓度H2O2损伤后细胞内绿色荧光强度显著变强(P<0.05),表明细胞内ROS含量显著增加(P<0.05)。H2O2浓度为0~200 μmol/L时,细胞内ROS含量随着H2O2浓度的升高而显著升高(P<0.05),细胞内ROS含量以H2O2浓度为200 μmol/L时最高;而当H2O2浓度达到250 μmol/L时,细胞内ROS含量较H2O2浓度为200 μmol/L时显著下降(P<0.05)。结合细胞活力数据结果,最终选择200 μmol/L作为H2O2诱导浓度进行后续试验。
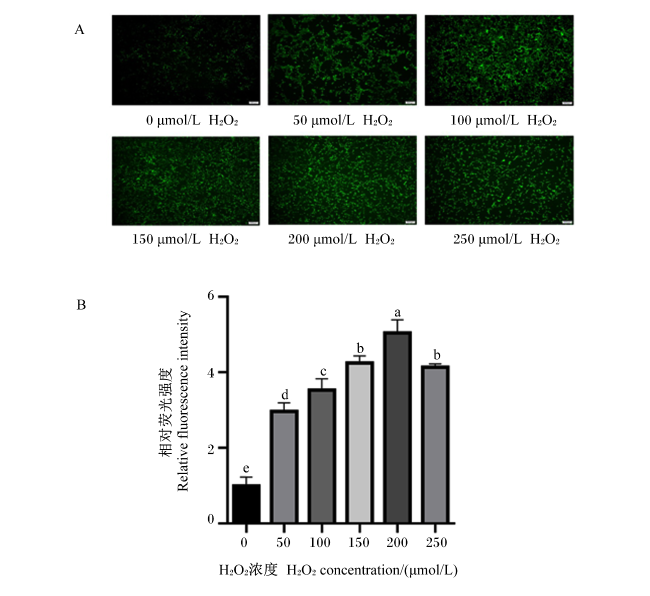
图3 不同浓度H2O2对湖羊瘤胃上皮细胞中ROS含量的影响

Fig.3 Effects of different concentrations of H2O2 on ROS content in Hu sheep RECs (40×)

2.3 DADS对H2O2诱导的湖羊瘤胃上皮细胞氧化应激的缓解作用

2.3.1 DADS对H2O2诱导的湖羊瘤胃上皮细胞活力的影响

图4所示,与空白对照组(H2O2和DADS浓度均为0 μmol/L)相比,经200 μmol/L H2O2诱导(氧化应激模型组)后细胞活力显著降低(P<0.05);与氧化应激模型组相比,25 μmol/L DADS预处理没有显著提高细胞活力(P>0.05),而50~150μmol/L DADS则细胞活力显著上升(P<0.05),说明DADS可有效缓解H2O2诱导的湖羊瘤胃上皮细胞氧化应激损伤。因此,选择低、中、高浓度(25、75、150 μmol/L)的DADS进行后续试验。
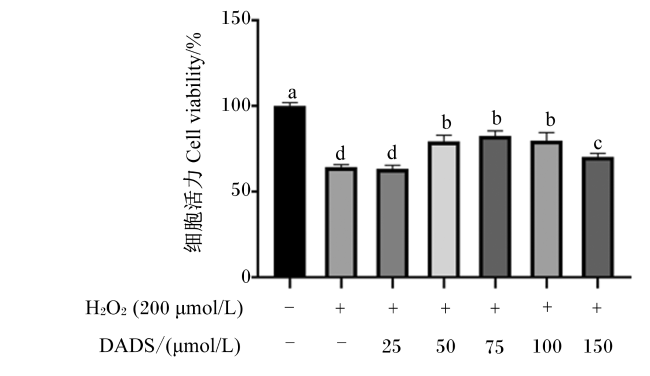
图4 不同浓度DADS对H2O2诱导的湖羊瘤胃上皮细胞活力的影响

H2O2:过氧化氢 hydrogen peroxide;DADS:二甲基二硫醚 dimethyl disulfide。下图同 the same as below。

Fig.4 Effects of different concentrations of DADS on viability of Hu sheep RECs induced by H2O2

2.3.2 DADS对H2O2诱导的湖羊瘤胃上皮细胞内ROS含量的影响

图5所示,与空白对照组相比,经200 μmol/L H2O2诱导后细胞内ROS含量显著增加(P<0.05);与氧化应激模型组相比,25 μmol/L DADS预处理没有使细胞内ROS含量显著下降(P>0.05),而75和150 μmol/L DADS预处理则使细胞内ROS含量显著下降(P>0.05)。当DADS浓度达到150 μmol/L时,细胞内ROS含量与空白对照组相比无显著差异(P>0.05)。上述结果说明75和150 μmol/L DADS可有效降低H2O2诱导的湖羊瘤胃上皮细胞内ROS含量。
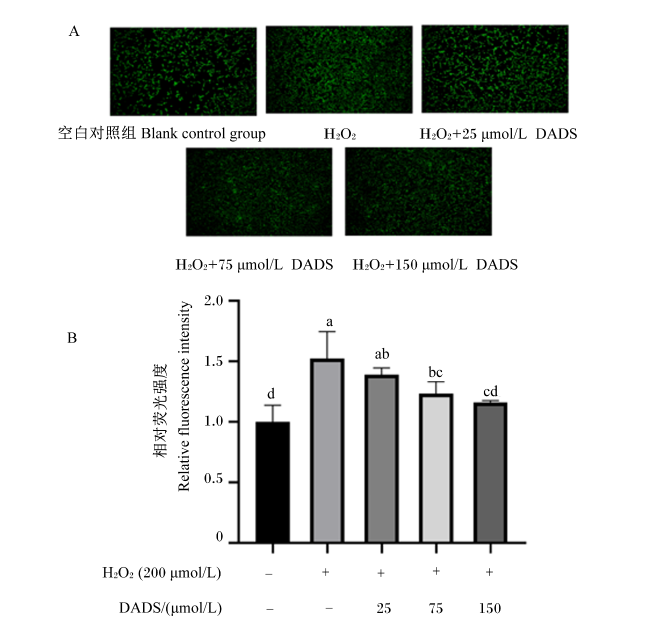
图5 DADS对H2O2诱导的湖羊瘤胃上皮细胞内ROS含量的影响

Fig.5 Effects of DADS on ROS content in Hu sheep RECs induced by H2O2

2.3.3 DADS对H2O2诱导的湖羊瘤胃上皮细胞内抗氧化指标的影响

图6所示,与氧化应激模型组相比,在不同浓度的DADS预处理下,细胞内T-AOC显著上升(P<0.05),CAT、GPX活性及MDA含量显著下降(P<0.05);细胞内SOD活性在75和150 μmol/L DADS预处理下显著上升(P<0.05)。当DADS浓度达到150 μmol/L时,细胞内SOD活性与空白对照组相比无显著差异(P>0.05)。上述结果提示,在DADS作用下,H2O2诱导的湖羊瘤胃上皮细胞内抗氧化酶活性、MDA含量及抗氧化能力趋于正常。
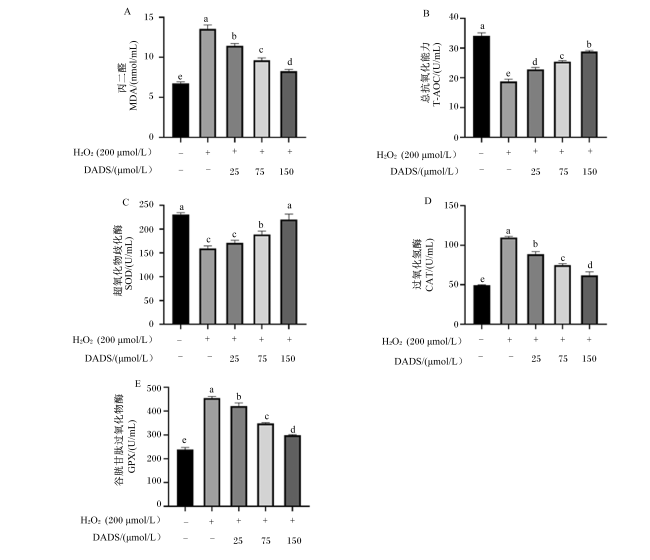
图6 DADS对H2O2诱导的湖羊瘤胃上皮细胞内抗氧化指标的影响

Fig.6 Effects of DADS on antioxidant indexes in Hu sheep RECs induced by H2O2

2.3.4 DADS对H2O2诱导的湖羊瘤胃上皮细胞内抗氧化相关基因表达的影响

图7所示,与空白对照组相比,200 μmol/L H2O2诱导显著降低了细胞内SOD的mRNA相对表达量(P<0.05),显著提高了GPXCAT的mRNA相对表达量(P<0.05)。与氧化应激模型组相比,在不同浓度的DADS预处理下细胞内SOD的mRNA相对表达量均显著上升(P<0.05),GPX的mRNA相对表达量均显著下降(P<0.05);细胞内CAT的mRNA相对表达量在DADS浓度为75和150 μmol/L时显著下降(P<0.05),在DADS浓度为25 μmol/L时CAT的mRNA相对表达量有所下降但不显著(P>0.05)。DADS浓度在150 μmol/L时,细胞内SODCAT的mRNA相对表达量与空白对照组相比无显著变化(P>0.05);DADS浓度在75、150 μmol/L时,细胞内GPX的mRNA相对表达量与空白对照组相比无显著变化(P>0.05)。上述结果提示,在DADS作用下,H2O2诱导的湖羊瘤胃上皮细胞内抗氧化基因表达趋于正常。
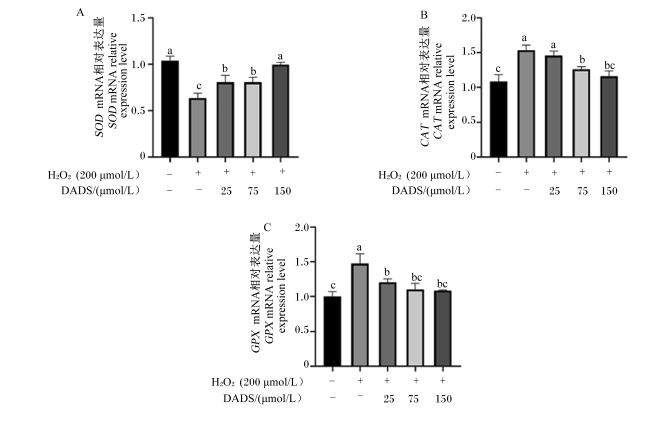
图7 DADS对H2O2诱导的湖羊瘤胃上皮细胞内抗氧化相关基因表达的影响

Fig.7 Effects of DADS on expression of antioxidant-related genes in Hu sheep RECs induced by H2O2

3 讨论

机体在代谢过程中会产生一些自由基,一定量的自由基具有刺激损伤修复的作用,但是过多的自由基不仅会造成组织损伤,还会导致氧化应激[16]。建立一个高效、稳定的氧化应激模型可对实际生产过程中出现的各种问题原因进行深入探究。H2O2是一种强氧化剂,在动物机体中仅有微量的H2O2可被机体代谢。因此,H2O2是构建氧化应激模型的首选诱导剂。Yan等[17]使用500 μmol/L H2O2成功建立猪小肠上皮细胞氧化应激模型;Wu等[18]采用600 μmol/L H2O2刺激牛乳腺上皮细胞构建氧化应激模型;Chen等[19]使用100 μmol/LH2O2构建人内皮细胞氧化应激模型。以上报道表明,不同物种、不同组织对H2O2的敏感性不同。ROS是机体代谢产生的一类氧化性很强含氧化合物的总称,正常情况下其处于产生和清除的动态平衡状态,过量的ROS则会引起机体氧化应激[20]。细胞活力是细胞对外界环境最直接的反应。本试验中,细胞内ROS含量随着H2O2浓度(0~200 μmol/L)的升高而升高,但是当H2O2浓度达到250 μmol/L时,细胞内ROS含量下降,可能是由于细胞死亡率较高所致,因此选用200 μmol/L H2O2构建湖羊瘤胃上皮细胞氧化应激模型。
研究发现,体内的初级抗氧化防御系统由抗氧化酶SOD、CAT、GPX等组成,可以清除ROS,抵抗ROS累积所造成的负面效应[21]。MDA是脂质过氧化物代谢产物,MDA含量越高,细胞膜损伤的程度越高,因此,MDA含量在一定程度上可以反映机体的氧化应激程度[22]。T-AOC可以用来反映游离基团的清除能力[23]。CAT和GPX可以把高浓度的H2O2分解成水(H2O)和氧气(O2)[24]。在H2O2诱导的氧化应激细胞模型中,细胞内ROS含量显著上升,SOD活性显著下降[25-26],CAT、GPX活性显著上升[27-28]。与前人研究相似,本研究发现,使用200 μmol/L H2O2诱导湖羊瘤胃上皮细胞时,细胞内ROS和MDA含量显著上升,T-AOC和SOD活性显著下降,CAT和GPX活性显著上升,说明湖羊瘤胃上皮细胞的抗氧化应激能力下降,氧化应激模型成功建立。
研究报道,DADS可降低氧化应激海马体和前额叶皮层内MDA含量[29];在H2O2诱导的猪小肠上皮细胞氧化应激模型中添加DADS,可有效提高细胞内CAT的活性[30];大蒜素可有效降低体外培养猪卵母细胞内ROS含量,提高SOD活性[31];DADS可提高人肝癌HepG2细胞中核因子E2相关因子2(nuclear factor E2 related factor 2,Nrf2)的表达,同时提高Nrf2下游抗氧化相关酶的活性,有效缓解肝脏氧化损伤[32]。以上研究表明DADS具有缓解氧化应激的作用。本研究发现,DADS具有降低湖羊瘤胃上皮细胞内ROS和MDA含量,增加T-AOC和SOD活性的作用,且呈剂量依赖性,经150 μmol/L的DADS预处理后,细胞内其上述指标与空白对照组无显著差异;进一步通过RT-qPCR发现,DADS预处理细胞后,相比氧化应激模型组,细胞内SOD的mRNA相对表达量上升,CATGPX的mRNA相对表达量下降,且150 μmol/L DADS组其抗氧化相关基因的mRNA相对表达量与趋于空白对照组水平,表明DADS可进入细胞,调节细胞内源抗氧化酶基因的表达,抵御氧化应激损伤,进而对湖羊瘤胃上皮细胞起较好的预保护作用。

4 结论

① 可采用200 μmol/L H2O2刺激24 h建立湖羊瘤胃上皮细胞氧化应激模型。
② DADS在0~150 μmol/L浓度范围内对湖羊瘤胃上皮细胞没有毒性。
③ 25~150 μmol/L的DADS以剂量依赖性的方式降低H2O2诱导的湖羊瘤胃上皮细胞内ROS和MDA含量,增加T-AOC和SOD的活性与基因表达,有效缓解氧化应激损伤。
[1]
JONES D P. Redefining oxidative stress[J]. Antioxidants & Redox Signaling, 2006, 8(9/10):1865-1879.

[2]
LALIOTIS G P, KOUTSOULI P, SOTIRAKOGLOU K, et al. Association of oxidative stress biomarkers and clinical mastitis incidence in dairy cows during the periparturient period[J]. Journal of Veterinary Research, 2020, 64(3):421-425.

DOI PMID

[3]
SURAI P F, KOCHISH I I, FISININ V I, et al. Revisiting oxidative stress and the use of organic selenium in dairy cow nutrition[J]. Animals, 2019, 9(7):462.

DOI

[4]
马燕芬, 杜瑞平, 高民. 热应激对奶山羊生产性能及瘤胃上皮细胞形态结构的影响[J]. 中国农业科学, 2013, 46(21):4486-4495.

DOI

MA Y F, DU R P, GAO M. Effect of heat stress on dairy goat performance and rumen epithelial cell morphology[J]. Scientia Agricultura Sinica, 2013, 46(21):4486-4495. (in Chinese)

[5]
LIU J H, XU T T, LIU Y J, et al. A high-grain diet causes massive disruption of ruminal epithelial tight junctions in goats[J]. American Journal of Physiology:Regulatory,Integrative and Comparative Physiology, 2013, 305(3):R232-R241.

DOI

[6]
TAO S Y, DUANMU Y Q, DONG H B, et al. A high-concentrate diet induced colonic epithelial barrier disruption is associated with the activating of cell apoptosis in lactating goats[J]. BMC Veterinary Research, 2014, 10:235.

DOI PMID

[7]
ZHANG R Y, YE H M, LIU J H, et al. High-grain diets altered rumen fermentation and epithelial bacterial community and resulted in rumen epithelial injuries of goats[J]. Applied Microbiology and Biotechnology, 2017, 101(18):6981-6992.

DOI PMID

[8]
ICHIKAWA M, RYU K, YOSHIDA J, et al. Identification of six phenylpropanoids from garlic skin as major antioxidants[J]. Journal of Agricultural and Food Chemistry, 2003, 51(25):7313-7317.

PMID

[9]
AMAGASE H, PETESCH B L, MATSUURA H, et al. Intake of garlic and its bioactive components[J]. Journal of Nutrition, 2001, 131(3S):955S-962 S.

DOI PMID

[10]
ORABI S H, ABD ELDAIUM D, HASSAN A, et al. Allicin modulates diclofenac sodium induced hepatonephro toxicity in rats via reducing oxidative stress and caspase 3 protein expression[J]. Environmental Toxicology and Pharmacology, 2020, 74:103306.

DOI

[11]
HORN N, MILLER G, AJUWON K M, et al. Garlic diallyl disulfide and diallyl trisulfide mitigates effects of pro-oxidant induced cellular stress and has immune modulatory function in LPS-stimulated porcine epithelial cells[J]. Journal of Animal Science, 2017, 95(9):4045-4051.

DOI PMID

[12]
JIANG Q, TIAN J Q, LIU G, et al. Endoplasmic reticulum stress and unfolded protein response pathways involved in the health-promoting effects of allicin on the jejunum[J]. Journal of Agricultural and Food Chemistry, 2019, 67(21):6019-6031.

DOI PMID

[13]
MA T, CHEN D D, TU Y, et al. Effect of supplementation of allicin on methanogenesis and ruminal microbial flora in Dorper crossbred ewes[J]. Journal of Animal Science and Biotechnology, 2016, 7:1.

DOI PMID

[14]
KAMEL C, GREATHEAD H M R, TEJIDO M L, et al. Effects of allicin and diallyl disulfide on in vitro rumen fermentation of a mixed diet[J]. Animal Feed Science and Technology, 2008, 145(1/4):351-363.

DOI

[15]
LI Y X, FENG X P, WANG H L, et al. Transcriptome analysis reveals corresponding genes and key pathways involved in heat stress in Hu sheep[J]. Cell Stress and Chaperones, 2019, 24(6):1045-1054.

DOI

[16]
MOHAMMADI S, BARZEGARI A, DEHNAD A, et al. Astaxanthin protects mesenchymal stem cells from oxidative stress by direct scavenging of free radicals and modulation of cell signaling[J]. Chemico-Biological Interactions, 2021, 333:109324.

DOI

[17]
YAN S Q, QIAO L, DOU X N, et al. Biogenic selenium nanoparticles by Lactobacillus casei ATCC 393 alleviate the intestinal permeability,mitochondrial dysfunction and mitophagy induced by oxidative stress[J]. Food & Function, 2021, 12(15):7068-7080.

[18]
WU S N, LIU X Z, CHENG L, et al. Protective mechanism of leucine and isoleucine against H2O2-induced oxidative damage in bovine mammary epithelial cells[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:4013575.

[19]
CHEN X, ZHANG W J, SUN L R, et al. Tectorigenin protect HUVECs from H2O2-induced oxidative stress injury by regulating PI3K/Akt pathway[J]. Tissue and Cell, 2021, 68:101475.

DOI

[20]
LAN R X, CHANG Q Q, WEI L L, et al. The protect effects of chitosan oligosaccharides on intestinal integrity by regulating oxidative status and inflammation under oxidative stress[J]. Marine Drugs, 2021, 19(2):57.

DOI

[21]
IGHODARO O M, AKINLOYE O A. First line defence antioxidants-superoxide dismutase (SOD),catalase (CAT) and glutathione peroxidase (GPX):their fundamental role in the entire antioxidant defence grid[J]. Alexandria Journal of Medicine, 2018, 54(4):287-293.

DOI

[22]
CANNAVÒ S P, TONACCI A, BERTINO L, et al. The role of oxidative stress in the biology of melanoma:a systematic review[J]. Pathology Research and Practice, 2019, 215(1):21-28.

DOI

[23]
BERNABUCCI U, RONCHI B, LACETERA N, et al. Influence of body condition score on relationships between metabolic status and oxidative stress in periparturient dairy cows[J]. Journal of Dairy Science, 2005, 88(6):2017-2026.

DOI PMID

[24]
王馨, 胡文忠, 陈晨, 等. 活性氧在果蔬采后成熟衰老过程中的作用及几种气体处理对其影响的研究进展[J]. 食品工业科技, 2017, 38(5):375-379.

WANG X, HU W Z, CHEN C, et al. The role of reactive oxygen in harvested fruits and vegetables during maturation and senescence and the influences which handled by several gas treatments[J]. Science and Technology of Food Industry, 2017, 38(5):375-379. (in Chinese)

[25]
XIN X R, GONG T A, HONG Y. Hydrogen peroxide initiates oxidative stress and proteomic alterations in meningothelial cells[J]. Scientific Reports, 2022, 12(1):14519.

DOI PMID

[26]
JIANG F, XU X R, LI W M, et al. Monotropein alleviates H2O2-induced inflammation,oxidative stress and apoptosis via NF-κB/AP-1 signaling[J]. Molecular Medicine Reports, 2020, 22(6):4828-4836.

DOI

[27]
LEUNG W S, KUO W W, JU D T, et al. Protective effects of diallyl trisulfide (DATS) against doxorubicin-induced inflammation and oxidative stress in the brain of rats[J]. Free Radical Biology and Medicine, 2020, 160:141-148.

DOI

[28]
WANG L F, MING D, PAN Y Y, et al. Nitrogen limitation and hydrogen peroxide act synergistically to enhance lipids accumulation via ROS/Ca2+ dependent mechanism in Chlorella sorokiniana[J]. Algal Research, 2023, 70:102974.

DOI

[29]
WEI X Y, MA Y Y, LI F, et al. Acute diallyl disulfide administration prevents and reveres lipopolysaccharide-induced depression-like behaviors in mice via regulating neuroinflammation and oxido-nitrosative stress[J]. Inflammation, 2021, 44(4):1381-1395.

DOI PMID

[30]
HORN N, MILLER G, AJUWON K M, et al. Garlic diallyl disulfide and diallyl trisulfide mitigates effects of pro-oxidant induced cellular stress and has immune modulatory function in LPS-stimulated porcine epithelial cells[J]. Journal of Animal Science, 2017, 95(9):4045-4051.

DOI PMID

[31]
PARK Y G, LEE S E, YOON J W, et al. Allicin protects porcine oocytes against damage during aging in vitro[J]. Molecular Reproduction and Development, 2019, 86(9):1116-1125.

DOI

[32]
YAMAGUCHI Y, HONMA R, YAZAKI T, et al. Sulfuric odor precursor S-allyl-L-cysteine sulfoxide in garlic induces detoxifying enzymes and prevents hepatic injury[J]. Antioxidants, 2019, 8(9):385.

DOI

Outlines

/