REVIEW

Research Progress on Detoxification of Fumonisin B1

  • LI Lulu ,
  • WANG Shuo ,
  • WANG Xiaoxuan ,
  • LONG Miao , *
Expand
  • Key Laboratory of Ruminant Infectious Disease Prevention and Control (East), Ministry of Agriculture and Rural Affairs, Key Laboratory of Livestock Infectious Diseases, Ministry of Education, College of Animal Science and Medicine, Shenyang Agricultural University, Shenyang 110161, China
* professor, E-mail:

Received date: 2023-07-13

  Online published: 2024-01-12

Abstract

Fumonisin B1 (FB1) is a water-soluble metabolite produced by Fusarium oxysporum, which is one of the prevalent mycotoxins, naturally occurring in cereals, oilseed crops, nuts, forage and feedstuffs. FB1 exposure can produce different toxic effects on the nervous system, respiratory system, digestive system and reproductive system, causing immeasurable economic losses in global agriculture and animal husbandry. The current research focus lies in the detoxification of FB1 and mitigation of its toxic impact. Therefore, this article comprehensively reviewed the physical, chemical, biological methods and applications of FB1 detoxification. With a particular focus on the strains and enzymes commonly used for FB1 biodetoxification, as well as their detoxification effects and mechanisms, a thorough and detailed discussion was pursued, aiming to provide reference and ideas for improving the detoxification efficiency of FB1 and developing a new FB1 detoxification method.

Cite this article

LI Lulu , WANG Shuo , WANG Xiaoxuan , LONG Miao . Research Progress on Detoxification of Fumonisin B1[J]. Chinese Journal of Animal Nutrition, 2024 , 36(1) : 115 -123 . DOI: 10.12418/CJAN2024.012

伏马菌素是由黄萎镰刀菌和增殖镰刀菌产生的一类次级代谢产物[1]。目前,已经分离出28种伏马菌素,其中伏马菌素B1(fumonisin B1,FB1)在食物和饲料中存在最为广泛且毒性最强[2]。FB1是一种双酯化合物,在大部分谷物、坚果、豆类、饲草和饲料中均可检测到FB1[3]。FB1暴露会对神经系统、呼吸系统、消化系统和生殖系统产生不同毒性作用[1,4]。此外,FB1暴露还导致细胞发生氧化应激、凋亡、线粒体自噬及增殖抑制等[5-6]。因此,早在1993年FB1就被国际癌症研究机构归类为2B类致癌物[7]
目前,虽然科学研究对FB1的毒性作用及其机制的认识已经取得一些进展,但是由于其毒性机制的复杂、结构稳定性高,所以对FB1的脱毒机制和脱毒方法还需要不断的研究和完善。本文对FB1的几种不同脱毒方法进行综述,重点对FB1生物脱毒的菌株和酶的种类、脱毒效果及脱毒机制进行了总结,以期为食品和饲料中FB1的脱毒减毒和开发新的脱毒方法提供参考。

1 物理脱毒

物理脱毒是指利用物理技术或特性对霉菌毒素进行去除的方法,包括分拣、洗涤、研磨、溶剂萃取、加热、吸附及非热物理处理等方法[8-10]。其中,吸附脱毒效果最佳,在饲料工业中应用也最广泛。常见的吸附剂有活性炭、沸石、蒙脱石、海泡石和水合铝硅酸钙钠等,不同吸附剂的吸附能力不同,这主要取决于吸附材料的孔径大小、孔隙率及离子交换能力等[11]。Solís-Cruz等[12]通过体外胃肠道模型评估了壳聚糖(chitosan,CTS)、羟丙基甲基纤维素(hydroxypropyl methyl cellulose,HPMC)、羧甲基纤维素(carboxymethyl cellulose,CMC)和微晶纤维素(microcrystalline cellulose,MCC)对FB1的吸附活性,吸附率分别为54.1%、52.9%、48.1%和34.0%。此外,等离子脱毒技术在霉菌毒素脱毒中也逐渐兴起。等离子体是富含高能量的电离气体,能够与食品表面的微生物和化学污染物发生反应。Wielogorska等[10]用等离子射流对玉米中的FB1进行脱毒,将玉米在6 kV、20 kHz以及0.75%氦气和氧气混合物存在的条件下暴露10 min,结果发现玉米中FB1含量减少了64%。虽然这些物理方法确实有一定脱毒效果,但是仍存在许多无法解决的弊端,如这些吸附剂的吸附作用不仅对霉菌毒素有效,对动物机体所需的维生素和一些矿物质微量元素兼具吸附功能[13];而新兴的等离子脱毒则更多的受到脱毒原料、毒素结构和操作因素的限制[14]

2 化学脱毒

化学脱毒是指利用化学试剂对饲料进行混合、包装、浸泡和熏蒸,将霉菌毒素完全降解或降解为其他无毒或毒性较小的次级产物,从而达到脱毒减毒目的的方法[8]。大量研究表明,碱处理、氧化剂处理等均可使FB1降解。Voss等[15]将碱处理后的全粒玉米饲喂小鼠后,其FB1的水解产物(hydrolyzed FB1,HFB1)不再引起小鼠神经管缺陷。而一般情况下,碱处理的降解产物多为HFB1,并非无毒,只是毒性低于FB1。Ribeiro等[16]使用13.5 mg/L浓度的臭氧处理样本24 h,可使FB1和伏马菌素B2(fumonisin B2,FB2)的含量分别降低81.2%和86.2%。此外,臭氧可以改善谷物的储藏特性,减少霉菌毒素产生,并延长镰刀菌孢子萌发时间[17]。但是,也有研究表明,臭氧熏蒸会改变小麦淀粉和蛋白质(如谷蛋白)特性,α-淀粉酶活性也会受到影响[18]。由此可见,化学脱毒法虽然效果显著,但是其降解产物并非完全无毒,而且强酸、强碱及氧化剂的处理还会引发营养物质诱变、试剂残留、环境二次污染和适口性差等二次问题。因此,在实际生产中一般不采用化学方法脱毒。目前,关于化学脱毒工艺的条例标准在我国还未见报道,根据欧盟委员会要求,许多化学脱毒工艺仍未达标[19]

3 生物脱毒

生物脱毒是指利用各种微生物和酶的吸附和降解作用达到霉菌毒素脱毒目的的方法[8]。生物脱毒方法主要包括微生物吸附、微生物降解和生物酶降解3种方法,并且生物脱毒因其具有反应条件温和、环境友好、特异性强及对营养物质破坏小的特点而备受关注。

3.1 微生物吸附FB1

许多微生物菌株可以吸附FB1。Niderkorn等[20]采用乳酸细菌培养基(MRS培养基),从29株乳酸菌和丙酸菌中分离出10种可以结合FB1的菌株,其结合率超过60%。此外,许多非活菌与活菌的孵育脱毒效果并无差异,甚至经过灭活处理后的细菌脱毒效率更高,这表明一些乳酸菌其脱毒作用是通过吸附实现的[21]。Dawlal等[22]也通过可视化处理扫描到植物乳杆菌FS2和戊糖片球菌D39可与伏马菌素结合,这进一步证实了一些乳酸菌的脱毒机制是其具有吸附毒素能力。目前,细胞壁中的肽聚糖(peptidoglycan,PG)被广泛认为是乳酸菌吸附FB1的关键。张军等[23]发现,植物乳杆菌ZJ8和戊糖乳杆菌X5对FB1、FB2结合率分别为96.8%、96.0%,而2种菌株的细胞壁成分PG对FB1的结合率则更高。PG层缺陷的突变体表现出毒素结合减少,纯化的PG结合FB1与乳酸菌相似,但结合率略低;与野生型相比,脂磷壁酸缺陷的突变体显示出可忽略不计的差异,表明就FB1结合而言,脂磷壁酸这种成分并不重要[24]。此外,一些酵母菌株也表现出对FB1的吸附特性,其主要结合部位可能是β-D-葡聚糖[25]。Armando等[26]检测并优化了酿酒酵母RC016在体外结合FB1的能力,在FB1浓度为50 μg/mL时,结合率达78.66%;最主要的是该菌株可以在只含有廉价碳、氮和磷源的培养基(17%甘蔗糖蜜和4.61 g/L酵母提取物组合)中持续生产,这为大规模应用提供了可能。Zhao等[27]利用人克隆结肠腺癌细胞(Caco-2细胞)评估植物乳杆菌B7和戊糖乳杆菌X8结合FB1和FB2的能力,高效液相色谱(HPLC)法分析结果表明,在模拟的胃肠道环境(pH 3.0)中孵育3 h后,植物乳杆菌B7对FB1和FB2的结合率分别为52.9%和85.2%,戊糖乳杆菌X8对FB1和FB2的结合率分别为58.0%和86.5%。由此可以看出,一些乳酸菌和酵母菌具有吸附FB1的能力,但不同菌株吸附FB1的能力差异很大。因此,应该继续筛选吸附FB1能力强的菌株。

3.2 微生物降解FB1

大量研究指明,微生物可以直接降解伏马菌素。这可能是通过微生物中某些潜在的水解酶或转移酶对FB1的毒力基团进行破坏实现的。Keawmanee等[28]筛选出一株具有FB1还原特性的优势菌株,即黏质沙雷氏菌329-2,其无细胞提取物在FB1还原过程中存在高表达的还原酶和转移酶,使玉米中FB1含量减少37.00%。在另一项研究中,革兰氏阴性菌株B-9在孵育96 h后对FB1也有一定程度的水解作用[29]。此外,还有一些菌株可能存在未开发的酶可以完全且高效的降解FB1。从土壤中分离出的菌株NCB 1492在25 ℃下孵育24 h,可以将FB1降解为无毒的十七烷、异十二烯(b)、十八烯和二十烷等[30],并且推测该菌株不仅具有快速脱胺活性,可能还具有酯酶活性。Zhao等[31]鉴定出一种新的细菌组合SAAS79,该细菌组合的粗酶提取物对FB1(10 μg/mL)的降解率高达90%以上,表明SAAS79组合体及其粗酶可能成为饲料和食品加工过程中高效净化FB1的潜在微生物群。因此,这类微生物降解FB1的主要成分和降解机制还有待进一步明确,其中有待开发的酶的功能和组成系统也需要进一步研究,以期在食品和饲料的FB1脱毒中发挥最大功效。

3.3 微生物降解FB1在动物中的应用

目前,已有体内试验表明,一些乳酸菌能缓解FB1的毒性作用。乳酸菌可以缓解DNA损伤,对肝脏、肾脏以及生殖系统兼具保护功能。Khalil等[32]饲喂100和200 mg/kg FB1处理的大鼠4周后,大鼠血液中出现DNA片段,但应用德尔布鲁氏乳杆菌DSM 5627和酸乳酸球菌NNRL B-1一段时间后,大鼠血液中的DNA片段化水平降低,血清中谷丙转氨酶(alanine aminotransferase,ALT)、谷草转氨酶(aspartate aminotransferase,AST)、碱性磷酸酶(alkaline phosphatase,ALP)活性和肌酐水平也明显恢复。研究发现,副干酪乳杆菌BEJ01(2×10⁹ CFU/kg BW)可以恢复FB1(100 μg/kg BW)诱导的BALB/c小鼠精子质量、睾酮水平、氧化应激的变化以及生殖器官的组织学变化[33]。此外,乳酸菌也能缓解FB1诱导的氧化损伤。给小鼠灌胃副干酪乳杆菌BEJ01菌液(2×109 CFU/L,2 mg/kg),能够上调FB1引起的谷胱甘肽水平降低及谷胱甘肽过氧化物酶、超氧化物歧化酶表达下调[34]。还有文献报道,每天用1 mL(109 cells/mL)植物乳杆菌MYS6联合FB1(200 mg/kg饲粮)饲喂肉鸡,结果发现,该菌能缓解FB1诱导的肝肾损伤,并且显著提高肉鸡的生长性能[35]。因此,乳酸菌株,尤其是植物乳杆菌能降低FB1损伤,并且在动物胃肠道中保持一定活性。乳酸菌株适合并有望作为功能性食品补充剂,应用于畜禽生产中FB1的脱毒。

3.4 生物酶降解FB1

3.4.1 水解酶

目前,FB1水解酶研究最多的是羧酸酯酶。羧酸酯酶可以水解FB1结构中的1个或2个三羧酸酯(tricarboxylic ester,TCA)侧链,生成部分水解的FB1(partially hydrolyzed FB1,PHFB1)和HFB1。从堆肥土分离出的鞘氨醇盒菌MTA144中鉴定出能够完全降解FB1的2种基因簇,分别编码FumD羧酸酯酶和FumI转氨酶[36]。利用FumD建立的酶还原法分别对玉米粒和玉米粉进行脱毒研究发现,在高酶活力条件下,玉米粒中FB1的降解率达80%,而对玉米面中的FB1降解率则高达99%,这充分说明物理碾磨与生物酶联合脱毒的显著效果[37-38]。目前,已有研究表明,FumD基因能够在毕赤酵母(Pichia pastoris,P. pastoris)表达系统中成功表达[36]。因此,FumD可以应用于饲料和食品的添加中,但由于其水解产物PHFB1和HFB1的伯胺基团并未消除,仍具有一定毒性,故而FumD还需与转氨酶联合使用。
此外,研究发现,其他酯酶同样可以降解FB1。另外一种来自鞘脂菌属的新型羧酸酯酶FumDSB分别在pH 3~7和pH 8~9内降解FB1的活性超过60%,并且可以完全水解FB1,其中FumDSB已经证实可以在大肠杆菌(Escherichia coli,E. coli)中成功表达[39]。且已有研究表明,饲料添加FumDSB可以用于生长猪的脱毒[40]。但是作为其他动物类型饲料添加剂的评估检测还未见报道。因此,FumDSB有潜力成为饲料中FB1脱毒剂,或者用于收割后的农作物脱毒。虽然伏马菌素酯酶可以降解FB1,但是目前还没有在大规模的生产中得到充分应用。

3.4.2 转氨酶

转氨酶的主要作用是催化氨基的转移,可以破坏FB1的伯胺基团。目前研究较多的FB1转氨酶是FumI,该酶最适温度为35 ℃、pH 8.5,在酸性条件下失活,脱胺活性为2.2 μmol/(min·mg)[41]。异源表达的FumI需要以HFB1为底物,在丙酮酸和磷酸吡哆醛条件下脱胺[36,42]。由于FumI的脱胺过程不依赖氧的参与,所以为了适应胃肠道环境,建议通过纳米递送、微胶囊化或肠内靶向释放技术在动物饲料中发挥作用[43]。但遗憾的是,FumIP. pastoris中不表达,在E. coli中依赖于低温表达并且有包涵体形成,溶解性差[44]。在革兰氏阴性细菌ATCC 55552菌株中发现的转氨酶降解条件与FumI相似,同样需要在丙酮酸和磷酸吡哆醛参与下,以HFB1为底物进行脱胺,但是该酶可以在E. coli中表达,因此,可以代替FumI降解FB1[45]
最近,3种新型转氨酶基因FumTSTAFumUPTAFumPHTA被发现鉴定,为伏马菌素脱毒提供了新的候选酶。这3种酶均可完全降解HFB1,但是产物不同。液相色谱-串联质谱(LC-MS/MS)分析结果表明,FumUPTA与丙酮酸协同作用,使HFB1的氨基官能团乙酰化或氧化,生成2-乙酰胺-HFB1和2-酮基-HFB1;而FumTSTAFumPHTA的产物中只检测到丰度(质荷比)为448的离子峰[46]。此外,3种酶在E. coli中还表现出良好的蛋白质溶解度和产量,同时是目前最理想的伏马菌素候选脱毒酶。
综上所述,大部分转氨酶虽然能够高效脱胺,但是均需要依赖于FB1水解酶的联合作用。此外,寻找良好的表达系统是转氨酶能够在青贮饲料、动物饲料中发挥有价值的重要前提。

3.4.3 氧化酶

氧化酶通过氧化FB1中的氨基达到降解毒素的目的。有趣的是,在产伏马菌素的黑曲霉中发现了一种能够代谢伏马菌素的新型胺氧化酶,被称为黑曲霉伏马菌素胺氧化酶(Aspergillus niger fumonisin amine oxidase,AnFAO),它可以将伯胺转化成亚胺,后水解为酮基[47-48],AnFAO最适反应条件是50 ℃、pH 6,在30~60 ℃、pH 3.5~8.5下活性均保持在40%以上,并且在10%乙醇条件下依然具备43%的活性[47]。该酶相较于转氨酶的优点是,能够完整的脱掉FB1、FB2、伏马菌素B3(fumonisin B3,FB3)胺基,也就是说,该酶以FB1为底物,无需伏马菌素酯酶提前水解[49]。虽然AnFAO的氧化形式依赖黄素腺嘌呤二核苷酸(flavin adenine dinucleotide,FAD)的参与,但是在E. coli表达系统就可以与FAD非共价结合,P. pastoris中表达的AnFAO的分泌形式同样不需要添加外源的FAD,并且在该系统中AnFAO产量很高[47,50]。因此,相对于FumI,AnFAO的蛋白质产量更高,并且不依赖酯酶的参与,有潜力作为一种单独的FB1脱毒酶,在谷物、动物饲料和干酒糟的脱毒中发挥关键作用。
此外,还有一种氧化酶,即锰过氧化物酶(Mn-dependent peroxidase,MnP),在二羧酸、丙二酸条件下,可同时降解4种霉菌毒素,包括黄曲霉毒素、玉米赤霉烯酮、赭曲霉毒素和FB1[51]。虽然,相对于其他3种毒素,FB1的降解率较低(34.1%~43.6%),且该酶的大量获取仍是亟待解决的问题,但是MnP的存在为多种不同毒素的脱毒提供了可能性。

3.5 生物酶降解FB1在动物中的应用

目前,上述的部分水解酯酶已经被证实在胃肠道环境中仍保持较高的降解活性,可以应用于动物生产中。Masching等[52]分别以离体猪小肠、火鸡和仔猪为模型进行体外和体内试验,LC-MS/MS分析结果表明,FumD可以适应离体猪十二指肠和空肠的内部环境;饲料中添加FumD能促进FB1水解和部分水解,恢复火鸡和仔猪血清鞘氨酸(sheath amino acid,Sa)/鞘氨醇(sphingosine,So)的比值。Neckermann等[53]在仔猪模型中检测到同样的结果,并指出口服或饲喂前混合伏马菌素酯酶的效果比胶囊摄入更佳。另一种来自法夫驹形氏酵母DSM 32159的伏马菌素酯酶也已被证实可作为饲料添加剂,用于青贮饲料以及所有家禽和猪饲料[54-55]。虽然氧化酶具有众多优势,但是目前还没有关于氧化酶的实际生产应用;而转氨酶则由于表达系统效果不佳等原因还未进行应用实践。

4 生物降解FB1的脱毒机制

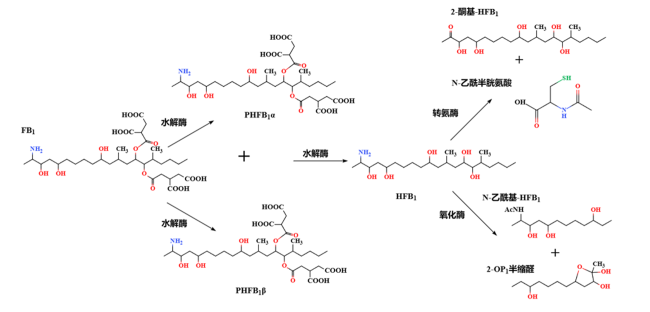
FB1是一种聚酮衍生的线性氨基多元醇。在FB1结构中,伯胺基团可以竞争并结合Sa/So结合位点,抑制神经酰胺合酶活性,进而导致Sa和So以及其他鞘脂类中间代谢产物积聚[56-57];2个TCA侧链则被认为是最大限度抑制神经酰胺合酶的关键,并且可能与竞争性结合脂肪酰基辅酶A(fatty acyl-CoA)位点有关[58]。因此,FB1结构中伯胺基团和2个TCA侧链被认为是FB1降解的关键。目前,已经通过重叠聚合酶链反应连接FumDFumI基因生成一种安全的重组融合酶FumDI,可以在P. pastoris中表达,并且具有超高活性[59]。该酶可以在5 h内几乎完全降解24 μg/mL的FB1、FB2和FB3。一般的情况下,水解酶可以将TCA侧链部分水解或完全水解为PHFB1或HFB1,而转氨酶或氧化酶则通过转移或氧化伯胺基团生成2-酮基-HFB1、N-乙酰半胱氨酸或N-乙酰基-HFB1和2-OP1-半缩醛(图1)[36,45,60]
图1 FB1的酶降解过程

FB1:伏马菌素B1 fumonisin B1;HFB1:FB1的水解产物 hydrolyzed FB1;PHFB1:部分水解的FB1 partially hydrolyzed FB1.

Fig.1 Enzyme degradation process of FB1

5 小结

首先,微生物可以通过吸附或降解作用来对饲料中的FB1脱毒,脱毒菌株主要包括乳酸菌和酵母菌。其中已经鉴定出植物乳杆菌能够适应胃肠道环境,缓解FB1毒性,可以作为添加剂应用于饲料和食品中。但是其吸附条件和吸附容量还需进一步优化,以实现更高的吸附率。其次,具有高活性的FB1降解酶尚未被完全挖掘出,分离鉴定高效降解FB1的菌株并分离纯化出具有高活性高耐受性的降解酶是关键。此外,虽然一些降解酶已经被报道可以广泛应用于饲料中脱毒,但是这些酶的大量获取方法尚未得知。因此,寻找高表达、高溶解度和稳定的表达系统仍是亟待解决的问题。在现存优良降解酶的基础上,使用酶工程技术和基因工程技术,构建高表达、高活性及稳定性强并且具有TCA双链水解功能和脱胺功能的新型融合酶是目前的研究方向。
[1]
RUDYK H, TOMASZEWSKA E, ARCISZEWSKI M B, et al. Histomorphometrical changes in intestine structure and innervation following experimental fumonisins intoxication in male Wistar rats[J]. Polish Journal of Veterinary Sciences, 2020, 23(1):77-88.

DOI PMID

[2]
QU L K, WANG L, JI H, et al. Toxic mechanism and biological detoxification of fumonisins[J]. Toxins, 2022, 14(3):182.

DOI

[3]
EZEKIEL C N, AYENI K I, AKINYEMI M O, et al. Dietary risk assessment and consumer awareness of mycotoxins among household consumers of cereals,nuts and legumes in north-central Nigeria[J]. Toxins, 2021, 13(9):635.

DOI

[4]
OUYANG H M, ZHU H Q, LI J H, et al. Fumonisin B1 promotes germ cells apoptosis associated with oxidative stress-related Nrf2 signaling in mice testes[J]. Chemico-Biological Interactions, 2022, 363:110009.

DOI

[5]
CAO C Y, XIAN R X, LIN F H, et al. Fumonisin B1 induces hepatotoxicity in mice through the activation of oxidative stress,apoptosis and fibrosis[J]. Chemosphere, 2022, 296:133910.

DOI

[6]
ZHU F H, WANG Y. Fumonisin B1 induces immunotoxicity and apoptosis of chicken splenic lymphocytes[J]. Frontiers in Veterinary Science, 2022, 9:898121.

DOI

[7]
OSTRY V, MALIR F, TOMAN J, et al. Mycotoxins as human carcinogens-the IARC monographs classification[J]. Mycotoxin Research, 2017, 33(1):65-73.

DOI PMID

[8]
LIU M, ZHAO L, GONG G X, et al. Invited review:remediation strategies for mycotoxin control in feed[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):19.

DOI

[9]
MATUMBA L, VAN POUCKE C, NJUMBE EDIAGE E, et al. Effectiveness of hand sorting,flotation/washing,dehulling and combinations thereof on the decontamination of mycotoxin-contaminated white maize[J]. Food Additives & Contaminants:Part A, 2015, 32(6):960-969.

[10]
WIELOGORSKA E, AHMED Y, MENEELY J, et al. A holistic study to understand the detoxification of mycotoxins in maize and impact on its molecular integrity using cold atmospheric plasma treatment[J]. Food Chemistry, 2019, 301:125281.

DOI

[11]
BARRIENTOS-VELÁZQUEZ A L, ARTEAGA S, DIXON J B, et al. The effects of pH,pepsin,exchange cation,and vitamins on aflatoxin adsorption on smectite in simulated gastric fluids[J]. Applied Clay Science, 2016, 120:17-23.

DOI

[12]
SOLÍS-CRUZ B, HERNÁNDEZ-PATLÁN D, BEYSSAC E, et al. Evaluation of chitosan and cellulosic polymers as binding adsorbent materials to prevent aflatoxin B1,fumonisin B1,ochratoxin,trichothecene,deoxynivalenol,and zearalenone mycotoxicoses through an in vitro gastrointestinal model for poultry[J]. Polymers, 2017, 9(10):529.

DOI

[13]
KIHAL A, RODRIGUEZ-PRADO M, GODOY C, et al. In vitro assessment of the capacity of certain mycotoxin binders to adsorb some amino acids and water-soluble vitamins[J]. Journal of Dairy Science, 2020, 103(4):3125-3132.

DOI

[14]
SHI H, ILELEJI K, STROSHINE R L, et al. Reduction of aflatoxin in corn by high voltage atmospheric cold plasma[J]. Food and Bioprocess Technology, 2017, 10(6):1042-1052.

DOI

[15]
VOSS K, RYU D, JACKSON L, et al. Reduction of fumonisin toxicity by extrusion and nixtamalization (alkaline cooking)[J]. Journal of Agricultural and Food Chemistry, 2017, 65(33):7088-7096.

DOI PMID

[16]
RIBEIRO D F, FARONI L R D A, PIMENTEL M A G, et al. Ozone as a fungicidal and detoxifying agent to maize contaminated with fumonisins[J]. Ozone:Science & Engineering, 2022, 44(1):38-49.

[17]
MYLONA K, KOGKAKI E, SULYOK M, et al. Efficacy of gaseous ozone treatment on spore germination,growth and fumonisin production by Fusarium verticillioides in vitro and in situ in maize[J]. Journal of Stored Products Research, 2014, 59:178-184.

DOI

[18]
ZHU F. Effect of ozone treatment on the quality of grain products[J]. Food Chemistry, 2018, 264:358-366.

DOI PMID

[19]
SCHRENK D, BIGNAMI M, BODIN L, et al. Assessment of an application on a detoxification process of groundnut press cake for aflatoxins by ammoniation[J]. EFSA Journal, 2021, 19(12):e07035.

[20]
NIDERKORN V, BOUDRA H, MORGAVI D P. Binding of Fusarium mycotoxins by fermentative bacteria in vitro[J]. Journal of Applied Microbiology, 2006, 101(4):849-856.

DOI

[21]
PIZZOLITTO R P, SALVANO M A, DALCERO A M. Analysis of fumonisin B1 removal by microorganisms in co-occurrence with aflatoxin B1 and the nature of the binding process[J]. International Journal of Food Microbiology, 2012, 156(3):214-221.

DOI

[22]
DAWLAL P, BRABET C, THANTSHA M S, et al. Visualisation and quantification of fumonisins bound by lactic acid bacteria isolates from traditional African maize-based fermented cereals,ogi and mahewu[J]. Food Additives & Contaminants:Part A, 2019, 36(2):296-307.

[23]
张军, 乔雅菲, 王晓, 等. 植物乳杆菌ZJ8吸附伏马菌素B1和B2特性[J]. 微生物学报, 2014, 54(12):1481-1488.

ZHANG J, QIAO Y F, WANG X, et al. Absorption of fumonisin B1 and B2 by Lactobacillus plantarum ZJ8[J]. Acta Microbiologica Sinica, 2014, 54(12):1481-1488. (in Chinese)

[24]
PETROVA P, ARSOV A, TSVETANOVA F, et al. The complex role of lactic acid bacteria in food detoxification[J]. Nutrients, 2022, 14(10):2038.

DOI

[25]
EL-NAGGAR M A, THABIT T M. Evaluation of β-D-glucan biopolymer as a novel mycotoxin binder for fumonisin and deoxynivalenol in soybean feed[J]. Foodborne Pathogens and Disease, 2014, 11(6):433-438.

DOI

[26]
ARMANDO M R, GALVAGNO M A, DOGI C A, et al. Statistical optimization of culture conditions for biomass production of probiotic gut-borne Saccharomyces cerevisiae strain able to reduce fumonisin B1[J]. Journal of Applied Microbiology, 2013, 114(5):1338-1346.

DOI

[27]
ZHAO H F, WANG X, ZHANG J W, et al. The mechanism of Lactobacillus strains for their ability to remove fumonisins B1 and B2[J]. Food and Chemical Toxicology, 2016, 97:40-46.

DOI

[28]
KEAWMANEE P, RATTANAKREETAKUL C, PONGPISUTTA R. Microbial reduction of fumonisin B1 by the new isolate Serratia marcescens 329-2[J]. Toxins, 2021, 13(9):638.

DOI

[29]
JIN H Y, HIRAOKA Y, OKUMA Y, et al. Microbial degradation of amino acid-containing compounds using the microcystin-degrading bacterial strain B-9[J]. Marine Drugs, 2018, 16(2):50.

DOI

[30]
BENEDETTI R, NAZZI F, LOCCI R, et al. Degradation of fumonisin B1 by a bacterial strain isolated from soil[J]. Biodegradation, 2006, 17(1):31-38.

DOI

[31]
ZHAO Z Y, ZHANG Y M, GONG A D, et al. Biodegradation of mycotoxin fumonisin B1 by a novel bacterial consortium SAAS79[J]. Applied Microbiology and Biotechnology, 2019, 103(17):7129-7140.

DOI

[32]
KHALIL A A, ABOU-GABAL A E, ABDELLATEF A A, et al. Protective role of probiotic lactic acid bacteria against dietary fumonisin B1-induced toxicity and DNA-fragmentation in Sprague-Dawley rats[J]. Preparative Biochemistry & Biotechnology, 2015, 45(6):530-550.

[33]
EZDINI K, BEN SALAH-ABBÈS J, BELGACEM H, et al. The ameliorative effect of Lactobacillus paracasei BEJ01 against FB1 induced spermatogenesis disturbance,testicular oxidative stress and histopathological damage[J]. Toxicology Mechanisms and Methods, 2023, 33(1):73-82.

DOI

[34]
ABBÈS S, BEN SALAH-ABBÈS J, JEBALI R, et al. Interaction of aflatoxin B1 and fumonisin B1 in mice causes immunotoxicity and oxidative stress:possible protective role using lactic acid bacteria[J]. Journal of Immunotoxicology, 2016, 13(1):46-54.

DOI

[35]
DEEPTHI B V, SOMASHEKARAIAH R, POORNACHANDRA RAO K, et al. Lactobacillus plantarum MYS6 ameliorates fumonisin B1-induced hepatorenal damage in broilers[J]. Frontiers in Microbiology, 2017, 8:2317.

DOI

[36]
HEINL S, HARTINGER D, THAMHESL M, et al. Degradation of fumonisin B1 by the consecutive action of two bacterial enzymes[J]. Journal of Biotechnology, 2010, 145(2):120-129.

DOI

[37]
ALBERTS J, SCHATZMAYR G, MOLL W D, et al. Detoxification of the fumonisin mycotoxins in maize:an enzymatic approach[J]. Toxins, 2019, 11(9):523.

DOI

[38]
ALBERTS J F, DAVIDS I, MOLL W D, et al. Enzymatic detoxification of the fumonisin mycotoxins during dry milling of maize[J]. Food Control, 2021, 123:107726.

DOI

[39]
LI Z Y, WANG Y, LIU Z Q, et al. Biological detoxification of fumonisin by a novel carboxylesterase from Sphingomonadales bacterium and its biochemical characterization[J]. International Journal of Biological Macromolecules, 2021, 169:18-27.

DOI

[40]
LIU Q C, LI F C, HUANG L B, et al. FumDSB can reduce the toxic effects of fumonisin B1 by regulating several brain-gut peptides in both the hypothalamus and jejunum of growing pigs[J]. Toxins, 2021, 13(12):874.

DOI

[41]
HARTINGER D, SCHWARTZ H, HAMETNER C, et al. Enzyme characteristics of aminotransferase FumI of Sphingopyxis sp. MTA144 for deamination of hydrolyzed fumonisin B1[J]. Applied Microbiology and Biotechnology, 2011, 91(3):757-768.

DOI

[42]
WANG X, WU Q H, WAN D, et al. Fumonisins:oxidative stress-mediated toxicity and metabolism in vivo and in vitro[J]. Archives of Toxicology, 2016, 90(1):81-101.

DOI

[43]
MAQSOUDLOU A, ASSADPOUR E, MOHEBODINI H, et al. The influence of nanodelivery systems on the antioxidant activity of natural bioactive compounds[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(12):3208-3231.

DOI

[44]
HARTINGER D, HEINL S, SCHWARTZ H E, et al. Enhancement of solubility in Escherichia coli and purification of an aminotransferase from Sphingopyxis sp. MTA144 for deamination of hydrolyzed fumonisin B1[J]. Microbial Cell Factories, 2010, 9:62.

DOI

[45]
HEINL S, HARTINGER D, THAMHESL M, et al. An aminotransferase from bacterium ATCC 55552 deaminates hydrolyzed fumonisin B1[J]. Biodegradation, 2011, 22(1):25-30.

DOI

[46]
WANG Y, SUN J H, ZHANG M W, et al. Detoxification of fumonisins by three novel transaminases with diverse enzymatic characteristics coupled with carboxylesterase[J]. Foods, 2023, 12(2):416.

DOI

[47]
GARNHAM C P, BUTLER S G, TELMER P G, et al. Identification and characterization of an Aspergillus niger amine oxidase that detoxifies intact fumonisins[J]. Journal of Agricultural and Food Chemistry, 2020, 68(47):13779-13790.

DOI

[48]
LOGRIECO A F, HAIDUKOWSKI M, SUSCA A, et al. Aspergillus section Nigri as contributor of fumonisin B2 contamination in maize[J]. Food Additives & Contaminants:Part A, 2014, 31(1):149-155.

[49]
BURGESS K M N, RENAUD J B, MCDOWELL T, et al. Mechanistic insight into the biosynthesis and detoxification of fumonisin mycotoxins[J]. ACS Chemical Biology, 2016, 11(9):2618-2625.

DOI PMID

[50]
TELMER P G, KELMAN M J, RENAUD J B, et al. Application of Aspergillus niger fumonisin amine oxidase (AnFAO) to detoxify fumonisin-contaminated maize[J]. Toxins, 2022, 14(8):544.

DOI

[51]
WANG X L, QIN X, HAO Z Z, et al. Degradation of four major mycotoxins by eight manganese peroxidases in presence of a dicarboxylic acid[J]. Toxins, 2019, 11(10):566.

DOI

[52]
MASCHING S, NAEHRER K, SCHWARTZ-ZIMMERMANN H E, et al. Gastrointestinal degradation of fumonisin B1 by carboxylesterase FumD prevents fumonisin induced alteration of sphingolipid metabolism in turkey and swine[J]. Toxins, 2016, 8(3):84.

DOI

[53]
NECKERMANN K, ANTONISSEN G, DOUPOVEC B, et al. Efficacy of fumonisin esterase in piglets as animal model for fumonisin detoxification in humans:pilot study comparing intraoral to intragastric administration[J]. Toxins, 2022, 14(2):136.

DOI

[54]
RYCHEN G, AQUILINA G, AZIMONTI G, et al. Safety and efficacy of fumonisin esterase from Komagataella phaffii DSM 32159 as a technological feed additive for pigs and poultry[J]. EFSA Journal, 2018, 16(5):e05269.

[55]
BAMPIDIS V, AZIMONTI G, DE LOURDES BASTOS M, et al. Safety and efficacy of fumonisin esterase from Komagataella phaffii DSM 32159 as a feed additive for all animal species[J]. EFSA Journal, 2020, 18(7):e06207.

[56]
LI M C, LIU S H, TAN L, et al. Fumonisin B1 induced intestinal epithelial barrier damage through endoplasmic reticulum stress triggered by the ceramide synthase 2 depletion[J]. Food and Chemical Toxicology, 2022, 166:113263.

DOI

[57]
GUERRE P, MATARD-MANN M, NYVALL COLLÉN P, Targeted sphingolipid analysis in chickens suggests different mechanisms of fumonisin toxicity in kidney,lung,and brain[J]. Food and Chemical Toxicology, 2022, 170:113467.

DOI

[58]
MERRILL A H Jr, SULLARDS M C, WANG E, et al. Sphingolipid metabolism:roles in signal transduction and disruption by fumonisins[J]. Environmental Health Perspectives, 2001, 109(Suppl.2):283-289.

[59]
LI K L, YU S, YU D Z, et al. Biodegradation of fumonisins by the consecutive action of a fusion enzyme[J]. Toxins, 2022, 14(4):266.

DOI

[60]
BLACKWELL B A, GILLIAM J T, SAVARD M E, et al. Oxidative deamination of hydrolyzed fumonisin B1 (AP1) by cultures of Exophiala spinifera[J]. Natural Toxins, 1999, 7(1):31-38.

DOI

Outlines

/