RESEARCH PAPER

Optimization of Fermentation Process for Cellulase Production by Bacillus mojavensis HXS-LV12 Using Plackett-Burman and Box-Behnken Experiments

  • BAI Changsheng , 1 ,
  • WANG Huan 1 ,
  • YIN Junyi 1 ,
  • LI Li 2 ,
  • WU Xian 2 ,
  • CHEN Liang 2 ,
  • XU Tingting 2 ,
  • SHEN Sisi 2 ,
  • TIAN Qiufeng 1 ,
  • WANG Yan 1 ,
  • LIU Qiujin 1 ,
  • MIAO Yan 2 ,
  • LAN Shijieg 2 ,
  • JIANG Botao , 2, *
Expand
  • 1 Engineering Research Center for Fermentation Chinese Traditional Medicine of Feed, Branch of Animal Husbandry and Veterinary of Heilongjiang Academy of Agricultural Sciences, Qiqihar 161005, China
  • 2 Branch of Animal Husbandry and Veterinary of Heilongjiang Academy of Agricultural Sciences, Qiqihar 161005, China
* professor, E-mail:

Received date: 2023-08-07

  Online published: 2024-01-12

Abstract

In this study, the fermentation condition of cellulase production by Bacillus amyloliquefaciens HXS-LV12 was optimized to produce cellulase. Firstly, cultural conditions (variety of carbon sources, mass concentration of carbon source, variety of nitrogen sources, mass concentration of nitrogen sources, variety of inorganic salts, mass concentration of inorganic salt, rotate speed, temperature, inoculum volume, initial pH and fermentation time) of HXS-LV12 were optimized by single-factor experiments. Then, three factors, signally affect production of cellulase by HXS-LV12 fermentation, were obtained by Plackett-Burman experiment. The maximum response area of cellulase activity was determined by steepest ascent. Finally, Box-Behnken experiment were used to ascertain the optimal condition of cellulase production. The optimal conditions were: sodium carboxymethylcellulose (CMC-Na) mass concentration was 32.9 g/L, yeast extract powder mass concentration was 17.6 g/L, K2HPO4 was 5.7 g/L, rotate speed was 190 r/min, inoculum volume was 6.5%, fermentation time was 24 h, initial pH was 7.0 and incubating temperature was 33 ℃. Under the optimal conditions, the activity of cellulase produced by HXS-LV12 were achieved (40.53±0.43) U/mL, which was 2.25 times of that before optimization.

Cite this article

BAI Changsheng , WANG Huan , YIN Junyi , LI Li , WU Xian , CHEN Liang , XU Tingting , SHEN Sisi , TIAN Qiufeng , WANG Yan , LIU Qiujin , MIAO Yan , LAN Shijieg , JIANG Botao . Optimization of Fermentation Process for Cellulase Production by Bacillus mojavensis HXS-LV12 Using Plackett-Burman and Box-Behnken Experiments[J]. Chinese Journal of Animal Nutrition, 2024 , 36(1) : 564 -578 . DOI: 10.12418/CJAN2024.051

纤维素酶是由多种水解酶构成的复合酶系,可将纤维素分解成寡糖或单糖[1],其广泛应用在食品[2-3]、纺织[4]、造纸[5-6]、生物质能源开发[7]等领域。纤维素酶在畜牧生产中也具有重要的应用价值,因为纤维素酶能够水解植物细胞壁,促进胞内营养物质的释放和分解[8];降解消除饲料中的抗营养因子,降低胃肠道内容物的黏稠度[9];补充动物内源酶的不足,促进动物内源酶的分泌,提高动物内源酶的活性[10];促进肠道内有益微生物的生长,改善肠道形态结构[11];与动物肠道内其他消化酶相互协同作用,促进营养物质的消化[12]。相关研究表明,在饲粮中添加纤维素酶可以改善其营养品质,促进动物对营养物质的消化和吸收,提高畜禽生产性能,改善屠宰性能,减少畜禽疾病的发生,降低养殖成本[13-17]。目前由于常规饲料资源紧张、人畜争粮矛盾凸显,合理添加纤维素酶从而开发利用非常规饲料对畜牧业具有重要意义。
纤维素酶主要由微生物代谢产生,目前已报道的产纤维素酶菌株包括青霉菌属(Penicillium)、木霉菌属(Trichoderma)、曲霉属(Aspergillus)[18-20]、芽孢杆菌属(Bacillus)[21]和链霉菌属(Streptomyces)[22],因此继续从自然界挖掘产纤维素酶活力强的优良菌株资源仍然是一项重要而有意义的工作。本团队前期研究中,从驴肠道中分离筛选得到的菌株HXS-LV12,具有较强产纤维素酶能力,经过分子生物学鉴定为莫海威芽孢杆菌(Bacillus mojavensis),为了最大程度地提高菌株发酵产纤维素酶水平,需要对发酵工艺条件进行优化。
本研究以莫海威芽孢杆菌HXS-LV12为出发菌株,以羧甲基纤维素酶(CMCase)活力为响应值,采用Plackett-Burman和Box-Behnken试验优化其培养基及培养条件组成,旨在进一步提高其产纤维素酶的活力,为该菌株的工业化生产提供理论支持和应用参考。

1 材料与方法

1.1 菌株与试剂

莫海威芽孢杆菌HXS-LV12分离自驴肠道,保存于黑龙江省农业科学院畜牧兽医分院微生物实验室。
试剂有葡萄糖、麦芽糖、蔗糖、乳糖、糊精、可溶性淀粉、可溶性壳聚糖、玉米粉、CMC-Na、牛肉膏、蛋白胨、酵母浸粉(YEP)、豆粕粉、尿素、氯化铵、硝酸铵、氯化钾、氯化镁、氯化钴、硫酸钠、硫酸镁、硫酸锌、硫酸锰、磷酸氢二钠、磷酸二氢钠、磷酸氢二钾、磷酸二氢钾、冰醋酸、无水醋酸钠、3,5-二硝基水杨酸(DNS)、氢氧化钠、四水酒石酸钾钠、苯酚、无水亚硫酸钠。

1.2 培养基

营养琼脂(NA)培养基:蛋白胨10.0 g/L,牛肉膏3.0 g/L,氯化钠5.0 g/L,琼脂15.0 g/L,pH 7.2~7.4,121 ℃高压灭菌30 min。
种子培养基及初始发酵培养基:CMC-Na 20.0 g/L,蛋白胨10.0 g/L,氯化钠1.0 g/L,pH自然,121 ℃灭菌30 min。

1.3 仪器与设备

PHM-53型全自动高压蒸汽灭菌器(上海尧勋智能科技有限公司);Scb-1360型双人垂直超净工作台(无锡一净净化设备有限公司);DHP-9162型电热恒温培养箱(上海一恒科学仪器有限公司);721N可见分光光度计(上海精密科学仪器有限公司);HWS-24电热恒温水浴锅(上海一恒科学仪器有限公司);HZQ-F100恒温振荡培养箱(北京东联哈尔仪器制造有限公司);ME104型电子天平和FE20型pH计[梅特勒-托利多仪器(上海)有限公司];TGL-16台式高速冷冻离心机(湖南湘仪实验室仪器开发有限公司)。

1.4 试验方法

1.4.1 种子液制备

菌株HXS-LV12在NA平板上活化,37 ℃培养24 h。将单菌落接种于10 mL种子培养基中,37 ℃、180 r/min振荡培养24 h,即得种子液。

1.4.2 初始发酵条件

种子培养液接种量为2.0%,250 mL三角瓶中装液量为50 mL,37 ℃、180 r/min振荡培养24 h。

1.4.3 培养基单因素试验

1.4.3.1 不同碳源对HXS-LV12产纤维素酶活力的影响

在初始发酵培养基的基础上,分别用葡萄糖、乳糖、麦芽糖、蔗糖、糊精、可溶性淀粉、可溶性壳聚糖、玉米粉和CMC-Na为碳源,添加量均为20.0 g/L,按初始发酵条件培养,测定CMCase活力,确定产酶最佳碳源[23]。确定最佳碳源后,分别添加5.0、10.0、15.0、20.0、25.0、30.0、35.0、40.0、45.0、50.0 g/L的最佳碳源进行发酵培养,确定最佳碳源添加量。

1.4.3.2 不同氮源对HXS-LV12产纤维素酶活力的影响

在初始发酵培养基的基础上,分别用牛肉膏、蛋白胨、酵母粉、豆粕粉、尿素、氯化铵和硝酸铵为氮源,添加量均为10.0 g/L,按初始发酵条件培养,测定CMCase活力,确定产酶最佳氮源[24]。确定最佳氮源后,分别添加1.0、4.0、7.0、10.0、13.0、16.0、19.0 g/L的最佳氮源进行发酵培养,确定最佳氮源添加量。

1.4.3.3 不同无机盐对HXS-LV12产纤维素酶活力的影响

在初始发酵培养基的基础上,分别用氯化钠、氯化钾、氯化镁、氯化钴、硫酸钠、硫酸镁、硫酸锌、硫酸锰、磷酸氢二钠、磷酸二氢钠、磷酸氢二钾、磷酸二氢钾为无机盐,添加量均为1.0 g/L,按初始发酵条件培养,测定CMCase活力,确定产酶最佳无机盐[25]。确定最佳无机盐后,分别添加1.0、2.0、3.0、4.0、5.0、6.0、7.0 g/L的最佳无机盐进行发酵培养,确定最佳无机盐添加量。

1.4.4 培养条件单因素试验

1.4.4.1 转速对HXS-LV12产纤维素酶活力的影响

接种初始发酵培养基后,分别在60、100、140、180、220、260 r/min进行发酵培养,测定CMCase活力,确定最佳发酵转速。

1.4.4.2 接种量对HXS-LV12产纤维素酶活力的影响

分别采用2%、4%、6%、8%、10%、12%、14%接种量接种初始发酵培养基进行发酵培养,测定CMCase活力,确定最佳接种量。

1.4.4.3 发酵时间对HXS-LV12产纤维素酶活力的影响

接种初始发酵培养基后,分别发酵培养6、12、18、24、30、36、42 h,测定CMCase活力,确定最佳发酵时间。

1.4.4.4 初始pH对HXS-LV12产纤维素酶活力的影响

分别调节初始发酵培养基的初始pH为3.0、4.0、5.0、6.0、7.0、8.0、9.0进行发酵培养,测定CMCase活力,确定最佳初始pH。

1.4.4.5 发酵温度对HXS-LV12产纤维素酶活力的影响

接种初始发酵培养基后,分别在20.0、25.0、30.0、35.0、40.0、45.0、50.0 ℃进行发酵培养,测定CMCase活力,确定最佳发酵温度。

1.4.5 Plackett-Burman试验设计

在单因素优化结果的基础上,以CMC-Na质量浓度(A)、YEP质量浓度(B)、磷酸氢二钾质量浓度(C)、转速(D)、接种量(E)、发酵时间(F)、初始pH(G)、发酵温度(H)等8个因素及3个虚拟因素(J、K、L)作为考察对象,以HXS-LV12产CMCase活力为响应值,采用Plackett-Burman试验设计,筛选出对HXS-LV12产CMCase活力具有显著影响的因素[26]。试验设计因素及水平见表1
表1 Plackett-Burman试验设计因素及水平

Table 1 Factors and levels in Plackett-Burman experimental design (n=12)

编号
No.
因素
Factor
单位
Unit
水平Level
低水平
Low level(-1)
高水平
High level(1)
A 羧甲基纤维素钠质量浓度 g/L 25 35
B 酵母浸粉质量浓度 g/L 13 19
C 磷酸氢二钾质量浓度 g/L 4 6
D 转速 r/min 160 200
E 接种量 % 4 8
F 发酵时间 h 22 26
G 初始pH 6 8
H 发酵温度 33 37
J 虚拟 -1 1
K 虚拟 -1 1
L 虚拟 -1 1

1.4.6 最陡爬坡试验设计

根据单因素试验及Plackett-Burman试验结果,选取对HXS-LV12产CMCase活力有显著影响的因素进行最陡爬坡试验,依据Plackett-Burman试验获得的回归系数确定因素的步移方向和步长进行最陡爬坡试验[27]

1.4.7 响应面试验设计

根据Plackett-Burman试验和最陡爬坡试验结果,确定CMC-Na质量浓度(A)、YEP质量浓度(B)和初始pH(G)为影响HXS-LV12产CMCase活力的3个主要因素,以CMCase活力为响应值,采用Box-Behnken试验设计3因素3水平的响应面试验[28],试验设计因素及水平见表2
表2 Box-Behnken试验设计因素及水平

Table 2 Factors and levels of Box-Behnken experimental design (n=17)

水平
Levels
因素Factors
CMC-Na质量浓度
Mass concentration of
CMC-Na/(g/L)(A)
酵母浸粉质量浓度
Mass concentration of
YEP/(g/L)(B)
初始pH
Initial pH
(G)
-1 25.0 13.0 6.5
0 30.0 16.0 7.0
1 35.0 19.0 7.5

1.4.8 酶活力测定

1.4.8.1 CMCase分泌位置确定

将50 mL发酵液在4 ℃、5 000 r/min离心10 min,测定上清液中CMCase活力,即为胞外酶活力;收集菌体加磷酸盐缓冲液(PBS)冲洗,离心,反复2次,菌体沉淀加PBS悬浮混匀,4 ℃超声破碎,破碎总时间为5 min(超声3 s、间隔3 s),功率为350 W,离心,上清液测CMCase活力,即为胞内酶活力。最后通过比较两者CMCase活力大小,初步确定HXS-LV12所产CMCase的胞外/胞内属性[29]

1.4.8.2 粗酶液制备

发酵液在4 ℃、5 000 r/min离心10 min,上清液即为粗酶液,置于4 ℃保存。

1.4.8.3 酶活力测定

CMCase活力采用DNS定糖法[30]进行测定:使用pH 5.5的0.1 mol/L醋酸-醋酸钠缓冲液配制浓度为15.0 g/L的CMC-Na溶液作为底物溶液。取2 mL粗酶液与2 mL底物溶液混合,在37 ℃反应30 min,加入5 mL DNS溶液终止反应,沸水浴5 min,冷却至室温后加水定容至25 mL,以煮沸10 min的粗酶液作为对照,测定波长540 nm处的吸光度,以葡萄糖标准溶液绘制的标准曲线计算CMCase活力。
CMCase活力单位定义:在37 ℃、pH 5.5条件下,每分钟水解CMC-Na释放出相当于1.0 μmol葡萄糖含量时所需的酶量为1个酶活力单位(U)。

1.5 数据统计与分析

应用Design Expert 12.0进行Plackett-Burman和Box-Behnken试验设计和分析,应用Excel 2010作图,应用SPSS 26.0软件统计试验数据,采用one-way ANOVA程序进行单因素方差分析,采用Duncan氏法进行组间多重比较,试验数据用平均值±标准差表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 CMCase分泌位置确定

胞外、胞内CMCase活力测定结果显示,菌体细胞内几乎没有CMCase活力,而胞外CMCase活力可达(19.76±1.13) U/mL,因此可确定HXS-LV12所产CMCase主要分泌在胞外。

2.2 单因素试验结果

2.2.1 最佳碳源及添加量

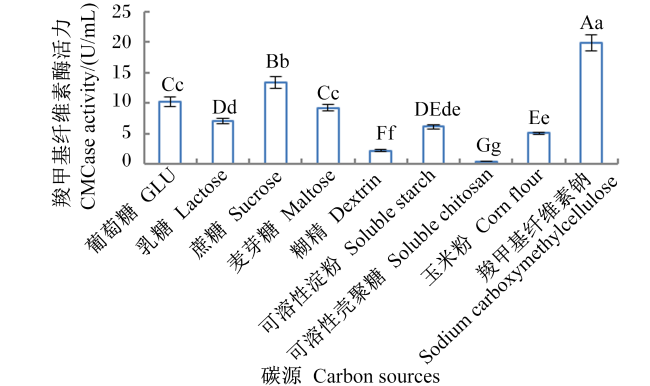
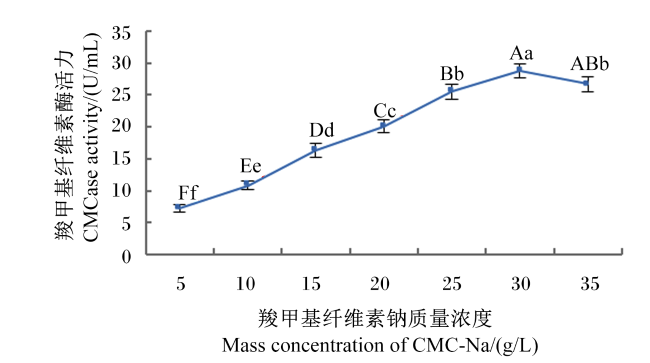
碳源主要用于合成菌体细胞的碳骨架和代谢产物,为菌体的生长代谢提供能源[31]。由图1可知,不同碳源对HXS-LV12发酵液中CMCase活力有较大影响,以CMC-Na为碳源时,CMCase活力极显著高于其他碳源(P<0.01)。由图2可知,随着CMC-Na添加量的增加,CMCase活力呈先上升后下降的趋势,在CMC-Na添加量为30.0 g/L时达到最高。
图1 碳源对菌株HXS-LV12产羧甲基纤维酶活力的影响

数据柱标注不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下图同。

Fig.1 Effects of carbon sources on CMCase activity of strain HXS-LV12

Data column with different small letters mean significant difference (P<0.05), and with different capital letters mean extremely significant difference (P<0.01). The same as below.

图2 CMC-Na质量浓度对菌株HXS-LV12产羧甲基纤维素酶活力的影响

Fig.2 Effects of mass concentration of CMC-Na on CMCase activity of strain HXS-LV12

2.2.2 最佳氮源及添加量

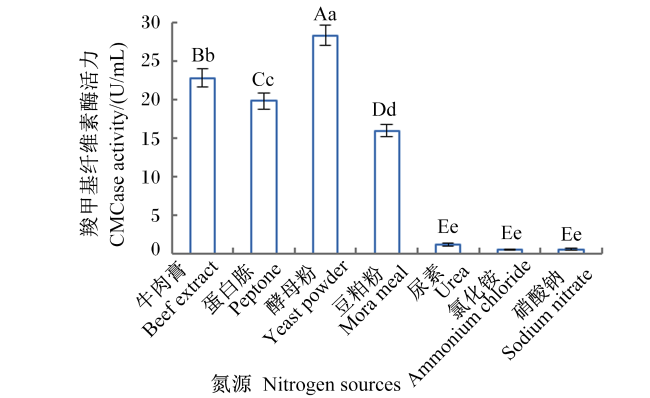
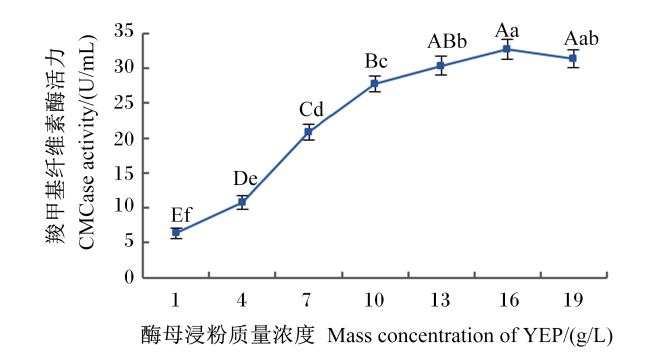
氮源主要用于菌体合成蛋白质、多肽、氨基酸、核苷酸及含氮代谢物[25]。由图3可知,牛肉膏、蛋白胨、YEP、豆粕粉作为氮源时,CMCase活力均较高,尿素、氯化铵和硝酸铵作为氮源时,CMCase活力极低,说明无机氮源不利于菌株产CMCase。当YEP作为氮源时,CMCase活力最高。由图4可知,随着YEP添加量增加,CMCase活力呈先上升后下降的趋势,在YEP添加量为16.0 g/L时达到最高。
图3 氮源对菌株HXS-LV12产羧甲基纤维素酶活力的影响

Fig.3 Effects of nitrogen sources on CMCase activity of strain HXS-LV12

图4 酵母浸粉质量浓度对菌株HXS-LV12产羧甲基纤维素酶活力的影响

Fig.4 Effects of mass concentration of YEP on CMCase activity of strain HXS-LV12

2.2.3 最佳无机盐及添加量

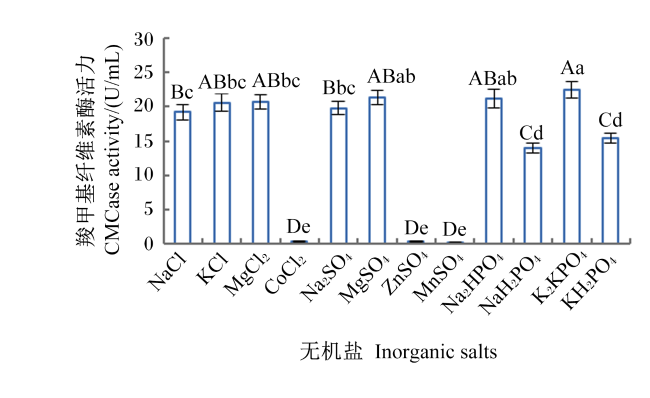
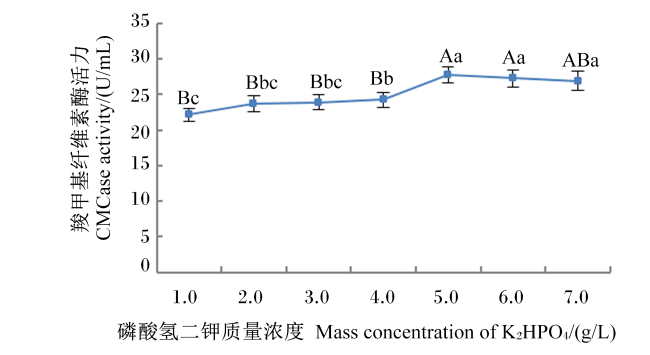
无机盐既可促进菌体生长,又是某些活性物质的组成成分或者酶的激活剂[32]。由图5可知,添加氯化钴、硫酸锌、硫酸锰、磷酸二氢钠和磷酸二氢钾,显著抑制CMCas活力(P<0.05),其余无机盐对CMCase活力有促进作用,添加磷酸氢二钾时,CMCase活力最高。由图6可知,当磷酸氢二钾添加量为5.0 g/L时,CMCase活力最高。
图5 无机盐对菌株HXS-LV12产羧甲基纤维素酶活力的影响

Fig.5 Effects of inorganic salts on CMCase activity of strain HXS-LV12

图6 磷酸氢二钾质量浓度对菌株HXS-LV12产羧甲基纤维素酶活力的影响

Fig.6 Effects of mass concentration of K2HPO4 on CMCase activity of strain HXS-LV12

2.2.4 转速

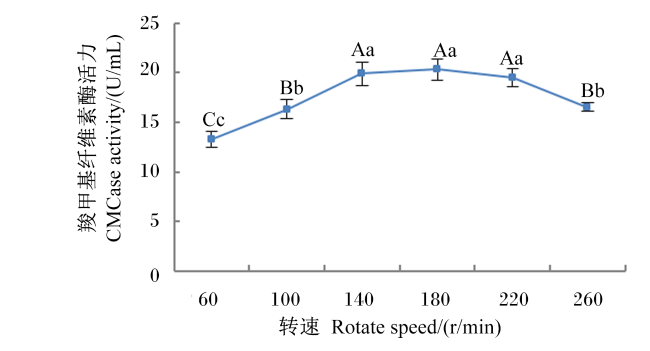
芽孢杆菌是需氧菌,发酵过程中改变摇床转速可以调节培养基中的溶解氧浓度[33]。转速太小,溶解氧量小,不利于菌体生长,转速太大时,菌体生长量反而减少。由图7可知,在转速为180.0 r/min时,CMCase活力最大,转速在140.0~220.0 r/min,酶活力接近。
图7 转速对菌株HXS-LV12产羧甲基纤维素酶活性的影响

Fig.7 Effects of rotate speed on CMCase activity of strain HXS-LV12

2.2.5 接种量

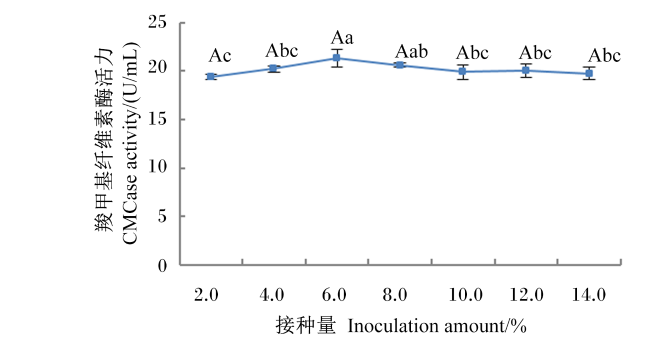
接种量的大小会影响整个发酵周期。接种量过小,菌体生长缓慢,产酶量少;接种量过大,培养基中的养分和溶解氧快速消耗,抑制菌体生长和产酶,且造成种子液浪费[34]。由图8可知,随着接种量的增加,CMCase活力有所增加,接种量为6.0%时,酶活力达到最大值,随后酶活力随接种量的增加逐步缓慢下降。
图8 接种量对菌株HXS-LV12产羧甲基纤维素酶活性的影响

Fig.8 Effects of inoculation amount on CMCase activity of strain HXS-LV12

2.2.6 发酵时间

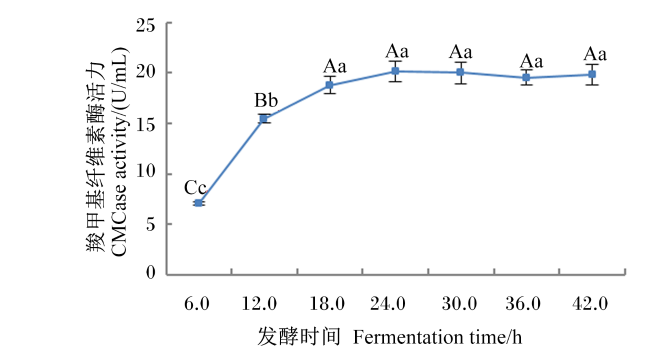
在发酵初期,微生物主要生长和繁殖菌体,生长到一定阶段后开始发酵产酶[35]。由图9可知,随着发酵时间延长,CMCase活力增加,在发酵24 h时达到最大值,随后酶活力基本保持稳定。
图9 发酵时间对菌株HXS-LV12产羧甲基纤维素酶活性的影响

Fig.9 Effects of fermentation time on CMCase activity of strain HXS-LV12

2.2.7 初始pH

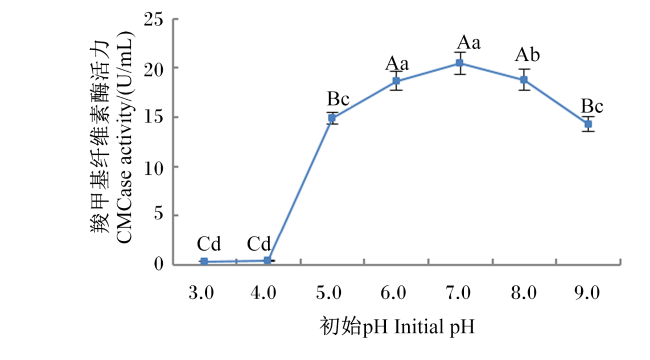
图10可知,初始pH为3.0和4.0时,CMCase活力接近0,然后随着pH升高,CMCase活力增大,在pH为7.0时,CMCase活力达到最大值,随后开始下降。
图10 初始pH对菌株HXS-LV12产羧甲基纤维素酶活性的影响

Fig.10 Effects of initial pH on CMCase activity of strain HXS-LV12

2.2.8 发酵温度

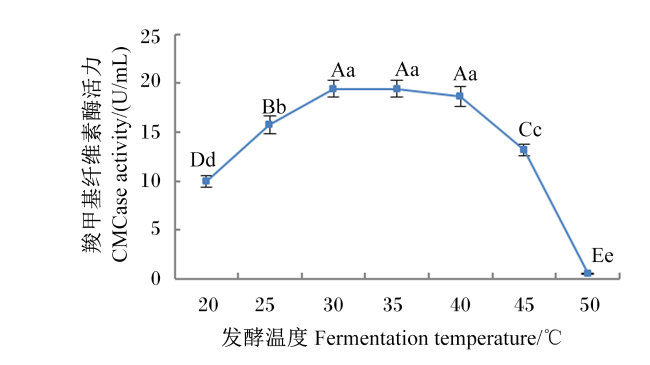
温度可影响菌体内酶、蛋白质、DNA、RNA等大分子的生物合成及活性,影响酶促反应速率和代谢产物的合成,从而影响微生物的生长和代谢[36]。温度低时,菌体生长代谢缓慢,温度过高时,菌体生长和酶活力都受到抑制,甚至导致菌体死亡。由图11可知,随着温度的升高,CMCase活力增大,在35.0 ℃时,CMCase活力达到最大值,随后CMCase活力开始下降,在50.0 ℃时,CMCase活力迅速下降接近0;在30.0~40.0 ℃,CMCase活力接近。
图11 发酵温度对菌株HXS-LV12产羧甲基纤维素酶活性的影响

Fig.11 Effects of fermentation temperature on CMCase activity of strain HXS-LV12

2.3 Plackett-Burman试验结果

Plackett-Burman试验结果见表3,方差分析结果见表4
表3 Plackett-Burman试验结果

Table 3 Results of Plackett-Burman experiment

编号
No.
因素Factors 羧甲基纤
维素酶
活力
CMCase/
(U/mL)
(Y)
羧甲基纤
维素钠质
量浓度
Mass
concentration
of CMC-Na
(A)
酵母浸粉
质量浓度
Mass
concentration
of YEP
(B)
磷酸氢二
钾质量
浓度
Mass
concentration
of K2HPO4
(C)
转速
Rotate
speed/
(r/min)
(D)
接种量
Inoculation
amount/%
(E)
发酵时间
Fermentation
time/h
(F)
初始pH
Initial pH
(G)
发酵温度
Fermentation
temperature/

(H)
1 1 -1 1 -1 -1 -1 1 1 38.95
2 1 1 -1 1 -1 -1 -1 1 35.75
3 -1 1 1 -1 1 -1 -1 -1 27.68
4 1 -1 1 1 -1 1 -1 -1 30.14
5 1 1 -1 1 1 -1 1 -1 39.85
6 1 1 1 -1 1 1 -1 1 36.46
7 -1 1 1 1 -1 1 1 -1 33.51
8 -1 -1 1 1 1 -1 1 1 29.57
9 -1 -1 -1 1 1 1 -1 1 25.23
10 1 -1 -1 -1 1 1 1 -1 35.19
11 -1 1 -1 -1 -1 1 1 1 30.08
12 -1 -1 -1 -1 -1 -1 -1 -1 21.13
表4 Plackett-Burman试验回归方程方差分析

Table 4 Regression equation of variance analysis of Plackett-Burman experiment

来源
Sources
平方和
Sum of squares
自由度
df
均方和
Mean sum of
square
回归系数
Coefficient
F
F-value
P
P-value
模型Model 341.38 8 42.67 12.03 0.032 7
CMC-Na质量浓度
Mass concentration of CMC-Na (A)
201.23 1 201.23 4.10 56.73 0.004 9
酵母浸粉质量浓度
Mass concentration of YEP (B)
44.54 1 44.54 1.93 12.56 0.038 3
磷酸氢二钾质量浓度
Mass concentration of K2HPO4 (C)
6.87 1 6.87 0.76 1.94 0.258 3
转速Rotate speed (D) 1.73 1 1.73 0.38 0.49 0.534 9
接种量Inoculation amount (E) 1.63 1 1.63 0.37 0.46 0.546 7
发酵时间Fermentation time (F) 0.45 1 0.45 -0.19 0.13 0.745 7
初始pH Initial pH (G) 78.85 1 78.85 2.56 22.23 0.018 1
发酵温度
Fermentation temperature (H)
6.08 1 6.08 0.72 1.71 0.281 8
残差Residual 10.64 3 3.55
总离差Cor total 352.02 11

P<0.05为差异显著,P<0.01为差异极显著。下表同。

P<0.05 was significant different, P<0.01 was extremely significant different. The same as below.

通过对试验结果进行分析,得到各因素与CMCase活力(Y)的一次回归方程为:Y=31.96+4.10A+1.93B+0.756 7C+0.38D+0.368 3E-0.193 3F+2.56G+0.711 7H
表4可知,模型显著(P<0.05),模型信噪比精密度值(Ade Precision)=11.444 0大于4,模型可用于试验预测。决定系数(R2)=0.969 8,说明模型现行方程能够解释96.98%的原因,修正决定系数(Adj R2)=0.889 1,代表方程可解释88.91%的变异。由各因素的P值可知,CMC-Na质量浓度(A)、YEP质量浓度(B)和初始pH(G)这3个因素为显著因素,其余因素为非显著因素。3个显著因素进行后续爬坡试验,其他非显著因素根据Design Expert软件预测及实际操作的便利性优化结果为:磷酸氢二钾质量浓度5.7 g/L,转速190 r/min,接种量6.5%,发酵时间24.0 h,发酵温度33.0 ℃。

2.4 最陡爬坡试验结果

由Plackett-Burman试验可知,CMC-Na质量浓度、YEP质量浓度和初始pH对HXS-LV12产酶活力均为正效应,将它们的质量浓度逐渐增加以寻找最大响应区域。最陡爬坡试验设计及结果见表5。由表5可知,试验组3的CMCase活力最高,即CMC-Na质量浓度为30 g/L、YEP质量浓度为16 g/L、初始pH为7.0时,CMCase活力为39.25 U/mL,因此选择试验组3条件作为后续Box-Behnken试验设计的中心点,进一步优化。
表5 最陡爬坡试验结果

Table 5 Results of steepest ascent experiment

编号
No.
羧甲基纤维素钠质量浓度
Mass concentration of
CMC-Na/(g/L)(A)
酵母浸粉质量浓度
Mass concentration of
YEP/(g/L)(B)
初始pH
Initial pH(G)
羧甲基纤维素酶活力
CMCase activity/
(U/mL)(Y)
1 20 10 6.0 24.51
2 25 13 6.5 29.76
3 30 16 7.0 39.25
4 35 19 7.5 35.49
5 40 22 8.0 30.38

2.5 Box-Behnken响应面试验结果

Box-Behnken试验结果见表6,方差分析结果见表7
表6 Box-Behnken试验结果

Table 6 Results of Box-Behnken experiment

编号
No.
羧甲基纤维素钠质量浓度
Mass concentration of
CMC-Na/(g/L)(A)
酵母浸粉质量浓度
Mass concentration of
YEP/(g/L)(B)
初始pH
Initial pH(G)
羧甲基纤维素酶活力
CMCase
activity/(U/mL)(Y)
1 1.000 0.000 1.000 38.59
2 -1.000 -1.000 0.000 35.92
3 0.000 1.000 -1.000 35.02
4 -1.000 0.000 1.000 35.46
5 0.000 1.000 1.000 40.33
6 0.000 -1.000 1.000 33.06
7 1.000 -1.000 0.000 37.66
8 0.000 0.000 0.000 41.69
9 1.000 1.000 0.000 36.89
10 1.000 0.000 -1.000 33.98
11 0.000 0.000 0.000 40.93
12 0.000 0.000 0.000 41.21
13 -1.000 0.000 -1.000 37.14
14 0.000 -1.000 -1.000 37.86
15 1.000 1.000 0.000 39.42
16 0.000 0.000 0.000 41.57
17 0.000 0.000 0.000 40.91
表7 Box-Behnken试验方差分析结果

Table 7 Variance analysis results of Box-Behnken experiment

来源
Sources
平方和
Sum of squares
自由度
df
均方和
Mean of sum
square
F
F-value
P
P-value
模型Model 119.23 9 13.25 20.85 0.000 3
CMC-Na质量浓度Mass concentration of CMC-Na (A) 0.00 1 0.00 0.00 0.994 3
酵母浸粉质量浓度Mass concentration of YEP (B) 6.93 1 6.93 10.91 0.013 1
初始pH Initial pH (G) 1.48 1 1.48 2.33 0.170 9
AB 1.62 1 1.62 2.55 0.154 3
AG 9.89 1 9.89 15.57 0.005 6
BG 25.55 1 25.55 40.22 0.000 4
A2 11.31 1 11.31 17.81 0.003 9
B2 8.15 1 8.15 12.82 0.009 0
G2 34.19 1 34.19 53.81 0.000 2
残差Residual 4.45 7 0.64
失拟Lack of fit 0.73 2 0.37 0.49 0.637 7
纯误差Pure error 3.72 5 0.74
总离差Cor total 123.68 16
通过Design Expert 12.0软件对试验结果进行分析,得到3个因素与CMCase活力(Y)的多元二次回归拟合方程为:Y=41.26-0.002 5A+1.11B+0.43G-0.867 5AB+1.57AG+2.53BG-1.81A2-1.54B2-3.15G2
表7可知,该模型极显著(P<0.01),失拟项不显著(P>0.05),R2=0.964 0,Adj R2=0.917 8,Ade Precision=12.929 4大于4,说明模型预测值与实际值的拟合度较高,适用于HXS-LV122产CMCase活力的预测分析。模型一次项B对响应值CMCase活力影响达到显著水平(P<0.05),交互项AGBG对响应值CMCase活力影响达到极显著水平(P<0.01);平方项A2B2G2对响应值CMCase活力影响也达到极显著水平(P<0.01);3个因素对CMCase活力的影响大小依次为B>G>A,表明3个因素不是简单的线性关系。
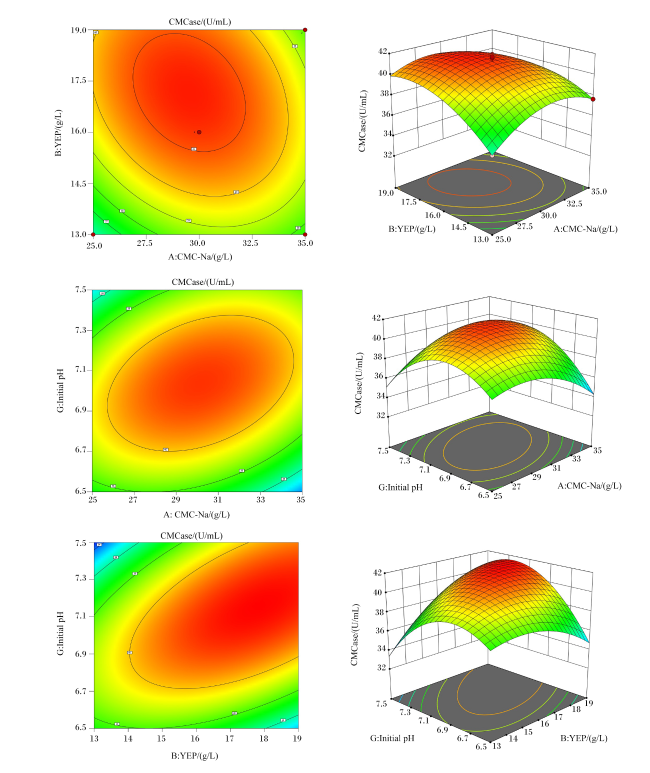
通过响应面可直观地分析各因素及因素相互之间的交互作用对响应值的影响。各因素之间响应面3D图和等高线图能直观反映出其相互作用的强弱,等高线为椭圆形表示两因素之间的交互作用差异显著,圆形则表示两因素之间交互作用差异不显著[37]。由图12可以看出,随着各因素水平的增加,CMCase活力先上升后下降,拟合曲线均为凸形,有最大值。
图12 各因素交互作用对羧甲基纤维素酶活力影响的等高线和响应面图

CMCas:羧甲基纤维素酶活力 CMCas activity;CMC-Na:CMC-Na质量浓度 mass concentration of CMC-Na;YEP:YEP质量浓度 mass concentration of YEP;Initial pH:初始 pH。

Fig.12 Contour plots and response surface showing interactive effects of various factors on CMCase activity

2.6 验证试验

对回归模型进行优化分析,获得HXS-LV12产CMCase的最佳工艺条件为:CMC-Na质量浓度32.957 1 g/L,YEP质量浓度17.617 5 g/L,初始pH 7.0596 1。在此条件下,CMCase活力的预测值为40.78 U/mL。考虑到实际操作的便利性,将最优工艺条件调整为CMC-Na质量浓度32.9 g/L,YEP质量浓度17.6 g/L,初始pH 7.0,在该最优条件下进行3次重复验证试验,CMCase活力为(40.53±0.43) U/mL,与响应面优化预测的结果基本一致,表明优化结果准确可靠。响应面分析方法得到的HXS-LV12产CMCase的工艺条件真实,在一定程度上具有实际应用价值。

3 讨论

3.1 微生物产纤维素酶特性

目前已报道的纤维素酶产生菌大多是真菌,真菌多数耐酸,分泌的纤维素酶为胞外酶,容易提取和纯化,但是真菌在碱性、缺氧或高温条件下,酶活力下降或失活;而细菌能在该条件下分泌高活性的纤维素酶,且细菌具有繁殖快、结构简单、抗逆性强、耐酸碱的优点,但是细菌所产的纤维素酶大多为胞内酶,提取困难,限制了细菌产纤维素酶的研究和应用[38-39],本文研究的细菌所产纤维素酶为胞外酶,具有进一步研究开发的潜力。

3.2 纤维素酶活力检测指标的选择

纤维素酶是多种酶构成的酶系,根据催化功能的不同将纤维素酶分成3类:外切β-葡聚糖酶(exo-β-1,4-glucanases,EC3.2.1.91),也称C1酶;内切β-葡聚糖酶(endo-β-1,4-glucanases,CMCase,EC3.2.1.4),也称Cx酶;β葡糖苷酶(β-1,4-glucanases,EC3.2.1.21)。纤维素酶降解纤维素的作用机理复杂,目前普遍认为是纤维素酶各组分相互协同作用降解纤维素[40]。CMCase可随机水解纤维素分子内部非结晶区β-1,4糖苷键,生成大量含非还原性末端的纤维素小分子,CMCase在纤维素降解过程中起关键作用[29],所以本研究通过测定CMCase活力来表示菌株产纤维素酶能力。

3.3 发酵工艺对产纤维素酶活力的影响

合适的培养基和培养条件既可以促进菌体生长,又能促进发酵产物的生产,同时缩短发酵周期,降低发酵生产成本[41]。本研究中,CMC-Na质量浓度、YEP质量浓度和初始pH是影响菌株HXS-LV12产CMCase活力的显著因素。碳源为微生物提供能源和营养,用于构成细胞和发酵产物,纤维素酶是一种诱导酶,添加诱导物可以提高发酵产酶水平[42-43]。CMC-Na作为碳源既可以改善菌体的生长,又可诱导纤维素酶的代谢合成;氮源用于微生物合成蛋白质、核酸以及含氮的代谢产物等,影响菌株的生长及产酶能力[25,43]。YEP富含蛋白质、多肽、氨基酸、核苷酸、维生素、生长因子及微量元素等营养成分,能更好地促进菌体生长,使其迅速达到足够的生物量,进行酶的代谢合成;各种微生物的生长和代谢都有其最适pH,因为pH能够影响细胞膜的通透性及培养基中某些营养成分的解离,从而影响微生物对物质的吸收和排泄;还能影响微生物胞内酶的活性,从而影响菌体的新陈代谢[44],当菌株处于适宜的pH环境中,菌体生长迅速,同时也会提高产酶量。

4 结论

本研究通过单因素试验、Plackett-Burman试验、最陡爬坡试验和Box-Behnken试验对分离得到的驴源莫海威芽孢杆菌HXS-LV12的产酶工艺条件进行优化。发酵工艺优化结果显示, HXS-LV12在CMC-Na质量浓度32.9 g/L,YEP质量浓度17.6 g/L,磷酸氢二钾质量浓度5.7 g/L,转速190 r/min,接种量6.5%,发酵时间24.0 h,初始pH 7.0,发酵温度33.0 ℃条件下发酵产酶效果最佳。在此培养条件下,HXS-LV12产CMCase活力为(40.53±0.43) U/mL,是优化前的2.05倍。
[1]
何晓涛, 陈杰茹, 王坚, 等. 几种添加剂对矮象草青贮品质的影响[J]. 饲料工业, 2021, 42(8):10-16.

HE X T, CHEN J R, WANG J, et al. Different treatment modalities and their effects on the quality of Pennisetum purpereum silage[J]. Feed Industry, 2021, 42(8):10-16. (in Chinese)

[2]
SHARIQ M, SOHAIL M. Citrus limetta peels:a promising substrate for the production of multienzyme preparation from a yeast consortium[J]. Bioresources and Bioprocessing, 2019, 6(1):43.

DOI

[3]
ANOOP KUMAR V, SURESH CHANDRA KURUP R, SNISHAMOL C, et al. Role of cellulases in food,feed,and beverage industries[M]//PARAMESWARAN B,VARJANI S,RAVEENDRAN S.Green bio-process.Singapore:Springer, 2019:323-343.

[4]
MOJSOV K. Biopolishing enzymes and their applications in textiles:a review[J]. Tekstilna Industrija, 2014, 61(2):20-24.

[5]
刘晶, 李晨曦, 刘洪斌. 纤维素酶在造纸过程中的应用[J]. 中国造纸, 2018, 37(2):48-53.

LIU J, LI C X, LIU H B. The application of cellulase in papermaking process[J]. China Pulp & Paper, 2018, 37(2):48-53. (in Chinese)

[6]
LI J G, ZHANG S K, LI H L, et al. A new approach to improve dissolving pulp properties:spraying cellulase on rewetted pulp at a high fiber consistency[J]. Cellulose, 2018, 25(12):6989-7002.

DOI

[7]
MARTIN M A. First generation biofuels compete[J]. New Biotechnology, 2010, 27(5):596-608.

DOI PMID

[8]
JACOBSEN H J, SAMUELSEN T A, GIRONS A, et al. Different enzyme incorporation strategies in Atlantic salmon diet containing soybean meal:effects on feed quality,fish performance,nutrient digestibility and distal intestinal morphology[J]. Aquaculture, 2018, 491:302-309.

DOI

[9]
陈思彤. 纤维素酶在水产养殖中的应用研究[J]. 饲料研究, 2022, 45(6):135-138.

CHEN S T. Research on the application of cellulase in aquaculture[J]. Feed Research, 2022, 45(6):135-138. (in Chinese)

[10]
邓圣庭, 陈清华, 马杰, 等. 饲粮纤维的消化特性及纤维素酶在单胃动物中的应用[J]. 饲料研究, 2019, 42(6):100-104.

DENG S T, CHEN Q H, MA J, et al. Digestibility of dietary fiber and application of cellulase in monogastric animals[J]. Feed Research, 2019, 42(6):100-104. (in Chinese)

[11]
HINO T, MIWA T, ASANUMA N, et al. Effect of addition of cellulase preparations on fiber digestion in beef cattle[J]. Nihon Chikusan Gakkaiho, 2000, 71(7):46-50.

DOI

[12]
王文丹, 唐新仁, 吴天佑, 等. 纤维素酶在奶牛生产上的应用[J]. 畜牧与饲料科学, 2017, 38(12):34-37.

WANG W D, TANG X R, WU T Y, et al. Application of cellulase in dairy cows production[J]. Animal Husbandry and Feed Science, 2017, 38(12):34-37. (in Chinese)

[13]
SUN Q Z, GAO F Q, YU Z, et al. Fermentation quality and chemical composition of shrub silage treated with lactic acid bacteria inoculants and cellulase additives[J]. Animal Science Journal, 2012, 83(4):305-309.

DOI PMID

[14]
KNOWLTON K F, TAYLOR M S, HILL S R, et al. Manure nutrient excretion by lactating cows fed exogenous phytase and cellulase[J]. Journal of Dairy Science, 2007, 90(9):4356-4360.

PMID

[15]
赵梦迪, 邸凌峰, 唐泽宇, 等. 单宁与饲用纤维素酶对湖羊生长性能、血液生化指标、屠宰性能及器官发育的影响[J]. 中国畜牧兽医, 2019, 46(6):1668-1676.

DOI

ZHAO M D, DI L F, TANG Z Y, et al. Effects of dietary tannin and forage cellulose on growth performance,blood biochemical parameters,slaughter performance and organ development of Hu sheep[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(6):1668-1676. (in Chinese)

[16]
朱波, 赵青海, 钟蕾, 等. 金针菇菌渣饲料中添加纤维素酶及甘露寡糖对草鱼生长、肠道结构及血清生理生化指标的影响[J]. 饲料工业, 2021, 42(4):41-47.

ZHU B, ZHAO Q H, ZHONG L, et al. Effects of adding cellulase and mannan oligosaccharides in Flammulina velutipes medium residue diet on growth,intestinal structure and serum biochemical indexes of grass carp[J]. Feed Industry, 2021, 42(4):41-47. (in Chinese)

[17]
王红梅, 屠焰, 司丙文, 等. 不同配伍酶制剂处理玉米秸秆对肉用绵羊生长性能和营养物质消化率的影响[J]. 中国农业科学, 2016, 49(24):4806-4813.

DOI

WANG H M, TU Y, SI B W, et al. Effects of corn straw treated with different compatibility enzymes on growth performance and nutrient digestibility of mutton sheep[J]. Scientia Agricultura Sinica, 2016, 49(24):4806-4813. (in Chinese)

[18]
张冬雪, 文亚雄, 罗志威, 等. 纤维素降解菌的分离筛选及其对水稻秸秆的降解效果分析[J]. 江西农业学报, 2020, 32(1):72-76.

ZHANG D X, WEN Y X, LUO Z W, et al. Isolation and screening of cellulose-degrading microbes and their degradation effects on paddy straw[J]. Acta Agriculturae Jiangxi, 2020, 32(1):72-76. (in Chinese)

[19]
SUKUMARAN R K, CHRISTOPHER M, KOOLOTH-VALAPPIL P, et al. Addressing challenges in production of cellulases for biomass hydrolysis:targeted interventions into the genetics of cellulase producing fungi[J]. Bioresource Technology, 2021, 329:124746.

DOI

[20]
DE FRANÇA PASSOS D, PEREIRA N,Jr, DE CASTRO A M. A comparative review of recent advances in cellulases production by Aspergillus,Penicillium and Trichoderma strains and their use for lignocellulose deconstruction[J]. Current Opinion in Green and Sustainable Chemistry, 2018, 14:60-66.

DOI

[21]
江高飞, 暴彦灼, 杨天杰, 等. 高温秸秆降解菌的筛选及其纤维素酶活性研究[J]. 农业环境科学学报, 2020, 39(10):2465-2472.

JIANG G F, BAO Y Z, YANG T J, et al. Screening of thermophilic cellulolytic bacteria and investigation of cellulase thermostability[J]. Journal of Agro environment Science, 2020, 39(10):2465-2472. (in Chinese)

[22]
ZHANG H Y, DONG S R, LOU T T, et al. Complete genome sequence unveiled cellulose degradation enzymes and secondary metabolic potentials in Streptomyces sp. CC0208[J]. Journal of Basic Microbiology, 2019, 59(3):267-276.

DOI

[23]
王屈祎, 钟倩, 闫如玉, 等. 淀粉酶产生菌的筛选、鉴定及其发酵条件优化[J]. 微生物学通报, 2022, 49(1):173-188.

WANG Q Y, ZHONG Q, YAN R Y, et al. Screening and identification of amylase-producing strain and optimization of the fermentation conditions[J]. Microbiology, 2022, 49(1):173-188. (in Chinese)

[24]
霍光明, 张李阳, 朱枳穆, 等. 响应面法优化链霉菌S10A09发酵产纤维素酶条件[J]. 生物加工过程, 2019, 17(2):138-143.

HUO G M, ZHANG L Y, ZHU Z M, et al. Optimization of Streptomyces sp. S10A09 for cellulase production by response surface method[J]. Chinese Journal of Bioprocess Engineering, 2019, 17(2):138-143. (in Chinese)

[25]
李达, 孙慕白, 苗欣宇, 等. Plackett-Burman试验联用响应面法优化枯草芽孢杆菌产α-淀粉酶培养基营养成分[J]. 中国调味品, 2022, 47(1):81-86,97.

LI D, SUN M B, MIAO X Y, et al. Optimization of nutritional components of culture medium for α-amylase produced by Bacillus subtilis using Plackett-Burman[J]. China Condiment, 2022, 47(1):81-86,97. (in Chinese)

[26]
孙雨佳, 黄辉, 刘长根, 等. 植物乳杆菌NCU137培养基成分与培养条件的优化[J]. 中国食品学报, 2022, 22(8):223-233.

SUN Y J, HUANG H, LIU C G, et al. Optimization of medium composition and culture conditions of Lactobacillus plantarum NCU137[J]. Journal of Chinese Institute of Food Science and Technology, 2022, 22(8):223-233. (in Chinese)

[27]
李志华. 基于PB试验和响应面分析法对谷氨酸棒杆菌CN1021发酵培养基优化[J]. 中国酿造, 2014, 33(2):23-27.

LI Z H. Optimization of fermentation medium of strain Corynebacterium glutamicum CN1021 based on Plackett-Burman and response surface method[J]. China Brewing, 2014, 33(2):23-27. (in Chinese)

[28]
魏莱, 程睿文, 王富强, 等. 吡咯伯克霍尔德氏菌B1213产葡聚糖酶条件的优化[J]. 中国食品学报, 2023, 23(4):168-180.

WEI L, CHENG R W, WANG F Q, et al. Optimization of conditions of glucanase production by Burkholderia pyrrocinia B1213[J]. Journal of Chinese Institute of Food Science and Technology, 2023, 23(4):168-180. (in Chinese)

[29]
崔秀秀. 一株耐冷细菌产低温纤维素酶发酵条件优化及其活性酶谱分析[D]. 硕士学位论文. 沈阳: 沈阳农业大学, 2016.

CUI X X. Optimization of fermentation conditions of low temperature cellulase by psychrotrophic bacteria and analysis of active enzyme spectrum[D]. Master’s Thesis. Shenyang: Shenyang Agricultural University, 2016. (in Chinese)

[30]
白长胜, 刘秋瑾, 尹珺伊, 等. 产木质纤维素降解酶真菌的筛选及产酶特性[J]. 微生物学通报, 2023, 50(3):1098-1110.

BAI C S, LIU Q J, YIN J Y, et al. Screening and enzymatic characterization of the fungal strains producing lignocellulose-degrading enzymes[J]. Microbiology China, 2023, 50(3):1098-1110. (in Chinese)

[31]
张荣, 凌晓宁, 邱露, 等. Bacillus sp.JY-23发酵制备胶原蛋白酶工艺优化[J]. 江西农业大学学报, 2022, 44(5):1261-1271.

ZHANG R, LING X N, QIU L, et al. Optimization of the fermentation process for production of collagenase by Bacillus sp. JY-23[J]. Acta Agriculturae Universitatis Jiangxiensis, 2022, 44(5):1261-1271. (in Chinese)

[32]
鲁雷震, 宏丹, 封成玲, 等. 产抗真菌肽的爱媛类芽孢杆菌HD的筛选、鉴定及发酵条件优化[J]. 中国食品学报, 2022, 22(3):212-224.

LU L Z, HONG D, FENG C L, et al. Screening,identification and optimization the fermentation conditions of Paenibacillus ehimensis HD producing antifungal peptides[J]. Journal of Chinese Institute of Food Science and Technology, 2022, 22(3):212-224. (in Chinese)

[33]
邹俊杰, 张宾, 孙继鹏, 等. 一株高产金属硫蛋白枯草芽孢杆菌的诱导发酵条件优化[J]. 食品工业科技, 2017, 38(17):130-134,229.

ZOU J J, ZHANG B, SUN J P, et al. Optimization of induced fermentation conditions for a high-yielding Bacillus subtilis of metallothionein[J]. Science and Technology of Food Industry, 2017, 38(17):130-134,229. (in Chinese)

[34]
魏姣, 万学瑞, 吴润, 等. 产纤维素酶真菌菌株的分离筛选及产酶条件优化[J]. 甘肃农业大学学报, 2016, 51(2):8-15.

WEI J, WAN X R, WU R, et al. Isolation and screening of fungi strains producing cellulase and optimization of conditions for enzyme production[J]. Journal of Gansu Agricultural University, 2016, 51(2):8-15. (in Chinese)

[35]
彭英杰, 黄元昊, 李立恒, 等. 复方中草药饲料添加剂发酵菌种筛选和发酵条件优化[J]. 中国饲料, 2023(15):86-93.

PENG Y J, HUANG Y H, LI L H, et al. Screening of fermentation strains and optimization of fermentation conditions for compound Chinese herbal feed additives[J]. China Feed, 2023(15):86-93. (in Chinese)

[36]
刘音颂, 韦海文, 王继刚, 等. 水驱油藏微生物群落结构及影响因素[J]. 科学技术与工程, 2022, 22(23):9968-9975.

LIU Y S, WEI H W, WANG J G, et al. Microbial community structure and influencing factors in water drive reservoir[J]. Science Technology and Engineering, 2022, 22(23):9968-9975. (in Chinese)

[37]
刘刚, 梁琪, 宋雪梅, 等. Plackett-Burman和Box-Behnken试验优化嗜热链球菌Q4F8产胞外多糖工艺[J]. 食品科学, 2019, 40(20):136-143.

DOI

LIU G, LIANG Q, SONG X M, et al. Optimization of extracellular polysaccharide production by Streptococcus thermophilus QF48 using Plackett-Burman and Box-Behnken design[J]. Food Science, 2019, 40(20):136-143. (in Chinese)

[38]
宫秀杰, 钱春荣, 于洋, 等. 近年纤维素降解菌株筛选研究进展[J]. 纤维素科学与技术, 2021, 29(2):68-77.

GONG X J, QIAN C R, YU Y, et al. Progress on screening of cellulose degrading strains in recent years[J]. Journal of Cellulose Science and Technology, 2021, 29(2):68-77. (in Chinese)

[39]
PATEL A K, SINGHANIA R R, SIM S J, et al. Thermostable cellulases:current status and perspectives[J]. Bioresource Technology, 2019, 279:385-392.

DOI

[40]
康鑫. 高产纤维素酶菌株筛选、诱变选育及其秸秆降解效果研究[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2022.

KANG X. Screening,mutation breeding and straw degradation effect of high-yield cellulase strains[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2022. (in Chinese)

[41]
戴圻霏, 张斯童, 孙旸, 等. 解淀粉芽孢杆菌产纤维素酶及其酶解能力相关研究进展[J]. 安徽农业科学, 2019, 47(10):14-17.

DAI Q F, ZHANG S T, SUN Y, et al. Research progress on cellulase production by Bacillus amyloliquefaciens and its enzymatic efficacy[J]. Journal of Anhui Agricultural Sciences, 2019, 47(10):14-17. (in Chinese)

[42]
张远科. 纤维素酶产生菌的筛选、产酶特性及酶基因克隆表达[D]. 硕士学位论文. 株洲: 湖南工业大学, 2022.

ZHANG Y K. Screening,enzyme production characteristics,and gene cloning and expression of cellulase-producing strain[D]. Master’s Thesis. Zhuzhou: Hunan University of Technology, 2022. (in Chinese)

[43]
郭晓杰. 纤维素降解菌的筛选鉴定及降解条件优化[D]. 硕士学位论文. 烟台: 烟台大学, 2020.

GUO X J. Screening and identification of cellulose degrading strains and optimization of degradation conditions[D]. Master’s Thesis. Yantai: Yantai University, 2020. (in Chinese)

[44]
秦立芹, 殷欢, 成柳洁, 等. 一株高产己酸乙酯酵母菌株的筛选、鉴定及发酵条件优化[J]. 食品与发酵工业, 2022, 48(1):55-61.

QIN L Q, YIN H, CHENG L J, et al. A yeast isolate with high yield of ethyl caproate:screening,identification and fermentation optimization[J]. Food and Fermentation Industries, 2022, 48(1):55-61. (in Chinese)

Outlines

/