RESEARCH PAPER

Cardamonin Alleviates Oxidative Stress and Inflammatory Response of IPEC-J2 Cells Induced by Lipopolysaccharide by Activating Aromatic Hydrocarbon Receptor/Nuclear Factor Erythroid 2-Related Factor 2/Nod-Like Receptor Pyrin Domain-Associated Protein 3 Pathway

  • FANG Yi ,
  • ZHANG Yalei ,
  • FU Qingyao ,
  • DENG Tanjie ,
  • WU Xiaomei ,
  • XUN Wenjuan , *
Expand
  • College of Animal Science and Technology, Hainan University, Haikou 570228, China
* associate professor, E-mail:

Received date: 2023-08-18

  Online published: 2024-02-01

Abstract

This study was conducted to investigate the anti-oxidative stress and anti-inflammatory effects of cardamonin (CDN) in IPEC-J2 cells through the aromatic hydrocarbon receptor/nuclear factor erythroid 2-related factor 2/Nod-like receptor pyrin domain-associated protein 3 (AhR/Nrf2/NLRP3) signaling pathway. IPEC-J2 cells were treated with 0, 1, 3, 10, 30, 60 or 100 μmol/mL CDN for 2 h, and cell viability was detected by CCK-8 assay to determine the optimal concentration. IPEC-J2 cells were divided into control group (CON group), CDN group, lipopolysaccharide group (LPS group) and LPS+CDN group (L+C group) with 3 replicates per group. The cells in the CON group were not treated, the LPS group was treated with 1 μg/mL LPS, and the L+C group was treated with 1 μg/mL LPS and the optimal concentration CDN, and then the cells and supernatant were collected. Cytokines contents were determined using ELISA kit, mRNA relative expression of related genes was detected using real-time fluorescent quantitative PCR, and the antioxidant capacity was detected by kit. The results showed as follows: when the concentration of CDN was 60 μmol/mL, there was no significant difference in cell viability of IPEC-J2 compared with the CON group (P>0.05), indicating that the concentration of CDN selected in this experiment was safe for IPEC-J2 cells. Compared with CON group, the contents of interleukin-6 (IL-6) and interleukin-1β (IL-1β) in IPEC-J2 cells were significantly increased (P<0.05), while the content of interleukin-10 (IL-10) was significantly decreased (P<0.05); malondialdehyde (MDA) content was significantly increased (P<0.05), while glutathione (GSH) content, glutathione peroxidase (GSH-Px) activity and total antioxidant capacity (T-AOC) were significantly decreased (P<0.05); the relative expression levels of Nrf2, quinone oxidoreductase 1 (NQO1) and cytochrome P450 1A1 (CYP1A1) mRNA were significantly decreased (P<0.05), and the relative expression levels of Kelch-like ECH-associated protein 1 (Keap1), NLRP3, apoptosis-associated speck-like protein (ASC) and Caspase-1 mRNA were significantly increased (P<0.05). Compared with LPS group, the content of IL-10 in IPEC-J2 cells in L+C group was significantly increased (P<0.05), and the content of IL-1β was significantly decreased (P<0.05). MDA content was significantly decreased (P<0.05), and the GSH content, SOD, CAT, GSH-Px activities and T-AOC were significantly increased (P<0.05). The relative expressions levels of Nrf2, NQO1, erythropoietin oxygenase-1 (HO-1) and CYP1A1 mRNA were significantly increased (P<0.05), and the relative expressions levels of Keap1, NLRP3, ASC and Caspase-1 mRNA were significantly decreased (P<0.05). In conclusion, CDN can exert anti-inflammatory and antioxidant effects by activating AhR/Nrf2/NLRP3 signaling pathway, increasing antioxidant oxidase activity and initiating downstream target gene expression in porcine small intestinal epithelial cells.[

Cite this article

FANG Yi , ZHANG Yalei , FU Qingyao , DENG Tanjie , WU Xiaomei , XUN Wenjuan . Cardamonin Alleviates Oxidative Stress and Inflammatory Response of IPEC-J2 Cells Induced by Lipopolysaccharide by Activating Aromatic Hydrocarbon Receptor/Nuclear Factor Erythroid 2-Related Factor 2/Nod-Like Receptor Pyrin Domain-Associated Protein 3 Pathway[J]. Chinese Journal of Animal Nutrition, 2024 , 36(2) : 1193 -1203 . DOI: 10.12418/CJAN2024.108

腹泻是仔猪断奶死亡的最常见原因之一,对养猪业有重大影响。仔猪腹泻的发展通常伴随着肠道炎症和氧化应激,这反过来又导致肠上皮损伤。肠上皮细胞是哺乳动物营养物质消化吸收的重要组成部分,也是阻止病原微生物和毒素进入循环系统的重要屏障[1]。猪小肠上皮细胞(IPEC-J2)是一种从新生仔猪分离出的空肠上皮细胞系,常用于研究免疫调节剂对肠道细胞免疫功能、细胞凋亡和屏障功能的影响[2]。革兰氏阴性菌及其细胞膜释放的脂多糖(lipopolaccharides,LPS)可引起上皮细胞氧化应激、炎症和形态损伤,严重损害肠道屏障的完整性[3]。因此,维持肠上皮屏障完整性的治疗可能有利于肠道和宿主健康,减少炎症反应和氧化应激损伤。
芳香烃受体(aryl hydrocarbon receptor,AhR)在屏障组织(肠、肺脏、皮肤)中高度表达[4]。AhR是一种重要的免疫调节剂,在感染和炎症过程中对肠道稳态的调节起着关键作用,它在没有配体的情况下与热休克蛋白90(HSP90)等形成复合物存在于细胞质中,与外源性配体如豆蔻明(2',4'-二羟基-6'-甲氧基查尔酮,CDN)结合,活化的AhR进入细胞核,并且与芳香烃受体核转运蛋白(ARNT)结合为异二聚体转录因子,异源二聚体与DNA片段上的醌氧化还原酶1(NQO1)增强子异源响应元件(XRE)特异结合,从而诱导下游目的基因细胞色素P450 1A1(CYP1A1)大量表达[5]。而XRE同时也是炎性小体NOD样受体热蛋白结构域相关蛋白3(NLRP3)启动子,与AhR结合后抑制NLRP3转录[6]。因此,AhR是一种重要的免疫调节剂,在感染和炎症过程中对肠道稳态的调节起着关键作用。
除了这种典型的信号通路外,AhR还经常与核因子红系2相关因子2(Nrf2)相互作用[7]。研究表明,AhR激活可调控Nrf2基因转录来调控Ⅱ相代谢酶如NQO1、血红素氧合酶-1(HO-1)等基因表达,从而提高抗氧化防御,缓解氧化损伤[8]
黄酮类化合物是植物来源的天然物质,对肠道屏障具有有益作用,人们长期以来一直在探索其作为断奶仔猪替代抗生素的饲料添加剂的可行性[9]。CDN是一种被广泛研究的黄酮类化合物,主要存在于草豆蔻的种子中,因显示出相当大的抗炎、抗癌、抗氧化和血管松弛活性的功能,被广泛用于治疗消化系统相关疾病[10]。研究表明,CDN通过激活AhR和Nrf2信号通路发挥抗炎活性并抑制NLRP3炎性小体激活来发挥对小鼠抗结肠炎作用[11]。此外,研究发现,激活AhR可能是恢复紧密连接屏障功能的潜在途径,并且AhR活化剂可能具有治疗肠道疾病的潜力[12]
然而,目前对于CDN通过调节AhR/Nrf2/NLRP3信号通路缓解LPS诱导的IPEC-J2细胞损伤的保护作用知之甚少。因此,本研究探讨CDN对LPS诱导的IPEC-J2细胞氧化应激和炎症反应及AhR/Nrf2/NLRP3信号通路的影响,旨在为CDN在动物生产中的营养调控研究提供理论依据。

1 材料与方法

1.1 IPEC-J2细胞培养

IPEC-J2细胞系由海南大学动物营养实验室提供。IPEC-J2细胞在补充有10%胎牛血清(Gibco)和青霉素-链霉素(Gibco)的DMEM/F12培养基(Gibco)中培养和维持。将复苏的IPEC-J2细胞在37 ℃含5% CO2培养箱中培养24 h后进行首次换液,之后每48 h更换1次培养基。当它们达到80%汇合时,用胰酶(Gibco)分离细胞并在培养基中传代培养。

1.2 LPS建立IPEC-J2细胞损伤模型

使用CCK-8细胞检测试剂盒(南京建城生物工程研究所)确定IPEC-J2细胞损伤模型。用胰酶处理对数期生长的IPEC-J2细胞以制备单细胞悬液,然后接种在96孔细胞培养板中。将细胞培养24 h后丢弃培养基,并用无菌磷酸盐缓冲液(PBS)(博士德)洗涤孔,然后填充含有0、0.1、1.0、2.0、10.0 μg/mL LPS(Sigma)的空白培养基分别培养1、3、6、9 h。然后,向每个孔中加入10 μL CCK-8溶液,孵育2 h后测定吸光度(OD)。CCK-8测定以每剂量6个重复孔进行,并重复3次以确认结果。

1.3 CDN建立IPEC-J2细胞修复模型

使用CCK-8细胞检测试剂盒(南京建城生物工程研究所)测定CDN的最佳浓度和时间。IPEC-J2细胞用含有0、1、3、10、30、60、100 μmol/L CDN(南京景竹生物科技有限公司)的培养基孵育2 h,后续操作同1.2。
为了估计CDN对IPEC-J2细胞的修复作用,将IPEC-J2细胞分为对照组(CON组)、CDN组、脂多糖组(LPS组)、LPS+CDN组(L+C组)。在CDN或LPS处理之前,每组同时用PBS洗涤2次。

1.4 细胞内活性氧(ROS)含量测定

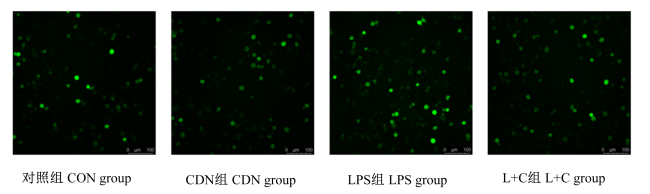
使用ROS检测试剂盒(南京建城生物工程研究所)检测处理过的IPEC-J2细胞内ROS含量。2',7'-二氯氢荧光素二乙酸酯(DCFH-DA)是检测细胞内ROS含量最灵敏和最常用的探针。将IPEC-J2细胞均匀铺于6孔板(每孔1×10⁶个细胞),并接受CDN和LPS的处理。接下来,用PBS洗涤细胞2次后用胰酶消化、离心,留下细胞沉淀用于测定。PBS重悬后加入10 μL 20 μmol/L DCFH-DA处理20 min。DCFH-DA在细胞中存在ROS的情况下被氧化成强绿色荧光物质二氯荧光素(DCF),其最佳激发波长为488 nm,而发射波长为525 nm。其荧光强度与细胞中的ROS含量成正比。使用激光共聚焦监测荧光信号。

1.5 4',6-二脒基-2苯基吲哚(DAPI)染色观察凋亡小体变化

IPEC-J2细胞在6孔板中经CDN和LPS处理后,用DAPI染色液(博士德)染色细胞核10 min。最后,用PBS洗涤细胞爬片3次,使用激光共聚焦监测荧光信号。

1.6 抗氧化指标和细胞因子含量测定

CDN和LPS处理细胞后,用PBS轻轻洗涤2次,并使用含有1%苯甲基磺酰氟(PMSF)(博士德)的放射免疫沉淀法缓冲液(RIPA裂解液)(博士德)在冰上裂解30 min。将细胞在4 ℃下以14 000×g离心10 min,取上清测定丙二醛(MDA)、谷胱甘肽(GSH)含量和谷胱甘肽过氧化物酶(GSH-Px)、总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)活性及总抗氧化能力(T-AOC),试验操作均按试剂盒(南京南京建成生物工程研究所)说明书进行。收取细胞测定肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)和白细胞介素-10(IL-10)、白细胞介素-1β(IL-1β)含量。根据制造商的指南,使用酶联免疫吸附试验(ELISA)试剂盒(上海酶联生物科技有限公司)测定。使用酶标仪测量每个孔的OD值。

1.7 目的基因mRNA相对表达量的测定

采用实时荧光定量PCR(RT-qPCR)测定AhRCYP1A1、Nrf2、Kelch样环氧氯丙烷相关蛋白1(Keap1)、NQO1、HO-1、NLRP3、凋亡相关斑点样蛋白(ASC)和半胱天冬酶-1(Caspase-1)的mRNA相对表达量。收集细胞后使用RNAiso Plus按照说明书步骤提取总RNA,随后保存于-80 ℃冰箱。按照反转录试剂盒HiScript Ⅲ说明书要求进行反转录后,所得cDNA于-20 ℃保存。使用试剂盒进行RT-qPCR,内参为甘油醛-3-磷酸脱氢酶(GAPDH)。基因的引物序列见表1。反应程序:95 ℃ 30 s,95 ℃ 10 s,56 ℃ 30 s,72 ℃ 30 s,(40个循环);熔解曲线95 ℃ 15 s,60 ℃ 60 s,95 ℃ 15 s。目的基因mRNA相对表达量采用2-△△Ct法计算。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物大小
Product size/bp
甘油醛-3-磷酸脱氢酶
GAPDH
F:GAAGGTCGGAGTGAACGGAT
R:CATGGGTAGAATCATACTGGAACA
149
核因子E2相关因子2
Nrf2
F:GACAAACCGCCTCAACTCAG
R:GTCTCCACGTCGTAGCGTTC
183
Kelch样ECH关联蛋白1
Keap1
F:CGTGGAGACAGAAACGTGGA
R:CAATCTGCTTCCGACAGGGT
239
醌氧化还原酶1
NQO1
F:CATGGCGGTCAGAAAAGCAC
R:ATGGCATACAGGTCCGACAC
135
血红素氧合酶-1
HO-1
F:GTTTGAGGAGGTGCAGGAGC
R:GAGTGTCAGGACCCATCGGA
184
芳香烃受体
AhR
F:GCAGGTGGTTCTTCCAGTA
R:GCAGTAACATCTTGAGGGAGA
149
细胞色素P450 1A1
CYP1A1
F:CCTTCACCATCCCTCACAGT
R:ATCACCTTTTCACCCAGTGC
196
NOD样受体热蛋白结构域相关蛋白3
NLRP3
F:GGAGGGAGGAGGAAGAGGAGATA
R:AGGACTGAGAAGATGCCACTAC
147
凋亡相关斑点样蛋白
ASC
F:ACAACAAACCAGCACTGCAC
R:CTGCCTGGTACTGCTCTTCC
126
半胱天冬酶-1
Caspase-1
F:GAAGGAGAAGAGGAGGCTGTT
R:AGATTGTGAACCTGTGGAGAGT
268

1.8 统计分析

所有数值均表示为平均值±标准误。使用SPSS 21.0进行统计分析,采用one-way ANOVA进行单因素方差分析,差异显著用Duncan氏法进行组间多重比较,P<0.05为显著差异。

2 结果与分析

2.1 LPS诱导的IPEC-J2细胞损伤模型建立

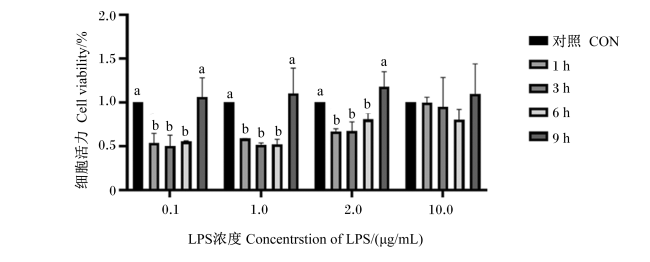
图1可知,与对照(CON)相比,LPS浓度在1.0~2.0 μg/mL,作用1~6 h均能显著抑制细胞增殖(P<0.05),LPS浓度在1.0 μg/mL、作用时间6 h时细胞活力约60%,因此选择该浓度、作用时间用于建立IPEC-J2细胞损伤模型。
图1 不同浓度LPS处理IPEC-J2细胞后的细胞活力

数据柱标注不同字母表示差异显著(P<0.05)。下图同。

Fig.1 Cell viability of IPEC-J2 cells treated with LPS at different concentrations

Data column marked with different letters indicated significant difference (P<0.05). The same as below.

2.2 不同浓度CDN对LPS处理IPEC-J2细胞的保护作用

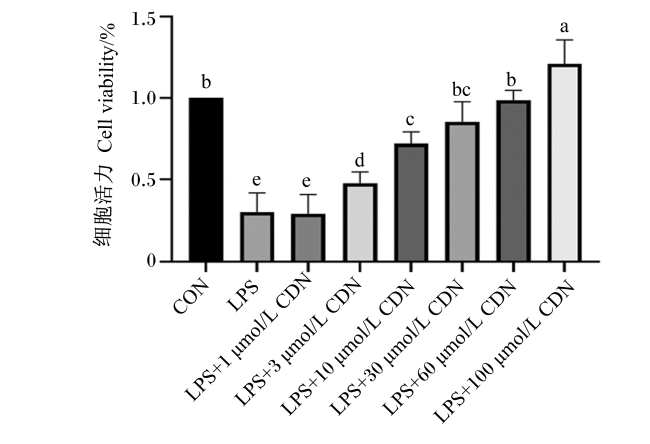
图2可知,与CON相比,随着CDN的浓度增加(1~100 μmol/L),IPEC-J2细胞活力显著回升(P<0.05),当CDN浓度为60 μmol/L时,IPEC-J2细胞活力与CON无显著差异(P>0.05),表明本试验选取的CDN浓度对IPEC-J2细胞是安全的,并且可以刺激IPEC-J2细胞的增殖。
图2 CDN对LPS处理的IPEC-J2细胞的细胞活力的影响

CON:对照 control; LPS:脂多糖 lipopolysaccharide。

Fig.2 Effects of CDN on cell viability of IPEC-J2 cells treated with LPS

2.3 通过DAPI染色观察细胞内凋亡小体的变化

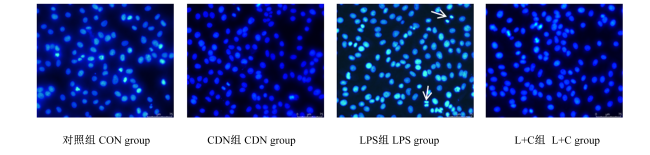
图3可知,凋亡细胞其中一个形态学特征是染色质浓聚,且细胞核结构在凋亡后期崩解,因此观察核形态是较为直接的指标。DAPI染色结果显示,1 μg/mL LPS处理后,浓缩和破碎的细胞核较对照组显著增多;细胞诱导的细胞核皱缩和凋亡小体。60 μmol/L CDN单独处理细胞后,可以明显抑制DAPI染色细胞的凋亡。
图3 各组IPEC-J2细胞DAPI染色结果

白色箭头所示:浓缩和破碎的细胞核。

Fig.3 DAPI staining results of IPEC-J2 cells in each group (200×)

As shown by the white arrow: the condensed and fragmented cell nucleus.

2.4 CDN对IPEC-J2细胞MDA含量的影响

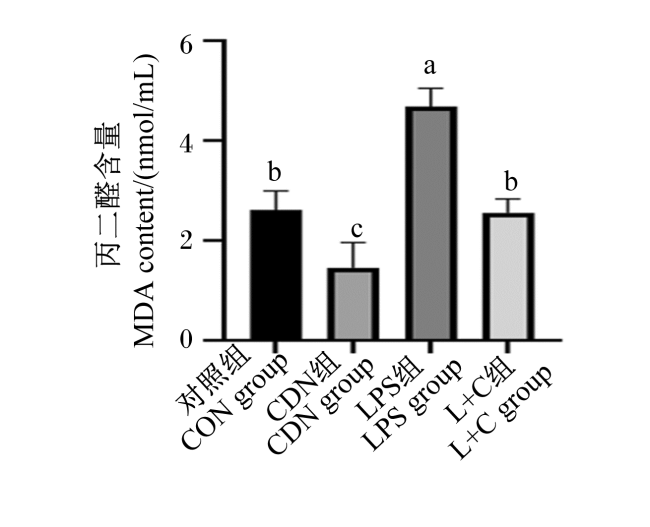
图4可知,1 μg/mL LPS处理后,细胞内MDA含量较CON组显著提高(P<0.05);60 μmol/L CDN单独处理IPEC-J2细胞时,MDA含量显著低于CON组(P<0.05);而CDN预处理可显著降低LPS诱导的细胞MDA含量升高(P<0.05)。
图4 CDN对IPEC-J2细胞中MDA含量的影响

Fig.4 Effects of CDN on MDA content in IPEC-J2 cells

2.5 CDN对IPEC-J2细胞ROS生成的影响

LPS处理细胞6 h后荧光显微镜观察情况如图5所示,与CON组相比,LPS组DCFH-DA探针检测到IPEC-J2细胞的ROS生成量增多,CDN单独处理或CDN与LPS处理后,显著抑制IPEC-J2细胞诱导ROS生成,降低荧光强度,表明CDN单独处理或CDN与LPS处理后对应激细胞均具有降低ROS生成的能力。
图5 各组IPEC-J2细胞DCFH-DA荧光探针结果

Fig.5 DCFH-DA fluorescent probe results of IPEC-J2 cells in each group (250×)

2.6 CDN对IPEC-J2细胞的细胞因子含量的影响

表2可知,与CON组相比,LPS组IL-10含量显著降低(P<0.05),IL-6和IL-1β含量显著升高(P<0.05);与CON组相比,CDN组中IL-6、IL-10和TNF-α含量无显著差异(P>0.05),IL-1β含量显著降低(P<0.05);与LPS组相比,L+C组中IL-10含量显著升高(P<0.05),IL-1β含量显著降低(P<0.05),IL-6及TNF-α含量有降低的趋势(0.05<P<0.10)。
表2 CDN对IPEC-J2细胞中细胞因子含量的影响

Table 2 Effects of CDN on cytokine contents in IPEC-J2 cellsng/L

组别
Groups
肿瘤坏死因子-α
TNF-α
白细胞介素-6
IL-6
白细胞介素-10
IL-10
白细胞介素-1β
IL-1β
对照组 CON group 39.34±2.28 139.13±9.30b 29.51±1.24a 110.86±2.56b
CDN组 CDN group 38.14±2.48 136.76±7.05b 28.82±2.30a 98.39±5.92c
LPS组 LPS group 40.06±2.38 166.59±9.49a 25.09±1.02b 121.00±2.26a
L+C组 L+C group 38.01±0.96 156.90±4.74a 28.15±1.22a 104.72±4.27bc

同列数据肩标不同小写字母表示差异显著(P<0.05)。下表同。

Different lowercase letters of shoulder labels in the same column indicated significant difference (P<0.05). The same as below.

2.7 CDN对IPEC-J2细胞抗氧化指标的影响

表3可知,与CON组相比,LPS组GSH-Px活性、GSH含量和T-AOC显著降低(P<0.05),CAT及SOD活性有降低的趋势(0.05<P<0.10);与CON组相比,CDN组GSH含量、SOD和CAT活性、T-AOC均无显著差异(P>0.05),GSH-Px活性显著升高(P<0.05);与LPS组相比,CDN与LPS处理后GSH含量以及GSH-Px、SOD和CAT活性与T-AOC均显著升高(P<0.05)。
表3 CDN对IPEC-J2细胞中抗氧化指标的影响

Table 3 Effects of CDN on antioxidant indexes in IPEC-J2 cells

组别
Groups
谷胱甘肽过
氧化物酶
GSH-Px/(U/mL)
谷胱甘肽
GSH/(mg/L)
超氧化物歧化酶
SOD/(U/mL)
总抗氧化能力
T-AOC/
(mmol/μL)
过氧化氢酶
CAT/(U/mL)
对照组 CON group 13.34±1.83b 151.71±6.40a 16.24±2.62bc 0.33±0.05a 20.66±7.35ab
CDN组 CDN group 18.56±1.57a 147.76±10.42a 18.18±2.95b 0.36±0.02a 28.24±3.23a
LPS组 LPS group 7.43±2.48c 111.66±10.88b 12.68±1.75c 0.24±0.08b 12.80±4.62b
L+C组 L+C group 14.72±3.21ab 135.91±7.95a 27.23±2.16a 0.39±0.08a 28.04±2.33a

2.8 CDN对LPS诱导的IPEC-J2细胞中AhR/Nrf2/NLRP3信号通路的影响
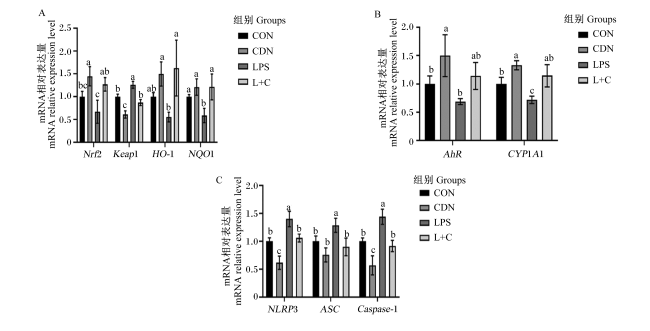
图6可知,与CON组相比,LPS组Nrf2、NQO1和CYP1A1 mRNA相对表达量显著降低(P<0.05),Keap1、NLRP3、ASCCaspase-1 mRNA相对表达量显著升高(P<0.05);与LPS组相比,L+C组中Nrf2、NQO1、HO-1及CYP1A1 mRNA相对表达量显著升高(P<0.05),Keap1、NLRP3、ASCCaspase-1 mRNA相对表达量显著降低(P<0.05)。
图6 CDN对LPS诱导的IPEC-J2细胞中AhR/Nrf2/NLRP3信号通路的影响

Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;Keap1: Kelch样ECH关联蛋白1 recombinant Kelch like ECH associated protein 1;HO-1:血红素氧合酶-1 heme oxygenase-1;NQO1:醌氧化还原酶1 NAD(P)H:quinone oxidoreductase 1;AhR:芳香烃受体 aryl hydrocarbon receptor;CYP1A1:细胞色素P450 1A1 cytochrome P450 family 1 subfamily a member 1;NLRP3:NOD样受体热蛋白结构域相关蛋白3 nucleotide-binding oligomerization domain 3;ASC:凋亡相关斑点样蛋白 apoptosis-associated speck-like protein;Caspase-1:半胱天冬酶-1 cysteinyl aspartate specific proteinase-1。

Fig.6 Effects of CDN on AhR/Nrf2/NLRP3 signaling pathway in LPS-induced IPEC-J2 cells

3 讨论

肠道屏障是抵御细菌和病毒感染的第1道防线。大量研究表明,生长性能与肠道屏障功能密切相关,完整的肠道屏障功能是决定动物健康和生长性能的关键因素[1]。过去常在饲粮中添加抗生素以预防腹泻和改善仔猪的生长性能。然而,由于其具有耐药性等负面影响,现已在被包括中国在内的许多国家所禁止[9]。因此,有效地筛选饲料添加剂、保护猪肠道屏障免受早期断奶应激等不利因素造成的各种损害至关重要。
豆蔻素显示出相当的抗炎、抗癌、抗氧化和血管松弛活性,主要分布于海南、广东、广西等热带地区[10]。先前的研究表明,15 μmol/L CDN通过抑制哺乳动物雷帕霉素靶蛋白(mTOR)和核因子-κB(NF-κB)信号传导诱导卵巢癌细胞中的G2/M期停滞和凋亡,发挥其作为卵巢癌天然治疗剂的潜在用途[12]。与此同时,用43 μmol/L CDN处理经HCoV-OC43感染的MRC-10细胞后,也可以通过阻断丝裂原活化蛋白激酶(MAPK)信号通路的激活发挥抗炎活性[13]。此外,CDN对NLRP3炎症小体和炎症性结肠炎的抑制也已进行了研究[14-15]。研究发现,30 μmol/L CDN的处理可通过活化AhR,上调Nrf2及其靶基因NQO1、HO-1等表达,抑制NLRP3炎性小体激活,进而抑制炎性因子IL-1βTNF-αIL-6表达,发挥其对小鼠的抗结肠炎作用,而添加AhR抑制剂消除了CDN对葡聚糖硫酸钠(DSS)和三硝基苯磺酸(TNBS)诱导的抗结肠炎作用[16]。然而,目前对于CDN通过调节AhR/Nrf2/NLRP3信号通路缓解LPS诱导的IPEC-J2细胞损伤的保护作用知之甚少。
小肠上皮结构的稳态受细胞增殖和细胞凋亡的调节。然而,由于暴露于各种有毒物质,肠上皮经常受到氧化应激,导致细胞凋亡增强。因此,氧化应激与肠上皮细胞凋亡广泛相关[2]。培养细胞中的氧化应激可以通过ROS释放和MDA产生等标志物进行评估[17]。本研究表明,LPS处理后ROS和MDA含量升高,表明IPEC-J2遭受氧化应激。本试验通过提高细胞活力和减少细胞凋亡小体的产生证实60 μmol/L CDN的处理可以减少氧化应激诱导的IPEC-J2细胞凋亡。此外,细胞外自由基的清除反应及机体内抗氧化剂之间的相互协作可通过T-AOC的大小反映[18]。研究发现,CDN通过提高SOD、CAT、GSH-Px等关键抗氧化酶的活性,显著上调了小鼠心肌细胞的抗氧化能力,降低了体外和体内的MDA含量[15]。Gao等[19]研究发现,在大鼠肾脏损伤模型中,40 μmol/L CDN的处理降低了大鼠肾小管上皮细胞MDA的含量,提高了GSH含量和SOD活性。本试验结果发现,CDN预处理后逆转了LPS导致的CAT、SOD活性及GSH含量下降,这些结果表明,CDN对LPS诱导的IPEC-J2细胞氧化损伤具有有效的保护作用,与前人的研究结果一致。
革兰氏阴性菌外细胞壁的很大一部分由LPS组成,LPS有助于细菌与宿主细胞结合,并通过与Toll样受体4(TLR4)结合来激活先天免疫系统和免疫应答[7]。与肠上皮细胞接触的革兰氏阴性菌可增加肠细胞的ROS产生,从而导致感染细胞凋亡,进而破坏细胞层完整性并诱导促炎细胞因子的表达和释放,导致炎性损伤[13]。此外,在对BV2小胶质细胞的体外试验表明,CDN是一种潜在的炎症抑制剂,它对促炎细胞因子[TNF-α、IL-6、前列腺素E2(PGE2)、IL-1β]的产生具有免疫调节作用[19-20]。Hou等[21]研究发现,CDN处理可减轻肠道疾病的发生,包括复发性结肠炎和结肠炎相关肿瘤,并减少IL-1β和TNF-α的含量。与前人研究结果相似,本试验结果表明,CDN处理可以逆转LPS导致的IL-6、IL-1β含量增加和IL-10含量降低,减弱炎症反应。
AhR在肠上皮细胞中广泛表达,肠上皮细胞是结合来自饲粮或微生物代谢产物的AhR配体的主要部位[4]。通常,AhR被认为是基本螺旋-环-螺旋/Per-Arnt-Sim超家族的一部分,并在细胞质中以非活性形式与几个共伴侣结合[4]。配体结合后,辅壳蛋白释放AhR,然后将其带入细胞核,在那里它与芳烃受体(ARNT)的核易位子异二聚体[4-5]。AhR的典型基因靶点是细胞色素P450(如CYP1A1、CYP1A2等),参与多环芳烃和其他异种生物的代谢,CYP1A1在肠道免疫系统中起着至关重要的作用,控制相关的稳态过程,以及对致病性损伤的反应[4-5]。前人研究结果证明,AhR拮抗及敲除AhR和芳基烃受体核易位器(ARNT)减弱了5-羟色胺对CYP1A1的诱导,而5-羟色胺可以通过激活AhR在肠上皮细胞中诱导CYP1A1的表达[6]。Xun等[22]研究表明,补充90 mg/kg白藜芦醇通过激活AhR/Nrf2途径并活化AhR激活下游CYP1A1基因的表达来缓解经敌草枯诱导的肠道炎症和氧化应激以有效保护肠道完整性。本研究结果表明,在IPEC-J2细胞中CDN显著上调了AhRCYP1A1 mRNA的相对表达量,说明CDN对AhR活化及下游基因的表达具有积极作用。
根据以前的研究,AhR是抑制NLRP3炎症小体的转录作为NLRP3炎症小体活性的负调节因子[6]。NLRP3炎症小体是一种细胞内传感器,可检测环境刺激物和内源性危险信号,并已被建议作为人类代谢和自身炎症性疾病的重要治疗靶点。它由炎症传感器蛋白NLRP3、含有半胱天冬酶募集结构域的ASC和效应蛋白Caspase-1组成[7]。当发生感染和细胞损伤时,NLRP3炎症小体激活并触发Caspase-1前体向Caspase-1的转化,从而促进IL-1β的激活[8]。此外,大量研究表明,AhR与Nrf2之间存在相互作用机制[23]。当AhR、Nrf2沉默时,则导致细胞氧化损伤及免疫失调,增加致癌易感性[24]。Nrf2通路与细胞保护、氧化还原通路相关,可抵抗氧化应激。有研究发现,尿石素A和其有效合成类似物(UAS03)通过激活AhR-Nrf2通路上调肠道紧密连接蛋白来发挥其屏障功能,吲哚-3-乳酸(ILA)可增加AhR靶基因CYP1A1和Nrf2靶基因谷胱甘肽还原酶2(GPX2)、SOD2和NQO1的mRNA表达,从而保护肠道上皮细胞[25]。Tamoyo等[26]研究发现,6-甲酰基吲哚并[2-B]咔唑(FICZ)增加Nrf2/NQO1通路的表达介导抗氧化作用,从而对小鼠心脏具有保护作用。此外,CDN可以通过激活Nrf2通路抑制炎症蛋白环氧化酶2(COX2)、诱导型一氧化氮合酶(iNOS)和炎症细胞因子PGE2的表达,同时增加抗氧化蛋白HO-1和NQO1的表达[27]。此外,Yan等[28]研究发现,柚皮素可以通过AhR信号通路抑制NLRP3炎症小体的激活,添加AhR信号通路抑制剂CH223191后逆转了对胰腺和肠道损伤和炎症的治疗效果。本试验结果与前人研究结果相似,与LPS组相比,CDN预处理后上调了Nrf2、NQO1、HO-1 mRNA的相对表达量,抑制了NLRP3、ASCCaspase-1 mRNA的相对表达量。这一结果进一步表明,CDN通过AhR/Nrf2信号通路特异性阻断NLRP3炎症小体的激活和预防肠道损伤,但CDN缓解断奶仔猪肠道炎症过程还有待进一步研究。

4 结论

本研究表明,CDN通过激活AhR/Nrf2信号通路抑制NLRP3炎症小体的激活,促进Ⅰ期代谢酶CYP1A1、Ⅱ期代谢酶(HO-1和NQO1)表达和增加抗氧化酶(SOD、CAT和GSH-Px)活性来减轻氧化损伤,并调节炎症细胞因子的分泌和表达。
[1]
YAMADA T, HORIMOTO H, KAMEYAMA T, et al. Constitutive aryl hydrocarbon receptor signaling constrains type Ⅰ interferon-mediated antiviral innate defense[J]. Nature Immunology, 2016, 17(6):687-694.

DOI

[2]
GAO J C, CAO S T, XIAO H, et al. Lactobacillus reuteri 1 enhances intestinal epithelial barrier function and alleviates the inflammatory response induced by Enterotoxigenic Escherichia coli K88 via suppressing the MLCK signaling pathway in IPEC-J2 cells[J]. Frontiers in Immunology, 2022, 13:897395.

DOI

[3]
李可, 杨明, 田梦悦, 等. 干酪乳杆菌抗LPS诱导的奶牛乳腺上皮细胞炎性损伤作用及机制[J]. 中国兽医学报, 2022, 42(9):1805-1809.

LI K, YANG M, TIAN M Y, et al. The effect and mechanism of Lactobacillus casei against LPS-induced inflammatory injury in bovine mammary epithelial cells[J]. Chinese Journal of Veterinary Science, 2022, 42(9):1805-1809. (in Chinese)

[4]
朱俊宇, 范霞, 梁华平. AhR调控炎性细胞因子的研究进展[J]. 免疫学杂志, 2017, 33(1):73-77.

ZHU J Y, FAN X, LIANG H P. Research progress in regulation of aryl hydrocarbon receptor on inflammatory cytokines[J]. Immunological Journal, 2017, 33(1):73-77. (in Chinese)

[5]
VOGEL C, VAN W, ESSER C, et al. The aryl hydrocarbon receptor as a target of environmental stressors-implications for pollution mediated stress and inflammatory responses[J]. Redox Biology, 2020, 34:101530.

DOI

[6]
MANZELLA C, SINGHAL M, ALREFAI W A, et al. Serotonin is an endogenous regulator of intestinal CYP1A1 via AhR[J]. Scientific Reports, 2018, 8(1):6103.

DOI PMID

[7]
KIM E N, LIM J H, KIM M Y, et al. Resveratrol,an Nrf2 activator,ameliorates aging-related progressive renal injury[J]. Aging, 2018, 10(1):83-99.

DOI

[8]
BAIRD L, YAMAMOTO M. The molecular mechanisms regulating the KEAP1-NRF2 pathway[J]. Molecular and Cellular Biology, 2020, 40(13):e00099-20.

[9]
CHOW Y L, LEE K H, VIDYADARAN S, et al. Cardamonin from Alpinia rafflesiana inhibits inflammatory responses in IFN-γ/LPS-stimulated BV2 microglia via NF-κB signalling pathway[J]. International Immunopharmacology, 2012, 12(4):657-665.

DOI

[10]
GONÇALVES L M, VALENTE I M, RODRIGUES J A. An overview on cardamonin[J]. Journal of Medicinal Food, 2014, 17(6):633-640.

DOI PMID

[11]
怀婉婉. 芳香烃受体对NLRP3炎症小体的调控效应和分子机制研究[D].硕士学位论文. 济南: 山东大学, 2015.

HUAI W W. Regulatory effect of aryl hydrocarbon receptor on activation of NLRP3 inflammasome and its molecular mechanism[D].Master’s Thesis. Jinan: Shandong University, 2015. (in Chinese)

[12]
JIANG R B, JIN B, WAN D Y, et al. Cardamonin induces G2/M phase arrest and apoptosis through inhibition of NF-κB and mTOR pathways in ovarian cancer[J]. Aging, 2020, 12(24):25730-25743.

DOI

[13]
JIN Y H, MIN J S, KWON S. Cardamonin as a p38 MAPK signaling pathway activator inhibits human coronavirus OC43 infection in human lung cells[J]. Nutrients, 2023, 15(6):1335.

DOI

[14]
JIANG J Q, CAI M S. Cardamonin inhibited IL-1β induced injury by inhibition of NLRP3 inflammasome via activating Nrf2/NQO-1 signaling pathway in chondrocyte[J]. Journal of Microbiology and Biotechnology, 2021, 31(6):794-802.

DOI

[15]
WANG Z L, XU G, GAO Y, et al. Cardamonin from a medicinal herb protects against LPS-induced septic shock by suppressing NLRP3 inflammasome[J]. Acta Pharmaceutica Sinica B, 2019, 9(4):734-744.

DOI PMID

[16]
NGUI I Q H, PERERA A P, ERI R. Does NLRP3 inflammasome and aryl hydrocarbon receptor play an interlinked role in bowel inflammation and colitis-associated colorectal cancer?[J]. Molecules, 2020, 25(10):2427.

DOI

[17]
王思甜, 郑丽云, 齐雅, 等. 氧化锌对感染猪流行性腹泻病毒的新生阶段仔猪生长性能、肠道屏障功能和抗氧化能力的影响[J]. 动物营养学报, 2022, 34(10):6491-6501.

DOI

WANG S T, ZHENG L Y, QI Y, et al. Effects of zinc oxide on growth performance,intestinal barrier function and antioxidant capacity of neonatal piglets infected with porcine epidemic diarrhea virus[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6491-6501. (in Chinese)

[18]
姚娟, 吴平安, 李芸, 等. Keap1-Nrf2-ARE信号通路及其激活剂的研究进展[J]. 中国药理学通报, 2019, 35(10):1342-1346.

YAO J, WU P A, LI Y, et al. Research progress of small molecule activators in Keap1-Nrf2-ARE signaling pathway[J]. Chinese Pharmacological Bulletin, 2019, 35(10):1342-1346. (in Chinese)

[19]
GAO C, FEI X, WANG M, et al. Cardamomin protects from diabetes-induced kidney damage through modulating PI3K/AKT and JAK/STAT signaling pathways in rats[J]. International Immunopharmacology, 2022, 107:108610.

DOI

[20]
NAWAZ J, RASUL A, SHAH MA, et al. Cardamonin: a new player to fight cancer via multiple cancer signaling pathways[J]. Life Sciences, 2020; 250:117591.

DOI

[21]
HOU S S, YUAN Q, YU N, et al. Cardamonin attenuates chronic inflammation and tumorigenesis in colon[J]. Cell Cycle, 2019, 18(23):3275-3287.

DOI PMID

[22]
XUN W J, FU Q Y, SHI L G, et al. Resveratrol protects intestinal integrity,alleviates intestinal inflammation and oxidative stress by modulating AhR/Nrf2 pathways in weaned piglets challenged with diquat[J]. International Immunopharmacology, 2021, 99:107989.

DOI

[23]
ROUSSEAU M E, SANT K E, BORDEN L R, et al. Regulation of Ahr signaling by Nrf2 during development:effects of Nrf2a deficiency on PCB126 embryotoxicity in zebrafish (Danio rerio)[J]. Aquatic Toxicology, 2015, 167:157-171.

DOI

[24]
FUYUNO Y, UCHI H, YASUMATSU M, et al. Perillaldehyde inhibits AHR signaling and activates NRF2 antioxidant pathway in human keratinocytes[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:9524657.

[25]
EHRLICH A M, PACHECO A R, HENRICK B M, et al. Indole-3-lactic acid associated with Bifidobacterium-dominated microbiota significantly decreases inflammation in intestinal epithelial cells[J]. BMC Microbiology, 2020, 20(1):357.

DOI

[26]
TAMAYO M, MARTÍN-NUNES L, PIEDRAS M J, et al. The aryl hydrocarbon receptor ligand FICZ improves left ventricular remodeling and cardiac function at the onset of pressure overload-induced heart failure in mice[J]. International Journal of Molecular Sciences, 2022, 23(10):5403.

DOI

[27]
PENG Y J, LU J W, LEE C H, et al. Cardamonin attenuates inflammation and oxidative stress in interleukin-1β-stimulated osteoarthritis chondrocyte through the Nrf2 pathway[J]. Antioxidants, 2021, 10(6):862.

DOI

[28]
YAN X, LIN T J, ZHU Q Y, et al. Naringenin protects against acute pancreatitis-associated intestinal injury by inhibiting NLRP3 inflammasome activation via AhR signaling[J]. Frontiers in Pharmacology, 2023, 14:1090261.

DOI

Outlines

/