RESEARCH PAPER

Effects of Adding Complex Cellulase to Corn-Miscellaneous Meal Diet on Performance, Liver Glucose Metabolism, Endogenous Digestive Enzyme Activities and Intestinal Glucose Transporter Gene Expression of Laying Hens

  • CHANG Danping , 1 ,
  • LIU Guanzhong 1 ,
  • YANG Bowen 1 ,
  • ZHAO Guoxian 1 ,
  • ZHANG Dongyuan 2 ,
  • FENG Zhihua , 1, * ,
  • LI Qian , 3, * ,
  • ZHANG Haihua 4 ,
  • WANG Jue 3
Expand
  • 1 College of Animal Science and Technology, Hebei Agricultural University, Baoding 071000, China
  • 2 Zhongke Kangyuan (Tangshan) Biotechnology Co., Ltd., Qian’an 064400, China
  • 3 Hebei Institute of Animal Husbandry and Veterinary Medicine, Baoding 071000, China
  • 4 Hebei Normal University of Science & Technology, Qinhuangdao 066000, China
* FENG Zhihua, associate professor, E-mail: ;
LI Qian, professor, E-mail:

Received date: 2023-09-08

  Online published: 2024-02-01

Abstract

This experiment aimed to investigate the effects of adding different levels of complex cellulase to corn-miscellaneous meal diet on performance, egg quality, liver glucose metabolism related enzyme activities, endogenous digestive enzyme activities, and the expression of glucose transporter genes in intestine of laying hens, and to screen out the appropriate additive amount of complex cellulase. A total of 288 healthy 53-week-old Hy-Line brown laying hens were randomly divided into 4 groups, with 6 replicates per group and 12 hens per replicate. Laying hens in control group were fed a corn-miscellaneous meal diet meal (soybean meal-cottonseed meal-rapeseed meal) diet, and those in experimental groups were fed the corn-miscellaneous meal diet meal supplemented with 200, 400 and 600 mg/kg complex cellulase (mainly composed of cellulase, xylanase, amylase and protease), respectively. The pre feeding period for the experiment was 7 days, and the formal trial period was 84 days. The results showed as follows: 1) compared with the control group, the laying rate in the 400 mg/kg group was significantly increased (P<0.05), while the feed to egg ratio and average daily feed intake were significantly decreased (P<0.05). 2) Adding different levels of complex cellulase to the corn-miscellaneous meal diet had no significant effects on various indicators of egg quality (P>0.05). 3) Compared with the control group, adding 400 mg/kg complex cellulase to the corn-miscellaneous meal diet significantly increased the activity of pyruvate kinase in the liver of laying hens (P<0.05). 4) Compared with the control group, the jejunal amylase and trypsin activities in the 400 mg/kg group were significantly increased (P<0.05). 5) Compared with the control group, adding 400 or 600 mg/kg complex cellulase to the corn-miscellaneous meal diet significantly increased the relative expression levels of sodium-glucose cotransporter-1 (SGLT-1) mRNA in the jejunum of laying hens (P<0.05). In summary, adding complex cellulase to the corn-miscellaneous meal diet of laying hens can enhance the activities of intestinal digestive enzymes and liver glucose metabolism related enzymes by increasing the release of nutrients in the diet. It can also increase the relative expression level of SGLT-1 mRNA in jejunum, thereby improving the performance. The optimal additive amount of complex cellulase in the corn-miscellaneous meal diet of laying hens is 400 mg/kg under this experiment condition.

Cite this article

CHANG Danping , LIU Guanzhong , YANG Bowen , ZHAO Guoxian , ZHANG Dongyuan , FENG Zhihua , LI Qian , ZHANG Haihua , WANG Jue . Effects of Adding Complex Cellulase to Corn-Miscellaneous Meal Diet on Performance, Liver Glucose Metabolism, Endogenous Digestive Enzyme Activities and Intestinal Glucose Transporter Gene Expression of Laying Hens[J]. Chinese Journal of Animal Nutrition, 2024 , 36(2) : 935 -945 . DOI: 10.12418/CJAN2024.085

近年来,畜禽业发展迅速造成的饲料资源短缺问题日益严重。玉米-豆粕型饲粮是我国的主导饲粮结构,这种结构对豆粕年消耗量巨大。我国大豆年产量约1 640万t[1],国内大豆严重供给不足导致我国大豆对外依存度超80%[2],2022年末豆粕价格同比年初增长39.21%[3],造成饲料成本大幅提高。解决上述问题,有2个途径,一是开发新的饲料资源,二是提高现有饲料养分利用率。
目前很多饲料企业常会使用一部分菜籽粕、棉籽粕等杂粕代替豆粕或鱼粉等常规蛋白质饲料,这样不仅能缓解饲料资源短缺的问题,还可以降低饲料成本。我国具有丰富的杂粕资源,各种农副产品如棉籽饼粕、菜籽饼粕、花生饼粕等产量巨大且价格低廉,2021年棉籽粕、菜籽粕、花生粕的年产量分别为580万、700万、400万t[4],但是杂粕的应用在实际生产中并不广泛,其主要原因有杂粕中氨基酸不平衡、粗纤维与可溶性非淀粉多糖含量高等。杂粕中除了花生粕、芝麻粕的粗纤维含量较低外,其余的粗纤维含量都较高,均在12%左右[5],而粗纤维是植物细胞壁的主要成分,其含量高会影响动物对饲粮中养分的利用。杂粕中的非淀粉多糖主要有纤维素、果胶、阿拉伯木聚糖、木聚糖、β-葡聚糖等,这些物质是细胞壁的主要组成成分[6],单胃动物尤其是鸡自身不能分泌消化这些物质的酶,使得细胞壁无法充分打开,导致饲料养分利用率低[7]。因此,破坏细胞壁是提高饲料养分利用率的有效手段。破坏细胞壁的方法有很多,目前研究较为热门且效果显著的就是添加外源性酶制剂。由于细胞壁的结构很复杂,单一的酶对细胞壁的破坏效果并不理想,需要一系列酶协同作用才能破坏。研究表明,在蛋鸡饲粮中添加复合酶制剂可以显著改善其生产性能、蛋品质及养分利用率等相关指标[8-9]。由羧甲基纤维素酶、β-葡萄糖苷酶、木聚糖酶、外切葡聚糖酶等一系列酶复合而成的复合纤维素酶,针对细胞壁结构设计,与其他酶制剂相比所含酶种类和配合比例理论上更加科学。但该复合纤维素酶在蛋鸡杂粕型饲粮中的应用效果及其作用机理尚未见报道。为此,本试验通过在玉米-杂粕型饲粮中添加不同水平的复合纤维素酶,研究其对蛋鸡生产性能、蛋品质、肝脏中糖代谢相关酶活性、内源消化酶活性以及肠道中葡萄糖转运载体基因表达的影响,并探讨其作用机理,明确蛋鸡杂型饲粮中复合纤维素酶的应用效果并筛选出适宜添加量,为复合纤维素酶在蛋鸡杂粕型饲粮中应用提供试验基础和数据支撑。

1 材料与方法

1.1 试验材料

复合纤维素酶是基于里氏木霉与黑霉酶系的高效协同作用通过混菌发酵与高通量筛选技术获得,其组成与酶活性如下:羧甲基纤维素酶活性20 389.6 U/g、木聚糖酶活性4 054.4 U/g、外切葡聚糖酶活性3 284 U/g、β-葡萄糖苷酶活性10 528 U/g、淀粉酶活性56 U/g、蛋白酶活性28 U/g。

1.2 试验设计

采用单因素试验设计,选取288只健康状况良好的53周龄海兰褐蛋鸡,随机分为4组,每组6个重复,每个重复12只鸡。各组平均体重、产蛋率无显著差异(P>0.05),按照常规饲养方式进行笼内饲养。4组蛋鸡分别饲喂添加0(对照组)、200、400、600 mg/kg复合纤维素酶的玉米-杂粕(豆粕-棉籽粕-菜籽粕)型饲粮。饲养试验共计91 d,其中预试期7 d,正试期84 d。玉米-杂粕型饲粮组成及营养水平见表1。饲粮中粗蛋白质、钙、总磷、氨基酸含量分别参照GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018和GB/T 18246—2019测定。
表1 玉米-杂粕型饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the corn-miscellaneous meal diet (air-dry basis)%

原料 Ingredients 含量 Content 营养水平 Nutrient levels3) 含量 Content
玉米 Corn 56.69 代谢能 ME/(MJ/kg) 11.21
豆粕 Soybean meal 18.71 粗蛋白质 CP 16.18
棉籽粕 Cottonseed meal 5.60 钙 Ca 3.49
菜籽粕 Rapeseed meal 3.11 总磷 TP 0.60
小麦麸 Wheat bran 0.50 赖氨酸 Lys 0.79
石粉 Limestone 8.10 蛋氨酸 Met 0.39
油粉 Oil powder1) 2.50 蛋氨酸+胱氨酸 Met+Cys 0.66
预混料 Premix2) 3.00 有效磷 AP 0.40
磷酸氢钙 CaHPO4 1.45 可消化赖氨酸 DLys 0.68
食盐 NaCl 0.20 可消化蛋氨酸 DMet 0.35
DL-蛋氨酸 DL-Met 0.14
合计 Total 100.00

1)油粉所含能量为26.15 MJ/kg。The energy content of oil powder is 26.15 MJ/kg.

2)预混料为每千克饲粮提供The premix provides the following per kg of the diet:VA 10 000 IU,VD3 3 000 IU,VE 10 mg,VK3 1 mg,烟酸 nicotinic acid 30 mg,泛酸 pantothenic acid 6.6 mg,叶酸 folic caid 0.75 mg,生物素 biotin 0.1 mg,Fe (as ferrous sulfate) 60 mg,Cu (as copper sulfate) 8 mg,Mn (as manganese sulfate) 60 mg,Zn (as zinc sulfate) 80 mg,I (as potassium sulfate) 0.35 mg,Se (as sodium sulfate) 0.3 mg。

3)粗蛋白质、钙、总磷及氨基酸为实测值,其余为计算值。CP, Ca, TP and amino acids are measured values, while the rest are calculated values.

1.3 饲养管理

试验采用阶梯式笼养,每笼3只鸡,各个重复均匀分布,试验鸡只全部饲养于同一鸡舍内。每天加料2次(08:00、15:00),终日保持饲料器内有料。乳头式饮水器自由饮水,每天16:00—17:00清粪和打扫卫生1次,每周对鸡舍进行带鸡喷雾消毒1次,定期对鸡舍周围进行喷雾消毒。鸡群的免疫程序按照常规程序进行。

1.4 测定指标及方法

1.4.1 生产性能

以重复为单位记录每周耗料量,每天16:00收蛋,记录各重复产蛋数、总蛋重,整理计算以下指标。
产蛋率=[总蛋数/(试验鸡数×试验天数)]×100;
平均蛋重=每个重复总蛋重/每个重复产蛋总数;
平均日采食量=(每周每个重复喂料量-每周每个重复剩料量)/(重复内鸡只数×每周天数);
料蛋比=试验期内每个重复耗料总量/试验期内每个重复产蛋总重。

1.4.2 蛋品质

试验结束当天,每个重复随机取3枚鸡蛋并标号,进行蛋品质检测。
蛋黄重:电子天平测量,精确到0.01 g。
蛋白高度:全自动蛋品质分析仪(EMT-5200 Robotmation公司,日本)测定。
蛋壳强度:蛋壳强度测定仪(EFG-0503,Robotmation公司,日本)测定。
蛋壳厚度:螺旋测微器分别测量除去内外壳膜的蛋壳钝端、中部、锐端3部位的厚度,取平均值,精确到0.01 mm。
蛋黄颜色:全自动蛋品质分析仪测定。
蛋形指数:用全自动蛋品质分析仪测量鸡蛋纵径和横径,纵径与横径比值即为蛋形指数,精确到0.1 mm。
哈氏单位:全自动蛋品质分析仪测定。

1.4.3 肝脏中丙酮酸激酶及磷酸果糖激酶活性

于试验结束当天,每个重复随机选取1只蛋鸡,颈动脉放血致死后立刻解剖,取其肝脏组织至冻存管,液氮速冻后转移至-80 ℃超低温冰箱中保存待测。肝脏丙酮酸激酶及磷酸果糖激酶活性测定具体步骤均按照试剂盒说明书进行,检测试剂盒(试剂盒编号:A076-1-1、A129-1-1)均购自南京建成生物工程研究所。

1.4.4 十二指肠、空肠中α-淀粉酶及胰蛋白酶活性

于试验结束当天,每个重复随机选取1只蛋鸡,颈动脉放血致死后立即解剖,轻轻挤出十二指肠、空肠食糜至冻存管,液氮速冻后转移至-80 ℃超低温冰箱中保存待测。十二指肠、空肠中α-淀粉酶及胰蛋白酶活性测定具体方法参照试剂盒说明书进行,检测试剂盒(试剂盒编号:016-1-1、A080-2-2)购于南京建成生物工程研究所。

1.4.5 十二指肠、空肠中葡萄糖转运载体mRNA相对表达量

于试验结束当天,每个重复随机选取1只蛋鸡,颈动脉放血致死后立即解剖,分离小肠,沿纵向剖开,用生理盐水冲洗,吸水纸吸干。剪取十二指肠、空肠中段约3 cm作为组织样品,置于液氮中速冻,取出后于-80 ℃冷冻保存。取100 mg组织抽提总RNA,通过研磨、离心、孵育等操作以及添加三氯甲烷、异丙醇、乙醇等溶液最终将提取的RNA稀释至200 ng/μL;配制逆转录反应体系(5×SweScript All-in-One SuperMix for qPCR 4 μL、gDNA Remover 1 μL、RNA 10 μL、RNase free water 20 μL),轻轻混匀并离心,设置逆转录程序,于普通PCR仪上完成逆转录;取0.1 mL PCR反应板,配制反应体系[2×SYBR Green qPCR Master Mix (None ROX) 7.5 μL、2.5 μmol/L基因引物(上游+下游)1.5 μL、反转录产物(cDNA)2.0 μL、Water Nuclease-Free 4.0 μL],每个反转录产物配制3管;点完样用PCR封板膜配合封膜仪完成封膜,于荧光定量PCR仪上完成扩增。以β-肌动蛋白(β-actin)作为参比基因,采用2-ΔΔCt法计算目的基因钠-葡萄糖协同转运蛋白-1(SGLT-1)和葡萄糖转运蛋白-2(GLUT-2)的mRNA相对表达量。PCR引物信息见表2
表2 PCR引物信息

Table 2 PCR primer information

引物名称
Primer names
引物序列
Primer sequence (5'—3')
登录号
Accession number
片段长度
Fragment length/bp
SGLT1-S GCTTATGCCAAATGGTCTACGA
NM_001293240.2

182
SGLT1-A AAACCACCATAAATGCCCTTCC
GLUT2-S GAGGAAACTGTGACCCGATGAA
NM_207178.2

256
GLUT2-A TTCACCACTCCAACGCCAAT
β-actin-S CTGACTGACCGCGTTACTCC
NM_205518.1

84
β-actin-A TTGCACATACCGGAGCCATT

SGLT1-S、SGLT1-A分别为目的基因钠-葡萄糖协同转运蛋白-1的上游、下游引物,GLUT2-S和GLUT2-A分别为目的基因葡萄糖转运蛋白-2的上游、下游引物,β-actin-S、β-actin-A分别为参比基因β-肌动蛋白的上游、下游引物。

SGLT1-S and SGLT1-A are the forward and reverse primers of the target gene sodium-glucose cotransporter-1, respectively; GLUT2-S and GLUT2-A are the forward and reverse primers of the target gene glucose transporter-2, respectively; β-actin-S and β-actin-A are the forward and reverse primers of the reference gene β-actin, respectively.

1.5 数据统计与分析

试验数据用Excel 2019进行整理汇总,采用SPSS 22.0统计软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行组间多重比较。结果用平均值±标准误(mean±SE)表示,P<0.05为差异显著。

2 结果与分析

2.1 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡生产性能的影响

表3可知,与对照组相比,400 mg/kg组产蛋率显著提高了5.71%(P<0.05),料蛋比显著降低了8.90%(P<0.05),其他试验组无显著变化(P>0.05)。与对照组相比,400 mg/kg组与600 mg/kg组平均日采食量分别显著降低了3.26%与3.09%(P<0.05)。各组的平均蛋重无显著差异(P>0.05)。
表3 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡生产性能的影响

Table 3 Effects of adding complex cellulase to corn-miscellaneous meal diet on performance of laying hens

项目
Items
复合纤维素酶添加量 Additive amount of complex cellulase/(mg/kg) P
P-value
0(对照 Control) 200 400 600
产蛋率 Laying rate/% 89.70±0.88b 91.05±1.82ab 94.82±0.27a 92.74±0.98ab 0.026
料蛋比 Feed/egg ratio 2.36±0.03a 2.21±0.03ab 2.15±0.06b 2.23±0.03ab 0.020
平均日采食量
Average daily feed intake/[g/(只·d)]
125.98±0.95a 124.93±1.28ab 121.87±0.58b 122.09±0.30b 0.008
平均蛋重 Average egg weight/g 63.16±0.73 63.47±0.12 64.05±0.26 63.46±0.33 0.530

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡蛋品质的影响

表4可知,与对照组相比,玉米-杂粕型饲粮中添加不同水平复合纤维素酶对蛋鸡的蛋壳厚度、蛋壳强度、蛋白高度以及哈氏单位等各项蛋品质指标均无显著影响(P>0.05)。
表4 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡蛋品质的影响

Table 4 Effects of adding complex cellulase to corn-miscellaneous meal diet on egg quality of laying hens

项目
Items
复合纤维素酶添加量 Additive amount of complex cellulase/(mg/kg) P
P-value
0(对照 Control) 200 400 600
蛋壳强度 Shell strength/kg 2.81±0.06 2.89±0.06 2.92±0.04 3.02±0.07 0.150
蛋形指数 Shell index 1.32±0.01 1.30±0.01 1.33±0.02 1.31±0.02 0.570
蛋壳厚度 Shell thickness/mm 0.32±0.01 0.33±0.01 0.34±0.01 0.33±0.01 0.720
蛋黄颜色 Yolk color 5.30±0.49 5.38±0.91 4.33±0.19 4.74±0.16 0.610
蛋白高度 Albumen height/mm 6.52±0.41 6.83±0.56 7.03±0.43 7.08±0.32 0.790
蛋黄重 Yolk weight/g 17.08±0.45 17.82±0.21 18.72±0.78 17.93±0.66 0.310
哈氏单位 Haugh unit 78.38±3.04 80.33±3.77 82.43±2.64 82.15±2.02 0.750

2.3 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肝脏中糖代谢相关酶活性的影响

表5可知,与对照组相比,400 mg/kg组和600mg/kg组肝脏中丙酮酸激酶活性分别提高70.71%、53.04%,差异显著(P<0.05)。各试验组肝脏中磷酸果糖激酶活性与对照组相比均有所提高,但差异均不显著(P>0.05)。
表5 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肝脏中糖代谢相关酶活性的影响

Table 5 Effects of adding complex cellulase to corn-miscellaneous meal diet on activities of enzymes related to glucose metabolism in liver of laying hensU/g

项目
Items
复合纤维素酶添加量 Additive amount of complex cellulase/(mg/kg) P
P-value
0(对照 Control) 200 400 600
丙酮酸激酶 PK 761.79±76.18c 821.62±101.50bc 1 300.39±131.16a 1 165.81±89.62ab 0.015
磷酸果糖激酶 PFK 226.86±111.80 333.74±271.66 430.99±278.64 372.43±254.34 0.940

2.4 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡内源消化酶活性的影响

表6可知,与对照组相比,玉米-杂粕型饲粮中添加400 mg/kg复合纤维素酶可以显著提高空肠中淀粉酶活性(P<0.05)。各试验组十二指肠中淀粉酶活性与对照组相比差异均不显著(P>0.05)。与对照组相比,各试验组十二指肠和空肠中胰蛋白酶活性均有所提高,其中400 mg/kg组空肠胰蛋白酶活性比对照组提高160.69%,差异显著(P<0.05)。
表6 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡内源消化酶活性的影响

Table 6 Effects of adding complex cellulase to corn-miscellaneous meal diet on endogenous digestive enzyme activities of laying hensU/mg prot

项目
Items
复合纤维素酶添加量 Additive amount of complex cellulase/(mg/kg) P
P-value
0(对照 Control) 200 400 600
淀粉酶Amylase
十二指肠 Duodenum 227.85±20.27 237.57±27.17 278.43±8.44 241.26±8.47 0.280
空肠 Jejunum 239.34±14.65b 254.72±50.04b 611.33±15.69a 299.36±33.10b 0.040
胰蛋白酶 Trypsin
十二指肠 Duodenum 3 578.82±208.96 4 746.51±179.25 6 673.44±158.16 5 062.84±119.78 0.216
空肠 Jejunum 3 393.40±211.48b 4 828.21±325.26b 8 846.29±221.36a 6 587.19±207.30ab 0.038

2.5 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肠道中葡萄糖转运载体基因表达的影响
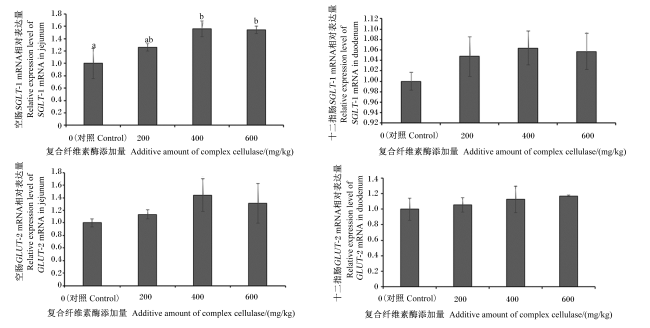
图1可知,与对照组相比,玉米-杂粕型饲粮中添加400或600 mg/kg复合纤维素酶均可以显著提高蛋鸡空肠中SGLT-1 mRNA相对表达量(P<0.05);各试验组蛋鸡十二指肠中SGLT-1 mRNA相对表达量与对照组相比差异不显著(P>0.05);此外,各组蛋鸡空肠中SGLT-1 mRNA相对表达量整体比十二指肠高。与对照组相比,玉米-杂粕型饲粮中添加不同水平复合纤维素酶对蛋鸡空肠、十二指肠中GLUT-2 mRNA相对表达量均无显著影响(P>0.05),但在数值上以400 mg/kg组较高。
图1 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肠道中葡萄糖转运载体基因表达的影响

数据柱形标注不同小写字母表示差异显著(P<0.05),无字母或相同字母表示差异不显著(P>0.05)。

Fig.1 Effects of adding complex cellulase to corn-miscellaneous meal diet on expression of glucose transporter genes in intestine of laying hens

Value columns with different small letters mean significant difference (P<0.05), while with no letter or the same letter superscripts mean no significant difference (P>0.05).

3 讨论

3.1 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡生产性能和蛋品质的影响

目前畜禽大多使用植物性饲料,其共同特点是有大量细胞壁。由于鸡自身不能分泌分解细胞壁的酶,导致细胞壁内养分不能被充分利用,不仅造成饲料资源的浪费,同时还增加了养殖成本。本试验使用的复合纤维素酶由一系列针对分解细胞壁的酶复合而成,可以通过破坏细胞壁结构,使细胞壁内养分充分释放,提高饲料利用率,进而提高蛋鸡生产性能。焦莉等[10]的研究表明,低营养水平饲粮中添加复合酶可以显著降低蛋鸡的料蛋比;Oba等[11]的研究表明,添加复合纤维素酶可以显著提高蛋鸡的产蛋率。本试验结果与上述研究结果一致。Bederska-Łojewska等[12]研究显示,在黑麦饲粮中添加复合酶制剂对蛋鸡的产蛋率无显著影响。本试验结果与其不同,其原因可能是使用的酶制剂不同导致结果不同,本试验选用的复合纤维素酶可以有效破坏细胞壁中的β-1,4糖苷键等化学键[13]。海存秀等[14]研究发现,在杂粕型饲粮中添加复合酶制剂可以显著降低蛋鸡的采食量与料蛋比。本试验结果与上述研究结果相同,由于家禽具有为能而食的特点,添加复合纤维素酶可以提高饲粮中养分的释放量,降低采食量与料蛋比。
饲粮中添加酶制剂会从不同方面影响蛋品质。张胜[15]的研究表明,蛋鸡饲粮中添加饲用酶制剂可以一定程度上提高蛋壳厚度,降低破蛋率。黄靓[16]的研究显示,复合酶制剂对海兰褐蛋鸡蛋黄颜色、蛋壳强度、蛋壳厚度均无显著影响,本试验结果与该研究结果一致。

3.2 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肝脏糖代谢的影响

肝脏是动物机体重要的代谢器官,是糖、脂代谢的主要场所,在动物营养物质代谢过程中发挥着重要作用[17]。动物机体主要的糖代谢途径有糖酵解、糖异生、三羧酸循环、磷酸戊糖途径等,其中糖酵解是动物机体分解葡萄糖最主要的途径之一。丙酮酸激酶可催化磷酸烯醇式丙酮酸和ADP生成ATP和丙酮酸,磷酸果糖激酶可催化果糖-6-磷酸和ATP生成果糖-1,6-二磷酸和ADP,二者都是糖酵解途径中的限速酶。由于鱼类对葡萄糖利用能力低下,因此目前关于饲粮中碳水化合物水平对肝脏糖代谢影响的研究主要集中在鱼类上,在蛋鸡方面的研究较少,但二者吸收利用葡萄糖的机制类似[18]。有报道指出,饲粮中碳水化合物水平与肝脏丙酮酸激酶活性关系密切[19-21]。Zhou等[17]研究发现,随着饲粮中碳水化合物水平提高,金鲚鱼肝脏中丙酮酸激酶活性显著提高。陆游等[22]研究表明,控制饲粮中脂肪水平为5%时,随着饲粮中淀粉含量的增加,大黄鱼肝脏中丙酮酸激酶活性显著提高。本试验结果与上述结论基本一致。本试验通过添加复合纤维素酶使饲粮中养分的释放量增多,可被蛋鸡利用的有效养分增多,即酶的底物增多,肝脏中丙酮酸激酶活性随之提高。聂琴等[23]研究发现,大菱鲆肝脏中磷酸果糖激酶活性不受饲粮中碳水化合物水平的影响。与上述结论一致,在玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肝脏中磷酸果糖激酶活性无显著影响。有研究报道,磷酸果糖激酶非常保守,其活性不受饲粮中碳水化合物水平的诱导[24],这可能是肝脏中磷酸果糖激酶活性变化不显著的原因。由于添加酶制剂对蛋鸡肝脏中丙酮酸激酶活性影响的研究鲜有报道,其具体原因有待进一步研究。

3.3 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡内源消化酶活性的影响

小肠是家禽消化吸收饲粮中养分的主要场所,肠道中的淀粉酶和胰蛋白酶将饲粮中的淀粉和蛋白质分解成葡萄糖和多肽等小分子物质,有助于机体利用。
温超[25]通过试验发现,饲粮中添加复合酶制剂后产蛋后期蛋鸡各肠段中淀粉酶活性以及空肠中胰蛋白酶活性有所提高,但差异不显著,而十二指肠中胰蛋白酶活性则有下降趋势。本试验结果与其不同,其可能是由于使用的酶制剂具体组成成分不同造成最终试验结果不同,温超[25]的试验中使用的复合酶制剂主要由纤维素酶、植酸酶和木聚糖酶复合而成。陈加敏[26]研究发现,底物食糜的浓度与内源酶活性呈正相关。White等[27]研究发现,外源酶对内源酶的作用机制不仅是直接提高内源酶分泌量,并且可以间接通过调节底物的量对内源酶进行调控。本试验中,外源性添加的复合纤维素酶通过分解细胞壁,释放更多壁内养分,增加了肠道内可消化底物浓度,进而刺激内源消化酶分泌,提高内源消化酶活性。随着复合纤维素酶添加量的增加,各个肠段的内源消化酶活性不断提高,达到最大值后又出现降低的趋势。本试验结果与Rebolé等[28]的研究结果一致,分析原因为当复合纤维素酶添加量不足时,导致细胞壁降解不完全,可消化底物浓度低,因此消化酶活性低,当复合纤维素酶添加量过高时,达到底物消化的饱和量,会产生负反馈抑制,影响养分的消化吸收,生产性能等指标也印证了该趋势。

3.4 玉米-杂粕型饲粮中添加复合纤维素酶对蛋鸡肠道中葡萄糖转运载体基因表达的影响

进入动物机体的碳水化合物会在小肠被淀粉酶等消化酶分解为单糖,而单糖需要相应的转运载体转运才能最终被机体吸收[29]。小肠黏膜上皮细胞吸收的单糖包括葡萄糖、半乳糖和果糖,其中葡萄糖占80%,被禽类吸收的单糖中葡萄糖的占比达98%以上[30]。有研究表明,小肠上皮细胞中营养物质转运载体的表达量直接影响养分吸收[31]。单糖转运载体主要有SGLT-1和GLUT-2,主要转运葡萄糖、果糖、半乳糖。SGLT-1在葡萄糖转运过程中起主导作用,主要分布在近端小肠上皮细胞刷状缘膜上,通过激活蛋白激酶C(PKC)依赖性通路调节GLUT-2对葡萄糖的转运[32]。mRNA作为指导蛋白质合成的模板,其相对表达量增多意味着葡萄糖转运载体增多,被机体吸收利用的养分增多。王修启等[33]研究发现,饲粮中添加木聚糖酶可以显著提高肉仔鸡十二指肠中SGLT-1 mRNA相对表达量,对空肠中SGLT-1 mRNA相对表达量的影响不显著,该结果与本试验结果不同。Barfull等[34]研究表明,SGLT-1 mRNA相对表达量和鸡日龄与肠腔面积有关,且均呈正相关。本试验选用的蛋鸡比肉仔鸡肠腔面积更大,营养物质与肠道接触面积更大,因此在本试验中添加复合纤维素酶对蛋鸡空肠中SGLT-1 mRNA相对表达量有显著影响。SGLT-1 mRNA相对表达量受底物葡萄糖浓度的影响[35]。本试验中,添加400 mg/kg复合纤维素酶组蛋鸡空肠中淀粉酶活性较对照组显著提高,因此其空肠中SGLT-1 mRNA相对表达量显著高于对照组。王修启等[33]研究发现,与对照组相比,饲粮中添加木聚糖酶对肉鸡十二指肠和空肠中GLUT-2 mRNA相对表达量无显著影响。本研究结果符合前人研究结论。有报道表明,GLUT-2不仅分布在小肠,在肝脏、肾脏、胰脏、大脑中均表达[36-37],这可能是添加复合纤维素酶后蛋鸡肠道中GLUT-2 mRNA相对表达量不显著的原因。周力等[38]的研究发现,精料比例越高,青海黑藏羊小肠中SGLT-1 mRNA相对表达量越高。复合纤维素酶可分解细胞壁降低饲粮纤维含量,提高饲粮中养分释放量,因此各试验组肠道中葡萄糖转运载体mRNA相对表达量均高于对照组,与前人研究结果一致。

4 结论

在玉米-杂粕型饲粮中添加复合纤维素酶可以通过提高饲粮中营养物质释放量提高蛋鸡小肠中消化酶及肝脏中糖代谢相关酶活性,还能上调肠道中葡萄糖转运载体基因的表达,进而提高生产性能。本试验条件下,蛋鸡玉米-杂粕型饲粮中复合纤维素酶的最适添加量为400 mg/kg。
[1]
杨元森, 邱彬航, 张爽, 等. 杂粕的营养成分、饲用限制因素及其提质增效技术研究进展[J]. 饲料工业, 2023, 44(5):25-32.

YANG Y S, QIU B H, ZHANG S, et al. Research progress on nutrition composition,feeding limiting factors and improving quality and efficiency of miscellaneous meal[J]. Feed Industry, 2023, 44(5):25-32. (in Chinese)

[2]
王芳. 海大集团:杂粕替代技术推动豆粕减量替代[J]. 中国畜牧业, 2022(21):38-39.

WANG F. Haida Group:promoting soybean meal reduction and substitution through miscellaneous meal substitution technology[J]. China Animal Industry, 2022(21):38-39. (in Chinese)

[3]
刘奇. 2022年豆粕市场回顾及2023年展望[J]. 今日养猪业, 2023(1):37-40.

LIU Q. Review of soybean meal market in 2022 and outlook for 2023[J]. Pigs Today, 2023(1):37-40. (in Chinese)

[4]
梁海超. 棉籽粕、菜籽粕、花生粕与橙子粕对育雏育成鸡生长发育及产蛋鸡生产性能的影响[D].硕士学位论文. 泰安: 山东农业大学, 2022.

LIANG H C. Effects of cottonseed,rapeseed,peanut meals and orange by-product on the development of layer-type pullets and performance of laying hens[D].Master’s Thesis. Taian: Shandong Agricultural University, 2022. (in Chinese)

[5]
颜瑞, 庄苏, 王恬. 杂粕型复合酶制剂在家禽生产中的应用研究进展[J]. 粮食与饲料工业, 2010(11):55-57.

YAN R, ZHUANG S, WANG T. Research progress on the application of mixed meal type composite enzyme preparations in poultry production[J]. Cereal & Feed Industry, 2010(11):55-57. (in Chinese)

[6]
杨丽仙. 纤维素酶在肉仔鸡饲粮中应用效果的研究[D].硕士学位论文. 兰州: 甘肃农业大学, 2010.

YANG L X. Study on the applying effect of cellulase in broilers diets[D].Master’s Thesis. Lanzhou: Gansu Agricultural University, 2010. (in Chinese)

[7]
BARRIÈRE Y, GUILLET C, GOFFNER D, et al. Genetic variation and breeding strategies for improved cell wall digestibility in annual forage crops.A review[J]. Animal Research, 2003, 52(3):193-228.

DOI

[8]
赖宝色, 林秋敏, 杨慧. 复合酶制剂对蛋鸡生产性能、蛋品质、肠道健康微生物及养分利用率的影响[J]. 养殖与饲料, 2020(6):21-22.

LAI B S, LIN Q M, YANG H. Effects of compound enzyme preparation on performance,egg quality,intestinal health microorganisms and nutrient utilization of laying hens[J]. Animals Breeding and Feed, 2020(6):21-22. (in Chinese)

[9]
高正义, 王志祥, 吕久菊, 等. 在玉米-杂粕日粮中添加复合酶对商品蛋鸡生产性能及蛋品质的影响[J]. 饲料工业, 2008, 29(10):17-19.

GAO Z Y, WANG Z X, LYU J J, et al. Effect of adding compound enzyme in corn-miscellaneous meal diet on product performance and egg quality for commercial egg-layers[J]. Feed Industry, 2008, 29(10):17-19. (in Chinese)

[10]
焦莉, 王春明, 王洪芳, 等. 低营养水平日粮添加复合酶对蛋鸡生产性能、蛋品质和抗氧化的影响[J]. 中国饲料, 2021(6):63-66.

JIAO L, WANG C M, WANG H F, et al. Effects of adding complex enzymes to low nutrient level diets on performance,egg quality and antioxidant activity of laying hens[J]. China Feed, 2021(6):63-66. (in Chinese)

[11]
OBA A, PINHEIRO J W, DA SILVA C A, et al. Performance,qualitative and microbiogy characteristics of laying hens fed with different levels of enzyme complex[J]. Semina:Ciências Agrárias, 2013,34 (Suppl.2):4179-4186.

[12]
BEDERSKA-ŁOJEWSKA D, ARCZEWSKA-WŁOSEK A, ŚWIATKIEWICZ S, et al. The effect of different dietary levels of hybrid rye and xylanase addition on the performance and egg quality in laying hens[J]. British Poultry Science, 2019, 60(4):423-430.

DOI

[13]
刘树立, 王华, 王春艳, 等. 纤维素酶分子结构及作用机理的研究进展[J]. 食品科技, 2007, 32(7):12-15.

LIU S L, WANG H, WANG C Y, et al. Progress of the molecular structure and mechanism about cellulase[J]. Food Science and Technology, 2007, 32(7):12-15. (in Chinese)

[14]
海存秀, 郭红玉. 复合酶制剂对青海地区蛋鸡生产性能和血液生化指标影响的试验研究[J]. 饲料工业, 2012, 33(16):22-24.

HAI C X, GUO H Y. Experimental study on the effect of compound enzyme preparation on the production performance and blood biochemical indicators of laying hens in Qinghai province[J]. Feed Industry, 2012, 33(16):22-24. (in Chinese)

[15]
张胜. 饲用酶制剂对蛋鸡生产性能的影响研究[J]. 河南科学, 2004, 22(6):796-797.

ZHANG S. The study on influence of feed enzyme on layers productive performance[J]. Henan Science, 2004, 22(6):796-797. (in Chinese)

[16]
黄靓. 添加复合酶对海兰褐鸡产蛋初期产蛋性能、蛋品质、营养消化率和有害气体排放的影响[J]. 广东饲料, 2019, 28(5):52.

HUANG L. Effects of adding compound enzymes on egg performance,egg quality,nutrient digestibility,and harmful gas emissions of Hailan brown chicken in the early stage of laying[J]. Guangdong Feed, 2019, 28(5):52. (in Chinese)

[17]
ZHOU C P, GE X P, NIU J, et al. Effect of dietary carbohydrate levels on growth performance,body composition,intestinal and hepatic enzyme activities,and growth hormone gene expression of juvenile golden pompano,Trachinotus ovatus[J]. Aquaculture, 2015, 437:390-397.

DOI

[18]
毛天奇, 孙金辉, 夏苏东, 等. 水产经济动物糖营养需求与糖代谢调控机制研究进展[J]. 水产研究, 2021, 8(2):68-75.

MAO T Q, SUN J H, XIA S D, et al. Research progress on carbohydrate nutrition demand and regulation mechanism of carbohydrate metabolism of aquatic economic animals[J]. Open Journal of Fisheries Research, 2021, 8(2):68-75. (in Chinese)

DOI

[19]
FERNÁNDEZ F, MIQUEL A G, CÓRDOBA M, et al. Effects of diets with distinct protein-to-carbohydrate ratios on nutrient digestibility,growth performance,body composition and liver intermediary enzyme activities in gilthead sea bream (Sparus aurata,L.) fingerlings[J]. Journal of Experimental Marine Biology and Ecology, 2007, 343(1):1-10.

DOI

[20]
ENES P, PANSERAT S, KAUSHIK S, et al. Effect of normal and waxy maize starch on growth, food utilization and hepatic glucose metabolism in European sea bass (Dicentrarchus labrax) juveniles[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2006, 143(1):89-96.

[21]
BORREBAEK B, CHRISTOPHERSEN B. Hepatic glucose phosphorylating activities in perch (Perca fluviatilis) after different dietary treatments[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2000, 125(3):387-393.

DOI

[22]
陆游, 周飘萍, 袁野, 等. 不同小麦淀粉和脂肪水平对大黄鱼的生长性能、饲料利用及糖代谢关键酶活力的影响[J]. 水产学报, 2017, 41(2):297-310.

LU Y, ZHOU P P, YUAN Y, et al. Effects of different wheat starch and lipid levels on growth performance,feed utilization and hepatic carbohydrate metabolism key enzymes activities in large yellow croaker (Larimichthys crocea)[J]. Journal of Fisheries of China, 2017, 41(2):297-310. (in Chinese)

[23]
聂琴, 苗惠君, 苗淑彦, 等. 不同糖源及糖水平对大菱鲆糖代谢酶活性的影响[J]. 水生生物学报, 2013, 37(3):425-433.

NIE Q, MIAO H J, MIAO S Y, et al. Effects of dietary carbohydrate sources and levels on the activities of carbohydrate metabolic enzymes in turbot[J]. Acta Hydrobiologica Sinica, 2013, 37(3):425-433. (in Chinese)

[24]
LIN J H, SHIAU S Y. Hepatic enzyme adaptation to different dietary carbohydrates in juvenile tilapia Oreochromis niloticus×O. aureus[J]. Fish Physiology and Biochemistry, 1995, 14(2):165-170.

DOI

[25]
温超. 复合酶制剂对产蛋后期蛋鸡内源消化酶及养分代谢的影响[D].硕士学位论文. 南京: 南京农业大学, 2009.

WEN C. Effect of enzyme preparations on endogenous enzmye activity and nutrient metabolism of hens during late laying period[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2009. (in Chinese)

[26]
陈加敏. 酶浓度和底物浓度对酶活性影响因素的教学探讨[J]. 生物学教学, 2020, 45(9):78-80.

CHEN J M. Teaching exploration on the factors influencing enzyme activity by enzyme concentration and substrate concentration[J]. Biology Teaching, 2020, 45(9):78-80. (in Chinese)

[27]
WHITE D, ADHIKARI R, WANG J Q, et al. Effects of dietary protein,energy and β-mannanase on laying performance,egg quality,and ileal amino acid digestibility in laying hens[J]. Poultry Science, 2021, 100(9):101312.

DOI

[28]
REBOLÉ A, RODRIÍGUEZ M L, ALZUETA C, et al. A short note on effect of enzyme supplement on the nutritive value of broiler chick diets containing maize,soyabean meal and full-fat sunflower seed[J]. Animal Feed Science and Technology, 1999, 78(1/2):153-158.

DOI

[29]
DING M, WANG G, YUAN P, et al. [Research progress in the role and mechanism of polysaccharides in regulating glucose and lipid metabolism][J]. Journal of Southern Medical University, 2021, 41(3):471-475.

DOI PMID

[30]
SCANES C G. Sturkie’s avian physiology[M]. 6th ed. Amsterdam: Academic Press, 2015.

[31]
魏红, 沙玉柱, 史浩, 等. 放牧藏绵羊暖、冷季瘤胃VFAs与SGLT1基因表达特征关联分析[J]. 西北农业学报, 2021, 30(5):629-636.

WEI H, SHA Y Z, SHI H, et al. Correlation analysis of rumen VFAs and SGLT1 gene expression characteristics of grazing Tibetan sheep (Ovis aries) in warm and cold seasons[J]. Acta Agriculturae Boreali-Occidentalis Sinica, 2021, 30(5):629-636. (in Chinese)

[32]
YOSHIKAWA T, INOUE R, MATSUMOTO M, et al. Comparative expression of hexose transporters (SGLT1,GLUT1,GLUT2 and GLUT5) throughout the mouse gastrointestinal tract[J]. Histochemistry and Cell Biology, 2011, 135(2):183-194.

DOI

[33]
王修启, 张兆敏, 张磊, 等. 日粮添加木聚糖酶对肉鸡小肠葡萄糖吸收及其转运载体基因表达影响[J]. 农业生物技术学报, 2005, 13(4):497-502.

WANG X Q, ZHANG Z M, ZHANG L, et al. Dietary xylanase supplementation affects glucose absorption and SGLT1 mRNA expression in intestine of broiler chickens fed wheat-based diet[J]. Journal of Agricultural Biotechnology, 2005, 13(4):497-502. (in Chinese)

[34]
BARFULL A, GARRIGA C, MITJANS M, et al. Ontogenetic expression and regulation of Na+-D-glucose cotransporter in jejunum of domestic chicken[J]. American Journal of Physiology.Gastrointestinal & Liver Physiology, 2002, 282(3):G559-G564.

[35]
丁晓萌, 侯坤友, 胡晓祎, 等. 脱脂米糠可溶性膳食纤维对小肠葡萄糖吸收和转运的影响及其作用机制[J]. 食品科学, 2020, 41(1):183-189.

DOI

DING X M, HOU K Y, WANG X W, et al. Effect of soluble dietary fiber from defatted rice bran on glucose absorption and transport in small intestine and its mechanism of action[J]. Food Science, 2020, 41(1):183-189. (in Chinese)

DOI

[36]
程瑾. 三种单糖转运蛋白mRNA在肉鸡和蛋鸡小肠中表达变化的研究[D].硕士学位论文. 晋中: 山西农业大学, 2014.

CHENG J. mRNA expression pattern of three monosaccharide transporters in small intestine of broiler and layer[D].Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2014. (in Chinese)

[37]
周瑞宇, 辛现良, 耿美玉. 葡萄糖转运载体及其在单糖肠吸收中的作用研究进展[J]. 现代生物医学进展, 2010, 10(17):3335-3339.

ZHOU R Y, XIN X L, GENG M Y. Glucose transporter and research progress on mechanism of glycose absorption in the intestine[J]. Progress in Modern Biomedicine, 2010, 10(17):3335-3339. (in Chinese)

[38]
周力, 张峰硕, 张春梅, 等. 日粮精粗比对青海黑藏羊小肠营养物质转运载体基因表达水平的影响[J]. 四川农业大学学报, 2022, 40(1):105-110,136.

ZHOU L, ZHANG F S, ZHANG C M, et al. Effects of dietary forage to concentrate ratio on gene expression level of nutrient transporter in small intestine of Qinghai black Tibetan sheep[J]. Journal of Sichuan Agricultural University, 2022, 40(1):105-110,136. (in Chinese)

Outlines

/