RESEARCH PAPER

Effects of Adding Different Ratios of Tiger Nut or Puffed Tiger Nut to Diets on Growth Performance, Serum Biochemical Indexes and Fecal Microbial Composition of Growing Pigs

  • HU Mingyang , 1 ,
  • LIU Xule 1 ,
  • DUAN Xiaoyan 1 ,
  • JING Kunpeng 1 ,
  • SU Yingying 1 ,
  • ZHU Xiaoyan 1, 2, 3 ,
  • SHI Yinghua 1, 2, 3 ,
  • LI Zhentian , 1, 2, 3, *
Expand
  • 1 College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450002, China
  • 2 Key Laboratory of Innovation and Utilization of Grassland Resources in Henan Province, Zhengzhou 450002, China
  • 3 Henan Engineering Research Center for Forage, Zhengzhou 450002, China
*associate professor, E-mail:

Received date: 2023-07-18

  Online published: 2024-03-13

Abstract

This study aimed to investigate the effects of adding different ratios of tiger nut or puffed tiger nut to diets on the growth performance, serum immune, antioxidant indexes, and fecal microbial composition of growing pigs weighing 30 to 60 kg. A total of 135 healthy (Duroc×Landrace×Large White) pigs with body weight of (33.40±0.15) kg were selected for the experiment, which were divided into five groups with three replicates per group and nine pigs per replicate. They were control group (CK group, without tiger nut), 5% tiger nut group (5%CEL group), 10% tiger nut group (10%CEL group), 10% puffed tiger nut group (10%PCEL group), 15% puffed tiger nut group (15%PCEL group). This experiment was conducted for 28 days. Results showed as follows: compared with the CK group, the average daily gain (ADG) in the 15%PCEL group was significantly increased (P<0.05); the average daily feed intake (ADFI) in the 5%CEL group, 10%CEL group, 10%PCEL group, and 15%PCEL group was significantly decreased (P<0.05); the feed-to-gain ratio (F/G) in the 10%PCEL group and 15%PCEL group was significantly reduced (P<0.05); compared with the CK group, the apparent digestibility of crude fat was significantly higher in 5%CEL, 10%CEL, 10%PCEL and 15%PCEL groups (P<0.05); compared with CK group, serum total antioxidant capacity (T-AOC), and catalase (CAT) activity were significantly increased in the 5%CEL group (P<0.05), T-AOC, CAT and superoxide dismutase (SOD) activities were significantly higher in the 10%CEL group (P<0.05), and T-AOC was significantly higher in the 10%PCEL and 15%PCEL groups (P<0.05). In the serum, the contents of interleukin-4 (IL-4), interleukin-10 (IL-10), immunoglobulin G (IgG), and immunoglobulin M (IgM) in the 5%CEL group were significantly increased (P<0.05), and the contents of IL-4, IgG, and IgM in the 10%CEL group were also significantly increased (P<0.05); the IL-10 content in the 15%PCEL group was significantly increased (P<0.05). In terms of fecal microbiota, compared with the CK group, the relative abundances of Mitsuokella, Weissella, Holdemanella and Megasphaera at the family and genus levels were significantly increased in the 5%CEL group (P<0.05); and in the 15% PCEL group, the relative abundances of Mitsuokella, Weissella, Lachnospiraceae_ND3007_group, Megasphaera, Holdemanella, Blautia, and Faecalibacterium were significantly increased (P<0.05), however, the relative abundances of Erysipelotrichaceae, Oscillospiraceae, Clostridium_sensu_stricto_1, Anaerorhabdus_furcosa_group, and Terrisporobacter were significantly decreased (P<0.05). In conclusion, the addition of 5% tiger nut to the diet can significantly increase the antioxidant capacity and immune capacity of growing pigs. The addition of 15% puffed tiger nut can significantly increase the ADG, reduce the F/G, and significantly increase the total antioxidant capacity of pigs. The addition of 5% tiger nut and 15% puffed tiger nut can significantly regulate the gut microbiota, thereby improving the intestinal health, and the addition of 15% puffed tiger nut can more effective in improving the gut health of pigs.

Cite this article

HU Mingyang , LIU Xule , DUAN Xiaoyan , JING Kunpeng , SU Yingying , ZHU Xiaoyan , SHI Yinghua , LI Zhentian . Effects of Adding Different Ratios of Tiger Nut or Puffed Tiger Nut to Diets on Growth Performance, Serum Biochemical Indexes and Fecal Microbial Composition of Growing Pigs[J]. Chinese Journal of Animal Nutrition, 2024 , 36(3) : 1562 -1577 . DOI: 10.12418/CJAN2024.138

中国作为当今世界最大的猪肉生产和消费国,根据2022年中国国家统计局统计数据得出,2022年中国生猪出栏量为69 995万头,同比增长4.3%,而饲料作为生猪养殖产业中的最大的投资占比对整个生猪养殖行业有着重要的意义,因此新饲料资源的开发以及特种农作物的饲料常规化利用对养殖业的发展具有重要意义。油莎豆最早发现自非洲东北部,20世纪60年代开始在我国推广种植[1]。油莎豆营养价值较高,虽然不同品种及生产地区不同会导致其营养成分存在差异,但均富含脂肪(18.71%~26.71%)、淀粉(20%~25%)、可溶性糖(15%~25%)、蛋白质(4.66%~8.46%)、膳食纤维(6.64%~11.00%)等[2]。油莎豆中含有生物碱、皂苷和单宁,具有抗菌和抗炎作用,还含有类黄酮、矿物质、维生素和甾醇[3]。有关于油莎豆粕的研究指出,在猪34~60.3 kg育肥阶段饲粮中,油莎豆粕可以部分替代玉米作为能量饲料,最佳替代量为10%[4]。在猪22~60 kg育肥阶段饲粮中,添加12%和48%油莎豆粕组猪有较好的生长性能和胴体价值[5]。油莎豆具备用来做优质饲料来源的条件,目前对油莎豆直接在生长育肥猪方面应用的研究较少,为此本试验旨在探讨在生长猪饲粮中添加油莎豆或膨化油莎豆对猪的生长性能、养分表观消化率、血清免疫、抗氧化指标及粪便微生物组成的影响,为油莎豆在养猪生产方面的应用提供参考。

1 材料与方法

1.1 试验材料

本试验中的油莎豆产自河北省邢台市垂杨镇,购自南宫子业油莎豆科技发展有限公司。由河南神农膨化饲料科技有限公司进行油莎豆的膨化。油莎豆和膨化油莎豆营养物质含量见表1
表1 油莎豆和膨化油莎豆营养物质含量

Table 1 Nutrient contents of tiger nut and puffed tiger nut %

项目
Items
油莎豆
Tiger nut
膨化油莎豆
Puffed tiger nut
干物质 DM 92.12 93.14
粗蛋白质 CP 5.58 6.32
粗脂肪 EE 27.23 26.03
淀粉 Starch 27.20 25.00
粗纤维 CF 6.56 7.04
粗灰分 Ash 3.12 6.47
钙 Ca 0.26 0.27
磷 P 0.23 0.24
赖氨酸 Lys 0.31 0.29
蛋氨酸 Met 0.04 0.05
苏氨酸 Thr 0.2 0.22
色氨酸 Typ 0.02 0.04

1.2 试验设计和饲养管理

本试验在河南省洛阳市宜阳县洛阳高品生态养殖有限公司进行,猪的品种为杜洛克×长白猪×大白猪的三元杂交猪。本试验采用单因素试验设计,选取体况良好、体重为(33.40±0.15) kg的试验猪135头,随机分为5组,分别为对照组(CK组,不含油莎豆)、5%油莎豆添加组(5%CEL组)、10%油莎豆添加组(10%CEL组)、10%膨化油莎豆添加组(10%PCEL组)、15%膨化油莎豆添加组(15%PCEL组),每组3个重复,每个重复9头猪。基础饲粮按照猪NRC(2012)饲养标准配制,试验饲粮组成及营养水平见表2。试验开始前先对空圈舍进行全面的消杀。试验开始后每天06:00、11:00、17:00进行饲喂。每天清理圈舍,保持圈舍干净整洁,保证通风,防止废气积累,通过风机水帘控制圈舍环境温度恒定。
表2 试验饲粮组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
组别 Groups
CK 5%CEL 10%CEL 10%PCEL 15%PCEL
原料 Ingredients
玉米 Corn 63.75 60.88 55.91 56.51 50.76
豆粕 Soybean meal 20.14 20.18 20.58 20.32 20.78
小麦麸 Wheat bran 10.20 10.00 10.00 9.94 10.00
油莎豆 Tiger nut 5.00 10.00
膨化油莎豆 Puffed tiger nut 10.00 15.00
大豆油 Soybean oil 2.82 0.90 0.50 0.50 0.50
石粉 Limestone 0.97 0.94 0.89 0.92 0.89
磷酸氢钙 CaHPO4 0.46 0.48 0.51 0.44 0.45
食盐 NaCl 0.35 0.35 0.35 0.35 0.35
赖氨酸 Lysine 0.20 0.18 0.16 0.00 0.17
蛋氨酸 Methionine 0.02 0.02 0.03 0.03 0.03
苏氨酸 Threonine 0.09 0.07 0.07 0.00 0.07
预混料 Premix1) 1.00 1.00 1.00 1.00 1.00
合计 Total 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels2)
消化能 DE/(MJ/kg) 14.03 13.78 13.85 13.89 14.01
净能 NE/(MJ/kg) 10.36 10.36 10.36 10.36 10.36
干物质 DM 88.79 88.76 88.83 88.58 88.63
粗蛋白质 CP 15.63 15.12 16.15 15.43 16.55
粗脂肪 EE 2.97 3.67 4.91 5.15 5.80
赖氨酸 Lys 0.85 0.82 0.82 0.85 0.84
蛋氨酸 Met 0.25 0.25 0.25 0.25 0.25
苏氨酸 Thr 0.58 0.54 0.54 0.47 0.55
色氨酸Trp 0.16 0.15 0.15 0.15 0.15
中性洗涤纤维 NDF 31.96 32.07 33.33 35.47 35.78
酸性洗涤纤维 ADF 6.35 7.67 8.20 7.73 7.83
粗灰分 Ash 6.71 6.22 5.51 5.50 5.25

1)预混料为每千克饲粮提供 Premix provided the following per kg of diets: VA 7 500 IU,VD3 2 000 IU, VE 20 IU,VK 9 mg,VB1 0.39 mg,VB2 6.4 mg,VB6 0.78 mg,VB12 0.03 mg,泛酸pantothenic acid 14.22 mg,烟酰胺niacinamide 28.12 mg,叶酸 folic acid 0.39 mg,生物素 biotin 0.016 mg,胆碱 choline 300 mg, Cu 23.66 mg,Fe 108 mg,Zn 95.22 mg,Mn 38.16 mg,Co 0.48 mg,I 0.6 mg,Se 0.3 mg,Cr 0.225 mg。

2)消化能和净能根据《中国饲料成分及营养价值表(2020年第31版)》计算而得,其他营养水平均为测定值。 DE and NE were calculated according to China Feed Composition and Nutritional Value Tables (31st Edition, 2020), while the other nutrient levels were measured values.

1.3 样品采集

血清样品:试验第28天晨饲前从每个试验组的每个重复随机选取2头试验猪进行前腔静脉采血,每头猪采血10 mL,采血管竖直静置2 h后,在4 ℃,3 000 r/min下离心15 min,抽取上层血清置于-20 ℃冰箱保存。
粪样采集:试验第28天上午从每个试验组的每个重复随机选取2头试验猪采集其新鲜无污染的粪便,装入5 mL冻存管,立即放入液氮罐中保存,随后将样品移至-80 ℃冰箱中保存。
测定消化率的粪便样品:试验第24~26天采集粪样,每天08:00和14:00各采集粪样75 g,采集新鲜无污染的粪便,用10%的酒石酸溶液固氮,样品在-20 ℃冰箱中保存。

1.4 测定指标及方法

1.4.1 生长性能的测定

在试验第1天晨饲前对每个试验组的每个重复进行称重并记录,在试验第28天上午晨饲前对每个试验组的每个重复进行称重并记录,用于计算猪的平均日增重(ADG)。在试验期间以重复为单位记录采食量,用于计算平均日采食量(ADFI)。

1.4.2 饲粮中营养成分的测定

饲粮和粪样中的干物质(DM)(GB/T 6435—2014)、粗蛋白质(CP)(GB/T 6432—1994)、粗脂肪(EE)(GB/T 6433—2006)、中性洗涤纤维(NDF)(GB/T 20806—2006)、酸性洗涤纤维(ADF)(NY/T 1459—2007)和粗灰分(Ash)(GB/T 6438—2007)含量均按照国标进行测定。

1.4.3 养分表观消化率的测定

养分表观消化率计算公式如下:
某养分表观消化率(%)=100×[1-(A/B)×(C/D)]。
式中:A为粪中该养分含量;B为饲粮中该养分含量;C为饲粮中盐酸不溶灰分含量;D为粪中盐酸不溶灰分含量。

1.4.4 粪便微生物测序及数据分析

1.4.4.1 DNA抽提和PCR扩增

根据 E.Z.N.A.® soil DNA kit (Omega Bio-Tek,美国)说明书进行微生物群落总DNA抽提,使用1%的琼脂糖凝胶电泳检测DNA的提取质量,使用NanoDrop2000测定DNA浓度和纯度;使用338F和806R对16S rRNA基因V3~V4可变区进行PCR扩增。

1.4.4.2 Illumina Miseq测序

将同一样本的PCR产物混合后使用2%琼脂糖凝胶回收PCR产物,利用AxyPrep DNA Gel Extraction Kit (Axygen Biosciences,美国)进行回收产物纯化,2%琼脂糖凝胶电泳检测,并用QuantusTM Fluorometer (Promega,美国)对回收产物进行检测定量。

1.4.4.3 数据库建立

使用NEXTflexTM Rapid DNA-Seq Kit(Bioo Scientific,美国)进行建库: 1)接头链接;2)使用磁珠筛选去除接头自连片段;3)利用PCR扩增进行文库模板的富集;4)磁珠回收PCR产物得到最终的文库。利用Illumina公司的MiSeq PE300平台进行测序(上海美吉生物医药科技有限公司)。

1.4.4.4 数据统计分析

选择97%相似度的操作分类单元(OTU)或门科属分类学水平,利用mothur计算不同随机抽样下的Chao1指数、Shannon指数和样本中各微生物的相对丰度组成,利用R语言工具制作曲线图和群落柱形图。另外,使用单因素方差分析(one-way ANOVA)方法来确定样本组间差异。

1.4.5 血清抗氧化、炎性因子和脂质代谢相关指标的测定

血清抗氧化指标:总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)、丙二醛(MDA)和过氧化氢酶(CAT);血清炎性因子:白细胞介素-2(IL-2)、白细胞介素-4(IL-4)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)、γ-干扰素(INF-γ)、肿瘤坏死因子-α(TNF-α)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)和免疫球蛋白M(IgM);血清脂质代谢相关指标:总胆固醇(TC)、甘油三酯(TG)、高密度脂蛋白(HDL-C)和低密度脂蛋白(LDL-C)。以上指标的含量或活性检测均采用上海酶联生物科技有限公司试剂盒,具体步骤按照试剂盒说明书进行。

1.5 数据处理及统计分析

数据用Excel 2016记录整理,分析前对所有数据进行正态性和同质性测试。通过SPSS 26.0统计软件对各项指标进行单因素方差分析(one-way ANOVA),Duncan氏法进行多重比较,显著水平定为P<0.05,试验结果均用“平均值±标准差”表示。

2 结果

2.1 饲粮中添加不同比例油莎豆或膨化油莎豆对猪生长性能的影响

表3可知,与CK组相比,15%PCEL组的ADG显著提高(P<0.05)。与CK组相比,5%CEL组、10%CEL组、10%PCEL组和15%PCEL组的ADFI均显著降低(P<0.05)。与CK组相比,10%PCEL组和15%PCEL组的F/G均显著降低(P<0.05)。
表3 饲粮中添加不同比例油莎豆或膨化油莎豆对猪生长性能的影响

Table 3 Effects of adding different ratios of tiger nut or puffed tiger nut to diets on growth performance in pigs

项目
Items
组别 Groups
CK 5%CEL 10%CEL 10%PCEL 15%PCEL
平均日增重 ADG/kg 0.85±0.01b 0.89±0.06ab 0.87±0.03ab 0.89±0.02ab 0.93±0.03a
平均日采食量 ADFI/kg 2.47±0.01a 2.45±0.01b 2.44±0.01b 2.42±0.01c 2.42±0.01c
料重比 F/G 2.91±0.02a 2.80±0.19ab 2.81±0.08ab 2.71±0.06bc 2.60±0.07c

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, value with different small letter superscripts mean significant difference (P<0.05), while with the same or not letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 饲粮中添加不同比例油莎豆或膨化油莎豆对猪养分表观消化率的影响

表4可知,与CK组相比,5%CEL组、10%CEL组、10%PCEL组和15%PCEL粗脂肪表观消化率均显著提高(P<0.05)。
表4 饲粮中添加不同比例油莎豆或膨化油莎豆对猪养分表观消化率的影响

Table 4 Effects of adding different ratios of tiger nut or puffed tiger nut to diets on apparent digestibility of nutrients in pigs %

项目
Items
组别 Groups
CK 5%CEL 10% CEL 10%PCEL 15%PCEL
干物质 DM 73.35±2.94 69.96±0.47 72.94±0.13 70.85±0.31 73.41±0.79
粗蛋白质 CP 74.84±4.99 74.23±0.96 75.55±0.33 75.27±0.01 76.77±2.54
粗脂肪 EE 53.64±6.35b 62.02±0.18a 64.78±7.33a 64.00±4.00a 63.13±1.93a

2.3 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清抗氧化指标的影响

表5可知,与CK组相比,5%CEL组血清T-AOC和CAT活性显著提高(P<0.05),10%CEL组血清T-AOC、CAT和SOD活性显著提高(P<0.05),10%PCEL组和15%PCEL组血清T-AOC显著提高(P<0.05)。
表5 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清抗氧化的影响

Table 5 Effects of adding different ratios of tiger nut or puffed tiger nut to diets on serum antioxidants in pigs

项目
Items
组别 Groups
CK 5%CEL 10% CEL 10%PCEL 15%PCEL
总抗氧化能力
T-AOC/(mmol/L)
0.05±0.02c 0.12±0.05ab 0.10±0.02b 0.13±0.04a 0.15±0.04a
过氧化氢酶
CAT/(U/mL)
1.33±0.35c 4.48±1.06ab 6.07±1.16a 2.60±0.53bc 3.61±2.64abc
超氧化物歧化酶
SOD/(U/mL)
150.50±49.05b 222.80±48.84ab 233.02±46.70a 163.47±14.15ab 170.15±20.00ab
丙二醛
MDA/(nmol/mL)
5.29±0.77 5.58±0.98 5.18±1.78 5.84±2.90 4.83±0.47
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
203.66±34.24 227.37±22.52 219.83±3.41 178.39±44.22 185.71±36.62

2.4 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清细胞因子和免疫球蛋白含量的影响

表6可知,与CK组相比,5%CEL组血清IL-4、IL-10、IgG、IgM含量均显著升高(P<0.05),10%CEL组血清IL-4、IgG和IgM含量均显著提高(P<0.05),10%PCEL组血清IgM含量显著提高(P<0.05),15%PCEL组血清IL-10含量显著提高(P<0.05)。
表6 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清细胞因子和免疫球蛋白含量的影响

Table 6 Effects of adding different ratios of tiger nut or puffed tiger nut to diets on serum cytokine and immunoglobulin contents in pigs

项目
Items
组别 Groups
CK 5%CEL 10%CEL 10%PCEL 15%PCEL
细胞因子 Cytokines
白细胞介素-2
IL-2/(pg/mL)
226.35±7.76 237.52±7.18 232.10±6.27 229.22±8.86 234.50±6.81
白细胞介素-4
IL-4/(pg/mL)
37.88±0.34c 46.82±1.03a 43.35±2.77ab 39.74±2.45bc 40.31±2.69bc
白细胞介素-6
IL-6/(pg/mL)
482.30±26.16 506.33±8.17 467.93±20.26 477.58±18.18 462.28±35.48
白细胞介素-10
IL-10/(pg/mL)
103.86±3.00b 120.16±10.91a 110.68±3.86ab 114.85±2.53ab 117.78±8.00a
肿瘤坏死因子-α
TNF-α/(pg/mL)
132.90±7.29 136.92±1.35 137.97±5.35 133.30±5.51 133.52±11.75
γ-干扰素
INF-γ/(pg/mL)
25.88±0.34 30.05±5.41 27.73±2.74 26.96±0.99 25.41±0.84
免疫球蛋白 Immunoglobulins
免疫球蛋白A
IgA/(μg/mL)
544.19±9.02 610.53±44.15 592.99±33.62 590.03±30.47 590.19±41.17
免疫球蛋白G
IgG/(mg/mL)
15.47±0.37b 18.50±1.15a 18.16±1.39a 15.80±1.00b 15.56±0.72b
免疫球蛋白M
IgM/(mg/mL)
12.02±0.58b 15.68±1.17a 15.95±0.18a 15.66±1.14a 12.45±1.31b

2.5 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清脂质代谢相关指标的影响

表7可知,与CK组相比,5%CEL组、10%CEL组、10%PCEL组和15%PCEL组的血清TC、TG、LDL-C和HDL-C含量均无显著影响(P>0.05)。
表7 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清脂质代谢相关指标的影响

Table 7 Effects of adding different ratios of tiger nut or puffed tiger nut to diets on serum lipid metabolism relative indexes in pigsmmol/L

项目
Items
组别 Groups
CK 5%CEL 10%CEL 10%PCEL 15%PCEL
总胆固醇TC 1.19±0.93 1.52±0.10 1.53±0.26 1.43±0.59 1.67±0.75
甘油三酯TG 0.50±0.19 0.44±0.05 0.49±0.07 0.47±0.03 0.50±0.19
低密度脂蛋白胆固醇 LDL-C 0.90±0.26 0.64±0.19 0.65±0.09 0.86±0.26 0.85±0.38
高密度脂蛋白胆固醇 HDL-C 1.07±0.24 1.55±0.14 1.40±0.37 1.66±0.42 1.73±0.51

2.6 饲粮中添加不同比例油莎豆或膨化油莎豆对猪粪便微生物组成的影响

2.6.1 粪便菌群Alpha多样性

通过对试验组猪的生长性能、血清抗氧化和生化指标等的对比分析,5%CEL组和15%PCEL组有较高的微生物菌群分析价值,遂送检CK组、5%CEL组和15%PCEL组粪便样本。
表8可知,与CK组相比,5CEL%组与15%PCEL组粪便菌群的Sobs指数、Shannon指数、Simpson指数、ACE指数、Chao1指数以及覆盖度均无显著差异(P>0.05)。
表8 饲粮中添加不同比例油莎豆或膨化油莎豆对猪粪便菌群α多样性的影响

Table 8 Effects of adding different ratios of tiger nut or puffed tiger nut to diets on α diversity of fecal flora in pigs

项目
Items
组别 Groups
CK 5%CEL 15%PCEL
Sobs指数 Sobs index 986.40±56.97 932.40±60.02 922.60±66.41
Shannon指数 Shannon index 4.94±0.18 4.77±0.23 4.89±0.32
Simpson指数 Simpson index 0.03±0.01 0.03±0.02 0.03±0.02
ACE指数 ACE index 1 147.62±63.72 1 087.41±45.83 1 059.48±106.20
Chao1指数 Chao1 index 1 128.60±72.02 1 087.21±45.31 1 045.68±88.42
覆盖度 Coverage 0.99±0.00 0.99±0.00 0.99±0.00

2.6.2 稀释曲线

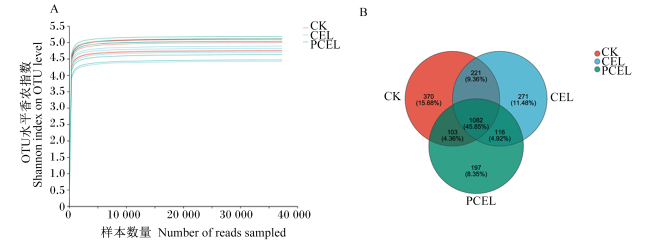
图1-A可知,在样本数量达到5 000以后,稀释曲线已经平缓且菌群覆盖度达到99.46%,说明对样本微生物群落的检测满足对样本微生物区系进行分析的要求。由图1-B可知,3组共得到了4 964个OTU,3组共有的OTU数目1 082个,CK组、5%CEL组和15%PCEL组的OTU数目分别为1 776、1 690、1 498个,其中3组独有的OTU数目分别为370、271、197个。
图1 香农曲线(A)和OTU水平物种韦恩图(B)

CK:对照组;CEL:5%油莎豆添加组;PCEL:15%膨化油莎豆添加组。下图同。

Fig.1 Shannon curves (A) and Venn diagram for species at OTU level (B)

CK: control group; CEL: 5% tiger nut added group; PCEL: 15% puffed tiger nut added group. The same as below.

2.6.3 粪便菌群Beta多样性

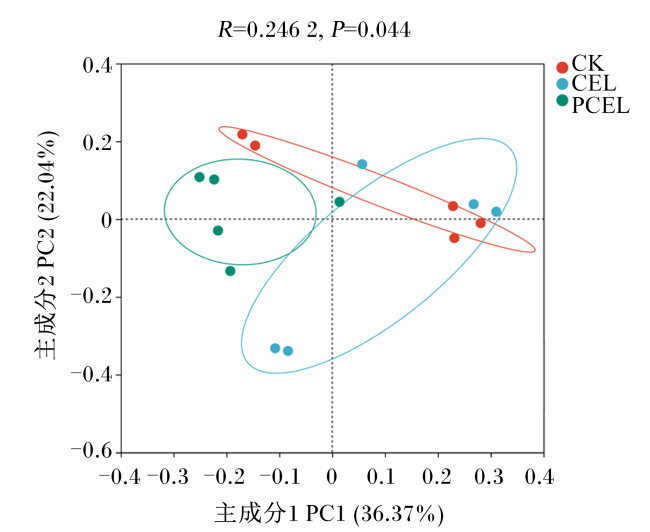
图2所示,在主成分1贡献率为36.37%、主成分2贡献率为22.04%时,3组样本之间分布较远,说明CK组、5%CEL组和15%PCEL组样本之间菌群多样性存在显著差异(P<0.05),3组样品中CK组和15%PCEL组组间距离较远,说明这2组的组内菌群多样性差异较大。R=0.246 2>0,说明组间差异大于组内,P=0.044,说明CK组、5%CEL组和15%PCEL组间存在显著差异(P<0.05)。
图2 OTU水平的Beta多样性分析

Fig.2 Beta diversity analysis at OTU level

2.6.4 门水平微生物组成

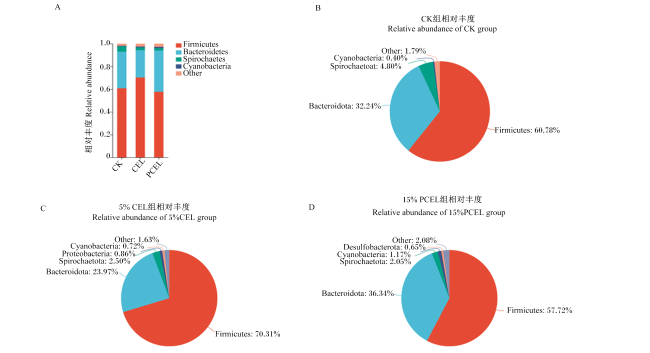
图3可知,CK组、5%CEL组和15%PCEL组样本中门水平微生物相对丰度由大到小依次为厚壁菌门、拟杆菌门、螺旋菌门和蓝藻门,CK组、5%CEL组和15%PCEL组门水平微生物组成无显著差异(P>0.05)。
图3 粪便菌群在门水平上的组成

Firmicutes:厚壁菌门;Bacteroidetes:拟杆菌门;Spirochaetes:螺旋菌门;Cyanobacteria:蓝藻门;Proteobacteria:变形菌门;Other:其他。

Fig.3 Composition of fecal flora at phylum level

2.6.5 科及属水平微生物组成

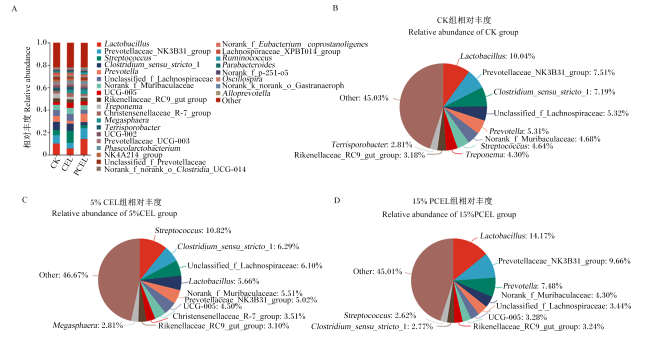
图4可知,在科及属水平上,CK组相对丰度前10的微生物组成分别为乳杆菌属(Lactobacillus)(10.04%)、普雷沃氏菌科NK3B31群(Prevotellaceae_NK3B31_group)(7.51%)、狭义梭菌属1(Clostridium_sensu_stricto_1)(7.19%)、未分类毛螺菌科(unclassified_f_Lachnospiraceae)(5.32%)、普氏菌属(Prevotella)(5.31%)、norank_f_Muribaculaceae(4.68%)、链球菌属(Streptococcus)(4.64%)、密螺旋体菌属(Treponema)(4.30%)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)(3.18%)、土孢杆菌属(Terrisporobacter)(2.81%)。5%CEL组相对丰度前10的微生物组成分别为链球菌属(10.82%)、狭义梭菌属1(6.29%)、未分类毛螺菌科(6.10%)、乳杆菌属(5.66%)、norank_f_Muribaculaceae(5.51%)、普雷沃氏菌科NK3B31群(5.02%)、UCG-005(4.50%)、克里斯滕森菌科R-7群(Christensenellaceae_R-7 group)(3.51%)、理研菌科RC9肠道群(3.10%)、巨球型菌属(Megasphaera)(2.81%)。15%PCEL组相对丰度前10的微生物组成分别为乳杆菌属(14.17%)、普雷沃氏菌科NK3B31群(9.66%)、普氏菌属(7.48%)、norank_f_Muribaculaceae(4.30%)、巨球型菌属(4.04%)、未分类毛螺菌科(3.44%)、UCG-005(3.28%)、理研菌科RC9肠道群(3.24%)、狭义梭菌属1(2.77%)、链球菌属(2.62%)。
图4 粪便菌群在科及属水平上的组成

Lactobacillus:乳杆菌属;Clostridium_sensu_stricto_1:狭义梭菌属1;Prevotellaceae_NK3B31_group:普雷沃氏菌科NK3B31群;Treponema:密螺旋体菌属;Megasphaera:巨球型菌属;Prevotella:普氏菌属;Streptococcus;链球菌属;Christensenellaceae_R-7_group:克里斯滕森菌科R-7群;Rikenellaceae_RC9_gut group:理研菌科RC9肠道群;unclassified_f_Lachnospiraceae:未分类毛螺菌科;Terrisporobacter:土孢杆菌属; Prevotellaceae_UCU-003: 普雷沃氏菌科UCU-003;Phascolarctobacterium:考拉杆菌属;unclassified_f_Prevotellaceae:未分类普雷沃氏菌科;norank_f_norank_o_Clostridia_UCG-014:未分类梭状芽胞杆菌UCG-014;norank_f_Eubacterium_coprostanoligenes:未分类产粪甾醇真杆菌;Lachnosporaceae_XPB1014_group: 类毛螺菌科XPB1014群;Ruminococcus: 瘤胃球菌属;Oscillospira:颤螺菌属;Alloprevotella: 拟普雷沃氏菌属; other: 其他。

Fig.4 Composition of fecal flora at family and genus levels

2.6.6 科及属水平差异微生物分析

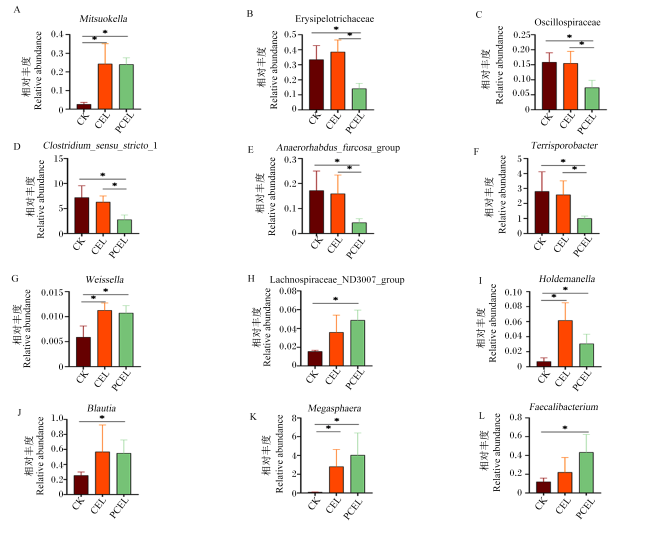
图5为试验组与CK组在科及属水平上的差异菌。与CK组相比,5%CEL组光岗菌属(Mitsuokella)、魏斯氏菌属(Weissella)、霍尔德曼氏菌属(Holdemanella)、巨球型菌属相对丰度均显著升高(P<0.05);15%PCEL组则是光岗菌属、魏斯氏菌属、毛螺菌科ND3007群(Lachnospiraceae_ND3007_group)、巨球型菌属、霍尔德曼氏菌属、经黏液真杆菌属(Blautia)和粪杆菌属(Faecalibacterium)相对丰度显著升高(P<0.05),而丹毒丝菌科(Erysipelotrichaceae)、颤螺旋菌科(Oscillospiraceae)、狭义梭菌属1、叉状棍状厌氧菌群(Anaerorhabdus_furcosa_group)、土孢杆菌属相对丰度显著降低(P<0.05)。
图5 在科及属水平上的差异微生物

Mitsuokella:光岗菌属;Erysipelotrichaceae:丹毒丝菌科;Oscillospiraceae:颤螺旋菌科;Clostridium_sensu_stricto_1:狭义梭菌属1;Anaerorhabdus_furcosa_group:叉状棍状厌氧菌群;Weissella:魏斯氏菌属;Terrisporobacter:土孢杆菌属;Lachnospiraceae_ND3007_group:毛螺菌科ND3007群;Holdemanella:霍尔德曼氏菌属;Megasphaera:巨球型菌属;Faecalibacterium:粪杆菌属;Blautia:经黏液真杆菌属。

*表示组间差异显著(P<0.05)。*showed significant differences between groups (P<0.05).

Fig.5 Differential microbial at family and genus level

2.6.7 微生物差异分析(LEfSe)

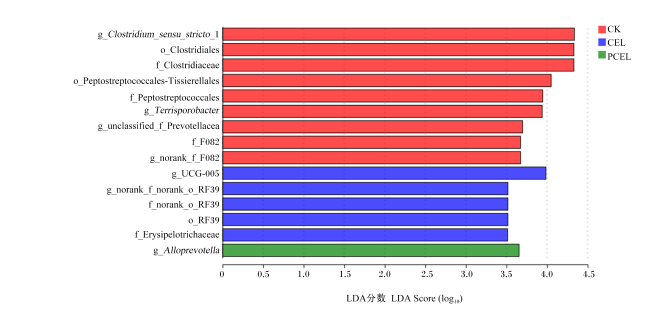
图6可知,通过LEfSe,对CK组、5%CEL组和15%PCEL组进行差异性分析,可以有助于发现关键的生物标记物。通过LEfSe得到了10种差异微生物(LDA值>3.5)。CK组标志物种有未分类普雷沃氏菌科(unclassified_f_Prevotellaceae)、狭义梭菌属1、土孢杆菌属、F082和消化链球菌属(Peptostreptococcales),CEL组标志物种有UCG-005、norank_f_norank_o_RF39、丹毒丝菌科,PCEL组标志物种有拟普雷沃氏菌属(Alloprevotella)。
图6 微生物差异分析条形图 (LDA>3.5)

Clostridium_sensu_stricto_1:狭义梭菌属1;Clostridiales:梭菌目;Clostridiaceae:梭菌科;Peptostreptococcales-Tissierellales:消化链球菌目-泰氏菌目;Peptostreptococcales:消化链球菌目;Terrisporobacter:土孢杆菌属;unclassified_f_Prevotellacea:未分类普雷沃氏菌科; Erysipelotrichaceae:丹毒丝菌科;Alloprevotella:拟普雷沃氏菌属。

Fig.6 Microbiological differential analysis bar chart (LDA>3.5)

3 讨论

3.1 饲粮中添加不同比例油莎豆或膨化油莎豆对猪生长性能和养分表观消化率的影响

油莎豆中蛋白质含量5%~10%[6],蛋白质组成主要为谷蛋白(>47.5%)、白蛋白(>31.8%)、球蛋白(>4.7%)和醇溶蛋白(>3.8%)。油莎豆淀粉含量丰富(14%~37%)[7]且油莎豆淀粉质量较高,是一种无臭、亮白色或灰白色的粉末,其糊化温度为80.9 ℃,透光率较好[8]。油莎豆还含有丰富的膳食纤维,显著高于其他块茎植物如土豆、甘薯、洋姜、雪莲果和木薯等[9]。本试验结果显示,5%CEL组、10%CEL组、10%PCEL组和15%PCEL组采食量均显著下降。当饲粮中纤维含量升高时会影响饲粮口感,同时也会更容易使动物产生饱腹感,减少采食量[10],这可能就是油莎豆添加组采食量低于CK组的原因之一。本试验中,与CK组相比,10%PCEL组和15%PCEL组的F/G均显著降低,15%PCEL组ADG显著提高。通过在6 kg左右断奶仔猪的饲粮中加入不同比例和种类的油脂调节脂肪酸的组成不仅可以显著提高仔猪的粗脂肪表观消化率,还可以降低仔猪的F/G[11-12]。15%PCEL组ADG显著提高有可能是因为该组饲粮粗脂肪含量明显升高。同时10%PCEL组和15%PCEL组F/G显著降低可能也与此有关。有研究表明,饲粮中添加5%或10%的油脂可增加育肥猪饲料转化率,降低胴体瘦肉率[12]。5%CEL组、10%CEL组、10%PCEL组和15%PCEL组粗脂肪含量相较CK组均有所升高且油莎豆中的亚油酸和亚麻酸都是必需脂肪酸,易于被消化吸收,因此5%CEL组、10%CEL组、10%PCEL组和15%PCEL组粗脂肪表观消化率显著升高可能与试验组饲粮中粗脂肪含量提高有关。

3.2 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清抗氧化指标的影响

当动物因为某些因素产生应激,体内会产生大量的氧自由基,会极大影响动物的抗氧化能力与免疫性能[13]。T-AOC可反映机体清除氧自由基的能力,CAT和SOD对于维持动物体正常的活性氧水平有着重要作用[14]。在本试验结果中,与CK组相比,5%CEL组、10%CEL组、10%PCEL组和15%PCEL组血清T-AOC显著提升,5%CEL组和10%CEL组血清CAT活性显著升高。10%CEL组的血清SOD活性也显著提高。Mohammed等[15]研究指出,饲粮中添加5%油莎豆和枣果混合物在治疗组显示出显著的抗高血脂、改善胰岛素抵抗和氧化应激的作用。Zhang等[16]研究表明,油莎豆及其茎叶提取物均具有抗菌、抗氧化和杀虫活性。油莎豆含有多种矿物质和生物活性因子,具有自由基清除能力、体外抑制脂质过氧化、抗炎以及抗氧化等作用[17]。本试验结果与上述文献中的结果相同,油莎豆添加组均不同程度上提升了猪的抗氧化能力。油莎豆中含有生物碱、皂苷和单宁,具有抗菌和抗炎作用,还含有类黄酮、矿物质、维生素和甾醇[3]。油莎豆中的抗氧化肽、类黄酮和皂苷等活性物质对动物的抗氧化能力大有裨益,这就解释了试验组猪的机体抗氧化能力出现显著提升的原因。

3.3 饲粮中添加不同比例油莎豆或膨化油莎豆对猪血清免疫指标的影响

血清免疫球蛋白可以反映机体的免疫能力。血清lgA、lgG和lgM含量升高代表着机体的免疫能力增强[18]。试验结果显示,与CK组相比,5%CEL和10%CEL组的血清lgG和lgM含量均显著升高,且10%PCEL组的血清lgM含量也显著升高。IL-4是由Th2细胞分泌的能增强体液免疫、提高肾脏的防御作用的抗炎因子[19],IL-10是通过抑制一些促炎细胞因子的分泌而具有免疫抑制作用,还可以通过诱导B细胞的增殖和分化产生免疫刺激效应[20]。在本试验的结果中显示,与CK组相比,5%CEL组和10%CEL组的血清IL-4含量均显著提高。同时5%CEL组和15%PCEL组的血清IL-10含量显著提高,且10%CEL组和10%PCEL组含量也呈现出上升趋势。有研究表明,油莎豆的乙醇提取物可以缓解醋酸铅诱导的大鼠睾丸功能障碍,可以显著提升其血清中的IL-10含量[21]

3.4 饲粮中添加不同比例油莎豆或膨化油莎豆对猪脂质代谢相关指标的影响

TC含量能反映出机体对脂肪的代谢强弱,TG含量降低代表着机体脂肪沉降能力下降[22],HDL-C和LDL-C同为胆固醇的运输载体,LDL-C负责把肝脏中的胆固醇带到全身,而HDL-C是把全身的胆固运送回肝脏处理,因此又叫胆做固醇的逆向运输。两者共同协作来维持机体脂质代谢的平衡[23]。在本试验中,与CK组相比,血清TC、TG、HDL-C和LDL-C含量没有出现显著差异。这意味着饲粮中添加适量油莎豆并不会给机体的脂质代谢带来不良影响。

3.5 饲粮中添加不同比例油莎豆或膨化油莎豆对猪粪便微生物菌群的影响

肠道菌群通过调控营养代谢、免疫功能和肠道屏障来对宿主产生影响[24-25],与宿主的健康与疾病显著相关[26]。在正常情况下,肠道菌群是相对稳定的,可以消灭大部分侵入宿主的病原体[27]。通过对猪新鲜粪便中的微生物菌群进行分析能一定程度上反映肠道微生物组成,因此在研究肠道微生物方面越来越多的学者通过关注粪便微生物来研究肠道微生物[28-29]。肠道微生物和宿主属于共生作用,当宿主感染病原体后会潜在地促进致病性微生物的生长,导致微生物菌落结构和多样性发生变化[30]
本试验中,与CK组相比,在科及属水平上,CEL组光岗菌属、魏斯氏菌属、霍尔德曼氏菌属、巨球型菌属相对丰度均显著升高。光岗菌属相对丰度与胰岛素抵抗呈显著的负相关[31],同时也是小肠中可以发酵蛋白质的主要细菌[32]。细菌胞外多糖(EPS)是一种细胞外大分子,在食品、医疗和制药行业具有潜在的应用前景。魏斯氏菌菌株可以产生EPS分子,而EPS的产生一直是魏斯氏菌属研究的重点,此外魏斯氏菌属也显示出治疗特应性皮炎和某些癌症的潜力[33]。霍尔德曼氏菌属可以改善高血糖症,改善口服葡萄糖耐量并恢复肥胖小鼠肝脏中的糖异生和胰岛素信号传导。这些效应与双形嗜血杆菌恢复胰高血糖素样肽-1(GLP-1)水平的能力有关,增强近端和远端小肠中的GLP-1神经信号传导和迷走神经感觉神经元的GLP-1敏感性,并改变盲肠的不饱和脂肪酸和与代谢健康相关的细菌种类[34]。粪便微生物群中的巨球型菌属相对丰度与腹泻隐孢子虫病呈负相关[35],也是一种具有重要生态意义的瘤胃细菌,可代谢乳酸并缓解由高谷物饮食引起的瘤胃酸中毒(RA)[36]
在本试验中,5%CEL组的血清IL-4、IL-10、IgG和IgM含量显著提升,机体免疫性能显著提升。这可能与饲粮中添加油莎豆改变了光岗菌属、魏斯氏菌属、霍尔德曼氏菌属、巨球型菌属等有益菌群的相对丰度有关。饲粮中添加油莎豆可能在一定程度上提升了猪肠道健康程度和免疫能力。
与CK组相比,15%PCEL组光岗菌属、魏斯氏菌属、毛螺菌科ND3007群、巨球型菌属、霍尔德曼氏菌属、经黏液真杆菌属和粪杆菌属相对丰度显著升高,而丹毒丝菌科、颤螺旋菌科、狭义梭菌属1、叉状棍状厌氧菌群、土孢杆菌属相对丰度显降低。毛螺菌科ND3007群相对丰度的提高能缓解肠道菌群失调引起的溃疡性结肠炎[37]。经黏液真杆菌属是一种与肠道炎症呈负相关的丁酸产生菌[38]。粪杆菌属是肠道主要的丁酸盐生产者之一,丁酸盐不仅能为结肠细胞提供能量来源,还能够保持肠道内壁的完整性。有报道指出,粪杆菌属相对丰度与肾脏功能的完整性有关,这可能是因为肾脏需要借助丁酸盐来介导特异性短链脂肪酸受体(GPR-43)进行信号传导[39]。此外,粪杆菌属衍生的微生物抗炎分子可以通过调节紧密连接蛋白的表达调节糖尿病小鼠的肠道完整性[40]。狭义梭菌属1通常被认为是致病菌,与炎症高度相关[41]。同时,狭义梭菌属1相对丰度的降低可以降低母猪的促炎因子水平[42]。叉状棍状厌氧菌群分离于阑尾脓肿、肺脏和腹腔脓肿,偶尔也分离于人和猪的粪便。研究表明,叉状棍状厌氧菌群相对丰度在白斑综合征病毒感染的活性小虾(IAC)中显著增加[43],叉状棍状厌氧菌群的丰度水平可能与受感染的活性小龙虾引起的肠道炎症有关,同时在用三苯基锡(TPT)诱导后的鱼类肠道中叉状棍状厌氧菌属的相对丰度显著增加[44]。土孢杆菌属在成年猪的回肠中发现[45],是消化链球菌科的一员,在哺乳猪和断奶猪的肠道中大量存在[46]。研究表明,土孢杆菌属在每个生长阶段都是纤维降解细菌,会随着饲料中的纤维含量增加而呈现丰度上升趋势[47-48]。丹毒丝菌科可能通过三乙胺N-氧化物的产生促进胆固醇的积累,丹毒丝菌科相对丰度的减少可能有利于脂质代谢[49]。此外,丹毒丝菌科还是一个促进肠道炎症的细菌家族,其相对丰度与肿瘤重量呈正相关[50]。粪杆菌属的相对丰度增加和丹毒丝菌科的相对丰度的减少可能与15%PCEL组血清IL-10含量上升、免疫性能提升有关。
在本试验中,15%PCEL组的粪便菌群中光岗菌属、魏斯氏菌属、毛螺菌科ND3007群、巨球型菌属、霍尔德曼氏菌属、经黏液真杆菌属和粪杆菌属等具有抗炎或者产SCAFs特性的菌群丰度的增加和致病菌狭义梭菌属1相对丰度的降低可能在一定程度上提升了猪的肠道健康,15%PCEL组猪的ADG显著升高,F/G显著降低可能就与此有关。相较于5%CEL组而言,15%PCEL组对肠道微生物的影响以及对猪肠道健康程度的提升可能更显著,原因可能在于,油莎豆在膨化过程中杀死了油莎豆中潜在的致病菌,而且熟化后的油莎豆可能更容易消化吸收,减少了肠胃系统消化吸收的压力,从而导致15%PCEL组有着更加稳定且健康的肠道菌群。

4 结论

① 饲粮中添加5%油莎豆可显著提升生长猪的机体总抗氧化能力和免疫能力。
② 饲粮中添加15%膨化油莎豆可显著提高猪的生长性能和机体总抗氧化能力。
③ 饲粮中添加5%油莎豆和添加15%膨化油莎豆均能显著调节猪的肠道菌群,提升猪肠道健康,其中添加15%膨化油莎豆对猪肠道健康的提升更加显著。
[1]
郭婷婷, 万楚筠, 黄凤洪, 等. 油莎豆主要营养成分及生理功能研究进展[J]. 中国油料作物学报, 2021, 43(6):1174-1180.

DOI

GUO T T, WAN C J, HUANG F H, et al. Research progress on the main nutritional components and physiological functions of tiger nut (Cyperus esculentus L.)[J]. Chinese Journal of Oil Crop Sciences, 2021, 43(6):1174-1180. (in Chinese)

[2]
刘玉兰, 王小宁, 舒垚, 等. 不同产地油莎豆性状及组成分析研究[J]. 中国油脂, 2020, 45(8):125-129.

LIU Y L, WANG X N, SHU Y, et al. Character and composition of Cyperus esculentus from different origins[J]. China Oils and Fats, 2020, 45(8):125-129. (in Chinese)

[3]
VEGA-MORALES T, MATEOS-DÍAZ C, PÉREZ-MACHÍN R, et al. Chemical composition of industrially and laboratory processed Cyperus esculentus rhizomes[J]. Food Chemistry, 2019, 297:124896.

DOI

[4]
师煌伟, 王力, 王璐, 等. 油莎豆粕的营养价值及其替代部分玉米对生长猪的饲喂效果研究[J]. 中国畜牧杂志, 2022, 58(1):178-182.

SHI H W, WANG L, WANG L, et al. Nutritional value of Cyperus esculentus meal and the effect of its different replacement levels with corn on growing pigs[J]. Chinese Journal of Animal Science, 2022, 58(1):178-182. (in Chinese)

[5]
UKPABI U, MBACHU C L, IGBOEGWU C M. Growth performance,carcass and organ characteristics of grower pigs fed varying levels of tigernut (Cyperus esculentus) seed meal[J]. Nigerian Journal of Animal Science, 2019, 21(1):214-221.

[6]
黄思. 油莎豆茎尖培养体系的构建及高效栽培技术研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2015.

HUANG S. The construction of stem tip culture system and a study of efficient cultivation technology in CHUFA[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2015. (in Chinese)

[7]
ADAMA K, AFOLAYAN M, OBERAFO A, et al. Isolation and physicochemical characterization of tigernut (Cyperus esculentus) starch as a potential industrial biomaterial[J]. International Journal of Materials Science and Applications, 2014, 3(2):37-41.

[8]
晏小欣. 油莎豆油, 淀粉的制备关键技术及性质的研究[D]. 硕士学位论文. 乌鲁木齐: 新疆大学, 2011.

YAN X X. The study on preparation key technologiesand the properties of Cypems esculentus oiland starch[D]. Master’s Thesis. Urumqi: Xinjiang University, 2011. (in Chinese)

[9]
SÁNCHEZ-ZAPATA E, FERNÁNDEZ-LÓPEZ J, ANGEL PÉREZ-ALVAREZ J. Tiger nut (Cyperus esculentus) commercialization:health aspects,composition,properties,and food applications[J]. Comprehensive Reviews in Food Science and Food Safety, 2012, 11(4):366-377.

DOI

[10]
CECIL J E, FRANCIS J, READ N W. Comparison of the effects of a high-fat and high-carbohydrate soup delivered orally and intragastrically on gastric emptying,appetite,and eating behaviour[J]. Physiology & Behavior, 1999, 67(2):299-306.

DOI

[11]
CERA K R, MAHAN D C, REINHART G A. Evaluation of various extracted vegetable oils,roasted soybeans,medium-chain triglyceride and an animal-vegetable fat blend for postweaning swine[J]. Journal of Animal Science, 1990, 68(9):2756-2765.

DOI

[12]
JØRGENSEN H, FERNÁNDEZ J A. Chemical composition and energy value of different fat sources for growing pigs[J]. Acta Agriculturae Scandinavica,Section A-Animal Science, 2000, 50(3):129-136.

[13]
HUANG G L, MEI X Y, HU J C. The antioxidant activities of natural polysaccharides[J]. Current Drug Targets, 2017, 18(11):1296-1300.

DOI PMID

[14]
高歌, 李彦品, 殷成港, 等. 低蛋白低豆粕饲粮中添加大豆黄酮对生长猪生长性能、抗氧化能力和养分表观消化率的影响[J]. 中国畜牧杂志, 2023, 59(6):263-268.

GAO G, LI Y P, YIN C G, et al. The effect of adding daidzein to low protein and low soybean meal diet on growth performance,antioxidant capacity,and nutrient apparent digestibility of growing pigs[J]. Chinese Journal of Animal Science, 2023, 59(6):263-268. (in Chinese)

[15]
MOHAMMED A, SANUSI K, HARUNA U Y. Tiger nut (Cyperus esculentus L.) and date palm (Phoenix dactylifera L.) fruit blend mitigates hyperglycemia,insulin resistance and oxidative complications in type-2 diabetes models[J]. Journal of Food Biochemistry, 2022, 46(12):e14423.

[16]
ZHANG S G, LI P Z, WEI Z M, et al. Cyperus (Cyperus esculentus L.):a review of its compositions,medical efficacy,antibacterial activity and allelopathic potentials[J]. Plants (Basel,Switzerland), 2022, 11(9):1127.

[17]
YU Y, LU X, ZHANG T, et al. Tiger nut (Cyperus esculentus L.):nutrition,processing,function and applications[J]. Foods, 2022, 11(4):601.

DOI

[18]
刘辉, 季海峰, 王四新, 等. 益生菌对生长猪生长性能、粪便微生物数量、养分表观消化率和血清免疫指标的影响[J]. 动物营养学报, 2015, 27(3):829-837.

LIU H, JI H F, WANG S X, et al. Effects of probiotics on growth performance,faecal microflora number,nutrient apparent digestibility and serum immune indices of growing pigs[J]. Chinese Journal of Animal Nutrition, 2015, 27(3):829-837. (in Chinese)

[19]
NALEWAJSKA M, GURAZDA K, STYCZYŃSKA-KOWALSKA E, et al. The role of MicroRNAs in selected forms of glomerulonephritis[J]. International Journal of Molecular Sciences, 2019, 20(20):5050.

DOI

[20]
MOHIB K, ROTHSTEIN D M, DING Q. Characterization and activity of TIM-1 and IL-10-reporter expressing regulatory B cells[J]. Methods in Molecular Biology, 2021, 2270:179-202.

DOI PMID

[21]
UDEFA A L, AMAMA E A, ARCHIBONG E A, et al. Antioxidant,anti-inflammatory and anti-apoptotic effects of hydro-ethanolic extract of Cyperus esculentus L. (tigernut) on lead acetate-induced testicular dysfunction in Wistar rats[J]. Biomedicine & Pharmacotherapy, 2020, 129:110491.

DOI

[22]
周根来, 陶勇, 倪黎纲, 等. 日粮营养水平对育肥苏姜猪血清生化指标和肉质相关基因的影响[J]. 福建农业学报, 2019, 34(6):668-677.

ZHOU G L, TAO Y, NI L G, et al. Serum biochemistry and expression of carcass trait-related gene of Sujiang pigs as affected by dietary makeup at final growth stage[J]. Fujian Journal of Agricultural Sciences, 2019, 34(6):668-677. (in Chinese)

[23]
SHARMAN M J, FERNANDEZ M L, ZERN T L, et al. Replacing dietary carbohydrate with protein and fat decreases the concentrations of small LDL and the inflammatory response induced by atherogenic diets in the Guinea pig[J]. The Journal of Nutritional Biochemistry, 2008, 19(11):732-738.

DOI

[24]
LIN C H, WAN J J, SU Y, et al. Effects of early intervention with maternal fecal microbiota and antibiotics on the gut microbiota and metabolite profiles of piglets[J]. Metabolites, 2018, 8(4):89.

DOI

[25]
FLINT H J, SCOTT K P, LOUIS P, et al. The role of the gut microbiota in nutrition and health[J]. Gastroenterology & Hepatology, 2012, 9(10):577-589.

[26]
PAJARILLO E A B, CHAE J P, BALOLONG M P, et al. Effects of probiotic Enterococcus faecium NCIMB 11181 administration on swine fecal microbiota diversity and composition using barcoded pyrosequencing[J]. Animal Feed Science and Technology, 2015, 201:80-88.

DOI

[27]
MENG Q W, SUN S S, LUO Z, et al. Maternal dietary resveratrol alleviates weaning-associated diarrhea and intestinal inflammation in pig offspring by changing intestinal gene expression and microbiota[J]. Food & Function, 2019, 10(9):5626-5643.

[28]
孙东方, 王晨, 刘颖, 等. 双乙酸钠对小鼠肠道菌群结构和功能的影响[J]. 微生物学杂志, 2020, 40(2):57-65.

SUN D F, WANG C, LIU Y, et al. Effects of sodium diacetate on the structure and function of mice intestines microbial community[J]. Journal of Microbiology, 2020, 40(2):57-65. (in Chinese)

[29]
NAKAYAMA J, ZHANG H P, LEE Y K. Asian gut microbiome[J]. Science Bulletin, 2017, 62(12):816-817.

DOI PMID

[30]
SKRABAN J, DZEROSKI S, ZENKO B, et al. Changes of poultry faecal microbiota associated with Clostridium difficile colonisation[J]. Veterinary Microbiology, 2013, 165(3/4):416-424.

DOI

[31]
TSAI C Y, LU H C, CHOU Y H, et al. Gut microbial signatures for glycemic responses of GLP-1 receptor agonists in type 2 diabetic patients: a pilot study[J]. Frontiers in Endocrinology, 2021, 12:814770.

DOI

[32]
DAI Z L, ZHANG J, WU G Y, et al. Utilization of amino acids by bacteria from the pig small intestine[J]. Amino Acids, 2010, 39(5):1201-1215.

DOI

[33]
TEIXEIRA C G, FUSIEGER A, MILIÃO G L, et al. Weissella:an emerging bacterium with promising health benefits[J]. Probiotics and Antimicrobial Proteins, 2021, 13(4):915-925.

DOI

[34]
ROMANÍ-PÉREZ M, LÓPEZ-ALMELA I, BULLICH-VILARRUBIAS C, et al. Holdemanella biformis improves glucose tolerance and regulates GLP-1 signaling in obese mice[J]. FASEB Journal, 2021, 35(7):e21734.

[35]
CAREY M A, MEDLOCK G L, ALAM M, et al. Megasphaera in the stool microbiota is negatively associated with diarrheal cryptosporidiosis[J]. Clinical Infectious Diseases, 2021, 73(6):e1242-e1251.

DOI

[36]
CHEN L M, SHEN Y Z, WANG C, et al. Megasphaera elsdenii lactate degradation pattern shifts in rumen acidosis models[J]. Frontiers in Microbiology, 2019, 10:162.

DOI

[37]
LI Z W, LI Z P, ZHU L Y, et al. Effects of xylo-oligosaccharide on the gut microbiota of patients with ulcerative colitis in clinical remission[J]. Frontiers in Nutrition, 2021, 8:778542.

DOI

[38]
BENÍTEZ-PÁEZ A, GÓMEZ DEL PUGAR E M, LÓPEZ-ALMELA I, et al. Depletion of blautia species in the microbiota of obese children relates to intestinal inflammation and metabolic phenotype worsening[J]. mSystems, 2020, 5(2):e00857-19.

[39]
LI H B, XU M L, XU X D, et al. Faecalibacterium prausnitzii Attenuates CKD via butyrate-renal GPR43 axis[J]. Circulation Research, 2022, 131(9):e120-e134.

[40]
XU J H, LIANG R R, ZHANG W, et al. Faecalibacterium prausnitzii-derived microbial anti-inflammatory molecule regulates intestinal integrity in diabetes mellitus mice via modulating tight junction protein expression[J]. Journal of Diabetes, 2020, 12(3):224-236.

DOI PMID

[41]
YANG W Y, LEE Y J, LU H, et al. Analysis of gut microbiota and the effect of lauric acid against necrotic enteritis in Clostridium perfringens and Eimeria side-by-side challenge model[J]. PLoS One, 2019, 14(5):e0205784.

DOI

[42]
SHANG Q H, LIU S J, LIU H S, et al. Impact of sugar beet pulp and wheat bran on serum biochemical profile inflammatory responses and gut microbiota in sows during late gestation and lactation[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):54.

DOI

[43]
CHEN H L, WANG Y J, ZHANG J, et al. Intestinal microbiota in white spot syndrome virus infected red swamp crayfish (Procambarus clarkii) at different health statuses[J]. Aquaculture, 2021, 542:736826.

DOI

[44]
MA J A, WANG B K, PU C C, et al. Protective effects of sulforaphane on inflammation, oxidative stress and intestinal dysbacteriosis induced by triphenyltin in Cyprinus carpio haematopterus[J]. Fish & Shellfish Immunology, 2023, 142:109135.

[45]
QUAN J P, CAI G Y, YE J, et al. A global comparison of the microbiome compositions of three gut locations in commercial pigs with extreme feed conversion ratios[J]. Scientific Reports, 2018, 8(1):4536.

DOI PMID

[46]
LI K F, XIAO Y P, CHEN J C, et al. Microbial composition in different gut locations of weaning piglets receiving antibiotics[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(1):78-84.

DOI PMID

[47]
MOYA A, FERRER M. Functional redundancy-induced stability of gut microbiota subjected to disturbance[J]. Trends in Microbiology, 2016, 24(5):402-413.

DOI PMID

[48]
LA ROSA S L, LETH M L, MICHALAK L, et al. The human gut Firmicute Roseburia intestinalis is a primary degrader of dietary β-mannans[J]. Nature Communications, 2019, 10(1):905.

DOI PMID

[49]
ZHANG Y X, GU Y Y, CHEN Y H, et al. Dingxin recipe Ⅳ attenuates atherosclerosis by regulating lipid metabolism through LXR-α/SREBP1 pathway and modulating the gut microbiota in ApoE-/- mice fed with HFD[J]. Journal of Ethnopharmacology, 2021, 266:113436.

DOI

[50]
XIONG Y, ZHENG X Y, XIE Y M, et al. Effect of cyasterone on intestinal flora in a (BRAF) V600E-mutant mouse model of colorectal cancer[J]. Die Pharmazie, 2022, 77(10):291-294.

Outlines

/