RESEARCH PAPER

Effects of Fermented Sugarcane Bagasse on Growth Performance, Nutrient Apparent Digestibility, Rumen Fermentation Characteristics and Rumen Microflora of Beef Cattle

  • LAI Anqiang , 1, 2 ,
  • JIN Yadong 1, 2 ,
  • CHEN Binlong 1, 2 ,
  • WANG Zhongcheng 1, 2 ,
  • HUANG Yanru 1 ,
  • LUO Haocen 1 ,
  • DENG Kaimei 3 ,
  • ZHANG Yi , 1, 2, *
Expand
  • 1 College of Animal Science, Xichang University, Xichang 615000, China
  • 2 Sichuan Local Characteristic Goat Laboratory, Xichang 615000, China
  • 3 Rural Industrial Technology Service Center of Ningnan County, Ningnan 615400, China
*professor, E-mail:

Received date: 2023-09-26

  Online published: 2024-03-13

Abstract

The experiment was conducted to explore the effects of replacing sugarcane bagasse with fermented sugarcane bagasse on growth performance, nutrient apparent digestibility, rumen fermentation characteristics and rumen microflora of beef cattle. A total of 14 healthy Simmental crossbred cattle with similar body weight of (363.84±9.11) kg were randomly divided into two groups with 7 replicates per group and 1 cattle per replicate. Beef cattle in control group (CON group) was fed a basal diet containing 20% sugarcane bagasse, and those in fermented sugarcane bagasse group (FSB group) was fed a diet with 20% fermented sugarcane bagasse replacing sugarcane bagasse. Test period was 87 d, the preliminary trial period was 7 d, and the experiment lasted for 80 days. The results showed as follows: there was no significant difference in final body weight and dry matter intake between the two groups (P>0.05), but the average daily gain (ADG) of cattle in the FSB group was significantly higher than that in the CON group (P<0.05), and ratio of feed to gain was significantly lower than that in the CON group (P<0.05). The apparent digestibility of dry matter, organic matter, crude protein and neutral detergent fiber in the FSB group was significantly higher than that in the CON group (P<0.05). The contents of ammonia nitrogen, microbial protein, propionic acid, isobutyric acid, butyric acid and total volatile fatty acid in the rumen of cattle in the FSB group were significantly higher than those in the CON group (P<0.05).The relative abundance of the Rikenellaceae_RC9_gut_group and Prevotellaceae_UCG-003 in the FSB group was significantly lower than that in the CON group (P<0.05), but the relative abundance of Succiniclasticum in the FSB group was significantly higher than that in the CON group (P<0.05). Tax4Fun gene function prediction showed that the relative abundance of amino acid metabolism, nucleotide metabolism, and exogenous biodegradation and metabolic pathways in the FSB group was significantly higher than that in the CON group (P<0.05). In conclusion, adding 20% fermented sugarcane bagasse which is fermented by bacteria and enzyme can change the rumen microflora structure, and can improve the growth performance of beef cattle by increasing the contents of the rumen volatile fatty acid and microbial protein and the apparent digestibility of nutrients.

Cite this article

LAI Anqiang , JIN Yadong , CHEN Binlong , WANG Zhongcheng , HUANG Yanru , LUO Haocen , DENG Kaimei , ZHANG Yi . Effects of Fermented Sugarcane Bagasse on Growth Performance, Nutrient Apparent Digestibility, Rumen Fermentation Characteristics and Rumen Microflora of Beef Cattle[J]. Chinese Journal of Animal Nutrition, 2024 , 36(3) : 1685 -1697 . DOI: 10.12418/CJAN2024.148

甘蔗渣是甘蔗制糖的主要副产物,是一种重要的可再生生物资源。中国每年甘蔗渣的产量在2 000万t左右[1],但甘蔗渣多数被作为生物燃料,未充分发挥其价值。甘蔗的收获季节通常在每年的12月至翌年3—4月,此时是南方冬、春季节缺草期。如对甘蔗渣进行一定的处理,提高其饲喂价值,可有效缓解南方冬、春草食动物饲草料供应短缺的问题。甘蔗渣的主要成分为纤维素、半纤维素和酸性洗涤木质素(ADL),而粗蛋白质(CP)和粗脂肪(EE)含量较低[2-4]。因甘蔗渣ADL含量较高,同时ADL与纤维素、半纤维素之间相互混杂和交联[4-6],限制了动物对营养物质的消化利用。体外瘤胃发酵甘蔗渣测定其降解率表明其48 h的干物质(DM)降解率仅有23.90%[7]。研究表明,对甘蔗渣进行物理、化学和微生物方法处理后可提高其饲喂价值[8-9]。3种方案中最常用的是微生物处理法。通过微生物发酵不仅可以降低劣质粗饲料中纤维素、半纤维素和ADL的含量[9],还可以增加瘤胃纤维素降解菌的丰度[10],增加饲料的适口性、营养价值和贮存时间。生物发酵常用菌种有乳酸菌、酵母菌、黑曲霉菌、芽孢杆菌和白腐菌等,这些菌种的联合使用可提高发酵饲料的营养价值和改善动物的生长性能[11-13]。菌酶协同发酵具有发酵效率高、发酵周期短,通过微生物及其代谢产物的作用可以改善动物肠道微生态环境,增强动物对疾病的抵抗能力[13-14]。因此,本研究以酿酒酵母菌、乳酸杆菌、黑曲霉菌和米曲霉菌配以纤维素酶进行菌酶协同发酵的甘蔗渣为研究材料,研究发酵甘蔗渣对肉牛生长性能、养分表观消化率、瘤胃发酵特性和瘤胃菌群的影响,以期为甘蔗渣高效利用提供新的方案。

1 材料与方法

1.1 试验材料

试验所用甘蔗渣购于四川省凉山州宁南县榨糖厂;发酵甘蔗渣为用菌和酶协同发酵所得。将甘蔗渣用牧草切割机粉碎后过2 cm筛。按DM计算,添加0.3%菌种组合[菌种组合以酿酒酵母菌(含量≥4×10⁸ CFU/g)、黑曲霉菌(含量≥2×108 CFU/g)、米曲霉菌(含量≥2×108 CFU/g)和乳酸杆菌(含量≥2×108 CFU/g)按2∶1∶1∶1配制]和0.1%纤维素酶(酶活性≥2×104 U/g),同时以DM计算添加0.5%尿素,通过饮用水将甘蔗渣底物水分调节到(38±1)%,甘蔗渣在温度为20~30 ℃的环境中,用200 L的发酵桶密封,依靠发酵桶内的空气进行先有氧再厌氧发酵96 h,即得到发酵甘蔗渣。感官评价结果显示,发酵甘蔗渣具有明显的芳香果味,无霉变,颜色与发酵前相比没有明显变化。甘蔗渣和发酵甘蔗渣营养水平和pH见表1
表1 甘蔗渣和发酵甘蔗渣营养水平和pH(干物质基础)

Table 1 Nutrient levels and pH of sugarcane bagasse and fermented sugarcane bagasse (DM basis)

项目
Items
甘蔗渣
Sugarcane bagasse
发酵甘蔗渣
Fermented sugarcane bagasse
粗蛋白质 CP/% 2.41 2.92
粗脂肪 EE/% 0.47 0.51
粗灰分 Ash/% 3.76 4.04
钙 Ca/% 0.13 0.11
总磷 TP/% 0.02 0.06
粗纤维 CF/% 43.46 32.99
中性洗涤纤维 NDF/% 81.83 55.34
酸性洗涤纤维 ADF/% 54.77 39.30
酸性洗涤木质素 ADL/% 13.50 10.71
可溶性碳水化合物 Water soluble carbohydrate/% 4.45 7.02
pH 6.92 5.18

1.2 试验动物与试验设计

试验采用单因素随机设计,选用14头体况良好、体重[(363.84±9.11) kg]相近的西门塔尔杂交公牛,随机分成2组,每组7个重复,每个重复1头牛。对照组(CON组)饲喂含20%甘蔗渣的基础饲粮;发酵甘蔗渣组(FSB组)饲喂用20%发酵甘蔗渣替代甘蔗渣的饲粮。试验期为87 d,其中预试期7 d,正试期80 d。饲粮参照《肉牛饲养标准》(NY/T 815—2004)设计,饲粮为全混合日粮(TMR),饲粮组成及营养水平见表2
表2 饲粮组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of diets (DM basis) %

项目
Items
含量 Content
CON组 CON group FSB组 FSB group
原料 Ingredients
玉米 Corn 23.05 23.05
豆粕 Soybean meal 7.00 7.00
喷浆玉米皮 Corn gluten feed 0.50 0.50
棉籽粕 Cottonseed meal 1.50 1.50
缓释尿素 Slow-released urea 0.35 0.35
玉米青贮 Corn silage 45.00 45.00
甘蔗渣 Sugarcane bagasse 20.00
发酵甘蔗渣 Fermented sugarcane bagasse 20.00
石粉 Limestone 0.90 0.90
磷酸氢钙 CaPHO4 0.20 0.20
氧化镁 MgO 0.20 0.20
食盐 NaCl 0.32 0.32
小苏打 NaHCO3 0.48 0.48
预混料 Premix1) 0.50 0.50
合计 Total 100.00 100.00
营养水平 Nutrient levels2)
综合净能 NEmf/(MJ/kg) 9.07 9.15
粗蛋白质 CP 10.65 10.61
粗脂肪 EE 2.53 2.55
中性洗涤纤维 NDF 48.20 43.09
酸性洗涤纤维 ADF 26.35 23.86
钙 Ca 0.47 0.48
总磷 TP 0.30 0.31

1)每千克预混料含有One kg of premix contained the following:VA 1 600 000 IU,VD3 60 000 IU,VE 6 000 IU,Cu 2 g,Fe 12 g,Mn 8 g,Zn 8 g,Se 60 mg,I 120 mg,Co 40 mg。

2)综合净能为计算值,其他营养水平为实测值。NEmf was a calculated value, while the other nutrient levels were measured values.

1.3 饲养管理

试验于2022年1月至2022年4月在西昌市黄水镇陈启红养牛合作社进行。试验期间,肉牛单栏饲养,每天投料2次(08:00、17:00),自由采食和饮水,每日清晨饲喂肉牛后清扫圈舍,定期对牛舍进行消毒。

1.4 测定指标和方法

1.4.1 饲粮养分含量测定

饲粮DM、CP、EE、粗灰分(Ash)、钙(Ca)和总磷(TP)含量参照AOAC (1995)[15]的方法进行测定。参考Van Soest等[16]的方法测定甘蔗渣和发酵甘蔗渣样品的粗纤维(CF)、中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)的含量。

1.4.2 生长性能测定

在正试期开始和结束时,于晨饲前采用地磅称量每头牛的初始体重和终末体重,以计算平均日增重(ADG)。试验期内,每天记录每头试验牛只采食量,试验结束后计算得出肉牛干物质采食量(DMI)。利用ADG和DMI计算每头牛的料重比(F/G,F/G=DMI/ADG)。

1.4.3 养分表观消化率

试验采用酸不溶灰分(AIA)法测定饲粮养分表观消化率。饲养结束前10 d进行粪样采集工作(粪样连续采集5 d),每头牛每天分别在09:00和14:00通过直肠各采集新鲜粪样100 g,共计200 g新鲜粪样,然后加入20 mL浓度为10%的硫酸进行固氮后,-20 ℃保存待测。粪样中DM、CP、EE、Ash、NDF和ADF含量的测定方法同1.4.1。AIA含量参照Van Keulen等[17]所述方法进行测定。饲粮养分表观消化率计算公式如下:
饲粮养分表观消化率(%)=100-100×(a×B/A×b)。
式中:A为饲粮中该养分含量(%);a为粪样中该养分含量(%);B为饲粮中AIA的含量(%);b为粪样中AIA含量(%)。

1.4.4 瘤胃发酵参数测定

试验结束当天,在试验肉牛晨饲后4 h用瘤胃液采集器经口腔抽取瘤胃液,使用BU-7型酸度计现场测定瘤胃液pH。随后用4层棉纱布过滤,分装于10 mL的离心管中,-80 ℃保存待测。瘤胃氨态氮(NH3-N)含量参照Chaney等[18]所述方法进行测定。菌体蛋白(MCP)含量参照Verdouw等[19]所述方法进行测定。采用气相色谱仪(GC-2010 Plus,日本岛津)测定挥发性脂肪酸(VFA)含量,样品前处理(全程在冰上进行)步骤如下:吸取上清液分装于2 mL离心管中;10 000 r/min、4 ℃离心10 min;收集上清液,每个样品至少2 mL;吸取样品滤液1.280 mL、内标液0.240 mL、偏磷酸0.480 mL至2 mL离心管中混匀,冰上静置30 min;将样品混合液于10 000 r/min、4 ℃离心10 min后取上清液,经0.45 μm滤膜过滤于样品瓶中,全自动进样器进样检测。采用外标法进行分析,乙酸、丙酸、丁酸、戊酸、异丁酸和异戊酸(98.00%色谱纯)均购于贵州迪大科技有限责任公司。色谱条件:色谱柱SH-Rtx-WAX(30.00 m×0.25 mm×0.25 μm);载气为高纯氮气,分流比为50∶1。测定条件:采用程序升温,柱温初始温度为100 ℃,保持2 min;以5 ℃/min升温至150 ℃,保持2 min,火焰氢离子检测器(FID)温度为240 ℃。气化室温度为220 ℃,进样量为1 μL;以巴豆酸作为内标物。

1.4.5 瘤胃菌群测定

瘤胃液样品送广州基迪奥生物科技有限公司测定瘤胃菌群。采用微生物提取DNA试剂盒提取DNA后,用带有barcode的特异引物扩增16S rDNA V3~V4和V4的保守区,16S rDNA V3~V4特异引物序列为341F(5'-CCTAGGGNGGCWCAG-3')和806R(5'-GGACTACHVGGGTATCTAAT-3'),16S rDNA V4特异引物序列为515F(5'-GTGYCAGCMGCCCGGTAA-3')和806R(5'-GGACTACNVGGGTWTCTAAT-3'),然后PCR扩增产物切胶回收,用QuantiFluorTM荧光计进行定量。将纯化的扩增产物进行等量混合,连接测序接头,构建测序文库,Illumina PE250上机测序。
采用Fastp软件进行过滤,采用Flash软件对高通量测序的片段进行拼接,并用QIME进行质控。使用UCHIME算法和Gold数据库去除嵌合体,得到有限片段(effective reads)。基于USEARCH(http://drive.com/uparse/)软件,用UPARSE算法在97%的一致性水平上进行操作分类单元(OTU)聚类,选出OTU中出现频率最高的序列作为OTU的代表序列。得到的下机数据经过对各样本数据进行均一化处理后,进行Alpha多样性、Beta多样性分类和Bugbase表型分类预测。

1.5 数据处理与统计方法

所有结果均用平均值±标准差表示。生长性能、瘤胃发酵参数、养分表观消化率、OTU数、Alpha多样性、相对丰度大于等于0.1%的前12个门水平和前16个属水平的相对丰度用SAS 9.2重复测量的完全随机区组设计方法进行分析。瘤胃发酵参数与属水平相对丰度大于1%的前16个瘤胃细菌属间的相关性用斯皮尔曼相关系数进行分析。利用LEFse软件对线性判别(LDA)分析效应大小进行分析,LDA评分阈值选择大于4。使用Tax4Fun对16S序列的SILVA注释的2个组进行KEGG功能预测,每个组的丰度表由广州基迪奥生物科技有限公司提供和分析。P<0.05作为判断差异显著的标准。

2 结果

2.1 饲喂发酵甘蔗渣对肉牛生长性能的影响

表3可知,2组肉牛的初始体重、终末体重和DMI均无显著差异(P>0.05)。FSB组肉牛的ADG显著高于CON组(P<0.05)。FSB组F/G显著低于CON组(P<0.05)。
表3 饲喂发酵甘蔗渣对肉牛生长性能的影响

Table 3 Effects of feeding fermented sugarcane bagasse on growth performance of beef cattle

项目
Items
对照组
CON group
发酵甘蔗渣组
FSB group
P
P-value
初始体重 Initial BW/kg 363.59±10.63 364.08±8.96 0.926
终末体重 Final BW/kg 430.77±10.54 439.21±8.60 0.125
干物质采食量 DMI/kg 8.78±0.34 9.06±2.96 0.104
平均日增重 ADG/kg 0.84±0.04b 0.94±0.02a <0.001
料重比 F/G 10.43±0.18a 9.65±0.19b <0.001

同行数据肩标不同小写字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 饲喂发酵甘蔗渣对肉牛养分表观消化率的影响

表4可知,FSB组肉牛的DM、有机物(OM)、CP和NDF的表观消化率均显著高于CON组(P<0.05)。FSB组肉牛的ADF的表观消化率有高于CON组的趋势(P=0.062)。
表4 饲喂发酵甘蔗渣对肉牛养分表观消化率的影响

Table 4 Effects of feeding fermented sugarcane bagasse on apparent digestibility of nutrients of beef cattle %

项目
Items
对照组
CON group
发酵甘蔗渣组
FSB group
P
P-value
干物质 DM 55.51±3.46b 60.61±2.93a 0.012
有机物 OM 56.35±3.52b 61.43±2.96a 0.019
粗蛋白质 CP 39.87±2.67b 51.53±3.92a <0.001
粗脂肪 EE 69.09±4.75 70.95±3.53 0.421
中性洗涤纤维 NDF 43.63±2.39b 46.96±3.57a 0.026
酸性洗涤纤维 ADF 38.33±2.66 41.49±1.90 0.062

2.3 饲喂发酵甘蔗渣对肉牛瘤胃发酵特性的影响

表5可知,FSB组肉牛瘤胃液中NH3-N、MCP、丙酸、异丁酸、丁酸和总挥发性脂肪酸含量均显著高于CON组(P<0.05)。
表5 饲喂发酵甘蔗渣对肉牛瘤胃发酵特性的影响

Table 5 Effects of feeding fermented sugarcane bagasse on rumen fermentation characteristics of beef cattle

项目
Items
对照组
CON group
发酵甘蔗渣组
FSB group
P
P-value
pH 6.48±0.05 6.43±0.09 0.404
氨态氮 NH3-N/(mg/dL) 11.97±0.50b 13.02±0.62a 0.038
菌体蛋白 MCP/(mg/mL) 5.35±0.42b 6.03±0.21a 0.028
乙酸 Acetic acid/(mmol/L) 49.89±1.56 55.49±4.61 0.061
丙酸 Propionic acid/(mmol/L) 11.53±0.41b 12.74±0.87a 0.046
乙酸/丙酸 Acetic acid/propionic acid 4.32±0.07 4.23±0.45 0.841
异丁酸 Isobutyric acid/(mmol/L) 0.33±0.04b 0.39±0.02a 0.035
丁酸 Butyric acid/(mmol/L) 5.18±0.79b 6.63±0.55a 0.024
异戊酸 Isopentanoic acid/(mmol/L) 0.47±0.04 0.50±0.10 0.683
戊酸 Pentanoic acid/(mmol/L) 0.43±0.07 0.43±0.09 0.983
总挥发性脂肪酸 TVFA/(mmol/L) 67.84±2.21b 76.18±5.76a 0.035

2.4 饲喂发酵甘蔗渣对肉牛瘤胃细菌OTU数和Alpha多样性的影响

表6可知,FSB组OTU数、Shannon指数、Chao1指数和ACE指数显著低于CON组(P<0.05)。2组的覆盖率均达到98%以上,且无显著差异(P>0.05)。
表6 饲喂发酵甘蔗渣对肉牛瘤胃细菌OTU数和Alpha多样性的影响

Table 6 Effects of feeding fermented sugarcane bagasse on OTU number and Alpha diversity of rumen bacteria of beef cattle

项目
Items
对照组
CON group
发酵甘蔗渣组
FSB group
P
P-value
OTU数 OTU number 2 562.50±129.95a 2 140.00±130.09b 0.004
Shannon指数 Shannon index 8.59±0.22a 8.04±0.38b 0.047
Simpson指数 Simpson index 0.98±0.00 0.98±0.01 0.510
Chao1指数 Chao1 index 2 633.23±126.06a 2 206.40±130.54b 0.003
ACE指数 ACE index 2 734.71±128.62a 2 297.29±130.48b 0.003
覆盖率 Goods_coverage/% 98.93±0.06 99.03±0.10 0.130

2.5 饲喂发酵甘蔗渣对肉牛瘤胃门水平细菌相对丰度的影响

在门水平上,2组共检测到了12个相对丰度大于等于0.1%的菌门。由表7可知,FSB组变形菌门(Proteobacteria)相对丰度显著低于CON组(P<0.05),纤维杆菌门(Fibrobacteres)相对丰度显著高于CON组(P<0.05)。
表7 饲喂发酵甘蔗渣对肉牛瘤胃门水平细菌相对丰度的影响

Table 7 Effects of feeding fermented sugarcane bagasse on relative abundance of rumen bacteria at phylum level of beef cattle %

项目
Items
对照组
CON group
发酵甘蔗渣组
FSB group
P
P-value
厚壁菌门 Firmicutes 48.75±5.77 48.15±3.95 0.870
拟杆菌门 Bacteroidetes 37.84±7.04 34.91±5.25 0.529
广古菌门 Euryarchaeota 3.36±2.12 7.97±5.70 0.181
髌骨细菌门 Patescibacteria 2.16±0.38 1.68±0.33 0.105
放线菌门 Actinobacteria 0.45±0.20 0.61±0.27 0.389
变形菌门 Proteobacteria 1.29±0.15a 0.89±0.12b 0.005
螺旋体门 Spirochaetes 0.45±0.09 1.32±1.01 0.136
浮霉菌门 Planctomycetes 0.98±0.36 0.50±0.19 0.054
软壁菌门 Tenericutes 0.31±0.01 0.48±0.13 0.078
Kiritimatiellaeota 0.46±0.19 0.26±0.13 0.131
绿弯菌门 Chloroflexi 0.26±0.18 0.15±0.08 0.280
纤维杆菌门 Fibrobacteres 0.06±0.03b 0.14±0.06a 0.044

2.6 饲喂发酵甘蔗渣对肉牛瘤胃属水平细菌相对丰度的影响

在属水平上,2组共检测到了16个相对丰度大于1%的菌属。由表8可知,FSB组理研菌科_RC9_肠道群(Rikenellaceae_RC9_gut_group)和普雷沃氏菌科_UCG-003(Prevotellaceae_UCG-003)相对丰度均显著低于CON组(P<0.05)。FSB组解琥珀酸菌属(Succiniclasticum)相对丰度显著高于CON组(P<0.05)。
表8 饲喂发酵甘蔗渣对肉牛瘤胃属水平细菌相对丰度的影响

Table 8 Effects of feeding fermented sugarcane bagasse on relative abundance of rumen bacteria at genus level of beef cattle %

项目
Items
对照组
CON group
发酵甘蔗渣组
FSB group
P
P-value
克里斯腾森菌科_R-7_群 Christensenellaceae_R-7_group 13.43±3.56 9.42±0.46 0.108
普雷沃氏菌属_1 Prevotella_1 8.84±3.73 10.35±2.71 0.535
理研菌科_RC9_肠道群 Rikenellaceae_RC9_gut_group 10.90±1.99a 6.40±0.46b 0.017
解琥珀酸菌属 Succiniclasticum 3.48±1.12b 8.60±0.63a <0.010
甲烷短杆菌属 Methanobrevibacter 3.31±2.11 7.86±5.64 0.209
瘤胃球菌属_2 Ruminococcus_2 3.57±1.13 2.81±0.89 0.336
瘤胃球菌科_NK4A214_群Ruminococcaceae_NK4A214_group 2.29±0.73 2.03±0.36 0.540
候选单细胞生糖菌属Candidatus_Saccharimonas 1.81±0.26 1.39±0.34 0.098
毛螺旋菌科_NK3A20_群 Lachnospiraceae_NK3A20_group 2.25±0.88 1.54±0.44 0.198
普雷沃氏菌科_UCG-003 Prevotellaceae_UCG-003 2.44±0.59a 1.50±0.24b 0.025
产乙酸糖发酵菌属 Saccharofermentans 2.12±0.52 1.45±0.27 0.064
瘤胃球菌科_UCG-014 Ruminococcaceae_UCG-014 1.45±0.28 1.31±0.36 0.574
普雷沃氏菌科_UCG-001 Prevotellaceae_UCG-001 1.37±0.21 1.30±0.50 0.817
丁酸弧菌属_2 Butyrivibrio_2 0.79±0.10 1.43±0.57 0.107
嗜果胶拟杆菌群 Bacteroides_pectinophilus_group 0.19±0.09 2.10±3.49 0.355
粪杆菌真核菌群Eubacterium_coprostanoligenes_group 1.32±0.18 0.96±0.24 0.051

2.7 指示物种分析

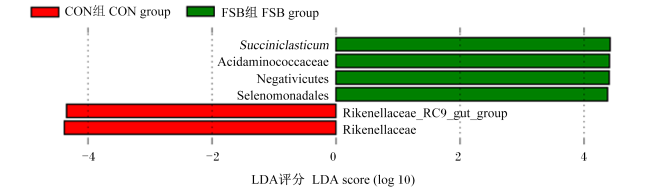
为了更好地了解CON组和FSB组之间的差异细菌,利用LEFse软件对组间差异物种进行分析。图1描述了主要微生物结构的代表性分类层级,标示了2组中有显著差异的物种分类层级。本研究中共检测到6个有显著差异的物种分类层级,其中CON组2个,FSB组4个。CON组理研菌科(Rikenellaceae)和理研菌科_RC9_肠道群的相对丰度较高。FSB组革兰氏阴性菌纲(Negativicutes)、月形单胞菌目(Selenomonadales)、氨基酸球菌科(Acidaminococcaceae)和解琥珀酸菌属的相对丰度较高。
图1 CON组和FSB组瘤胃细菌LDA效应大小分析(LEfSe)

Succiniclasticum:解琥珀酸菌属;Acidaminococcaceae:氨基酸球菌科;Negativicutes: 革兰氏阴性菌纲;Selenomonadales: 月形单胞菌目;Rikenellaceae_RC9_gut_group:理研菌科_RC9_肠道群;Rikenellaceae:理研菌科。

LDA评分代表了2组之间相对丰度的差异,指数倍数变化为10。The LDA score represents the difference in relative abundance between the two groups, with an exponential multiple change of 10.

Fig.1 Analysis of LDA effect size (LEfSe) of rumen bacteria in CON and FSB groups

2.8 瘤胃发酵参数与细菌属水平相对丰度之间的相关性

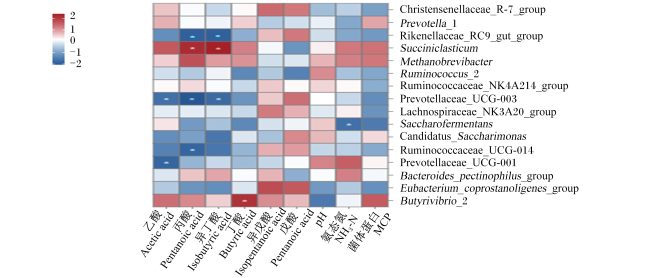
利用斯皮尔曼相关系数(r)分析瘤胃发酵参数与相对丰度大于1%的16种属水平瘤胃细菌相对丰度间的相关性。如图2所示,瘤胃乙酸含量与普雷沃氏菌科_UCG-001(Prevotellaceae_UCG-001)和普雷沃氏菌科_UCG-003相对丰度呈负相关(P<0.05)。丙酸含量与瘤胃球菌科_UCG-014(Ruminococcaceae_UCG-014)、普雷沃氏菌科_UCG-003和理研菌科_RC9_肠道群相对丰度呈负相关(P<0.05),但与解琥珀酸菌属相对丰度呈正相关(P<0.05)。异丁酸含量与普雷沃氏菌科_UCG-003和理研菌科_RC9_肠道群相对丰度呈负相关(P<0.05),但与瘤胃球菌科_UCG-014相对丰度呈正相关(P<0.05)。丁酸含量与丁酸弧菌属_2(Butyrivibrio_2)相对丰度呈正相关(P<0.05)。NH3-N含量与产乙酸糖发酵菌属(Saccharofermentans)相对丰度呈负相关(P<0.05)。
图2 饲喂甘蔗渣和发酵甘蔗的肉牛瘤胃菌群与发酵参数之间的相关性

Christensenellaceae_R-7_group:克里斯腾森菌科_R-7_群; Prevotella_1:普雷沃氏菌属_1; Rikenellaceae_RC9_gut_group:理研菌科_RC9_肠道群; Succiniclasticum:解琥珀酸菌属; Methanobrevibacter:甲烷短杆菌属;Ruminococcus_2:瘤胃球菌属_2; Ruminococcaceae_NK4A214_group:瘤胃球菌科_NK4A214_群; Prevotellaceae_UCG-003:普雷沃氏菌科_UCG-003;Saccharofermentans:产乙酸糖发酵菌属; Lachnospiraceae_NK3A20_group:毛螺旋菌科_NK3A20_群;Candidatus_Saccharimonas:候选单细胞生糖菌属;Ruminococcaceae_UCG-014:瘤胃球菌科_UCG-014; Prevotellaceae_UCG-001:普雷沃氏菌科_UCG-001;Bacteroides_pectinophilus_group:嗜果胶拟杆菌群;Butyrivibrio_2:丁酸弧菌属_2; Eubacterium_coprostanoligenes_group:粪杆菌真核菌群。

*表示显著相关(P<0.05)。红色和蓝色表示强相关,1和2表示正相关(深红色),-1和-2表示负相关(深蓝色),弱相关性由白色表示。* indicated a significant association (P<0.05). Red and blue represent strong correlations, 1 and 2 represent positive correlations (dark red), -1 and -2 represent negative correlations (dark blue), and weak correlations are represented by white.

Fig.2 Correlation between rumen microflora and fermentation parameters of beef cattle fed sugarcane bagasse and fermented sugarcane bagasse

2.9 瘤胃细菌功能预测

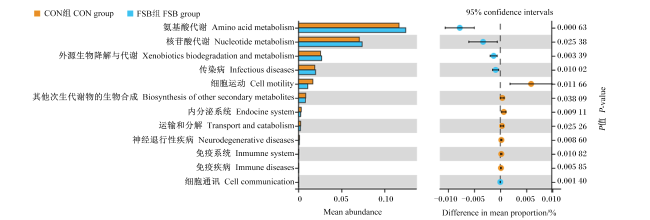
采用Tax4Fun基因功能评估方法预测CON组和FSB组肉牛瘤胃菌群的功能。如图3所示,Tax4Fun预测软件在2级KEGG途径中富集了12个存在显著差异的代谢途径(P<0.05)。值得引起我们关注的是,FSB组氨基酸代谢途径、核苷酸代谢途径和外源生物降解与代谢途径的相对丰度显著高于CON组(P<0.05)。
图3 饲喂发酵甘蔗渣对肉牛瘤胃菌群代谢途径的影响

Mean abundance:平均丰度;95% confidence intervals:95%置信区间;Difference in mean proportion:平均比例的差异。

Fig.3 Effects of feeding fermented sugarcane bagasse on metabolic pathways of rumen microflora of beef cattle

3 讨论

3.1 发酵甘蔗渣对肉牛生长性能和养分表观消化率的影响

感官评价结果表明,用菌酶协同发酵处理的甘蔗渣具有明显的芳香果味,无霉变,颜色与发酵前相比无明显变化,属于一级发酵料。与发酵前相比,发酵96 h后甘蔗渣的CF、NDF、ADF和ADL的含量分别下降了24.09%、32.37%、28.25%和20.67%,这可能与米曲霉菌、黑曲霉菌以及纤维素酶的添加有关,因为纤维素酶可降解植物细胞壁中的纤维素,而米曲霉菌[20]和黑曲霉菌[21]可分泌纤维素酶,增强对甘蔗渣中纤维素、半纤维素和ADL的降解作用。微生物发酵过程中,结构性碳水化合物的水解常伴随着可溶性碳水化合物(WSC)的产生,它是乳酸菌和其他微生物繁殖的能量来源[22]。与甘蔗渣相比,发酵后甘蔗渣中的WSC含量提高了57.75%,这可能与甘蔗渣发酵过程中米曲霉菌、黑曲霉菌以及纤维素酶的添加增强了纤维素的降解有关。pH是评定青贮发酵品质的重要指标,pH越低(<4.2),青贮发酵品质越好。本研究中,发酵甘蔗渣的pH为5.18,这可能与发酵时间较短、甘蔗渣缓冲能值较高和较低的WSC含量有关[23]。与发酵前相比,发酵后甘蔗渣的CP含量提高了21.16%,这可能与添加了一定的尿素有关[24]
甘蔗渣具有高纤维、高ADL的特点,在瘤胃内的降解效率较低。直接饲喂反刍动物会因大量纤维素和ADL在瘤胃内不能被快速消化而堆积,侵占反刍动物瘤胃的物理空间,导致动物饲料DM摄入量减少,最终导致其生长性能下降[25]。De Almeida等[25]研究表明,随着甘蔗渣添加量的增加,Girolando奶牛DMI、OM和总可消化养分摄入量呈线性降低。本研究也发现,与FSB组相比,饲喂未经处理的甘蔗渣会降低肉牛DMI、ADG,并提高F/G。
研究表明,使用酶菌协同发酵可以改善反刍动物粗饲料的质量,提高其适口性和消化率[9]。本研究发现,与未经处理的甘蔗渣相比,经混合益生菌和纤维素酶处理的发酵甘蔗渣的NDF、ADF和ADL的含量分别下降了24.09%、28.25%和20.67%,并且饲喂发酵甘蔗渣可显著提高肉牛DMI,降低F/G,ADG也显著提高。So等[14]的研究也表明,与未经处理的稻草相比,饲喂经乳杆菌TH14、纤维素酶和糖蜜处理的甘蔗渣发酵料可以显著提高泰国本土牛的DMI、ADG、饲料转化效率及养分表观消化率。ADL含量过高会降低饲料的适口性和瘤胃微生物对饲料的降解效率。纤维素酶可破坏甘蔗渣细胞壁与ADL的交联作用[26],增强瘤胃细菌对甘蔗渣的降解作用。本研究中,FSB组肉牛DM、OM和NDF的表观消化率显著高于CON组的结果也证明了这一点。养分表观消化率的增加表明食糜在瘤胃内的滞留时间减少[11],单位时间内瘤胃可容纳的营养物质更多,这可能是FSB组肉牛DMI、ADG高于CON组,F/G低于CON组的一个重要原因。此外,混合益生菌和纤维素酶的添加可提高发酵甘蔗渣的适口性和气味[14],这可能是引起FSB组肉牛DMI增加的另一因素。

3.2 发酵甘蔗渣对肉牛瘤胃发酵特性的影响

瘤胃pH是反映瘤胃发酵状况的重要指标之一,唾液作为瘤胃pH的缓冲液,其分泌量是影响瘤胃pH的重要因素,而咀嚼活动与唾液的产生量呈正相关。Goulart等[27]的研究表明,饲喂甘蔗渣可导致内洛尔牛反刍时间和咀嚼时间显著提高。本研究中,CON组pH略高于FSB组,这可能与甘蔗渣中高含量的ADL和纤维素增加了肉牛唾液分泌量有关。甘蔗渣中ADL和纤维素等在瘤胃中难以被降解,但厌氧发酵可促进甘蔗渣结构性碳水化合物水解[28],添加纤维素酶可直接破坏甘蔗渣的细胞壁[10,14],增加瘤胃微生物对甘蔗渣的降解作用。瘤胃pH高于6.2是纤维分解菌发挥作用的重要条件。本研究中,2组肉牛瘤胃液pH均高于6.2,表明2组饲粮的使用未抑制瘤胃纤维降解菌的正常生长。戊酸可作为评估VFA吸收情况的标志物[29]。本研究中,2组肉牛瘤胃中戊酸的含量无显著差异。这表明2组肉牛瘤胃上皮细胞对瘤胃液中短链脂肪酸(SCFA)的吸收量无显著差异。由于酶菌发酵处理破坏了甘蔗渣的细胞壁,增强了瘤胃微生物对进入瘤胃的发酵甘蔗渣的附着和营养物质的降解,因此,FSB组丙酸、丁酸和异丁酸的产生量要高于CON组[14]。最终导致了FSB组肉牛瘤胃中总挥发性脂肪酸含量显著高于CON组。
NH3-N的形成仅在蛋白质分解的最后一步受到影响,即氨基酸的脱氨基作用。CON组较低的NH3-N含量可能与甘蔗渣中存在的高含量的纤维物质阻挡了瘤胃微生物对蛋白质的降解有关。NH3-N是瘤胃中MCP合成最重要的氮源。MCP合成受反刍动物能量摄入量和氮含量的影响[30]。De Almeida等[25]研究表明,随着甘蔗渣添加量的增加MCP合成呈线性下降。本研究也表明,CON组MCP的含量显著低于FSB组,这与CON组DMI以及养分表观消化率的变化规律一致,表明CON组瘤胃微生物因合成MCP所需要的氮和能量受阻,导致其MCP含量显著低于FSB组。

3.3 发酵甘蔗渣对肉牛瘤胃菌群的影响

FSB组瘤胃细菌的Chao1指数和ACE指数显著低于CON组,表明菌酶协同发酵降低了瘤胃细菌的多样性和丰度,这可能与FSB组较低的NDF含量有关[31]。门水平上,2组相对丰度最高的是厚壁菌门,拟杆菌门次之。厚壁菌门的物种在降解纤维物质的方面起重要作用[27]。本研究中,2组较高的厚壁菌门相对丰度表明参与瘤胃纤维降解的细菌数量要高于参与淀粉降解的细菌数量[32]。变形菌门主要由革兰氏阴性菌组成,具有高度多样的代谢功能。本研究表明,FSB组变形菌门相对丰度显著降低。Bi等[33]研究表明,在饲粮精粗比相同的情况下,变形菌门相对丰度在一定范围内随能量水平的增加出现一定的降低。此外,甘蔗渣发酵过程中产生的乙醇[34],以及FSB组较高的丁酸含量也可能是导致该组变形菌门相对丰度显著降低的重要原因[33]。纤维杆菌相对丰度与饲粮中的纤维含量呈正相关[35]。本研究中,FSB组纤维杆菌相对丰度显著高于CON组,但其饲粮中纤维物质的含量却低于CON组。以上研究结果的差异可能与甘蔗渣纤维物质间存在一定相互混杂和交联,变形菌门微生物对复杂纤维物质的降解能力较弱,导致CON组可有效利用的纤维物质含量低于FSB有关。
在属水平上,CON组和FSB组存在差异的属为理研菌科_RC9_肠道群、普雷沃氏菌科_UCG-003和解琥珀酸菌属。理研菌科_RC9_肠道群属于理研菌科,在对纤维的降解中起重要作用,其相对丰度与膳食纤维含量之间呈正相关[28]。有研究表明,当饲粮NDF含量从39.7%降低到30.9%时,理研菌科_RC9_肠道群在瘤胃中的相对丰度降低了69.8%[36]。因此,本研究中,CON组饲粮较高NDF含量可用来解释该组瘤胃液中较高的理研菌科_RC9_肠道群相对丰度。普雷沃氏菌科_UCG-003参与植物细胞壁多糖的降解。Borchers等[37]研究发现,与补饲的耗牛相比,放牧可增加耗牛瘤胃内普雷沃氏菌科_UCG-003的相对丰度。这表明瘤胃中普雷沃氏菌科_UCG-003的相对丰度与饲粮纤维水平呈一定的正相关,本研究中CON组较高的普雷沃氏菌科_UCG-003相对丰度也说明了这一点。解琥珀酸菌属主要参与淀粉的降解,是瘤胃中琥珀酸转化为丙酸的主要参与者[38],在饲喂高能量和高精饲粮的反刍动物瘤胃中有较高的丰度[33]。Ran等[38]研究表明,提高含NDF和ADL较高的高粱青贮添加量会降低泌乳奶牛瘤胃中解琥珀酸菌属相对丰度水平。FSB组解琥珀酸菌属相对丰度显著高于CON组,这可能与使用纤维素酶破坏了甘蔗渣的细胞壁,导致甘蔗渣中的非结构性碳水化合物更易被瘤胃微生物降解有关。

3.4 指示物种分析

使用指示物种分析有助于识别不同群体中潜在的指示物种。在属水平上,CON组样本的优势菌属为理研菌科_RC9_肠道群,FSB组为解琥珀酸菌属。解琥珀酸菌属参与淀粉的降解,是瘤胃中琥珀酸转化为丙酸的主要参与者[38]。理研菌科_RC9_肠道群在瘤胃纤维消化中起重要重要作用,膳食纤维含量的增加可促进其生长繁殖[28,36]。因此,理研菌科_RC9_肠道群可能是CON组的指示物种,解琥珀酸菌属可能是FSB组的指示物种。

3.5 瘤胃菌群与瘤胃发酵参数之间的关系

饲粮诱导瘤胃菌群结构的变化与瘤胃发酵参数的变化有关。本研究揭示了用发酵甘蔗渣替代甘蔗渣对肉牛瘤胃菌群和瘤胃代谢表型的相互作用模式。相关分析表明,丙酸含量与解琥珀酸菌属相对丰度呈正相关。NH3-N含量与产乙酸糖发酵菌属相对丰度呈负相关。丙酸是糖异生反应中转化为葡萄糖的主要底物,是动物的主要能量来源[39]。MCP是反刍动物所需优质蛋白质的重要来源,瘤胃中MCP的合成与NH3-N的含量以及能量利用效率密切相关[25]。因此,FSB组肉牛瘤胃液中较高的解琥珀酸菌属相对丰度和较低的产乙酸糖发酵菌属相对丰度可能与FSB组肉牛ADG较高有关。

3.6 瘤胃菌群功能预测

在本研究中,使用Tax4Fun来预测CON组和FSB组肉牛瘤胃菌群的功能。FSB组肉牛瘤胃中参与2级KEGG途径中氨基酸代谢途径、核苷酸代谢途径和外源生物降解与代谢途径的基因显著加强,可为宿主提供更多生长所需的优质蛋白质和能量。本研究结果不能代表瘤胃菌群的实际功能,这些基因在饲喂甘蔗渣和发酵甘蔗渣的肉牛中的作用机制需要利用宏基因组分析来进一步的确定。

4 结论

添加20%发酵甘蔗渣替代甘蔗渣可改变瘤胃菌群结构,并通过提高瘤胃液中VFA、MCP的含量和肉牛养分表观消化率来提高肉牛生长性能。
[1]
刘洋, 洪亚楠, 姚艳丽, 等. 中国甘蔗渣综合利用现状分析[J]. 热带农业科学, 2017, 37(2):91-95.

LIU Y, HONG Y N, YAO Y L, et al. Research progress in comprehensive utilization of bagasse in China[J]. Chinese Journal of Tropical Agriculture, 2017, 37(2):91-95. (in Chinese)

[2]
彭海芬, 和嘉荣, 李花, 等. 甘蔗渣的饲用价值评价[J]. 中国农学通报, 2021, 37(2):127-133.

PENG H F, HE J R, LI H, et al. Evaluation on feeding value of sugarcane bagasse[J]. Chinese Agriculture Science Bulletin, 2021, 37(2):127-133. (in Chinese)

[3]
王允圃, 李积话, 刘玉环, 等. 甘蔗渣综合利用技术的最新进展[J]. 中国农学通报, 2010, 26(16):370-375.

WANG Y P, LI J H, LIU Y H, et al. Comprehensive utilization of bagasse:state of the art[J]. Chinese Agriculture Science Bulletin, 2010, 26(16):370-375. (in Chinese)

[4]
DA COSTA D A, DE SOUZA C L, DE OLIVEIRA SIMÕES SALIBA E, et al. By-products of sugar cane industry in ruminant nutrition[J]. International Journal of.Advance Agricultural Research, 2015, 3:1-9.

[5]
WANAPAT M, POLYORACH S, BOONNOP K, et al. Effects of treating rice straw with urea or urea and calcium hydroxide upon intake,digestibility,rumen fermentation and milk yield of dairy cows[J]. Livestock Science, 2009, 125(2/3):238-243.

DOI

[6]
RAFFRENATO E, FIEVISOHN R, COTANCH K W, et al. Effect of lignin linkages with other plant cell wall components on in vitro and in vivo neutral detergent fiber digestibility and rate of digestion of grass forages[J]. Journal of Dairy Science, 2017, 100(10):8119-8131.

DOI

[7]
SELIM A S M, HASAN M N, RAHMAN M A, et al. Nutrient content and in vitro degradation study of some unconventional feed resources of Bangladesh[J]. Heliyon, 2022, 8(5):e09496.

DOI

[8]
GUNUN N, WANAPAT M, GUNUN P, et al. Effect of treating sugarcane bagasse with urea and calcium hydroxide on feed intake,digestibility,and rumen fermentation in beef cattle[J]. Tropical Animal Health and Production, 2016, 48(6):1123-1128.

DOI

[9]
SO S, CHERDTHONG A, WANAPAT M. Improving sugarcane bagasse quality as ruminant feed with Lactobacillus,cellulase,and molasses[J]. Journal of Animal Science and Technology, 2020, 62(5):648-658.

DOI

[10]
HU Y Q, HE Y Y, GAO S, et al. The effect of a diet based on rice straw co-fermented with probiotics and enzymes versus a fresh corn stover-based diet on the rumen bacterial community and metabolites of beef cattle[J]. Scientific Reports, 2020, 10(1):10721.

DOI

[11]
JIANG B W, WANG T, ZHOU Y X, et al. Effects of enzyme+bacteria treatment on growth performance,rumen bacterial diversity,KEGG pathways,and the CAZy spectrum of Tan sheep[J]. Bioengineered, 2020, 11(1):1221-1232.

DOI

[12]
KHOLIF A E, HAMDON H A, GOUDA G A, et al. Feeding date-palm leaves ensiled with fibrolytic enzymes or multi-species probiotics to farafra ewes:intake,digestibility,ruminal fermentation,blood chemistry,milk production and milk fatty acid profile[J]. Animals, 2022, 12(9):1107.

DOI

[13]
MOUSA G A, ALLAK M A, SHEHATA M G, et al. Dietary supplementation with a combination of fibrolytic enzymes and probiotics improves digestibility,growth performance,blood metabolites,and economics of fattening lambs[J]. Animals, 2022, 12(4):476.

DOI

[14]
SO S, CHERDTHONG A, WANAPAT M. Growth performances,nutrient digestibility,ruminal fermentation and energy partition of Thai native steers fed exclusive rice straw and fermented sugarcane bagasse with Lactobacillus,cellulase and molasses[J]. Journal of Animal Physiology and Animal Nutrition, 2022, 106(1):45-54.

DOI

[15]
AOAC International. Official methods of analysis[S]. 16th ed. Arlington: AOAC International, 1995.

[16]
VAN SOEST P J. ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[17]
VAN KEULEN J, YOUNG B A. Evaluation of acid-insoluble ash as a natural marker in ruminant digestibility studies[J]. Journal of Animal Science, 1977, 44(2):282-287.

DOI

[18]
CHANEY A L, MARBACH E P. Modified reagents for determination of urea and ammonia[J]. Clinical Chemistry, 1962, 8:130-132.

PMID

[19]
VERDOUW H, VAN ECHTELD C J A, DEKKERS E M J. Ammonia determination based on indophenol formation with sodium salicylate[J]. Water Research, 1978, 12(6):399-402.

DOI

[20]
屈二军, 王晓涛, 李文建, 等. 一株高产纤维素酶的米曲霉菌种的选育[J]. 中国酿造, 2008(14):47-49.

QU E J, WANG X T, LI W J, et al. Screening and breeding of a high cellulase producing strain Spergillus oryzae[J]. China Brewing, 2008(14):47-49. (in Chinese)

[21]
钟苏川, 樊振, 黄晓瑜, 等. 1株饲用黑曲霉的分离鉴定及其纤维素酶活性检测[J]. 饲料研究, 2023, 46(16):77-81.

ZHONG S C, FAN Z, HUANG X Y, et al. Isolation and identification of a cellulose-degrading Aspergillus niger strain from fermented feed and detection of its activity[J]. Feed research, 2023, 46(16):77-81. (in Chinese)

[22]
GUAN H, YAN Y H, LI X L, et al. Microbial communities and natural fermentation of corn silages prepared with farm bunker-silo in Southwest China[J]. Bioresource Technology, 2018, 265:282-290.

DOI PMID

[23]
巨纪, 魏曼琳, 于萍, 等. 植物乳杆菌对柠条青贮发酵品质和微生物多样性的影响[J]. 中国草地学报, 2023, 45(2):113-120.

JU J, WEI M L, YU P, et al. Effects of Lactobacillus plantarum on fermentation quality and microbial diversity of Caragana silage[J]. Chinese Journal of Grassland, 2023, 45(2):113-120. (in Chinese)

[24]
ATTA ELMNAN B, HEMEEDAN A A, AHMED R I. Influence of different treatments on nutritive values of sugarcane bagasse[J]. Global Journal of Animal Scientific Research, 2016, 4(2):1-14.

[25]
DE ALMEIDA G A P, DE ANDRADE FERREIRA M, DE LIMA SILVA J, et al. Sugarcane bagasse as exclusive roughage for dairy cows in smallholder livestock system[J]. Asian-Australasian Journal of Animal Sciences, 2018, 31(3):379-385.

DOI PMID

[26]
SO S, CHERDTHONG A, WANAPAT M, et al. Fermented sugarcane bagasse with Lactobacillus combined with cellulase and molasses promotes in vitro gas kinetics,degradability,and ruminal fermentation patterns compared to rice straw[J]. Animal Biotechnology, 2022, 33(1):116-127.

DOI

[27]
GOULART R S, VIEIRA R A M, DANIEL J L P, et al. Effects of source and concentration of neutral detergent fiber from roughage in beef cattle diets on feed intake,ingestive behavior,and ruminal kinetics[J]. Journal of Animal Science, 2020, 98(5):skaa107.

DOI

[28]
WANG H B, HE Y, LI H, et al. Rumen fermentation,intramuscular fat fatty acid profiles and related rumen bacterial populations of Holstein bulls fed diets with different energy levels[J]. Applied Microbiology and Biotechnology, 2019, 103(12):4931-4942.

DOI

[29]
DANIEL J L P, AMARAL R C, GOULART R S, et al. Short-term effects of silage volatile compounds on feed intake and digestion in beef cattle[J]. Journal of Animal Science, 2013, 91(5):2321-2331.

DOI

[30]
CLARK J H, KLUSMEYER T H, CAMERON M R. Microbial protein synthesis and flows of nitrogen fractions to the duodenum of dairy cows[J]. Journal of Dairy Science, 1992, 75(8):2304-2323.

DOI PMID

[31]
CUI K, QI M L, WANG S Q, et al. Dietary energy and protein levels influenced the growth performance,ruminal morphology and fermentation and microbial diversity of lambs[J]. Scientific Reports, 2019, 9(1):16612.

DOI

[32]
LV X K, CUI K, QI M L, et al. Ruminal microbiota and fermentation in response to dietary protein and energy levels in weaned lambs[J]. Animals, 2020, 10(1):109.

DOI

[33]
BI Y L, ZENG S Q, ZHANG R, et al. Effects of dietary energy levels on rumen bacterial community composition in Holstein heifers under the same forage to concentrate ratio condition[J]. BMC Microbiology, 2018, 18(1):69.

DOI PMID

[34]
ZHANG Y K, ZHANG X X, LI F D, et al. Characterization of the rumen microbiota and its relationship with residual feed intake in sheep[J]. Animal, 2021, 15(3):100161.

DOI

[35]
FERNANDO S C, PURVIS H T 2, NAJAR F Z, et al. Rumen microbial population dynamics during adaptation to a high-grain diet[J]. Applied and Environmental Microbiology, 2010, 76(22):7482-7490.

DOI PMID

[36]
ZENED A, COMBES S, CAUQUIL L, et al. Microbial ecology of the rumen evaluated by 454 GS FLX pyrosequencing is affected by starch and oil supplementation of diets[J]. FEMS Microbiology Ecology, 2013, 83(2):504-514.

DOI PMID

[37]
BORCHERS A, PIELER T. Programming pluripotent precursor cells derived from Xenopus embryos to generate specific tissues and organs[J]. Genes, 2010, 1(3):413-426.

DOI PMID

[38]
RAN T, TANG S X, YU X, et al. Diets varying in ratio of sweet sorghum silage to corn silage for lactating dairy cows:feed intake,milk production,blood biochemistry,ruminal fermentation,and ruminal microbial community[J]. Journal of Dairy Science, 2021, 104(12):12600-12615.

DOI

[39]
MURAD H A, AZZAZ H H. Impact of lactic acid bacteria on dairy animal’s performance[J]. Journal of Dairy & Veterinary Sciences, 2019, 12(1):555829.

Outlines

/