REVIEW

Research Progress on Germplasm Characteristics and Nutrition of Wujin Pig

  • DENG Menglong , 1, 2 ,
  • FENG Ganyi 1 ,
  • LI Rui , 1 ,
  • YIN Yulong 1
Expand
  • 1 Key Laboratory of Animal Nutritional Physiology and Metabolic Process, National Engineering Laboratory for Poultry Breeding Pollution Control and Resource Technology, Key Laboratory of Agro-Ecological Processes in Subtropical Region, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
*assistant professor, E-mail:

Received date: 2023-11-02

  Online published: 2024-04-15

Abstract

Wujin pig is an excellent local pig breed in China. It is a high-quality material for “Xuanwei” ham. Its meat has unique flavor and high nutritional value. The domestic research on Wujin pig focuses more on meat quality, but lacks systematic research on Wujin pig germplasm characteristics and nutrition, which limits the development of Wujin pig breeding industry to a certain extent. In this paper, the germplasm characteristics and nutrition research progress of Wujin pig were reviewed, in order to provide the basis for the protection of Wujin pig germplasm resources and scientific breeding.

Cite this article

DENG Menglong , FENG Ganyi , LI Rui , YIN Yulong . Research Progress on Germplasm Characteristics and Nutrition of Wujin Pig[J]. Chinese Journal of Animal Nutrition, 2024 , 36(4) : 2067 -2078 . DOI: 10.12418/CJAN2024.180

乌金猪是我国优良的地方放牧型高原猪种,主要分布于云南、贵州和四川三省交界的乌蒙山和大、小凉山地区。贵州的柯乐猪、威宁猪,云南的大河猪、昭通猪以及四川的凉山猪,因起源于乌蒙山区与金沙江流域,且被毛分黑毛和火毛2类,故统称为乌金猪[1]。乌金猪具有早熟易肥、耐粗饲、适应力强、抗病力强、肉质风味独特等种质特性[2-3]。然而,截止目前,国内外有关乌金猪的研究相对较少,且多关注的是肉品质,而缺乏对乌金猪品种资源、营养需要及营养调控方面的系统研究,使得国内乌金猪养殖面临着规模小、饲养粗放、缺少饲养标准、种质资源开发利用落后等问题。为此,本文主要就乌金猪品种特性、营养需要及营养调控研究现状作一综述,旨在为乌金猪种质资源合理利用、规模化养殖提供参考。

1 乌金猪的品种特性

1.1 乌金猪的体貌特征

乌金猪头大小适中,大多较为平直,额部宽,有旋毛,常有八卦纹,耳中等大小并下垂,嘴筒短且粗直,一般有3道浅皱纹;体格粗壮结实,其腰背微凹,腹大微垂,四肢健壮,腿臀发达,后躯较前躯略高,后腿飞节上部都有皱褶。
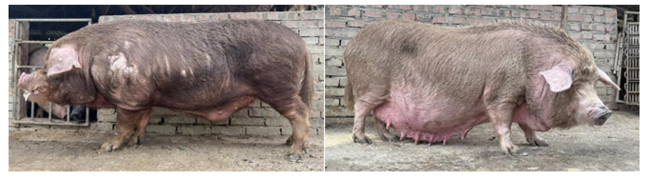
图1 乌金猪种公猪(左)和种母猪(右)

Fig.1 Breeding boars (left) and sows (right) of Wujin pigs

1.2 乌金猪的生长特点

乌金猪的生长与发育呈“S”型曲线规律,150日龄前,体重增幅较小,150~200日龄,体重增长快,最大日增重超700 g,随后进入慢速生长阶段,生长拐点出现在193.4日龄,体重为62.5 kg,最大日增重468.8 g[4]。育肥阶段乌金猪的日采食量为1~2 kg,90~120日龄阶段为1.15 kg,222~236日龄达2.35 kg。乌金猪的饲料转化率总体不高,90~236日龄,料重比为4.01,随着体重增长饲料报酬呈下降趋势,最低和最高料重比分别出现在120~150日龄(3.60)和222~236日龄(4.25)。由此可见,从生长性能和经济效率角度考虑,乌金猪适宜屠宰体重应控制在63~72 kg。研究表明,饲粮能量、蛋白质水平以及饲粮组成是影响乌金猪生长性能的重要因素。张曦等[5]研究报道,饲粮能量水平由14.22 MJ/kg降至11.74 MJ/kg,乌金猪的采食量由1.73 kg/d增至1.90 kg/d,料重比由3.16增至4.08,饲料效率显著降低。葛长荣等[6]研究发现,15~30 kg阶段,饲粮高粗蛋白质(CP)水平(18%)提高了乌金猪的日增重(最高35.51 g/d);30~60 kg及60~100 kg阶段,日增重随着饲粮CP水平的降低而减小,料重比增加。杨凯[7]研究报道,高能、低蛋白质、高赖氨酸饲粮提高了乌金猪(20 kg左右)的平均日采食量、平均日增重,降低了料重比。王静[8]研究表明,在相同的营养水平下[NRC (1998)],乌金猪的生长速度相对长白猪更慢,饲料转化率更低;当饲喂不同营养水平饲粮,乌金猪生长所需饲粮营养水平略低于NRC(1998),但乌金猪仍然能够保持较高的生长速度,而长白猪则与之完全相反,所需饲粮消化能(DE)值、蛋白质水平高于NRC(1998)才能发挥出其良好的生长性能。

1.3 乌金猪的胴体性状

乌金猪的生长速度缓慢、体脂率高、瘦肉率较低等缺陷严重限制乌金猪规模化养殖。经查阅文献(表1)发现,乌金猪属脂肪型猪种,有较好的胴体性状和产肉性能,在地方猪种中处于中上水平。乌金猪胴体品质受体重和饲粮营养水平影响较大。雷怀刚[4]研究发现,随着乌金猪体重的增加,其屠宰率和瘦肉率降低,皮脂率呈增加趋势,建议乌金猪的屠宰体重应控制在67.40~74.90 kg。葛长荣等[6]研究报道,当乌金猪的体重在60和100 kg时,瘦肉重、瘦肉率和眼肌面积随着饲粮CP水平的降低而显著下降,同时脂肪重、脂肪率和背膘厚增加。王静[8]研究发现,在60和100 kg体重时,随饲粮能量水平的降低,瘦肉重、瘦肉率和眼肌面积增加,脂肪重、脂肪率和背膘厚降低。乌金猪获得最优胴体性状所需饲粮蛋白质和能量水平均低于中国地方猪饲养标准。因此,在乌金猪育肥后期,提高饲粮蛋白质水平、降低能量水平,有助于提高瘦肉率,改善胴体品质。
表1 乌金猪胴体性状研究

Table 1 Researches on carcass traits of Wujin pigs

序号
No.
猪种
Swine
breeds
屠宰率
Dressing
percentage/
%
背膘厚
Back fat
thickness/
cm
眼肌面积
Eye muscle
area/cm2
瘦肉率
Lean meat
percentage/
%
皮脂率
Skin & fat
percentage/%
文献
References
1 67.4 kg马边县乌金猪
(凉山猪)
75.12 3.34 17.68 43.81 45.03 雷怀刚[4]
2 71.43 kg乌金猪
(凉山猪)
75.86 3.71 19.45 43.54 41.92 张顺华等[9]
3 71 kg昭觉县
乌金猪
71.25 3.40 20.60 45.85 - 王建[10]
4 107 kg昭通火毛
乌金猪
74.68 - 23.11 44.21 48.77 杨凯等[11]
5 151 kg昭通火毛
乌金猪
74.03 - 21.78 41.18 51.25 杨凯等[11]

1.4 乌金猪的肌纤维组成特性

肌纤维是肌肉组织的基本结构单位,肌纤维类型是影响肌肉品质的关键因素之一。肌纤维按照代谢类型和酶活性可分为不同的肌球蛋白重链(MyHC)亚型,包括慢速氧化型(MyHC Ⅰ型)、快速氧化型(MyHC Ⅱa型)、快速酵解型(MyHC Ⅱb型)和中间型(MyHC Ⅱx型)4种[12-14]。猪肌纤维类型随着猪年龄的增加而变化,出生时肌肉中的肌纤维几乎没有酵解型肌纤维,氧化型肌纤维占比较大,之后总体呈下降趋势,随着MyHC Ⅰ、MyHCaMyHCbMyHCx型基因的依次表达,酵解型肌纤维的比例逐渐增加,肌肉氧化代谢作用减少,肌纤维直径逐渐增加[15-16]。在猪的整个生长过程中,肌纤维类型会受到内在(如品种、性别和年龄等)及外在(如出生前后的营养供给、饲养方式、环境、运动和应激等)因素的共同影响,进而产生相互转化的现象[8,17]。李秋艳等[18]首次确定了乌金猪菱形肌以Ⅰ型纤维为主,腰大肌主要是MyHC Ⅱa和MyHC Ⅱx型,半腱肌则以MyHC Ⅰ、MyHC Ⅱa和MyHC Ⅱx型为主,菱形肌、腰大肌和半腱肌的肌纤维类型主要是氧化型;而背最长肌和股二头肌为酵解型,均含有较高的Ⅱb型的肌纤维。王静[8]研究发现,乌金猪背最长肌中MyHC Ⅱa肌纤维的比例高于长白猪,MyHC Ⅱx肌纤维的比例则低于长白猪,说明乌金猪的背最长肌中氧化型肌纤维比长白猪更多,酵解型肌纤维更少。

1.5 乌金猪的肉质特性

乌金猪肉质鲜嫩,肌内脂肪含量较高,脂肪酸组成多样且丰富,是生产宣威火腿的优质材料[3,19]。杨凯等[11]研究报道,相较于巴克夏、太湖猪和黔东花猪杂交后代商品猪,乌金猪肉具有更低的滴水损失和更高的系水力,肉品质更好。王静[8]研究发现,乌金猪肌内脂肪含量显著高于长白猪,大理石纹评分更高,滴水损失和剪切力更低。张顺华等[9]研究报道,相较杜洛克和巴克夏猪,乌金猪的猪肉肌间脂肪含量更高,滴水损失和剪切力更低,肉色评分更好。张曦等[5]研究发现,提高饲粮能量水平,乌金猪宰后的pH45 min逐渐降低,pH24 h逐渐升高,系水力逐渐降低,剪切力、蒸煮损失和滴水损失逐渐增加,表明调节饲粮能量水平可改善乌金猪肉品质。此外,屠宰体重也是影响乌金猪肉质的重要因素,雷怀刚[4]设置了50、58、66、74、82、90和98 kg等7个体重组(共42头),屠宰结果显示:66 kg体重组的背最长肌pH更高,亮度(L*)值较低,红度(a*)值显著高于50和58 kg体重组,随着体重的增加,a*值和大理石纹评分均有上升的趋势,此外,66、74、82、90和98 kg体重组的大理石纹评分显著高于其他低体重组。
乌金猪肉富含多种氨基酸和脂肪酸,肉质风味独特,具有较高的营养价值。张顺华等[9]研究发现,乌金猪肌肉中谷氨酸、谷氨酰胺和丙氨酸含量较高,鲜味氨基酸占总氨基酸的比例高达42.98%,这可能是其肉质风味独特的重要原因之一;此外,乌金猪肌肉中油酸、花生四烯酸和亚油酸的含量也比较丰富,不饱和脂肪酸总量较高,特别是含有一定比例的亚麻酸、亚油酸等人体必需脂肪酸。雷怀刚[4]研究指出,乌金猪背最长肌中甘氨酸、异亮氨酸、丝氨酸、丙氨酸和谷氨酸等5种鲜味氨基酸的含量均比普通猪种高,尤其是谷氨酸和谷氨酰胺的含量分别高达0.352%和2.513%;在脂肪酸组成上,乌金猪的背最长肌中主要以棕榈酸、硬脂酸等饱和脂肪酸,以及油酸、亚油酸、花生四烯酸等不饱和脂肪酸为主,总不饱和脂肪酸含量为902.23 μg/g。总的来说,乌金猪肉的脂肪酸与游离氨基酸含量丰富且组成合理,是乌金猪拥有独特肉质的重要原因。此外,乌金猪的背最长肌中还富含铁、锰、锌和硒等微量元素。

2 乌金猪相关基因表达调控研究

2.1 乌金猪与其他猪种的差异性表达基因

CPNE1是一种钙依赖的膜结合蛋白,调节细胞膜和细胞质交界处的分子事件。猪CPNE1基因主要在卵巢、脾脏、肌肉、心脏、肺脏、肾脏和肝脏中表达,在背部脂肪和小肠中适度表达。Shifei等[20]研究表明,CPNE1基因在乌金猪的背最长肌中表达量较大白猪更低。6-磷酸果糖-2-激酶1(PFKFB1)基因主要在肌肉、心脏、肺脏、肝脏、小肠和肾脏中表达,在脂肪、卵巢和脾脏中弱表达,该基因编码双功能果糖-2,6-双磷酸酶;该酶形成同源二聚体,使用独立的结构域催化2,6-二磷酸果糖的合成和降解,2,6-二磷酸果糖是糖酵解途径的激活剂和糖异生途径的抑制剂,因此,通过这种酶的活性调节2,6-二磷酸果糖水平,被认为可以调节葡萄糖稳态[21-23]。Liu等[24]研究发现,大白猪背最长肌中的PFKFB1基因相较于乌金猪而言,在表达量上更具优势。保护端粒1(POT1)基因是端粒酶家族的成员,编码参与端粒维持的核蛋白。POT1蛋白作为多蛋白复合物的成员之一,会与端粒的TTAGGG重复序列结合,调节端粒长度,并保护染色体末端免遭非法重组,防止灾难性染色体不稳定、异常染色体分离等现象的发生[25-28]。Wang等[29]研究报道,POT1基因在乌金猪和大白猪的肌肉、心脏、肺脏、脂肪、肝脏、胰腺、脾脏和肾脏组织中广泛差异表达,与大白猪相比,乌金猪的POT1基因在肌肉等组织中的表达水平普遍较高。泛素特异性肽酶7(USP7)是一种泛素特异性蛋白酶,在生物体之间相互作用、蛋白质去泛素化和泛素依赖性蛋白质分解代谢过程中发挥着重要作用[30-32]。Liu等[33]研究发现,猪USP7基因在肌肉、心脏、脾脏、肝脏、卵巢、肺脏、小肠和肾脏中适度表达,但在脂肪中几乎不表达,且USP7基因在乌金猪和大白猪的最长肌中存在差异性表达。含钾通道四聚结构域15(KCTD15)蛋白属于钾通道四聚体结构域蛋白家族,可作为Cullin3泛素连接酶与其底物相互作用的适配子[34-38],KCTD15基因在脂肪组织、肝脏、下丘脑和神经板交界区中有表达,在能量平衡中发挥着重要的调节作用[39-41]。Zhang等[42]研究报道,在60日龄的乌金猪胚胎组织中KCTD15基因的表达水平比大白猪更高;在对乌金猪的原代细胞培养过程中,KCTD15基因的表达水平随分化时间的变化呈现出先升高后降低的特点,总而言之,KCTD15基因可能作为关键基因之一参与了乌金猪的脂肪沉积。pre-mRNA加工因子3(PRPF3)基因在RNA、核mRNA剪切过程中起重要作用[43-44]。Liu等[45]研究发现,猪PRPF3基因主要在肌肉、心脏和肝脏中表达,在脂肪、肺脏和卵巢中中度表达,在脾脏、小肠和肾脏中少有表达,且PRPF3基因在乌金猪和大白猪的背最长肌中存在差异性表达,其中乌金猪的PRPF3基因表达水平低于大白猪。
上述6个基因在不同猪种的背最长肌中的表达量均有所差异,这可能与乌金猪和大白猪的表型相关,乌金猪属脂肪型猪种,生长缓慢、体质沉积能力强、瘦肉率低,而大白猪是典型的瘦肉型猪种,生长速度快、瘦肉率高。

2.2 乌金猪脂质代谢调控的关键基因

脂肪酸合成酶(FAS)在脂肪代谢中有重要作用,利用丙二酸单酰辅酶A合成长链脂肪酸,而FAS基因过表达可能导致体内三酰甘油的大量沉积,诱发肥胖[46-47]。硬脂酰乙酰辅酶A(CoA)去饱和酶(SCD)是单不饱和脂肪酸(MUFA)生物合成的限速酶,可催化生成的油酰和棕榈油酰CoA,后两者是细胞内合成三酰甘油、胆固醇酯和膜磷脂MUFA的重要来源[48-50]。固醇调节元件结合蛋白-1c(SREBP-1c)是一类膜结合转录因子,通过调控体内与脂肪生成相关酶的活性直接参与调控三酰甘油、脂肪酸合成和葡萄糖代谢相关酶基因的表达,进而控制脂肪合成[51-52]。乙酰辅酶A羧化酶(ACC)是脂肪酸合成的限速酶,可调控机体脂肪酸的β-氧化[53]。二酰甘油酰基转移酶-1(DGAT-1)是催化二酰甘油形成三酰甘油的核心酶,参与脂肪酸的合成代谢,其主要作用是:酯化脂肪酸,并将其释放到富含三酰基甘油的部位,进而形成极低密度脂蛋白(VLDL)胆固醇,方便脂肪酸被转运至肝脏外组织[50,54]。肉碱棕榈酰转移酶(CPT-I)分布在线粒体的外膜上,它的作用是酯化长链脂肪酸和肉碱,将长链脂肪酸转运至线粒体内部[55]。过氧化物酶体增殖物激活受体α(PPARα)基因可直接调控脂肪酸氧化关键酶的表达,是肝脏过氧化物酶体、线粒体和微粒体中与脂肪酸氧化系统相关的各个基因的关键调控因子,被激活后的PPARα可以促进组织对脂肪酸的摄取[56]。酰基辅酶A氧化酶(ACOX)是PPARα的目的基因之一,ACOX会参与各类脂肪酸β-氧化的第一步反应[57]。载脂蛋白(ApoB)是哺乳动物肝脏中合成的大的疏水性蛋白,在装配、分泌和代谢乳糜微粒、VLDL和低密度脂蛋白(LDL)时非常关键,ApoB参与脂类代谢过程,可结合并转运脂质,是LDL的唯一载脂蛋白[58]。赵小琪等[59]研究发现,乌金猪背最长肌中FASSCD的mRNA表达量均高于长白猪,SREBP-1c的mRNA表达量高于长白猪但差异不显著;乌金猪和长白猪的FASSCDSREBP-1c的mRNA表达量均与各自的肌内脂肪含量呈显著或极显著正相关,表明2个猪种肌间脂肪含量差异可能与脂肪酸合成关键基因表达有关。韩茜等[60]研究报道,乌金猪肝脏组织中FASACCSREBPApoB的mRNA表达水平高于长白猪,而CPT-IACOX的mRNA表达水平低于长白猪,表明乌金猪肝脏脂肪合成和脂肪酸转运可能更强,而脂肪分解可能更弱。杨明华等[61]研究发现,随着饲粮中蛋白质水平的升高,乌金猪的肝脏组织中ACCFASSREBP-1c的表达水平降低,而CPT-IPPARα的表达水平升高,这意味着提高饲粮蛋白质水平可通过上调脂肪酸氧化分解基因、下调脂肪酸合成代谢基因的表达影响肝脏脂质代谢,减少体脂的沉积。黄英等[62]报道,ACCFASSREBP-1c等脂肪酸合成代谢基因的表达水平随饲粮能量水平的升高而增加,而CPT-IPPARα等脂肪酸分解代谢基因的表达水平逐渐降低,因此,提高饲粮能量水平将促进乌金猪的脂肪沉积。
脂肪细胞定向和分化因子1(ADD1)是脂肪细胞分化过程中一种重要的核转录因子,ADD1与过氧化物酶增殖激活受体γ(PPARγ)、CCAAT元件增强结合蛋白(C/EBPs)共同调控脂肪细胞的分化过程,并直接参与LDLACCFAS、生长抑制因子S14、葡萄糖激酶(GK)、磷酸烯醇式丙酮酸羧激酶(PEPCK)等与脂肪合成和葡萄糖代谢相关基因的表达[51,63]。张永云等[64]研究指出,乌金猪与长白猪ADD1基因的第2外显子具有多态性,具体表现为AA与AB 2种基因型,这2种基因型在乌金猪中的频率分别为0.240和0.760,其中AB基因型的猪肌内脂肪含量更高,而乌金猪的B等位基因频率以及AB基因型比率均显著高于长白猪,这可能是乌金猪的背最长肌肌间脂肪含量更高、肉质更鲜美的原因之一。赵素梅等[65]研究发现,在分化早期,乌金猪的肌内前脂肪细胞分化因子PPARγC/EBPα基因的mRNA表达水平显著高于长白猪,而在分化中后期,乌金猪FASSREBP-1c基因的mRNA表达水平也显著高于长白猪,这说明猪肌内前脂肪细胞的分化及脂肪生成存在着品种的表达时序性。
Leptin是由肥胖基因编码、脂肪细胞分泌的产物,它可以刺激脂肪酸的氧化作用,并通过增强甘油三酯脂肪酸循环而加强脂解作用和能量消耗[66-67];视黄醇结合蛋白4(RBP4)是由脂肪细胞分泌的细胞因子,作为机体内的一种重要的转运蛋白,可结合、转运全反式视黄醇,高水平的RBP4可影响胰岛素信号传导,并降低葡萄糖转运蛋白-4的表达,减少肌肉和肝脏组织对葡萄糖的利用,并加速脂肪组织的分解,脂肪酸作为能源的替代物质被大量释放,这将引起糖和脂类代谢紊乱[68-69]。潘洪彬等[70]研究发现,随着乌金猪体重的增加(30、60、90 kg)和饲粮中能量水平的提高(11.74、12.89、14.22 MJ/kg),Leptin基因的表达水平升高,而RBP4基因的表达水平降低,这促进了脂肪的合成与沉积。
综上所述,乌金猪的脂肪代谢沉积受多种基因表达影响。一方面,乌金猪与长白猪在这些基因表达量上的差异使得它们机体中脂肪含量及分布迥异,这也是乌金猪较之长白猪具有更强的脂肪沉积能力,且肉质具有独特风味的重要原因。另一方面,乌金猪的脂质代谢相关基因的表达水平与饲粮的能量及蛋白质水平相关,对这些基因作用机制的深入研究,将有助于探究饲粮中能量和蛋白质水平影响乌金猪肉品质成因与脂肪沉积的内在机理。

3 乌金猪营养需要量的研究

能量和蛋白质是畜禽最基本的营养素,饲粮能量水平对乌金猪的生长性能、肌肉品质和脂质代谢有重要影响;蛋白质是组成机体细胞、组织的重要成分,机体所有重要的组成部分都需要有蛋白质的参与,饲粮蛋白质水平会显著影响乌金猪的生长性能和免疫能力。目前,基于乌金猪的生长性能、胴体品质和肉品质等指标与饲粮中DE及CP的含量联立起来,构建了多个有关乌金猪能量与蛋白质的最佳需要量模型(表2)。由表2可知,在30、60和100 kg,乌金猪饲粮的最佳DE和CP水平分别维持在8.26 ~14.01 MJ/kg、11.36~13.15 MJ/kg、11.71~13.11 MJ/kg和13.19%~16.97%、13.71%~15.28%、10.27%~12.79%。在乌金猪各个生长阶段,相对于获得最佳的胴体品质时的营养需要,达到最佳肉品质需要更高的饲粮DE水平。随着生长阶段的递增,获得最佳生长性能、胴体品质和肉品质时,乌金猪最佳饲粮CP水平逐渐下降。
表2 乌金猪饲粮营养需要量预测模型

Table 2 Prediction models of nutrient requirement of diets for Wujin pigs

需要量指标
Requirement
indexes
因变量
Dependence
variables
生长阶段
Growth
stages/kg
建立的模型
Established models
30、60和100 kg时
最佳需要量水平
Optimal level of
requirement at 30,
60 and 100 kg
对应因变量值
Corresponding
dependent
variable value
文献
References
15~30 y=-0.574 6x3-24.159x2-321.9x+1 782.6(R2=0.997 7) 14.01 MJ/kg 434.63 g/d 张曦等[5]
平均日增重 30~60 y=12.159 9x3+479.8x2+6 333.7x-27 386.7(R2=0.997 2) 13.15 MJ/kg 584.01 g/d 张曦等[5]
60~100 y=-24.642 2x3+959.8x2-12 387.5x+53 504.6(R2=0.989 7) 12.98 MJ/kg 532.91 g/d 张曦等[5]
瘦肉率 15~30 y=-0.050 1x3+1.672 5x2-18.782 2x+120.8(R2=0.995 8) 11.13 MJ/kg 49.86% 张曦等[5]
30~60 y=0.042x3-1.500 7x2+16.812 5x-12.255 8(R2=0.994 4) 11.91 MJ/kg 46.06% 张曦等[5]
60~100 y=-0.132 3x3+4.649 3x2-54.755 2x+258.2(R2=0.998 9) 11.71 MJ/kg 42.11% 张曦等[5]
背膘厚 15~30 y=0.004 08x3-0.146 2x2+1.777 7x-5.708 1(R2=0.994 2) 11.49 MJ/kg 1.61 cm 张曦等[5]
30~60 y=0.013 4x3-0.456 6x2+5.179 4x-16.914 7(R2=0.985 9) 11.36 MJ/kg 2.64 cm 张曦等[5]
60~100 y=0.028x3-1.015 2x2+12.360 9x-46.150 2(R2=0.999 7) 12.09 MJ/kg 4.38 cm 张曦等[5]
消化能 眼肌面积 15~30 y=-0.323 4x3+11.908 5x2-146.4x+615(R2=0.999 6) 12.27 MJ/kg 14.12 cm2 张曦等[5]
DE 30~60 y=-0.187 1x3+6.673 3x2-80.599 5x+351.1(R2=0.972 6) 11.89 MJ/kg 21.69 cm2 张曦等[71]
60~100 y=-0.184 2x3+6.500 4x2-77.619 5x+339(R2=0.984 7) 11.76 MJ/kg 25.61 cm2 张曦等[71]
大理石纹评分 15~30 y=0.001 17x3-0.029 01x2+0.228 4x+0.505 9(R2=1.000 0) 8.26 MJ/kg 1.07 张曦等[71]
30~60 y=0.057 1x3-2.240 3x2+29.338 9x-126.4(R2=0.999 7) 13.08 MJ/kg 1.85 张曦等[71]
60~100 y=-0.058 3x3+2.269 3x2-29.164 1x+127.1(R2=0.903 3) 12.97 MJ/kg 3.38 张曦等[71]
剪切力 15~30 y=-0.012 2x3+0.455 0x2-5.425 4x+24.931 2(R2=0.996 9) 12.43 MJ/kg 4.36 kg 张曦等[71]
30~60 y=0.0025 1x3-0.981 4x2-12.674 5x-50.968 8(R2=0.979 9) 13.03 MJ/kg - 张曦等[71]
60~100 y=-0.035 5x3+1.379 3x2-17.876 5x+80.477 9(R2=0.992 8) 12.95 MJ/kg 3.19 kg 张曦等[71]
滴水损失 15~30 y=-0.009 32x3+0.366 2x2-4.835 4x+23.086(R2=0.996 6) 13.10 MJ/kg 1.63% 张曦等[71]
30~60 y=0.018 6x3-0.729 6x2+9.411 5x-38.245 8(R2=0.927 9) 13.08 MJ/kg 1.66% 张曦等[71]
60~100 y=0.040 8x3-1.605 2x2+20.897 4x-87.955 7(R2=0.966 1) 13.11 MJ/kg 2.05% 张曦等[71]
无脂瘦肉重 15~30 y=-0.079 2x3+2.793x2-27.834 2x+364(R2=0.871 3) 15.95% 309.22 g 葛长荣等[6]
30~60 y=-3.286x3+140.9x2-1 992.1x+9 854.9(R2=0.997 1) 14.30% 571.57 g 葛长荣等[6]
60~100 y=-5.873 5x3+208.1x2-2 415x+10 085.3(R2=0.994 3) 11.81% 914.22 g 葛长荣等[6]
瘦肉率 15~30 y=-0.023 2x3+1.164 8x2-19.139 6x+151(R2=0.925 7) 16.74% 48.18% 葛长荣等[6]
30~60 y=0.006 94x3-0.292 1x2+4.739 4x+14.955 9(R2=0.996 8) 14.03% 43.12% 葛长荣等[6]
60~100 y=0.051 8x3-1.986 9x2+24.142 2x-51.439(R2=0.997 8) 12.79% 40.69% 葛长荣等[6]
背膘厚 15~30 y=0.000 278x3-0.011x2+0.121 9x+1.470 1(R2=0.998 3) 13.19% 1.80 cm 葛长荣等[6]
30~60 y=-0.014 3x3+0.610 7x2-8.724 9x+44.649 7(R2=0.969 3) 14.24% 2.95 cm 葛长荣等[6]
60~100 y=0.001 11x3-0.035 7x2+0.322 7x+3.929(R2=0.977 7) 10.27% 4.68 cm 葛长荣等[6]
眼肌面积 15~30 y=0.043 8x3-2.036 5x2+31.568 6x-151.9(R2=0.989 0) 15.50% 11.25 cm2 葛长荣等[6]
粗蛋白质
CP
30~60 y=0.075 4x3-3.101 7x2+42.784 3x-179.4(R2=0.982 7) 13.71% 18.47 cm2 葛长荣等[6]
60~100 y=0.014 2x3-0.533x2+7.176 2x-11.108(R2=0.997 6) 12.51% 23.05 cm2 葛长荣等[6]
大理石纹评分 15~30 y=-0.000 14x3+0.006 67x2-0.189 9x+3.234 3(R2=0.997 9) 16.26% 1.31 葛长荣等[72]
30~60 y=0.007 36x3-0.315x2+4.358 5x-17.331 8(R2=0.940 5) 14.13% 2.13 葛长荣等[72]
60~100 y=0.013 9x3-0.5x2+5.82x-18.102 3(R2=0.902 8) 11.42% 3.86 葛长荣等[72]
剪切力 15~30 y=0.009 86x3-0.481 1x2+7.841 9x-40.129 8(R2=0.998 2) 15.88% 2.56 kg 葛长荣等[72]
30~60 y=-0.006 95x3+0.294 7x2-4.080 9x+21.222 4(R2=0.970 2) 14.27% 2.80 kg 葛长荣等[72]
60~100 y=-0.003 47x3+0.118 9x2-1.266 3x+6.990 9(R2=0.964 9) 11.99% 2.92 kg 葛长荣等[72]
滴水损失 15~30 y=-0.001 39x3+0.069 3x2-1.115 8x+7.339 2(R2=0.995 8) 16.62% 1.56% 葛长荣等[72]
30~60 y=0.002 78x3-0.127 4x2+1.968 9x-8.565 2(R2=0.984 4) 15.28% 1.69% 葛长荣等[72]
60~100 y=0.001 94x3-0.073 3x2+0.956 2x-2.1(R2=0.997 2) 12.59% 2.19% 葛长荣等[72]
表3展示了现有数据库中不同生长阶段肉脂型猪能量与蛋白质的需要量。在《中国猪营养需要》(2020)中,20~100 kg肉脂型生长育肥猪DE的最佳需要量在13.45~14.23 MJ/kg之间;在美国NRC(2012)中,25~100 kg生长育肥猪DE的最佳需要量为14.24 MJ/kg。这与表2中得出的乌金猪的最佳能量需要量相比,DE水平更高;在《中国猪营养需要》(2020)中,20~100 kg肉脂型生长育肥猪CP的最佳需要量为13%~16%,与在表2种所总结的乌金猪最佳蛋白质需要量相比,CP水平普遍更高,这说明在现有数据库中,对肉脂型猪的营养需要量可能超过了乌金猪的最佳营养需要量,因此,仅依靠现有数据库里的推荐营养需要量制备乌金猪的饲粮配方,可能会增加无效的饲料成本,这既不利于提高乌金猪的养殖效益,也不能保证在最大程度上开发出乌金猪的生产潜力,故而之后还需要有更多的研究着力于完善乌金猪的最佳营养需要量数据库,并最终实现对乌金猪的精准营养调控。
表3 猪营养需要量数据库

Table 3 Pig nutrition requirement database

序号
No.
数据库
Databases
体重
Body weight/kg
消化能
DE/(MJ/kg)
粗蛋白质
CP/%
20~35 14.23 16
1 《中国猪营养需要》(2020)肉脂型
生长育肥猪营养需要量[73]
35~60 13.81 14.5
60~100 13.45 13
25~50 14.24
2 NRC(2012)生长育肥猪营养需要量[74] 50~75 14.24
75~100 14.24

4 小结

乌金猪作为我国优质的地方性种质资源之一,在品种特性、基因表达及营养需要和调控等领域已取得了一定的研究进展。但是,目前对乌金猪背最长肌发育和代谢过程的关键基因及其作用机制研究甚少;对该猪种营养需要量的研究亦不够全面,这不利于实现对乌金猪的规模化与科学化养殖。随着人民群众对高品质猪肉的日益青睐,乌金猪的市场需求必然逐渐增强,对乌金猪种质资源的保护和高效化养殖也必然收到更广泛的社会关注。
[1]
国家畜禽遗传资源委员会. 中国畜禽遗传资源志-猪志[M]. 北京: 中国农业出版社, 2011.

China National Commission of Animal Genetic Resources. Animal genetic resources in China-pigs[M]. Beijing: China Agriculture Press, 2011. (in Chinese)

[2]
雷怀刚, 杨润林, 沈静, 等. 乌金猪(凉山猪)种质特性概述[J]. 中国猪业, 2013, 8(S1):149-150.

LEI H G, YANG R L, SHEN J, et al. Characteristic of Wujin (Liangshan) pig[J]. China Swine Industry, 2013, 8(S1):149-150. (in Chinese)

[3]
王忠庆, 荣耀先. 大河乌猪与大河猪(乌金猪)肉质性状研究[J]. 云南农业科技, 2004(z1):41-44.

WANG Z Q, RONG Y X. Study on the meat characteristics of Dahe swine (Wujin swine)[J]. Yunnan Agricultural Science and Technology, 2004(z1):41-44. (in Chinese)

[4]
雷怀刚. 乌金猪(凉山猪)种质特性及几个重要功能基因在不同体重阶段的差异表达研究[D].硕士学位论文. 雅安: 四川农业大学,2014:34-39.

LEI H G. Characteristics of Wujin pig (Liangshan pig) and the differential expression of several functional genes at different body weight[D].Master’s Thesis. Ya’an: Sichuan Agricultural University,2014:34-39. (in Chinese)

[5]
张曦, 赵素梅, 葛长荣, 等. 乌金猪日粮能量水平对生长性能和胴体品质的影响(英文)[J]. 动物营养学报, 2008, 20(5):489-500.

ZHANG X, ZHAO S M, GE C R, et al. Effects of dietary energy levels on growth performance and carcass composition of Wujin pigs[J]. Chinese Journal of Animal Nutrition, 2008, 20(5):489-500. (in Chinese)

[6]
葛长荣, 赵素梅, 张曦, 等. 不同日粮蛋白水平对乌金猪生长性能和胴体品质的影响[J]. 畜牧兽医学报, 2008, 39(11):1499-1509.

GE C R, ZHAO S M, ZHANG X, et al. Effect of dietary protein levels on growth performance and carcass composition in Wujin pig[J]. Acta Veterinaria et Zootechnica Sinica, 2008, 39(11):1499-1509. (in Chinese)

[7]
杨凯. 日粮消化能, 粗蛋白和赖氨酸水平对生长前期昭通乌金猪生长性能和肠道菌群的影响[D].硕士学位论文. 昆明: 云南农业大学, 2022.

YANG K. Effects of dietary digestible energy、crude protein and lysine levels on growth performance and intestinal microflora of Zhaotong Wujin pigs in early growth stage[D].Master’s Thesis. Kunming: Yunnan Agricultural University, 2022. (in Chinese)

[8]
王静. 猪肉品质的品种差异与营养调控及其机制研究[D].博士学位论文. 雅安: 四川农业大学, 2012.

WANG J. Meat quality comparison between pig breeds and its interaction with nutrition[D].Ph.D.Thesis. Ya’an: Sichuan Agricultural University, 2012. (in Chinese)

[9]
张顺华, 朱砺, 朱康平, 等. 凉山猪的胴体屠宰性状及肌肉品质分析[J]. 中国畜牧杂志, 2013, 49(7):17-20.

ZHANG S H, ZHU L, ZHU K P, et al. Analysis of carcass slaughter traits and muscle quality of Liangshan pigs[J]. Chinese Journal of Animal Science, 2013, 49(7):17-20. (in Chinese)

[10]
王健. 四川昭觉县乌金猪资源调查[J]. 猪业科学, 2007, 24(2):84-85.

WANG J. Investigation on Wujin pig resources in Zhaojue county,Sichuan province[J]. Swine Industry Science, 2007, 24(2):84-85. (in Chinese)

[11]
杨凯, 鲁绍雄, 严达伟, 等. 昭通火毛、黑毛乌金猪屠宰性能和肉质测定与分析[J]. 现代畜牧兽医, 2021(8):41-45.

YANG K, LU S X, YAN D W, et al. Determination and analysis of slaughter performance and meat quality of Zhaotong firehair and black hair Wujin pigs[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2021(8):41-45. (in Chinese)

[12]
刘志军, 董佩佩, 贾俊静, 等. 肌球蛋白重链MyHC基因与肉品质的关系[J]. 兽药与饲料添加剂, 2009, 14(6):28-31.

LIU Z J, DONG P P, JIA J J, et al. The relationship of myosin heavy chain gene and meat quality[J]. Veterinary Pharmaceuticals & Feed Additives, 2009, 14(6):28-31. (in Chinese)

[13]
KAASIK P, LEISSON K, PUHKE R, et al. Characteristics of myosin isoforms in mammalian skeletal muscle[J]. Advances in Biological Chemistry, 2012, 2(2):77-83.

DOI

[14]
LEFAUCHEUR L, ECOLAN P, PLANTARD L, et al. New insights into muscle fiber types in the pig[J]. Journal of Histochemistry & Cytochemistry, 2002, 50(5):719-730.

DOI

[15]
任列娇, 赵素梅, 胡洪, 等. 肌纤维类型及其对猪肉品质影响的研究进展[J]. 云南农业大学学报, 2010, 25(1):124-131.

REN L J, ZHAO S M, HU H, et al. Surveys of myofiber types and porcine meat quality[J]. Journal of Yunnan Agricultural University, 2010, 25(1):124-131. (in Chinese)

[16]
杨晓静, 赵茹茜, 陈杰, 等. 猪背最长肌肌纤维类型的发育性变化及其品种和性别特点[J]. 中国兽医学报, 2005, 25(1):89-94.

YANG X J, ZHAO R Q, CHEN J, et al. The developmental changes of myofibre types in LD muscle of erhualian and large white pigs[J]. Chinese Journal of Veterinary Science, 2005, 25(1):89-94. (in Chinese)

[17]
李忠秋. 猪肌纤维类型与肉品质特性及影响猪肌纤维类型转化的研究进展[J]. 中国畜牧杂志, 2021, 57(10):40-45.

LI Z Q. Research progress on muscle fiber types and meat quality characteristics and effect of muscle fiber type transformation in pigs[J]. Chinese Journal of Animal Science, 2021, 57(10):40-45. (in Chinese)

[18]
李秋艳, 朱俊红, 贺德勇, 等. 日粮能量水平对乌金猪肌纤维类型基因表达的影响[J]. 饲料工业, 2023, 44(8):63-69.

LI Q Y, ZHU J H, HE D Y, et al. Effects of dietary energy levels on gene expression of muscle fiber types in Wujin pigs[J]. Feed Industry, 2023, 44(8):63-69. (in Chinese)

[19]
杨春珂. 云南地方猪种商品化推广[J]. 猪业科学, 2006, 23(4):23-24.

YANG C K. Commercialization promotion of Yunnan local pig breeds[J]. Swine Industry Science, 2006, 23(4):23-24. (in Chinese)

[20]
SHIFEI P, CHUISI K, YONGGANG L. A novel pig gene,CPNE1,differentially expressed in the muscle tissues from Wujin pigs and Large White pigs[J]. Animal Science Papers & Reports, 2012, 30(2):131-138.

[21]
ALGAIER J, UYEDA K. Molecular cloning,sequence analysis,and expression of a human liver cDNA coding for fructose-6-P,2-kinase:fructose-2,6-bisphosphatase[J]. Biochemical and Biophysical Research Communications, 1988, 153(1):328-333.

DOI

[22]
LEE Y H, LI Y, UYEDA K, et al. Tissue-specific structure/function differentiation of the liver isoform of 6-phosphofructo-2-kinase/fructose-2,6-bisphosphatase[J]. The Journal of Biological Chemistry, 2003, 278(1):523-530.

DOI

[23]
VEECH R L. A humble hexose monophosphate pathway metabolite regulates short-and long-term control of lipogenesis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2003, 100(10):5578-5580.

[24]
LIU Y G. A novel pig gene,PFKFB1,differentially expressed in the muscle tissues from Wujin pigs and Large White pigs[J]. Journal of Animal and Veterinary Advances, 2011, 10(4):421-427.

DOI

[25]
ZAUG A J, PODELL E R, CECH T R. Human POT1 disrupts telomeric G-quadruplexes allowing telomerase extension in vitro[J]. Proceedings of the National Academy of Sciences of the United States of America, 2005, 102(31):10864-10869.

[26]
KELLEHER C, KURTH I, LINGNER J. Human protection of telomeres 1 (POT1) is a negative regulator of telomerase activity in vitro[J]. Molecular and Cellular Biology, 2005, 25(2):808-818.

DOI

[27]
WANG F, PODELL E R, ZAUG A J, et al. The POT1-TPP1 telomere complex is a telomerase processivity factor[J]. Nature, 2007, 445(7127):506-510.

DOI

[28]
CHURIKOV D, PRICE C M. Pot1 and cell cycle progression cooperate in telomere length regulation[J]. Nature Structural & Molecular Biology, 2008, 15(1):79-84.

DOI

[29]
WANG J Y, LAN J, ZHAO J G, et al. A novel porcine gene,POT1,differentially expressed in the longissimus muscle tissues from Wujin and Large White pigs[J]. Cytokine, 2012, 59(1):22-26.

DOI

[30]
D’ANDREA A, PELLMAN D. Deubiquitinating enzymes:a new class of biological regulators[J]. Critical Reviews in Biochemistry and Molecular Biology, 1998, 33(5):337-352.

DOI

[31]
HONG S, KIM S J, KA S, et al. USP7,a ubiquitin-specific protease,interacts with ataxin-1,the SCA1 gene product[J]. Molecular and Cellular Neuroscience, 2002, 20(2):298-306.

DOI

[32]
LI M Y, CHEN D L, SHILOH A, et al. Deubiquitination of p53 by HAUSP is an important pathway for p53 stabilization[J]. Nature, 2002, 416(6881):648-653.

DOI

[33]
LIU Y G, GAO S Z. A novel porcine gene,USP7,differentially expressed in the musculus longissimus from Wujin and Large White pigs[J]. Czech Journal of Animal Science, 2010, 55(1):37-41.

DOI

[34]
HEBEBRAND J, VOLCKMAR A L, KNOLL N, et al. Chipping away the ‘missing heritability’:GIANT steps forward in the molecular elucidation of obesity-but still lots to go[J]. Obesity Facts, 2010, 3(5):294-303.

DOI

[35]
WILLER C J, SPELIOTES E K, LOOS R J F, et al. Six new loci associated with body mass index highlight a neuronal influence on body weight regulation[J]. Nature Genetics, 2009, 41(1):25-34.

DOI PMID

[36]
BAYÓN Y, TRINIDAD A G, DE LA PUERTA M L, et al. KCTD5,a putative substrate adaptor for cullin3 ubiquitin ligases[J]. The FEBS Journal, 2008, 275(15):3900-3910.

DOI

[37]
CORREALE S, PIRONE L, DI MARCOTULLIO L, et al. Molecular organization of the cullin E3 ligase adaptor KCTD11[J]. Biochimie, 2011, 93(4):715-724.

DOI PMID

[38]
PINKAS D M, SANVITALE C E, BUFTON J C, et al. Structural complexity in the KCTD family of Cullin3-dependent E3 ubiquitin ligases[J]. Biochemical Journal, 2017, 474(22):3747-3761.

DOI PMID

[39]
DUTTA S, DAWID I B. Kctd15 inhibits neural crest formation by attenuating Wnt/β-catenin signaling output[J]. Development, 2010, 137(18):3013-3018.

DOI

[40]
GUTIERREZ-AGUILAR R, KIM D H, WOODS S C, et al. Expression of new loci associated with obesity in diet-induced obese rats:from genetics to physiology[J]. Obesity, 2012, 20(2):306-312.

DOI

[41]
LIANG S S, OUYANG H J, LIU J, et al. Expression of variant transcripts of the potassium channel tetramerization domain-containing 15 (KCTD15) gene and their association with fatness traits in chickens[J]. Domestic Animal Endocrinology, 2015, 50:65-71.

DOI PMID

[42]
ZHANG P, FU Y, ZHANG R, et al. Association of KCTD15 gene with fat deposition in pigs[J]. Journal of Animal Physiology and Animal Nutrition, 2022, 106(3):537-544.

DOI

[43]
LAUBER J, PLESSEL G, PREHN S, et al. The human U4/U6 snRNP contains 60 and 90 kD proteins that are structurally homologous to the yeast splicing factors Prp4p and Prp3p[J]. RNA, 1997, 3(8):926-941.

[44]
WANG A, FORMAN-KAY J, LUO Y, et al. Identification and characterization of human genes encoding Hprp3p and Hprp4p,interacting components of the spliceosome[J]. Human Molecular Genetics, 1997, 6(12):2117-2126.

DOI

[45]
LIU Y G. Differential display reveals a novel pig gene,PRPF3,which is differentially expressed in Large White versus Wujin skeletal muscle tissues[J]. Molecular Biology Reports, 2010, 37(6):2687-2692.

DOI

[46]
SUL H S, WANG D. Nutritional and hormonal regulation of enzymes in fat synthesis:studies of fatty acid synthase and mitochondrial glycerol-3-phosphate acyltransferase gene transcription[J]. Annual Review of Nutrition, 1998, 18:331-351.

DOI

[47]
SEMENKOVICH C F. Regulation of fatty acid synthase (FAS)[J]. Progress in Lipid Research, 1997, 36(1):43-53.

DOI PMID

[48]
HEINEMANN F S, OZOLS J. Stearoyl-CoA desaturase,a short-lived protein of endoplasmic reticulum with multiple control mechanisms[J]. Prostaglandins,Leukotrienes,and Essential Fatty Acids, 2003, 68(2):123-133.

DOI

[49]
MIYAZAKI M, NTAMBI J M. Role of stearoyl-coenzyme a desaturase in lipid metabolism[J]. Prostaglandins,Leukotrienes,and Essential Fatty Acids, 2003, 68(2):113-121.

DOI

[50]
GIBBONS G F, WIGGINS D, BROWN A M, et al. Synthesis and function of hepatic very-low-density lipoprotein[J]. Biochemical Society Transactions, 2004,32 (Pt.1):59-64.

[51]
LE LAY S, LEFRÈRE I, TRAUTWEIN C, et al. Insulin and sterol-regulatory element-binding protein-1c (SREBP-1C) regulation of gene expression in 3T3-L1 adipocytes.Identification of CCAAT/enhancer-binding proteinβas an SREBP-1C target[J]. Journal of Biological Chemistry, 2002, 277(38):35625-35634.

DOI

[52]
JUMP D B, BOTOLIN D, WANG Y, et al. Fatty acid regulation of hepatic gene transcription[J]. The Journal of nutrition, 2005, 135(11):2503-2506.

DOI

[53]
LIU C Y, GRANT A L, KIM K H, et al. Porcine somatotropin decreases acetyl-CoA carboxylase gene expression in porcine adipose tissue[J]. Domestic Animal Endocrinology, 1994, 11(1):125-132.

PMID

[54]
YU Y H, GINSBERG H N. The role of acyl-CoA:diacylglycerol acyltransferase (DGAT) in energy metabolism[J]. Annals of Medicine, 2004, 36(4):252-261.

DOI

[55]
DEBERARDINIS R J, LUM J J, THOMPSON C B. Phosphatidylinositol 3-kinase-dependent modulation of carnitine palmitoyltransferase 1A expression regulates lipid metabolism during hematopoietic cell growth[J]. Journal of Biological Chemistry, 2006, 281(49):37372-37380.

DOI PMID

[56]
DREYER C, KREY G, KELLER H, et al. Control of the peroxisomal β-oxidation pathway by a novel family of nuclear hormone receptors[J]. Cell, 1992, 68(5):879-887.

DOI

[57]
GUAN Y, BREYER M D. Peroxisome proliferator-activated receptors (PPARs):novel therapeutic targets in renal disease[J]. Kidney International, 2001, 60(1):14-30.

DOI

[58]
INUI Y, HAUSMAN A M, NANTHAKUMAR N, et al. Apolipoprotein B messenger RNA editing in rat liver:developmental and hormonal modulation is divergent from apolipoprotein A-IV gene expression despite increased hepatic lipogenesis[J]. Journal of Lipid Research, 1992, 33:1843-1856.

DOI

[59]
赵小琪, 谢宇潇, 潘洪彬, 等. 不同品种猪肌内脂肪合成代谢相关基因表达水平的研究[J]. 黑龙江畜牧兽医(上半月), 2018(19):6-10.

ZHAO X Q, XIE Y X, PAN H B, et al. Study of intramuscular fat synthesis metabolism related genes expression level in the different varieties of pigs[J]. Heilongjiang Animal Science and Veterinary Medicine(First Half of the Month), 2018(19):6-10. (in Chinese)

[60]
韩茜, 赵素梅, 黄英, 等. 乌金猪与长白猪肝脏脂肪代谢相关基因mRNA表达水平的比较研究[J]. 云南农业大学学报(自然科学版), 2011, 26(3):317-322,339.

HAN Q, ZHAO S M, HUANG Y, et al. Comparative studies on level mRNA expression profile of lipid metabolism related genes from Wujin and Landrace pigs[J]. Journal of Yunnan Agricultural University(Natural Science), 2011, 26(3):317-322,339. (in Chinese)

[61]
杨明华, 李永能, 黄英, 等. 日粮蛋白质水平对乌金猪肝脏组织脂类代谢相关基因表达的影响[J]. 中国畜牧兽医, 2013, 40(2):108-112.

YANG M H, LI Y N, HUANG Y, et al. Effect of dietry protein levels on the expression of hepatic lipid metabolism related genes in Wujin pigs[J]. China Animal Husbandry & Veterinary Medicine, 2013, 40(2):108-112. (in Chinese)

[62]
黄英, 李永能, 杨明华, 等. 日粮能量水平对乌金猪肝脏组织脂类代谢相关基因表达的影响[J]. 云南农业大学学报(自然科学), 2012, 27(6):826-832.

HUANG Y, LI Y N, YANG M H, et al. Effect of dietary energy levels on the expression levels of hepatic lipid metabolism genes in Wujin pigs[J]. Journal of Yunnan Agricultural University(Natural Science), 2012, 27(6):826-832. (in Chinese)

[63]
FORETZ M, GUICHARD C, FERRÉ P, et al. Sterol regulatory element binding protein-1c is a major mediator of insulin action on the hepatic expression of glucokinase and lipogenesis-related genes[J]. Proceedings of the National Academy of Sciences of the United States of America, 1999, 96(22):12737-12742.

DOI PMID

[64]
张永云, 黄英, 杨明华, 等. ADD1基因多态性与乌金猪肌内脂肪含量的关系[J]. 云南农业大学学报(自然科学), 2013, 28(2):196-200.

ZHANG Y Y, HUANG Y, YANG M H, et al. Correlation between ADD1 polymorphisms and intramuscular fat contents in Wujin pig[J]. Journal of Yunnan Agricultural University(Natural Science), 2013, 28(2):196-200. (in Chinese)

[65]
赵素梅, 高士争. 猪肌内脂肪细胞分化过程中脂类相关基因表达[J]. 畜牧与兽医, 2012, 44(S1):151-152.

ZHAO S M, GAO S Z. Lipid-related gene expression during porcine intramuscular adipocyte differentiation[J]. Animal Husbandry & Veterinary Medicine, 2012, 44(S1):151-152. (in Chinese)

[66]
ZHANG Y Y, PROENCA R, MAFFEI M, et al. Positional cloning of the mouse obese gene and its human homologue[J]. Nature, 1994, 372(6505):425-432.

DOI

[67]
RAMSAY T G. Porcine preadipocyte proliferation and differentiation:a role for leptin?[J]. Journal of Animal Science, 2005, 83(9):2066-2074.

DOI

[68]
STEFAN N, HENNIGE A M, STAIGER H, et al. High circulating retinol-binding protein 4 is associated with elevated liver fat but not with total,subcutaneous,visceral,or intramyocellular fat in humans[J]. Diabetes Care, 2007, 30(5):1173-1178.

DOI

[69]
YANG Q, GRAHAM T E, MODY N, et al. Serum retinol binding protein 4 contributes to insulin resistance in obesity and type 2 diabetes[J]. Nature, 2005, 436(7049):356-362.

DOI

[70]
潘洪彬, 赵素梅, 王静, 等. 日粮不同能量水平对乌金猪脂肪组织Leptin和RBP4基因表达的影响[J]. 云南农业大学学报(自然科学), 2012, 27(1):55-59,66.

PAN H B, ZHAO S M, WANG J, et al. Effect of dietary energy levels on Leptin and RBP4 gene expression in adipose tissue of Wujin pigs[J]. Journal of Yunnan Agricultural University(Natural Science), 2012, 27(1):55-59,66. (in Chinese)

[71]
张曦, 赵素梅, 葛长荣, 等. 日粮组成和能量水平对乌金猪肉品质的影响[J]. 动物营养学报, 2008, 20(4):377-387.

ZHANG X, ZHAO S M, GE C R, et al. Effects of dietary digestible energy levels on meat quality in Wujin pig[J]. Chinese Journal of Animal Nutrition, 2008, 20(4):377-387. (in Chinese)

[72]
葛长荣, 赵素梅, 张曦, 等. 不同日粮蛋白质水平对乌金猪肉品质的影响[J]. 畜牧兽医学报, 2008, 39(12):1692-1700.

GE C R, ZHAO S M, ZHANG X, et al. Effect of dietary protein levels on meat quality in Wujin pig[J]. Acta Veterinaria et Zootechnica Sinica, 2008, 39(12):1692-1700. (in Chinese)

[73]
李德发. 中国猪营养需要[M]. 北京: 中国农业出版社, 2020.

LI D F. Nutrient requirements of swine in China[M]. Beijing: China Agriculture Press, 2020. (in Chinese)

[74]
NRC. Nutrient requirements of swine[S].11th ed. Washinton,D.C.: The National Academies Press, 2012.

Outlines

/