REVIEW

Research Progress on Effects of Intermittent Fasting on Animal Intestinal Health

  • CHEN Yuhan ,
  • ZHENG Ping
Expand
  • Key Laboratory of Disease-Resistant Nutrition of Sichuan Province, Ministry of Education, Ministry of Agriculture and Rural Affairs, Institute of Animal Nutrition, Sichuan Agriculture University, Chengdu 611130, China
*professor, E-mail:

Received date: 2023-10-27

  Online published: 2024-04-15

Abstract

The gut microbiota constitutes a crucial component of the animal intestinal system, playing a pivotal role in both intestinal growth and immune function maturation. Moreover, dysbiosis of intestinal flora is related to a variety of intestinal diseases. Diet is a key factor in determining the composition and function of gut microbiota, and intermittent fasting (IF) is a new type of feeding pattern in which fasting and eating cycles occur over a period of time. In recent years, many researches have indicated that IF maybe generates a positive impact on animal intestinal health such as intestinal microbial composition, intestinal microbial metabolites, intestinal barrier function and inflammatory response, et al. This review summarized the effects of IF on animal intestinal health, aiming to provide a reference for exploring measures to improve animal health.

Cite this article

CHEN Yuhan , ZHENG Ping . Research Progress on Effects of Intermittent Fasting on Animal Intestinal Health[J]. Chinese Journal of Animal Nutrition, 2024 , 36(4) : 2143 -2154 . DOI: 10.12418/CJAN2024.186

间歇性禁食(intermittent fasting,IF)在人类医学上作为一种治疗肥胖、高血压、炎症等疾病的方法越来越受关注。研究发现,间歇性禁食不仅对慢性疾病有良好的治疗效果,对与肠道相关的消化系统疾病也有一定作用[1],如改善炎症性肠病(inflammatory bowel disease,IBD)[2]。肠道是机体消化吸收营养物质的重要场所,肠道健康对动物健康至关重要[3]。肠道内微生物种类多样,其与宿主之间互利共生,能通过肠-脑轴[4]、肠-肝轴[5]等途径对大脑、肝脏等多种内脏器官的生理代谢产生影响。在这些肠-器官轴内,不同的微生物通过产生生物活性化合物胆汁酸和短链脂肪酸等向肠道周围器官发出信号与内分泌系统和免疫系统连接,依次调节宿主的代谢反应以及其他反应[6],所以肠道一旦受损,不仅影响健康还会增加疾病发生的风险。肠道一直是各种代谢疾病的研究重点,本综述概述了间歇性禁食对动物肠道健康的影响及在动物生产上的应用前景,旨在为探寻改善动物健康的措施提供参考。

1 间歇性禁食的概述

间歇性禁食是指限制固体食物摄入的一种饮食干预方式,在禁食期间,要求受试者不摄入任何含热量的食物,“间歇性”突出了能量限制与食物摄入交替进行的饮食模式特点[7]。基于传统、文化或宗教背景,世界各地都有不同类型的间歇性禁食。在古代医学中,禁食是最早由希波克拉底(Hippocrates)建立的一种治疗方法,之后大多数欧洲较老的医学院都推荐用它来治疗急性和慢性疾病[8]。现代人饮食习惯呈每日能量摄入周期长、禁食周期短的趋势[9],导致身体新陈代谢紊乱,肥胖、糖尿病、心血管疾病、中风、痴呆、神经退行性疾病等慢性病的发病率逐年增加[10],而间歇性禁食能够通过改变生物节律引发细胞反应,带来能量代谢不同通路的分子机制发生改变,对这些慢性疾病起到改善作用[11]。因此,近年来越来越多的动物模型和禁食措施用于研究关于间歇性禁食对人的慢性疾病和其他疾病的影响,以找到适合控制或治疗疾病的饮食干预方案。已应用于人类临床医学和啮齿动物模型研究的间歇性禁食方案主要有3种类型,分别是隔日禁食(alternate-day fasting,ADF)、限时进食(time-restricted feeding,TRF)和间歇性能量限制(intermittentenergy restriction,IER)[12]。以1个周期28 d为例,这3种间歇性禁食方案如图1所示。
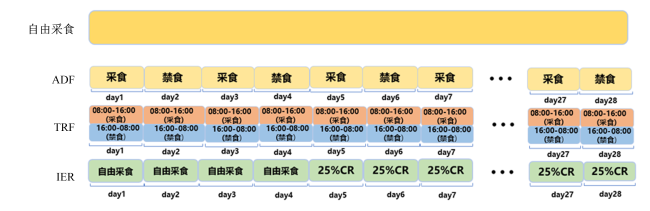
图1 3种间歇性禁食方案

ADF:隔日禁食alternate-day fasting;TRF:限时进食time-restricted feeding;IER:间歇性能量限制intermittent energy restriction;CR:calorie restriction卡路里限制。

Fig.1 Three intermittent fasting regimens[12]

1.1 隔日禁食

隔日禁食是指禁食日与正常饮食每天交替进行,禁食日完全不进食或严格限制摄入量为每日热量摄入量的25%(约2 090 kJ),正常饮食日则自由进食[13]。隔日禁食通过使能量摄入减少且不损害机体健康来达到减重、减脂以及缓解高血压等疾病的目的。Stekovic等[14]研究发现,隔日禁食对预防心血管疾病有一定作用,可以降低健康成人收缩压和舒张压、心率、动脉和脉压以及脉搏速率,降低心血管风险标志物胆固醇和三碘甲状腺原氨酸的含量。Varady等[15]对16名肥胖患者进行了为期10周的隔日禁食试验,显著降低了肥胖成人的体重、腰围和体脂肪含量,同时血脂中冠心病关键生物标志物如总胆固醇、低密度脂蛋白胆固醇、甘油三酯含量也下降了。Trepanowski等[13]在一项为期1年的随机对照试验中发现,隔日禁食使参与者总体重降低了6%,血脂中总胆固醇、低密度脂蛋白胆固醇和甘油三酯的含量也有所降低,进一步说明了隔日禁食效果在不同周期中的一致性。
除此之外,隔日禁食对延长寿命和延缓衰老也有一定作用。研究发现,与自由采食相比,隔日禁食使小鼠的寿命显著延长了11%[16]。Stekovic等[14]分析了禁食日和进食日之间的代谢和蛋白质组学变化,发现隔日禁食可以周期性地耗尽衰老氨基酸蛋氨酸,同时提高多不饱和脂肪酸的水平,并且降低与年龄相关疾病的炎症标志物可溶性细胞间黏附分子-1(soluble intercellular adhesion molecule-1,sICAM-1)含量。最新的一项研究还发现,隔日禁食改善了全脑辐照诱导的认知功能障碍小鼠的认知功能,并通过抑制星形胶质细胞活化来抑制核苷酸结合寡聚化结构域样受体家族pyrin结构域蛋白3(nucleotide binding oligomerization domain-like receptor family pyrin domain protein 3,NLRP3)炎症小体介导的海马神经元丢失,并且表现出抗炎作用[17]

1.2 限时进食

限时进食是近年来备受关注的一种被提出治疗肥胖和代谢失调的方法[18]。限时进食将食物摄入时间限制在24 h内的4~8 h,常用的时间分配方法有16/8(16 h禁食,8 h自由饮食)、18/6(18 h禁食,6 h自由饮食)、20/4(20 h禁食,4 h自由饮食)[19]。关于限时进食研究的禁食时间虽然不同,但最终结果都是降低了体重以及总胆固醇、甘油三酯、葡萄糖、胰岛素、白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α)的含量,表现出限时进食的多种代谢益处[20-21]。在不限制每日热量摄入的情况下,将能量摄入限制在8 h内,可防止由高脂肪、高糖饮食引起的代谢性疾病的有害影响[1]。Chaix等[23]综合研究了高脂肪、高糖以及高脂肪加高糖3种不同营养水平下实施限时进食对小鼠的影响,结果显示,限时进食防止了脂肪组织和非规范性脂肪负荷器官中的脂肪堆积,相应地减少了脂肪组织炎症,改善了小鼠的血糖水平、胰岛素敏感性等指标,减轻了由长期摄入高能量饮食引起的代谢综合征,预防和逆转了与致胖饮食相关的肥胖。Hatori等[24]研究了限时进食是否可以在不减少热量摄入的情况下预防喂食高脂饮食(high-fat diet,HFD)的小鼠患代谢疾病,结果显示,与对照组相比,限时进食组小鼠空腹血糖水平降低,胰岛素敏感性增加,肝脏脂肪堆积减少,保持了健康体重,没有出现代谢综合征。这一研究表明,限时进食可能是一种简单易行的营养干预策略,有助于预防和治疗多种营养相关疾病。
生物钟在维持正常代谢状态中扮演着必不可少的角色,生物钟基因突变的小鼠对代谢疾病的易感性增加[25],在Chaix等[26]的另一项研究中。给生物钟基因隐花色素1/2基因(Cry1/2)、芳香烃受体核转位蛋白样1基因(Bmal1)、核受体亚家族基因(Rev-erbα/β)敲除小鼠饲喂高脂饮食并进行限时进食9~10 h,发现当昼夜节律时钟突变小鼠被置于限时进食方案(不限制总热量摄入)时,它们通常因高脂饮食导致的肥胖和其他代谢问题(血脂异常和胰岛素抵抗)在很大程度上得到了缓解;当被随意提供食物时,小鼠的体重迅速增加,并表现出基因型特定的代谢缺陷;该研究结果指出,代谢功能障碍继发于行为节律紊乱(如饮食不规律),有时间限制的饲喂(限时进食)可以改善生物钟受损小鼠的代谢健康。

1.3 间歇性能量限制

间歇性能量限制是能量摄入限制期与无限制能量摄入期交替的饮食措施。间歇性能量限制饮食模式有许多不同的变体,包括隔日禁食法、5∶2间歇性能量限制(2 d限制卡路里摄入)和4∶3间歇性能量限制(3 d限制卡路里摄入)等。在间歇性能量限制的禁食期,能量供给通常在正常需求的0~25%[19]。间歇性能量限制被认为是改良版的隔日禁食,研究发现,限制正常饮食85%的能量供给可导致内脏脂肪、瘦素和胰岛素抵抗减少,脂联素含量增加[27],细胞增殖和胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)的含量降低[28-29],能够预防冠心病的发展。肥胖相关疾病(如糖尿病、心血管疾病、痴呆症和某些癌症如乳腺癌)可以通过减肥和胰岛素敏感性的相关改善来减轻。Harvie等[30]对115位年龄在20~69岁有乳腺癌家族遗传史的超重或肥胖女性进行能量供给25%的间歇性能量限制与每日能量限制(daily energy restriction,DER),结果显示,间歇性能量限制比每日能量限制更能降低体重、胰岛素抵抗和炎症水平,间歇性能量限制对胰岛素敏感性和体重控制比每日能量限制有更显著的改善。
间歇性能量限制还可以减少高脂饮食引起的肌肉胰岛素抵抗的发生。Higashida等[31]对喂食高脂饮食4周后的雄性大鼠每隔1 d提供食物6周,大鼠体重显著减轻,腹内体脂肪沉积减少,改善了胰岛素刺激肌肉葡萄糖摄取的作用,降低了血糖水平。Turbitt等[32]比较了间歇性能量限制、卡路里限制和抗高血糖药物对抗肿瘤免疫和免疫治疗结果的影响,证明间歇性能量限制具有通过调节葡萄糖代谢来增强免疫治疗效果的潜力。Weir等[33]用秀丽隐杆线虫(C. elegans)作为模型揭示了饮食限制和AMP活化蛋白激酶(adenosine 5'-monophosphate-activated protein kinase,AMPK)通过重塑线粒体网络和过氧化物酶体促进细胞内脂质代谢和提高抗氧化能力,从而延长寿命的分子机制。

2 间歇性禁食对肠道健康的影响

2.1 间歇性禁食重组肠道微生物群

肠道微生物群参与了关键的生理功能,如能量代谢、代谢信号和肠道屏障完整性的调节[34-36]。虽然在肠道微生物组中发现的大多数微生物都是有益的,但也有一些微生物在大量存在时会致病,而肠道微生态失调是重要的致病因素。间歇性禁食已被证明可以增加胃肠道中有益微生物的数量以及改变肠道代谢产物短链脂肪酸(乙酸、丁酸、丙酸)、神经递质(5-羟色胺、多巴胺、去甲肾上腺素、γ-氨基丁酸)、胆汁酸、下丘脑-垂体-肾上腺轴激素(皮质醇)、胃肠激素(瘦素、酪酪肽)的含量[37],从而改善肥胖病、动脉粥样硬化性心血管疾病[38]以及神经退行性疾病阿尔茨海默病的病理[39]。Li等[40]通过每隔1 d禁食(every other day fasting,EODF)方案选择性地刺激白色脂肪组织内的米色脂肪发育,结果发现EODF显著改善肥胖、胰岛素抵抗和肝脏脂肪变性,导致肠道菌群组成发生变化而使其发酵产物乙酸和乳酸的含量升高,并选择性上调米色脂肪细胞中单羧酸转运蛋白1的表达。除此之外,间歇性禁食还能通过改变肠道菌群的活性,导致肠道微生物与再生神经纤维有关的代谢物吲哚-3-丙酸含量增加,提高周围神经的再生和恢复能力[41]。Liu等[42]发现,间歇性禁食可以重建肠道中微生物和代谢物稳态,调节与认知功能相关代谢物(如3-吲哚乙酸、短链脂肪酸、牛磺熊去氧胆酸等)的含量,从而改善Ⅱ型糖尿病引起的认知功能障碍。Shi等[43]也得出间歇性禁食通过调节肠道微生物稳态,影响肠道及血液中胆汁酸含量,从而改善高血压的结论。在禁食过程中,动物的肠道运动、肠道总重量也发生了变化[44],间歇性禁食在平衡宿主肠道微生物组成和代谢之间起到了重要作用。
在多发性硬化症(multiple sclerosis,MS)动物模型中,Cignarella等[45]发现,间歇性禁食改善了MS模型动物实验性自身免疫性脑脊髓炎(experimental autoimmune encephalomy-elitis,EAE)的临床病程和病理,经间歇性禁食处理的小鼠粪便菌群移植可改善正常饮食下免疫受体小鼠的EAE,这表明间歇性禁食的作用是由肠道菌群介导的,间歇性禁食增加了肠道菌群的丰富度,乳杆菌科(Lactobacillaceae)、拟杆菌科(Bacteroidaceae)和普雷沃氏菌科(Prevotellaceae)的数量增加,增强了抗氧化微生物的代谢途径,保护宿主免受氧化应激损伤。Beli等[46]假设间歇性禁食介导的肠道微生物群变化将产生有益的代谢产物,并缓解慢性糖尿病视网膜病变的发展;使用db/db小鼠和隔日禁食方案7个月后发现禁食组小鼠肠道菌群的结构发生显著变化,主要优势菌的相对丰度改变,表现为有害菌如拟杆菌门(Bacteroidetes)、粪球菌属(Coprococcus)相对丰度降低,有益菌如乳杆菌属(Lactobacillus)、瘤胃球菌属(Ruminococcus)、颤螺菌属(Oscillospira)相对丰度增加;与自由取食的db/db小鼠相比,间歇性禁食条件下的db/db小鼠的微生物群变化与肠道黏蛋白含量、杯状细胞数量、绒毛长度的增加和血浆肽聚糖含量的减少有关;这些独特的菌群变化促进了肠道屏障的完整性。
肠道微生物群本身在组成和功能上遵循每日节律,其调节是由宿主的进食节奏驱动的[1]。食物的摄入改变了肠道微生物的固有昼夜节律,食物成分和进食时间在这一过程中发挥了作用[47]。Zarrinpar等[48]的研究发现,限时进食调整了进食时间,降低了乳酸杆菌的种类,乳球菌属(Lactococcus)的减少通过改变肠腔中的胆汁酸来保护机体免受与肥胖相关的代谢紊乱的影响,并增加了被认为有助于预防肥胖的微生物Oscillibacter、瘤胃球菌科(Ruminococcaceae)的相对丰度。此外,肠道菌群似乎与宿主的生物钟基因相互作用,并调节宿主的昼夜节律[47]。一项研究表明产气肠杆菌包含一个内源性昼夜节律钟(即独立于睡眠/觉醒、禁食/进食和昼/夜周期),可以通过分泌褪黑激素到肠道中与其宿主同步[49],且肝脏和肠道中的昼夜节律基因表达可能受到包括非共轭胆汁酸在内的微生物产物的影响[50]。Hu等[51]观察到,与生物钟基因敲除小鼠相似,抗生素诱导的小鼠肠道菌群缺失导致小鼠出现血糖、游离脂肪酸和甘油三酯含量升高的糖尿病前期状态,这表明肠道菌群在这些小鼠的肠道上皮细胞能量稳态调节中发挥重要作用[52]。综上所述,健康的肠道菌群是维持机体代谢稳态和整体健康状态所必需的,且肠道菌群的多样性和功能可以通过遵循禁食节律的周期性变化来增加。

2.2 间歇性禁食促进肠道再生

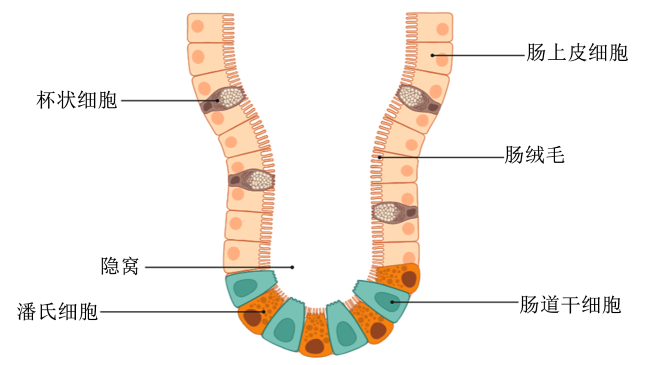
间歇性禁食可以诱导脂肪酸氧化,增强肠道干细胞功能[53]。肠上皮细胞(intestinal epithelial cells,IECs)(图2)形成重要的物理和生化屏障,可防止管腔内的微生物群落进入身体其他部位并引起感染[54]。肠道组织稳态是由肠道干细胞(intestinal stem cells,ISCs)维持的,ISCs沿基底膜排列,对应激做出反应,产生再生反应[55]。在肠道中,自噬可以帮助维持IECs的更新和ISCs的维护,从而保持肠道的完整性和正常的代谢功能[56]。哺乳动物雷帕霉素靶蛋白(mechanistic target of rapamycin,MTOR)是一种丝氨酸-苏氨酸激酶,作为细胞内能量传感器参与间歇性禁食与代谢健康的关系,空腹或葡萄糖、氨基酸浓度低时MTOR活性降低[57]。研究表明,MTOR复合物1( MTOR complex 1,MTORC1)通过磷酸化使形成的自噬调节复合物[由Unc-51样激酶1(Unc-51 like kinase 1,ULK1)和其互作蛋白自噬相关蛋白13(autophagy-related protein 13,Atg13)、200 kDa的家族相互作用蛋白(family interacting protein of 200 kDa,FIP200)、自噬相关蛋白101(autophagy-related protein 101,Atg101)等形成]失活,从而影响自噬小体的生物发生。在营养丰富的条件下,MTORC1通过介导ULK1(Ser637和Ser757)和Atg13(Ser258)特定位点磷酸化,抑制ULK1复合物的自噬,促进激酶活性[58]。而能量传感器AMPK则可以激活自噬[59-60]。当处于禁食状态时,AMPK被激活刺激细胞自噬,通过回收细胞质成分释放脂肪、糖和氨基酸,通过自噬的分解代谢活性增加营养物质的可用性[61]。限制小鼠的卡路里摄入通过抑制MTORC1,增加了潘氏细胞产生环状腺苷二磷酸核糖(cyclic adenosine diphosphate ribose,cADPR)的能力,进而促进ISCs和潘氏细胞增殖[62-63]
图2 肠上皮结构示意图

Fig.2 Intestinal epithelium structure schematic diagram[54]

ISCs增殖不仅对于持续补充IECs至关重要,对于应对肠道损伤也至关重要[64],ISCs依靠干细胞生态位因子如WNT家族成员(WNT)和表皮生长因子(EGF)的信号传导来维持干性[65]。潘氏细胞是干细胞生态位的组成部分,主要作用是分泌抗菌肽和免疫调节蛋白,其功能是调节肠道菌群的组成保护ISCs[66]。IECs隔室内的自噬缺陷导致潘氏细胞形态异常,内容物分泌功能失调[67]。Lassen等[68]通过对小鼠敲入自噬相关基因16L1(autophagy-related gene 16L1,Atg16L1)Atg16L1 T300A变异体诱导自噬缺陷发现,与野生型小鼠相比,Atg16L1 T300A变异体敲入小鼠表现出潘氏细胞溶菌酶释放减少,颗粒排列紊乱、消失、胞质内溶酶体弥漫染色等功能失调状态和杯状细胞形态异常。潘氏细胞功能失调支持其邻近ISCs的能力也会受损[59],而间歇性禁食可以增加自噬,改善潘氏细胞功能。肠隐窝具有形成多功能以及具备自我更新能力的小肠类器官的潜力[69]。Mihaylova等[53]的研究显示,对3~4个月大的幼鼠禁食24 h显著提高了隐窝器官形成能力,且与禁食时间的长短相关;该研究还进行了ISCs与潘氏细胞的共培养试验,发现间歇性禁食并没有改变ISCs或祖细胞的数量,但增强了ISCs单独或与潘氏细胞共培养时的器官形成能力,这表明间歇性禁食可以促进ISCs的再生功能。
损伤后的组织修复是一个复杂的、且对代谢要求很高的过程[70]。间歇性禁食可以增强不同组织中成体干细胞的功能[71],肠道再生可以解释禁食治疗后葡聚糖硫酸钠(dextran sulphate sodium,DSS)诱导的肠道缩短的逆转。Rangan等[72]模拟禁食饮食(fasting-mimicking diet,FMD)研究了禁食对再生标志物的影响,通过定量隐窝溴脱氧尿苷(BrdU)阳性细胞数量来评估小肠再生,结果发现,禁食提高了DSS诱导后的每个小肠隐窝的BrdU阳性细胞数量。富含亮氨酸重复序列G蛋白偶联受体5(leucine-rich repeat-containing G-protein coupled receptor 5,Lgr5)是隐窝基部柱状(crypt base columnar,CBC)干细胞的一种标志物[73],性别决定区Y框蛋白9重组蛋白(recombinant sex determining region Y box protein 9,Sox9)在CBC中表达,也在肠内分泌细胞中表达[74]。Rangan等[72]对小肠中Lgr5和Sox9进行染色以确定禁食对肠道再生的作用,DSS诱导的禁食组每个隐窝Lgr5阳性细胞数量均高于对照组小鼠;在3个DSS周期后小鼠上隐窝跨越到绒毛的Sox9阳性细胞数量减少,实施禁食后隐窝Sox9阳性细胞数量恢复并高于对照组,FMD促进了ISCs再生,这是由肠绒毛中Sox9阳性细胞的表达决定的。Song等[2]的研究也表明,小肠中Lgr5阳性细胞的数量在DSS处理下减少,而2个FMD周期后逆转了这种减少。FMD周期还显著逆转DSS介导的结肠和小肠中与细胞增殖相关的抗原Ki-67(Ki-67 antigen,Ki67)和增殖细胞核抗原(proliferating cell nuclear antigen,PCNA)阳性表达率的减少。综上所述,FMD可能通过增强肠隐窝内肠干细胞的自我更新过程和促进肠上皮细胞的再生来促进DSS诱导的肠道组织损伤的修复。

2.3 间歇性禁食缓解肠道炎症

饮食干预通过肠-脑-微生物系统促进造血系统和免疫系统的有益改变,特别是肠道微生物群的改变,有可能改善和逆转乳糜泻、结肠炎和其他炎症性疾病[71]。间歇性禁食使与炎症相关的肠道微生物肠杆菌和乳酸杆菌的相对丰度在第1周内增加,然后在干预结束时下降,可能将免疫环境从促炎转变为抗炎,从而对自身免疫性疾病起到有益的作用[75]。免疫细胞的功能会根据营养物质的可利用性和丰度而改变[76-77],间歇性禁食引发适应性的免疫细胞反应,这些反应以一种改善葡萄糖代谢的调节、增加抗应激性和抑制炎症的方式整合在器官之间及器官内部[18]。辅助性T细胞Th1和Th17细胞是免疫系统中的2种T细胞,在极端条件下增殖会发生过度炎症反应,损伤或调节健康细胞,而调节性T细胞(regulatory T cell,Treg细胞)可以抑制免疫系统中的其他T细胞[78]。MTOR的靶点是一种细胞内能量传感器,热量摄入过多会持续激活MTOR有利于Th1和Th17细胞的分化而减少Treg细胞分化的机会,加上高热量饮食的其他免疫调节作用,可能导致促炎细胞和抗炎细胞类型之间的失衡,从而导致慢性炎症[76]。Choi等[79]对小鼠进行3 d的FMD诱导了自身反应性Th1和Th17细胞的凋亡,并增强了Treg细胞群的扩张,FMD周期可能促进自身反应性T细胞凋亡,导致初始T细胞和Treg细胞比例增加。低热量饮食可能通过抑制MTOR蛋白的激活,从而改善炎症环境。
炎症性肠病肠道菌群失调的特点是微生物多样性降低,双歧杆菌属(Bifidobacterium)、Lactobacillus和普氏栖粪杆菌(F. prausnitzii)数量减少,病原菌如肠侵袭性大肠杆菌(enterinvasive E.coli)和艰难梭状芽孢杆菌(Clostridium difficile)数量增加,导致丁酸盐产量减少[80]。丁酸盐是结肠细胞的一个关键能量来源,具有强大的抗炎特性,包括促进树突状细胞的成熟、促进Treg细胞的增殖、增加抗炎细胞因子和抑制促炎细胞因子的产生、改善肠道屏障功能[81-83]。而间歇性禁食会改变肠道菌群的组成,增加抗炎细菌F. prausnitzii和嗜黏蛋白阿克曼氏菌(Akkermansia mucinophilia)的数量[75]。Wu等[84]在建立DSS诱导的小鼠结肠炎模型的基础上分析了短期(2周)间歇性禁食和长期(20周)间歇性禁食后肠道菌群和代谢组的动态变化,结果显示,间歇性禁食显著减轻了DSS诱导的急性结肠炎症状,并下调了与阿克曼氏菌属(Akkermansia)的相对丰度呈负相关的血清中促炎细胞因子白细胞介素-1α(interleukin-1α,IL-1α)、白细胞介素-6(interleukin-6,IL-6)、角化细胞源性趋化因子(keratinocyte-derived cytokine,KC)和粒细胞集落刺激因子(granulocyte colony-stimulating factor,G-CSF)含量;短期间歇性禁食显著提高了拟杆菌属(Bacteroides)、MuibaculumAkkermansia的相对丰度,显著降低了瘤胃梭菌属(Ruminiclostridium)的相对丰度;长期间歇性禁食降低了Akkermansia的相对丰度,显著增加了Lactobacillus的相对丰度,在粪便中鉴定出肌苷极显著富集;短期间歇性禁食显著降低粪便中丁酸、2-甲基丁酸和戊酸的含量。Zhang等[12]的试验发现,DSS组小鼠粪便中异丁酸的含量显著下降,而限时进食组和间歇性能量限制组结肠炎小鼠粪便中乙酸、丁酸和异丁酸的含量显著增加,且与对照组小鼠相比,限时进食组和间歇性能量限制组粪便中乙酸、丙酸、丁酸等含量也有不同程度的升高。以上结果表明,在慢性DSS小鼠模型中,间歇性禁食可以通过调节肠道菌群组成和增加菌群衍生代谢产物的产生来发挥抗炎作用,改善或逆转与炎症性肠病相关的症状和病理。

2.4 间歇性禁食对肠道的不利影响

尽管有大量研究证明了间歇性禁食对身体的益处,但也有一些研究表明当禁食时间过长或长期的周期性禁食在理论上可能会抑制对病原体的保护反应,其中一些可能与炎症性肠病的增强有关[84]。Janssen等[85]的研究发现,让小鼠禁食24 h会在大脑中引发应激反应,立即引发单核细胞从血液中大规模迁移到骨髓中,然后在重新进食后回到骨髓中的单核细胞在几小时内激增回到血液中,这种激增导致炎症水平升高,这些改变后的单核细胞不但不能防止感染,反而更具炎性,使身体对感染的抵抗力下降。Nagai等[86]对约6周龄小鼠进行禁食36 h再喂养48 h后口服卵清蛋白(ovalbumin,OVA),在随意喂养的对照组中,口服OVA免疫逐渐增加,粪便OVA特异性免疫球蛋白A(immunoglobulin A,IgA)反应直到第32天,然而禁食组的粪便OVA特异性IgA反应明显减弱,血浆OVA特异性IgA、免疫球蛋白M(immunoglobulin M,IgM)和免疫球蛋白G(immunoglobulin G,IgG)含量在禁食组中也显著降低,说明反复禁食会减弱抗原特异性IgA反应和口服耐受性,导致食物抗原诱发性腹泻加重。这些结果表明,根据喂养方案和试验动物的年龄,生长过程中的禁食和限时喂养可能会造成不利影响。此外,长期间歇性禁食使肠道长期处于无负荷的“休眠”状态,会导致肠绒毛萎缩、肠黏膜变薄,并使黏膜更新和修复能力产生障碍[87]。关莉莉等[88]在小鼠上研究了48 h禁食的影响,结果显示,禁食组与对照组相比肠壁变薄,绒毛数量减少,绒毛间距变宽,上皮细胞排列不规则,表明长期禁食可能对肠黏膜机械屏障和免疫屏障有破坏作用。
饮食组成影响细胞膜的生理特点,进而影响细胞膜透性、膜转运蛋白活性和信号转导途径[89]。研究显示,间歇性禁食和冬眠对地松鼠小肠分泌功能有影响,3 d的禁食或延长冬眠可以增强小肠上皮细胞对离子和流体运输的反应性,诱导肠内吸收和分泌因子的过度分泌状态导致病理生理状态(如便秘或腹泻),且通常伴随着肠黏膜体积和表面积的减少而发生,说明间歇性禁食或延长冬眠可增强地鼠空肠的分泌能力[90]。因此,间歇性禁食状态下营养物质组成的变化可以通过改变肠上皮细胞膜的组成和流动性来影响肠离子转运。间歇性禁食或营养不良对小肠黏膜结构和运输功能有显著影响,辅助细胞通透性的增加可能会增强营养物质的摄取,但也可能使肠道对离子和大分子的通透性升高,增加体液和电解质丢失以及对管腔抗原过敏反应的可能性,增加食物抗原和其他有毒物质通过黏膜屏障的风险[91]。间歇性禁食的正向或负向作用与机体体况也有关,最新的一项研究发现,对母鼠受孕前进行12周的隔日禁食后肠道Lactobacillus的相对丰度显著减少,母鼠在怀孕前长期的间歇性禁食会通过抑制肠道有益菌群而破坏后代的肠道屏障,导致随后的葡萄糖和脂质代谢功能障碍[92]。这些研究表明间歇性禁食的不利影响主要与禁食时间和周期相关,因此根据动物的体况合理设置禁食时间和周期对间歇性禁食发挥最佳效果至关重要。

3 小结与展望

间歇性禁食会引发机体的自我保护机制影响各种激素的分泌规律,如皮质醇、胰岛素、生长激素、瘦素、胃饥饿素、催乳素、性激素等,与抗氧化应激、降低代谢率、抗炎作用、增加自噬、抗肿瘤活性和神经保护有关。间歇性禁食与肠道健康的关系主要由肠道微生物介导,微生物群落的节律性是一个灵活的过程,受进食习惯的影响,进食时间和昼夜节律不匹配会导致肠道微生态失调,而肠道微生物平衡的破坏又反过来影响宿主通常的染色质和转录振荡,而且还会重置整个基因组以及肠道和肝脏代谢的振荡,这也是实施限时进食可以恢复回肠微生物组和转录组的昼夜节律改善肠道健康的原因。3种间歇性禁食方案对人的机体代谢健康有多种益处,尤其是在减重、预防糖尿病和高血压等心血管疾病方面的作用显著,目前对动物的研究热点主要集中在肠道健康上,通过免疫与营养的关系优化肠道微生物群,3种间歇性禁食方案的作用效果各有差异,有研究表明长期的隔日禁食会加重肠炎症状,不利于肠道免疫修复,且试验动物在隔日禁食模式下的精神状态更差,而关于人的隔日禁食试验参与者也更难坚持下去,相较而言,不管是对于人还是动物,限时进食和间歇性能量限制的应用更普适。
在禁食期间启动的器官和细胞反应会保持激活状态,即使在恢复食物摄入后,也能增强精神和身体机能以及抗病能力。生产上为了减缓仔猪断奶应激腹泻,通常在仔猪断奶后采取“少食多餐、逐渐加料”的喂养方式,而这样的过渡方式在缓解仔猪腹泻上效果甚微。在试验中发现,仔猪在断奶后第10天左右腹泻开始严重,甚至引起脱水死亡,前期的减少饲喂量并不能本质上减缓仔猪腹泻,那么参考间歇性禁食对动物肠道健康的影响,设置合理的间歇性禁食方案应用到仔猪模型上也许更具有实际意义。生产上高能饲粮可以在短时间内提高动物的日增重,但是也会导致动物脂肪沉积过多以及肉质下降,增加氮排泄和肠道代谢负担,影响肠道健康。在这种情况下,实施间歇性禁食不仅能减少饲料消耗,提高动物吸收能力,改善肠道健康,还能提高胴体品质。在未来的生产应用中,间歇性禁食可能是一种很有前景的减少炎症性肠病和改善代谢健康的方法,可能提供非药物途径的有效缓解某些疾病的作用。在畜牧领域为了提高产奶量、产蛋率、配种率等生产性能,也有类似于间歇性禁食且较为成熟的“限制饲喂”营养调控措施,如奶牛围产期限饲、鸡的育成期限饲、母猪的妊娠期限饲以及育肥猪限饲等,这些限饲方法根据动物的生长阶段和生理需求来实施,与间歇性禁食的实施方式和目的有重合又不完全相同,限饲的方法更加多样且具有灵活性,主要作用是减少采食量,使养殖畜禽的生长受到一定抑制,控制体重增长,以达到防止过早性成熟、降低体内脂肪积累的目的;而间歇性禁食主要作用是使胃肠道处于无营养或少营养状态,调节肠道菌群,以达到预防和缓解由饮食和肠道问题引起的某些疾病的目的。因此,将间歇性禁食的作用与动物抗病营养联系起来对提高动物对应激和疾病的抵抗力意义深远。
[1]
FRANK J, GUPTA A, OSADCHIY V, et al. Brain-gut-microbiome interactions and intermittent fasting in obesity[J]. Nutrients, 2021, 13(2):584.

DOI

[2]
SONG S, BAI M J, LING Z Q, et al. Intermittent administration of a fasting-mimicking diet reduces intestinal inflammation and promotes repair to ameliorate inflammatory bowel disease in mice[J]. The Journal of Nutritional Biochemistry, 2021, 96:108785.

DOI

[3]
田玉, 杨玲媛, 黄兴国, 等. 粪菌移植改善猪肠道屏障功能的研究进展[J]. 动物营养学报, 2023, 35(4):2072-2080.

DOI

TIAN Y, YANG Y L, HUANG X G, et al. Research progress of fecal microbiota transplantation in improving intestinal barrier function in pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2072-2080. (in Chinese)

DOI

[4]
DONOSO F, EGERTON S, BASTIAANSSEN T F S, et al. Polyphenols selectively reverse early-life stress-induced behavioural,neurochemical and microbiota changes in the rat[J]. Psychoneuroendocrinology, 2020, 116:104673.

DOI

[5]
WANG T Y, TAO S Y, WU Y X, et al. Quinoa reduces high-fat diet-induced obesity in mice via potential microbiota-gut-brain-liver interaction mechanisms[J]. Microbiology Spectrum, 2022, 10(3):e0032922.

DOI

[6]
SCHROEDER B O, BÄCKHED F. Signals from the gut microbiota to distant organs in physiology and disease[J]. Nature Medicine, 2016, 22(10):1079-1089.

DOI PMID

[7]
MATTSON M P, LONGO V D, HARVIE M. Impact of intermittent fasting on health and disease processes[J]. Ageing Research Reviews, 2017, 39:46-58.

DOI PMID

[8]
MICHALSEN A. Prolonged fasting as a method of mood enhancement in chronic pain syndromes:a review of clinical evidence and mechanisms[J]. Current Pain and Headache Reports, 2010, 14(2):80-87.

DOI

[9]
GILL S, PANDA S. A smartphone app reveals erratic diurnal eating patterns in humans that can be modulated for health benefits[J]. Cell Metabolism, 2015, 22(5):789-798.

DOI PMID

[10]
WANG Y R, WU R L. The effect of fasting on human metabolism and psychological health[J]. Disease Markers, 2022, 2022:5653739.

[11]
郭娴, 周雁冰, 刘晶莹, 等. 间歇性禁食国际研究进展与热点的可视化分析[J]. 中国全科医学, 2023, 26(16):2036-2046,2054.

GUO X, ZHOU Y B, LIU J Y, et al. Visualization analysis of global advances and hot spots in intermittent fasting[J]. Chinese General Practice, 2023, 26(16):2036-2046,2054. (in Chinese)

[12]
ZHANG X, ZOU Q H, ZHAO B T, et al. Effects of alternate-day fasting,time-restricted fasting and intermittent energy restriction DSS-induced on colitis and behavioral disorders[J]. Redox Biology, 2020, 32:101535.

DOI

[13]
TREPANOWSKI J F, KROEGER C M, BARNOSKY A, et al. Effect of alternate-day fasting on weight loss,weight maintenance,and cardioprotection among metabolically healthy obese adults:a randomized clinical trial[J]. JAMA Internal Medicine, 2017, 177(7):930-938.

DOI

[14]
STEKOVIC S, HOFER S J, TRIPOLT N, et al. Alternate day fasting improves physiological and molecular markers of aging in healthy,non-obese humans[J]. Cell Metabolism, 2019, 30(3):462-476.e6.

DOI

[15]
VARADY K A, BHUTANI S, CHURCH E C, et al. Short-term modified alternate-day fasting:a novel dietary strategy for weight loss and cardioprotection in obese adults[J]. The American Journal of Clinical Nutrition, 2009, 90(5):1138-1143.

DOI

[16]
MITCHELL S J, BERNIER M, MATTISON J A, et al. Daily fasting improves health and survival in male mice independent of diet composition and calories[J]. Cell Metabolism, 2019, 29(1):221-228.e3.

DOI PMID

[17]
WU Q, YU M, WANG Z, et al. Alternate-day fasting for the protection of cognitive impairment in C57BL/6J mice following whole-brain radiotherapy[J]. Neurochemistry International, 2023, 162:105463.

DOI

[18]
DE CABO R, MATTSON M P. Effects of intermittent fasting on health,aging,and disease[J]. The New England Journal of Medicine, 2019, 381(26):2541-2551.

DOI

[19]
MALINOWSKI B, ZALEWSKA K, WESIERSKA A, et al. Intermittent fasting in cardiovascular disorders-an overview[J]. Nutrients, 2019, 11(3):673.

DOI

[20]
ROTHSCHILD J, HODDY K K, JAMBAZIAN P, et al. Time-restricted feeding and risk of metabolic disease:a review of human and animal studies[J]. Nutrition Reviews, 2014, 72(5):308-318.

DOI

[21]
LONGO V D, PANDA S. Fasting,circadian rhythms,and time-restricted feeding in healthy lifespan[J]. Cell Metabolism, 2016, 23(6):1048-1059.

DOI

[22]
CHAIX A, ZARRINPAR A, MIU P, et al. Time-restricted feeding is a preventative and therapeutic intervention against diverse nutritional challenges[J]. Cell Metabolism, 2014, 20(6):991-1005.

DOI PMID

[23]
HATORI M, VOLLMERS C, ZARRINPAR A, et al. Time-restricted feeding without reducing caloric intake prevents metabolic diseases in mice fed a high-fat diet[J]. Cell Metabolism, 2012, 15(6):848-860.

DOI PMID

[24]
ZARRINPAR A, CHAIX A, PANDA S. Daily eating patterns and their impact on health and disease[J]. Trends in Endocrinology and Metabolism, 2016, 27(2):69-83.

DOI PMID

[25]
CHAIX A, LIN T, LE H D, et al. Time-restricted feeding prevents obesity and metabolic syndrome in mice lacking a circadian clock[J]. Cell Metabolism, 2019, 29(2):303-319.e4.

DOI PMID

[26]
VARADY K A, HUDAK C S, HELLERSTEIN M K. Modified alternate-day fasting and cardioprotection:relation to adipose tissue dynamics and dietary fat intake[J]. Metabolism, 2009, 58(6):803-811.

DOI

[27]
VARADY K A, ROOHK D J, MCEVOY-HEIN B K, et al. Modified alternate-day fasting regimens reduce cell proliferation rates to a similar extent as daily calorie restriction in mice[J]. The FASEB Journal, 2008, 22(6):2090-2096.

DOI

[28]
VARADY K A, ROOHK D J, LOE Y C, et al. Effects of modified alternate-day fasting regimens on adipocyte size,triglyceride metabolism,and plasma adiponectin levels in mice[J]. Journal of Lipid Research, 2007, 48(10):2212-2219.

DOI

[29]
HARVIE M, WRIGHT C, PEGINGTON M, et al. The effect of intermittent energy and carbohydrate restriction v. daily energy restriction on weight loss and metabolic disease risk markers in overweight women[J]. British Journal of Nutrition, 2013, 110(8):1534-1547.

DOI

[30]
HIGASHIDA K, FUJIMOTO E, HIGUCHI M, et al. Effects of alternate-day fasting on high-fat diet-induced insulin resistance in rat skeletal muscle[J]. Life Sciences, 2013, 93(5/6):208-213.

DOI

[31]
TURBITT W J, DEMARK-WAHNEFRIED W, PETERSON C M, et al. Targeting glucose metabolism to enhance immunotherapy:emerging evidence on intermittent fasting and calorie restriction mimetics[J]. Frontiers in Immunology, 2019, 10:1402.

DOI

[32]
WEIR H J, YAO P, HUYNH F K, et al. Dietary restriction and AMPK increase lifespan via mitochondrial network and peroxisome remodeling[J]. Cell Metabolism, 2017, 26(6):884-896.e5.

DOI PMID

[33]
CLAVEL T, DESMARCHELIER C, HALLER D, et al. Intestinal microbiota in metabolic diseases:from bacterial community structure and functions to species of pathophysiological relevance[J]. Gut Microbes, 2014, 5(4):544-551.

DOI

[34]
RIAL S A, KARELIS A D, BERGERON K F, et al. Gut microbiota and metabolic health:the potential beneficial effects of a medium chain triglyceride diet in obese individuals[J]. Nutrients, 2016, 8(5):281.

DOI

[35]
LEVY M, THAISS C A, ZEEVI D, et al. Microbiota-modulated metabolites shape the intestinal microenvironment by regulating NLRP6 inflammasome signaling[J]. Cell, 2015, 163(6):1428-1443.

DOI PMID

[36]
FARIAS N M M, SILVA B C, ROZOWSKI N J. Gut microbiota:role in obesity[J]. Revista Chilena de Nutrición, 2011, 38(2):228-233.

DOI

[37]
HU X W, XIA K, DAI M H, et al. Intermittent fasting modulates the intestinal microbiota and improves obesity and host energy metabolism[J]. NPJ Biofilms and Microbiomes, 2023, 9(1):19.

DOI PMID

[38]
PAN R Y, ZHANG J, WANG J L, et al. Intermittent fasting protects against Alzheimer’s disease in mice by altering metabolism through remodeling of the gut microbiota[J]. Nature Aging, 2022, 2(11):1024-1039.

DOI

[39]
LI G L, XIE C, LU S Y, et al. Intermittent fasting promotes white adipose browning and decreases obesity by shaping the gut microbiota[J]. Cell Metabolism, 2017, 26(4):672-685.e4.

DOI

[40]
SERGER E, LUENGO-GUTIERREZ L, CHADWICK J S, et al. The gut metabolite indole-3 propionate promotes nerve regeneration and repair[J]. Nature, 2022, 607(7919):585-592.

DOI

[41]
LIU Z G, DAI X S, ZHANG H B, et al. Gut microbiota mediates intermittent-fasting alleviation of diabetes-induced cognitive impairment[J]. Nature Communications, 2020, 11(1):855.

DOI PMID

[42]
SHI H N, ZHANG B J, ABO-HAMZY T, et al. Restructuring the gut microbiota by intermittent fasting lowers blood pressure[J]. Circulation Research, 2021, 128(9):1240-1254.

DOI PMID

[43]
KOHL K D, AMAYA J, PASSEMENT C A, et al. Unique and shared responses of the gut microbiota to prolonged fasting:a comparative study across five classes of vertebrate hosts[J]. FEMS Microbiology Ecology, 2014, 90(3):883-894.

DOI

[44]
CIGNARELLA F, CANTONI C, GHEZZI L, et al. Intermittent fasting confers protection in CNS autoimmunity by altering the gut microbiota[J]. Cell Metabolism, 2018, 27(6):1222-1235.e6.

DOI PMID

[45]
BELI E, YAN Y Q, MOLDOVAN L, et al. Restructuring of the gut microbiome by intermittent fasting prevents retinopathy and prolongs survival in db/db mice[J]. Diabetes, 2018, 67(9):1867-1879.

DOI

[46]
HEATH-HECKMAN E A C, PEYER S M, WHISTLER C A, et al. Bacterial bioluminescence regulates expression of a host cryptochrome gene in the squid-Vibrio symbiosis[J]. mBio, 2013, 4(2):e00167-13.

[47]
ZARRINPAR A, CHAIX A, YOOSEPH S, et al. Diet and feeding pattern affect the diurnal dynamics of the gut microbiome[J]. Cell Metabolism, 2014, 20(6):1006-1017.

DOI PMID

[48]
PAULOSE J K, CASSONE V M. The melatonin-sensitive circadian clock of the enteric bacterium Enterobacter aerogenes[J]. Gut Microbes, 2016, 7(5):424-427.

DOI

[49]
GOVINDARAJAN K, MACSHARRY J, CASEY P G, et al. Unconjugated bile acids influence expression of circadian genes:a potential mechanism for microbe-host crosstalk[J]. PLoS One, 2016, 11(12):e0167319.

DOI

[50]
HU D D, XIE Z B, YE Y Q, et al. The beneficial effects of intermittent fasting:an update on mechanism,and the role of circadian rhythm and gut microbiota[J]. Hepatobiliary Surgery and Nutrition, 2020, 9(5):597-602.

DOI

[51]
MUKHERJI A, KOBIITA A, YE T, et al. Homeostasis in intestinal epithelium is orchestrated by the circadian clock and microbiota cues transduced by TLRs[J]. Cell, 2013, 153(4):812-827.

DOI PMID

[52]
MIHAYLOVA M M, CHENG C W, CAO A Q, et al. Fasting activates fatty acid oxidation to enhance intestinal stem cell function during homeostasis and aging[J]. Cell Stem Cell, 2018, 22(5):769-778.e4.

DOI PMID

[53]
PETERSON L W, ARTIS D. Intestinal epithelial cells:regulators of barrier function and immune homeostasis[J]. Nature Reviews Immunology, 2014, 14(3):141-153.

DOI

[54]
CATTERSON J H, KHERICHA M, DYSON M C, et al. Short-term,intermittent fasting induces long-lasting gut health and TOR-independent lifespan extension[J]. Current Biology, 2018, 28(11):1714-1724.e4.

DOI

[55]
FOERSTER E G, MUKHERJEE T, CABRAL-FERNANDES L, et al. How autophagy controls the intestinal epithelial barrier[J]. Autophagy, 2022, 18(1):86-103.

DOI

[56]
MATÍAS-PÉREZ D, HERNÁNDEZ-BAUTISTA E, GARCÍA-MONTALVO I A. Intermittent fasting may optimize intestinal microbiota,adipocyte status and metabolic health[J]. Asia Pacific Journal of Clinical Nutrition, 2022, 31(1):16-23.

[57]
KIM J, KUNDU M, VIOLLET B, et al. AMPK and mTOR regulate autophagy through direct phosphorylation of Ulk1[J]. Nature Cell Biology, 2011, 13(2):132-141.

DOI PMID

[58]
EGAN D F, SHACKELFORD D B, MIHAYLOVA M M, et al. Phosphorylation of ULK1 (hATG1) by AMP-activated protein kinase connects energy sensing to mitophagy[J]. Science, 2011, 331(6016):456-461.

DOI PMID

[59]
LIN S C, HARDIE D G. AMPK:sensing glucose as well as cellular energy status[J]. Cell Metabolism, 2018, 27(2):299-313.

DOI

[60]
BOYA P, REGGIORI F, CODOGNO P. Emerging regulation and functions of autophagy[J]. Nature Cell Biology, 2013, 15(7):713-720.

DOI PMID

[61]
IGARASHI M, GUARENTE L. mTORC1 and SIRT1 cooperate to foster expansion of gut adult stem cells during calorie restriction[J]. Cell, 2016, 166(2):436-450.

DOI PMID

[62]
YILMAZ Ö H, KATAJISTO P, LAMMING D W, et al. mTORC1 in the paneth cell niche couples intestinal stem-cell function to calorie intake[J]. Nature, 2012, 486(7404):490-495.

DOI

[63]
LEVY A, STEDMAN A, DEUTSCH E, et al. Innate immune receptor NOD2 mediates LGR5+ intestinal stem cell protection against ROS cytotoxicity via mitophagy stimulation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2020, 117(4):1994-2003.

[64]
GEHART H, CLEVERS H. Tales from the crypt:new insights into intestinal stem cells[J]. Nature Reviews Gastroenterology & Hepatology, 2019, 16(1):19-34.

[65]
LUESCHOW S R, MCELROY S J. The paneth cell:the curator and defender of the immature small intestine[J]. Frontiers in Immunology, 2020, 11:587.

DOI

[66]
BENJAMIN J L, SUMPTER R,Jr, LEVINE B, et al. Intestinal epithelial autophagy is essential for host defense against invasive bacteria[J]. Cell Host & Microbe, 2013, 13(6):723-734.

[67]
LASSEN K G, KUBALLA P, CONWAY K L, et al. Atg16L1 T300A variant decreases selective autophagy resulting in altered cytokine signaling and decreased antibacterial defense[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(21):7741-7746.

DOI PMID

[68]
SATO T, VRIES R G, SNIPPERT H J, et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche[J]. Nature, 2009, 459(7244):262-265.

DOI

[69]
EMING S A, WYNN T A, MARTIN P. Inflammation and metabolism in tissue repair and regeneration[J]. Science, 2017, 356(6342):1026-1030.

DOI PMID

[70]
MIHAYLOVA M M, SABATINI D M, YILMAZ Ö H. Dietary and metabolic control of stem cell function in physiology and cancer[J]. Cell Stem Cell, 2014, 14(3):292-305.

DOI PMID

[71]
RANGAN P, CHOI I, WEI M, et al. Fasting-mimicking diet modulates microbiota and promotes intestinal regeneration to reduce inflammatory bowel disease pathology[J]. Cell Reports, 2019, 26(10):2704-2719.e6.

DOI PMID

[72]
BARKER N. Adult intestinal stem cells:critical drivers of epithelial homeostasis and regeneration[J]. Nature Reviews Molecular Cell Biology, 2014, 15(1):19-33.

DOI

[73]
FORMEISTER E J, SIONAS A L, LORANCE D K, et al. Distinct SOX9 levels differentially mark stem/progenitor populations and enteroendocrine cells of the small intestine epithelium[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2009, 296(5):G1108-G1118.

[74]
REMELY M, HIPPE B, GERETSCHLAEGER I, et al. Increased gut microbiota diversity and abundance of Faecalibacterium prausnitzii and Akkermansia after fasting:a pilot study[J]. Wiener Klinische Wochenschrift, 2015, 127(9):394-398.

DOI

[75]
CELIBERTO L S, GRAEF F A, HEALEY G R, et al. Inflammatory bowel disease and immunonutrition:novel therapeutic approaches through modulation of diet and the gut microbiome[J]. Immunology, 2018, 155(1):36-52.

DOI

[76]
BUCK M D, SOWELL R T, KAECH S M, et al. Metabolic instruction of immunity[J]. Cell, 2017, 169(4):570-586.

DOI PMID

[77]
HU S R, CHEN M M, WANG Y L, et al. mTOR inhibition attenuates dextran sulfate sodium-induced colitis by suppressing T cell proliferation and balancing TH1/TH17/Treg profile[J]. PLoS One, 2016, 11(4):e0154564.

DOI

[78]
CHOI I Y, PICCIO L, CHILDRESS P, et al. A diet mimicking fasting promotes regeneration and reduces autoimmunity and multiple sclerosis symptoms[J]. Cell Reports, 2016, 15(10):2136-2146.

DOI PMID

[79]
ANDOH A, KUZUOKA H, TSUJIKAWA T, et al. Multicenter analysis of fecal microbiota profiles in Japanese patients with Crohn’s disease[J]. Journal of Gastroenterology, 2012, 47(12):1298-1307.

DOI

[80]
MILLARD A L, MERTES P M, ITTELET D, et al. Butyrate affects differentiation, maturation and function of human monocyte-derived dendritic cells and macrophages[J]. Clinical and Experimental Immunology, 2002, 130(2):245-255.

DOI PMID

[81]
FURUSAWA Y, OBATA Y, FUKUDA S, et al. Commensal microbe-derived butyrate induces the differentiation of colonic regulatory T cells[J]. Nature, 2013, 504(7480):446-450.

DOI

[82]
SIDDIQUI M T, CRESCI G A M. The immunomodulatory functions of butyrate[J]. Journal of Inflammation Research, 2021, 14:6025-6041.

DOI PMID

[83]
WU J J, MAN D, SHI D, et al. Intermittent fasting alleviates risk markers in a murine model of ulcerative colitis by modulating the gut microbiome and metabolome[J]. Nutrients, 2022, 14(24):5311.

DOI

[84]
JANSSEN H, KAHLES F, LIU D, et al. Monocytes re-enter the bone marrow during fasting and alter the host response to infection[J]. Immunity, 2023, 56(4):783-796.e7.

DOI

[85]
NAGAI M, NOGUCHI R, TAKAHASHI D, et al. Fasting-refeeding impacts immune cell dynamics and mucosal immune responses[J]. Cell, 2019, 178(5):1072-1087.e14.

DOI PMID

[86]
张果, 伦明辉, 刘海光, 等. 禁食降低肠黏膜屏障的形态学观察及对肠道细菌易位的影响[J]. 大连医科大学学报, 2003, 25(1):25-27.

ZHANG G, LUN M H, LIU H G, et al. Change of intestinal barrier after fasting in animals:observations of morphology and bacteria translocation[J]. Journal of Dalian Medical University, 2003, 25(1):25-27. (in Chinese)

[87]
关莉莉, 宫德正, 邹原. 禁食降低肠道粘膜屏障的形态学及免疫学观察[C]//中国生理学会第21届全国代表大会暨学术会议论文摘要汇编. 北京: 中国生理学会, 2002:212.

GUAN L L, GONG D Z, ZOU Y. Change of intestinal barrier after fasting in animals:observations of morphology and immunology[C]// Chinese Association for Physiological Science of the 21st Abstracts of National Congress and Academic Conference. Beijing: Chinese Association for Physiological Sciences, 2002:212. (in Chinese)

[88]
WAHEED A A, GUPTA P D. Changes in structural and functional properties of rat intestinal brush border membrane during starvation[J]. Life Sciences, 1997, 61(25):2425-2433.

PMID

[89]
CAREY H V. Effects of fasting and hibernation on ion secretion in ground squirrel intestine[J]. The American Journal of Physiology, 1992, 263(6Pt2):R1203-R1208.

[90]
FERRARIS R P, CAREY H V. Intestinal transport during fasting and malnutrition[J]. Annual Review of Nutrition, 2000, 20:195-219.

PMID

[91]
LIANG Y, YIN W Z, LUO C, et al. Maternal intermittent fasting in mice disrupts the intestinal barrier leading to metabolic disorder in adult offspring[J]. Communications Biology, 2023, 6(1):30.

DOI PMID

Outlines

/