RESEARCH PAPER

Study on Plasma Metabolomics before and after Short Distance Race of Speed Yili Horses

  • SUN Yuanfang , 1 ,
  • MA Yong 1 ,
  • WANG Jianwen 1, 2 ,
  • ZENG Yaqi 1, 2 ,
  • MENG Jun 1, 2 ,
  • YUAN Xinxin 1 ,
  • LI Wanqing 1 ,
  • HUANG Jinlong 1 ,
  • HUANG Yunjiang 1 ,
  • YAO Xinkui , 1, 2
Expand
  • 1 College of Animal Science, Xinjiang Agricultural University, Urumqi 830052, China
  • 2 Xinjiang Key Laboratory of Horse Breeding and Exercise Physiology, Urumqi 830052, China
*professor, E-mail:

Received date: 2023-11-15

  Online published: 2024-04-15

Abstract

This study aimed to screen the plasma differential metabolites before and after short distance race of Yili horses by non-targeted metabolomics technology. Six Yili horses with the best performance of 2 000 m in Xinjiang Speed Racing Open were selected to collect the cervical venous blood before and after the race and prepare plasma. Non-targeted metabolomics detection was performed on the plasma samples based on liquid chromatogre-mass spectrometry (LC-MS), and the differential metabolites before and after short distance races of Yili horses were screened and pathway enrichment analysis was performed. The results showed that compared with the pre-race, the differential metabolites in positive and negative ion modes were screened after the race. Among them, L-leucyl-L-alanine, N-lactophenylalanine, acetylcarnitine, allantoin were significantly higher than those before the race (P<0.05); creatinine, cortisol, lipoic acid, 2-aminoadipic acid, N-acetyl-L-methionine, xanthosine were significantly lower than those before the race (P<0.05). The differential metabolites were significantly enriched in pyrimidine metabolism, phenylalanine metabolism, and alpha-linolenic acid metabolism, steroid hormone biosynthesis, bile secretion, aldosterone synthesis and secretion and other pathways. The metabolites of Yili horses change significantly before and after the short distance race, which provide a theoretical basis for post-race recovery and breeding of excellent horses.

Cite this article

SUN Yuanfang , MA Yong , WANG Jianwen , ZENG Yaqi , MENG Jun , YUAN Xinxin , LI Wanqing , HUANG Jinlong , HUANG Yunjiang , YAO Xinkui . Study on Plasma Metabolomics before and after Short Distance Race of Speed Yili Horses[J]. Chinese Journal of Animal Nutrition, 2024 , 36(4) : 2561 -2571 . DOI: 10.12418/CJAN2024.220

马因其卓越的运动能力,对了解运动和训练对全身和骨骼肌代谢的影响有重要意义[1]。在人类中,针对急性运动或训练的肌肉代谢研究集中在不同的肌肉收缩模式后发生的基因组、转录组、蛋白质组等各种分子机制[2]。此外,在血液中进行的有关能量产生和利用也已成为代谢运动生理学研究的主要内容[3]
在短时间高强度运动中,机体内的代谢物会产生较大的波动,使体内碳水化合物和脂质的利用率等发生变化[4]。将代谢组学和运动相结合比较代谢物在血浆、尿液、组织中的差异,根据不同强度运动和持续时间,对运动的干预监测和营养代谢等方面进行研究,可以更好地了解运动和营养干预导致机体生理状态的改变,为日常运动训练以及体育赛事等实际应用提供理论基础[5]。Jang等[6]基于核磁共振氢谱(1H-NMR)的代谢组学方法,分析测定纯血马运动前后血浆代谢物,发现丙氨酸等25种差异代谢物,认为通过分析差异代谢物的代谢模式及途径,有助于了解马运动的代谢调节和代谢标记物的开发。张仕琦等[7]基于液相色谱-质谱(LC-MS)血浆代谢组学的分析,发现伊犁马3 600 m速度赛前、赛后血浆样本的LC-MS代谢谱存在差异,涉及柠檬酸循环、脂肪代谢等过程。代谢组学为人类运动和训练的能量需求提供了重要的见解,但其在马运动生理学领域应用仍然滞后,代谢组学在运动马中的应用可以使我们了解马匹在运动过程中机体的适应性变化,有助于改善马匹的管理、保障马匹健康,并提高我们对马匹运动和训练适应的科学理解。因此,本研究以速度型伊犁马为研究对象,采集短途比赛赛前及赛后即刻的血液样本,基于代谢组学方法,筛选出标志性的血浆差异代谢物,为速度型伊犁马赛后疲劳恢复及选种选育提供数据参考。

1 材料与方法

1.1 试验动物

本试验选取2023年7月在新疆伊犁哈萨克自治州昭苏天马旅游文化园进行的2场伊犁马2 000 m新疆速度赛马公开赛中综合成绩排名前6名的马,其中公马2匹,母马4匹,均无显著血缘关系,训练强度基本一致。参赛马匹为3~5岁健康的伊犁马。

1.2 样本采集

分别在每场比赛前静息状态以及赛后即刻使用肝素钠抗凝管采集马匹颈静脉血液样本10 mL,随后立即进行3 500 r/min离心15 min,取血浆1.5 mL于冻存管中,立刻投入液氮保存,后再转入-80 ℃冰箱,用于血浆代谢组学检测。

1.3 样本预处理

试验样本预处理:取样本100 μL于EP管中,加入80%甲醇溶液400 μL,涡旋振荡,冰水中静置5 min,15 000×g、4 ℃离心15 min;取适量上清液加入质谱级水进行稀释,直至甲醇含量降低至53%;在15 000×g、4 ℃条件下离心15 min,取上清液进行LC-MS分析。

1.4 色谱和质谱分析

由于代谢物性质不同,离子化后,有容易带正电荷或容易带负电荷以及属于两性物质的代谢物。为了检测到更多的代谢物,故分为正、负离子2个模式分别检测。色谱条件为:样本使用Hypersil Goldcolumn(C18)色谱柱进行分离,色谱柱温度40 ℃,流速:0.2 mL/min;正离子模式下的流动相组成:A相为0.1%甲酸,B相为甲醇。负离子模式下的流动相组成:A相为5 mmol/L醋酸铵,pH 9.0,B相为甲醇。质谱条件为扫描范围选择m/z 100~1 500,ESI源的设置如下:Spray Voltage:3.5 kV; Sheath gas flow rate:35 psi; Aux Gas flow rate:10 L/min; Capil Temp:320 ℃; S-lens RF level:60; Aux gas heater temp:350 ℃;Polarity: positive, negative;MS/MS 二级扫描为data-dependent scans。液相色谱流动相条件见表1
表1 液相色谱流动相条件

Table 1 Liquid chromatography mobile phase conditions%

时间
Time/min
A相
Solvent A
B相
Solvent B
0 98 2
1.5 98 2
3.0 15 85
10.0 0 100
10.1 98 2
11.0 98 2
12.0 98 2

1.5 数据统计分析

使用KEGG数据库、HMDB数据库和LIPIDMaps数据库对鉴定到的代谢物进行注释。多元统计分析使用代谢组学数据处理软件metaX,对数据进行转换后进行主成分分析(PCA)和偏最小二乘法判别分析(PLS-DA),进而得到每个代谢物的变量投影重要度(VIP)值。单变量分析基于t检验来计算各代谢物在2组间统计学显著性(P值),并计算代谢物在2组间的差异倍数(fold change,FC)。差异代谢物筛选的默认标准为VIP>1,P<0.05且FC>1.2或FC<0.833。聚类热图使用R包Pheatmap进行绘制,使用z-score对代谢物数据进行归一化。气泡图使用R包ggplot2进行绘制,使用KEGG数据库来研究代谢物的功能和代谢途径,当x/n>y/n时,认为该代谢途径富集;当代谢途径的P<0.05时,认为该代谢途径是显著富集。

2 结果与分析

2.1 PCA

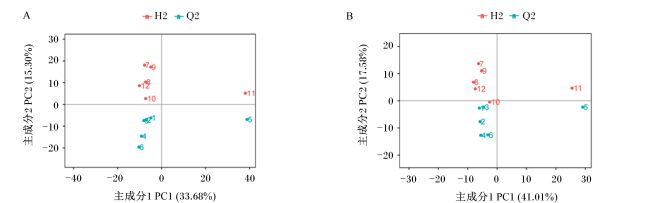
为了验证组内样本的重复性,对检测结果进行PCA,样本在正离子模式下,结果如图1-A所示,其主成分1(PC1)可以解释原始数据集的33.68%特征,主成分2(PC2)可以解释原始数据集的15.30%特征;在负离子模式下,结果如图1-B所示,其PC1可以解释原始数据集的41.01%特征,PC2可以解释原始数据集的17.85%特征。差异代谢离子的PCA识别出的散点聚集,离散性较好,代表相似性好。PCA结果中2组样本组间分离明显,表明组间代谢物发生了明显变化。
图1 血浆代谢物主成分分析图

Q2表示比赛前,H2表示比赛后。下图同。A为正离子模式下主成分分析图,B为负离子模式下主成分分析图。

Fig.1 Principal component analysis diagram of plasma metabolites

Q2 indicates before the competition, H2 indicates after the competition. The same as below. A is PCA diagram in positive ion mode, B is PCA diagram in negative ion mode.

2.2 PLS-DA

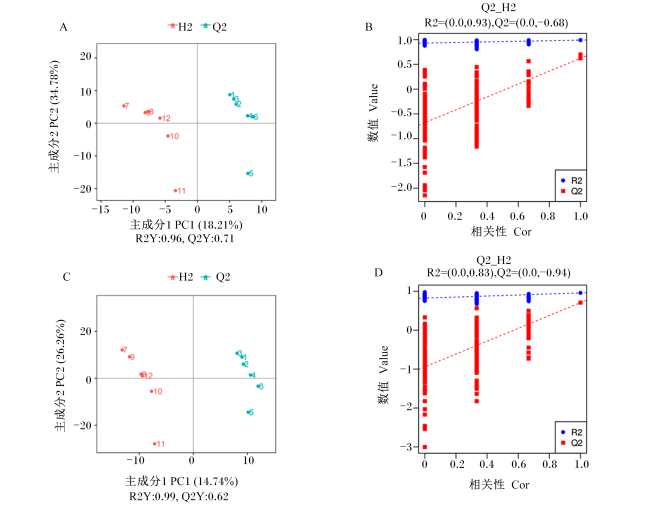
PLS-DA结果如图2所示,比赛前后的主成分模式分离显著,无重叠现象。通过分析血浆差异代谢物,在正离子模式下,获得的R2Y为0.96(图2-A);在负离子模式下,获得的R2Y为0.99,(图2-C),表示该模型解释率高;对该模型参数R2和Q2进行置换检验,结果显示(图2-B图2-D)差异代谢物的R2Y值均高于Q2Y值,说明样本数据描述良好,没有过拟合现象,2组样品检测结果间存在差异。
图2 PLS-DA得分散点图及排序验证图

R2Y表示模型的解释率,Q2Y表示模型的预测能力。

A:正离子模式下PLS-DA得分散点图;B:正离子模式下PLS-DA排序验证图;C:负离子模式下PLS-DA得分散点图;D:负离子模式下PLS-DA排序验证图。

Fig.2 PLS-DA distribution and sequencing verification diagram

R2Y represents the explanatory power of the model, Q2Y represents the predictive power of the model.

A: PLS-DA dispersion diagram in positive ion mode; B: PLS-DA sequencing verification diagram in positive ion mode; C: PLS-DA dispersion diagram in negative ion mode; D: PLS-DA sequencing verification diagram in negative ion mode.

2.3 差异代谢物筛选

根据多变量统计分析PLS-DA获得的变量重要性VIP值,结合单变量分析FC和t检验结果,按照变量重要性VIP>1,P<0.05且FC>1.2或FC<0.833为标准进行差异代谢物筛选,共筛选出差异代谢物161种。在正离子模式下,伊犁马2 000 m比赛前后血浆检测结果中差异代谢物共108种,显著性排名前40代谢物如表2所示,伊犁马赛后血浆中烟酰胺、萨利麝香、L-亮氨酸-L-丙氨酸等11种差异代谢物含量较赛前显著上调(P<0.05),肌酸酐、皮质醇、硫辛酸等29种差异代谢物含量较赛前显著下调(P<0.05)。
表2 血浆差异代谢标志物(正离子模式下)

Table 2 Plasma differential metabolic markers (in positive ion mode)

代谢物
Metabolite
变量投影重要度
VIP
P
P-value
差异倍数
FC
趋势
Trent
尿酸 Uric acid 3.618 2 <0.000 1 0.029 1 下调
萨利麝香 Celestolide 3.060 8 <0.000 1 6.709 0 上调
N6琥珀酰腺苷 N6-succinyl adenosine 3.084 4 <0.000 1 0.021 6 下调
L-亮氨酸-L-丙氨酸 L-leucyl-L-alanine 3.216 8 0.000 1 11.717 7 上调
4-吡哆酸 4-pyridoxic acid 2.754 8 0.000 2 0.239 8 下调
2,6-二羟基嘌呤 2,6-dihydroxypurine 2.915 1 0.000 7 0.094 6 下调
前列腺素 K2 Prostaglandin K2 2.452 3 0.000 7 3.734 6 上调
吲哚-3-丙酮酸 Indole-3-pyruvic acid 2.287 5 0.000 8 0.297 2 下调
脲基琥珀酸 Ureidosuccinic acid 2.240 8 0.000 8 0.363 6 下调
脱氧胞苷 Deoxycytidine 2.326 6 0.000 9 0.265 4 下调
苯丙氨酸-脯氨酸 Phe-Pro 2.600 5 0.001 3 2.096 6 上调
四氢可的松 Tetrahydrocortisone 2.060 0 0.001 4 0.301 1 下调
脱氧尿嘧啶核苷酸 dUMP 3.473 4 0.001 5 0.119 0 下调
胸腺嘧啶 Thymine 2.155 0 0.001 6 0.251 3 下调
O6-羧甲基-脱氧鸟苷 O6-CM-dG 2.501 0 0.002 4 0.109 9 下调
黄嘌呤 Xanthine 3.255 5 0.003 1 0.037 1 下调
棕榈酰肉碱 Palmitoylcarnitine 1.020 0 0.003 4 0.570 6 下调
坦螺旋霉素 Tanespimycin 2.232 6 0.003 8 4.817 0 上调
DL-吲哚-3-乳酸 DL-indole-3-lactic acid 2.061 2 0.004 1 2.164 7 上调
二甲基酮 DMK 2.464 8 0.004 4 0.384 5 下调
曲酸 Kojic acid 2.985 2 0.004 6 0.548 9 下调
D-苏糖 D-threose 2.765 5 0.004 6 0.548 9 下调
皮质酮 Corticosterone 1.884 3 0.005 8 0.384 9 下调
N-乙酰基-L-鸟氨酸 N-acetyl-L-ornithine 2.452 1 0.008 0 2.044 2 上调
异香草酸 Isovanillic acid 2.012 7 0.008 8 5.563 5 上调
苯甲酰甲酸 Phenylglyoxylic acid 2.115 5 0.008 9 7.379 2 上调
L-赖氨酸 L-lysine 2.050 8 0.009 7 0.658 3 下调
去氧皮质酮 Desoxycortone 1.336 9 0.010 7 0.465 1 下调
肌酸酐 Creatinine 1.411 0 0.012 4 0.715 4 下调
皮质醇 Cortisol 2.364 2 0.015 6 0.496 2 下调
烟酰胺 Nicotinamide 2.014 9 0.016 5 0.564 7 上调
油酸 Oleic acid 1.397 9 0.017 7 0.343 6 下调
L-鸟氨酸 L-ornithine 1.046 0 0.018 6 0.727 6 下调
东莨菪碱 Scopolamine 1.525 9 0.019 0 0.588 5 下调
脯氨酸 Proline 1.042 3 0.019 5 0.728 4 下调
十一烷二酸 Undecanedioic acid 1.146 1 0.023 0 0.339 1 下调
2-苯乙酰胺 2-phenylacetamide 1.934 7 0.023 6 0.649 1 下调
5-氨基水杨酸 5-aminosalicylic acid 1.954 0 0.025 0 2.011 8 上调
苯丙炔酸 Phenylpropiolic acid 1.949 4 0.025 2 0.664 8 下调
硫辛酸 Lipoic acid 1.596 7 0.028 9 0.579 3 下调
在负离子模式下,伊犁马2 000 m比赛前后血浆检测结果中差异代谢物共53种,显著性排名前40代谢物如表3所示,其中伊犁马赛后血浆中N-乳酰苯丙氨酸、乙酰肉碱、尿囊素等9种差异代谢物含量较赛前发生显著上调(P<0.05),2-氨基己二酸、N-乙酰-L-蛋氨酸、黄苷等31种差异代谢物含量较赛前发生显著下调(P<0.05)。
表3 血浆差异代谢标志物(负离子模式下)

Table 3 Plasma differential metabolic markers (in negative ion mode)

代谢物
Metabolite
变量投影重要度
VIP
P
P-value
差异倍数
FC
趋势
Trent
N-乳酰苯丙氨酸 N-lactoyl-phenylalanine 3.274 1 <0.000 1 0.040 0 上调
乙酰肉碱 Acetylcarnitine 3.337 5 <0.000 1 0.039 6 上调
2-氨基己二酸 2-aminoadipic acid 3.142 4 <0.000 1 0.066 3 下调
N-乙酰-L-蛋氨酸 N-acetyl-L-methionine 2.614 2 <0.000 1 0.211 9 下调
黄苷 Xanthosine 3.082 0 <0.000 1 0.010 7 下调
2'-脱氧尿苷-5-单磷酸
2'-deoxyuridine-5-monophosphate
2.913 9 0.000 1 0.102 1 下调
四氢醛甾酮 Tetrahydroaldosterone 2.153 1 0.000 1 0.131 3 下调
D-(-)-果糖 D-(-)-fructose 2.912 6 0.000 2 0.260 6 下调
DL-4-羟基苯乳酸 DL-4-hydroxyphenyllactic acid 2.498 0 0.000 2 0.221 5 下调
4-羟苯基丙酮酸 4-hydroxyphenylpyruvic acid 2.449 9 0.000 3 0.202 4 下调
香兰醇 Vanillyl alcohol 2.595 6 0.000 3 0.234 4 下调
D-(+)-苹果酸 D-(+)-malic acid 2.636 0 0.000 5 0.194 5 下调
2-羟基己酸 2-hydroxycaproic acid 2.323 3 0.000 7 0.365 2 下调
3-苯基乳酸 3-phenyllactic acid 2.864 9 0.001 0 0.203 0 下调
11-脱氢血氧烷 B2 11-dehydro thromboxane B2 2.189 5 0.001 6 7.104 5 上调
反-十八碳烯酸 Trans-petroselinic acid 1.881 4 0.001 6 3.803 2 上调
氨基甲酰磷酸 Aminoimidazole carboxamide ribonucleotide 2.179 3 0.002 5 0.373 4 下调
双氟拉松 Diflorasone 2.162 0 0.002 5 13.792 1 上调
4-羟基-3-甲氧基苯基乙二醇-4-硫酸钾盐
4-hydroxy-3- methoxyphenylglycol sulfate
1.437 1 0.003 6 0.359 0 下调
尿囊素 Allantoin 2.195 1 0.004 0 0.118 6 上调
前列腺素B2 Prostaglandin B2 1.573 6 0.006 6 0.415 3 下调
2-甲氧基雌二醇 2-methoxyestradiol 2.459 7 0.006 7 0.377 1 下调
(E)-11-二十烯酸 11(E)-eicosenoic acid 1.447 9 0.007 5 0.247 5 下调
苏氨酸 Threonic acid 1.796 8 0.009 5 0.548 2 下调
泛酸 Pantothenic acid 1.135 2 0.011 5 0.614 2 下调
(±)19(20)-DiHDPA 1.842 8 0.013 7 3.098 7 上调
创伤酸 Traumatic acid 1.578 8 0.015 4 2.383 0 上调
DL-苹果酸 DL-malic acid 2.083 8 0.017 3 0.281 6 下调
马尿酸 Hippuric acid 1.585 6 0.018 9 2.502 2 上调
D-葡萄糖酸 D-gluconic acid 2.137 4 0.019 1 0.459 7 下调
甲羟戊酸 Mevalonic acid 2.326 0 0.019 4 0.395 9 下调
L-抗坏血酸-2-硫酸二钾 L-ascorbic acid 2-sulfate 1.356 0 0.019 5 0.475 9 下调
反式油酸 Elaidic acid 1.330 2 0.020 3 0.268 5 下调
3,4-二羟基苯基丙酸 3,4-dihydroxyphenylpropionic acid 1.848 1 0.021 8 0.368 5 下调
牛磺鹅去氧胆酸 Taurochenodeoxycholic acid 1.973 8 0.028 4 3.030 1 上调
N-乙酰-DL-苯丙氨酸 N-acetyl-DL-phenylalanine 1.687 2 0.036 4 0.505 7 下调
N-乙酰-L-苯丙氨酸 N-acetyl-L-phenylalanine 1.687 2 0.036 4 0.505 7 下调
月桂酸乙酯 Lauric acid ethyl ester 1.390 9 0.038 5 0.409 7 下调
十九烷酸 Nonadecanoic acid 1.027 2 0.041 1 0.537 2 下调
3-吲哚-乳酸 Indole-3-lactic acid 1.748 3 0.049 8 0.169 0 下调

2.4 差异代谢物聚类分析

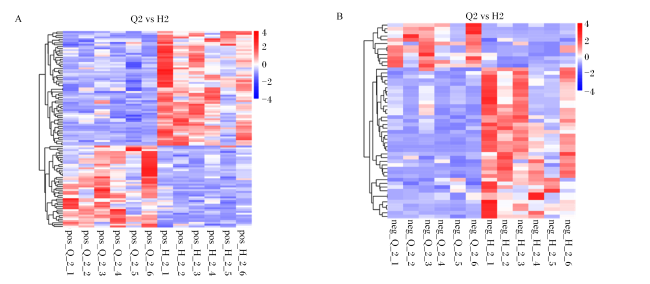
对伊犁马2 000 m比赛前后差异代谢物进行层次聚类分析,如图3所示,各组样品可以很好地聚集在一起,并且具有相似代谢变化的代谢物聚集在同一簇,表明组间代谢物相对定量值层次聚类区分明显,筛选出的差异代谢物具有一定的可靠性。
图3 差异代谢物聚类热图

A:伊犁马2 000 m比赛前后正离子模式差异代谢物聚类热图;B:伊犁马2 000 m比赛前后负离子模式差异代谢物聚类热图。

Fig.3 Differential metabolite clustering heat map

A:differential metabolite clustering heat maps of positive ion patterns between the Yili horses before and after the 2 000 m race; B:differential metabolite clustering heat maps of negative ion patterns between the Yili horses before and after the 2 000 m race.

2.5 差异代谢物富集通路分析

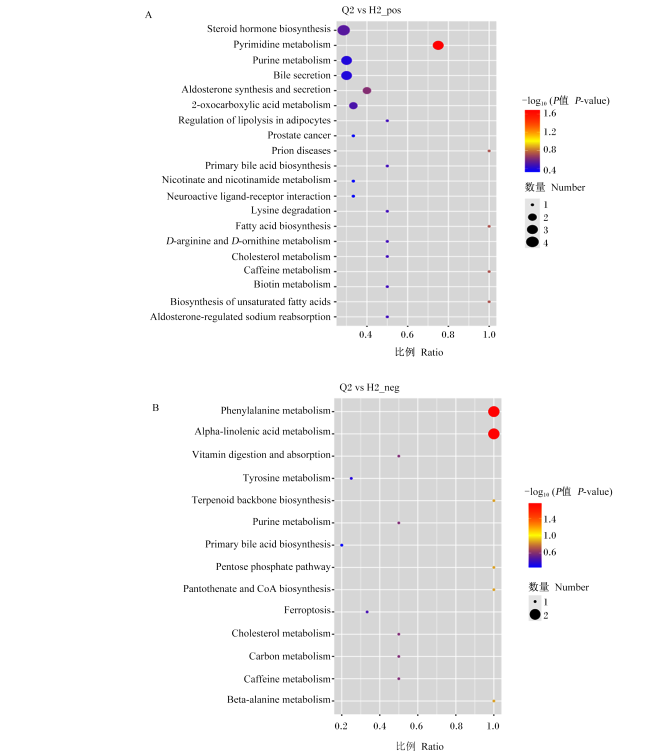
为研究差异代谢物所涉及的代谢途径和代谢物之间的关联性,对具有显著差异性的代谢物进行通路富集分析,根据富集结果选取P值由小到大排序前20的通路绘制气泡图,结果如图4所示。如图4-A所示,在正离子模式下,上述差异代谢物显著富集到嘧啶代谢(pyrimidine metabolism)、类固醇激素生物合成(steroid hormone biosynthesis)、胆汁分泌(bile secretion)等途径;如图4-B所示,在负离子模式下,上述差异代谢物显著富集到苯丙氨酸代谢(phenylalanine metabolism)、α-亚麻酸代谢(alpha-linolenic acid metabolism)、磷酸戊糖途径(pentose phosphate pathway)等途径。
图4 伊犁马2 000 m比赛前后KEGG富集气泡图

A:伊犁马2 000 m比赛前后正离子模式KEGG富集气泡图;B:伊犁马2 000 m比赛前后负离子模式KEGG富集气泡图。

Steroid hormone biosynthesis:类固醇激素生物合成;Pyrimidine metabolism:嘧啶代谢;Purine metabolism:嘌呤代谢;Bile secretion:胆汁分泌;Aldosterone synthesis and secretion:醛固酮合成与分泌;2-oxocarboxylic acid metabolism:2-氧代环戊烷羧酸甲酯代谢;Regulation of lipolysis in adipocytes:脂肪细胞中脂肪分解的调节;Prostate cancer:前列腺癌;Prion diseases:朊蛋白病;Primary bile acid biosynthesis:初级胆酸生物合成;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;Neuroactive ligand-receptor interaction:神经活性配体-受体相互作用;Lysine degradation:赖氨酸降解;Fatty acid biosynthesis:脂肪酸生物合成;D-arginine and D-ornithine metabolism:D-精氨酸和D-鸟氨酸代谢;Cholesterol metabolism:胆固醇代谢;Caffeine metabolism:咖啡因代谢;Biotin metabolism:生物素代谢;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Aldosterone-regulated sodium reabsorption:醛固酮调节的钠重吸收;Phenylalanine metabolism:苯丙氨酸代谢;Alpha-linolenic acid metabolism:α-亚麻酸代谢;Vitamin digestion and absorption:维生素的消化和吸收;Tyrosine metabolism:酪氨酸代谢;Terpenoid backbone biosynthesis:萜类骨架生物合成;Purine metabolism:嘌呤代谢;Primary bile acid biosynthesis:初级胆酸合成;Pentose phosphate pathway:戊糖磷酸途径;Pantothenate and CoA biosynthesis:泛酸盐和辅酶A生物合成;Ferroptosis:铁死亡;Cholesterol metabolism:胆固醇代谢;Carbon metabolism:碳代谢;Caffeine metabolism:咖啡因代谢;Beta-alanine metabolism:β-丙氨酸代谢。

Fig.4 Bubbles of KEGG enrichment in Yili horses before and after the 2 000 m race

A:bubble map of positive ion model KEGG enrichment between the Yili horses before and after the 2 000 m race; B:bubble map of negative ion model KEGG enrichment between the Yili horses before and after the 2 000 m race.

3 讨论

运动会影响整个身体的代谢反应[8],运动代谢的各种底物取决于运动强度和持续时间以及训练状态、饮食控制和其他环境因素[9]。Ohmura等[10]对能量代谢物进行了有针对性的定量代谢体分析,以研究高强度运动在马骨骼肌中的糖化途径、三羧酸循环、戊糖磷酸途径、氨基酸和高能量磷酸盐化合物中所引起的变化,发现脂质、氨基酸、核苷酸和外源性相关代谢物在骨骼肌对急性疲劳运动和训练的反应中发挥着关键作用。本研究基于非靶向代谢组学检测发现,伊犁马2 000 m比赛前后血浆中的N-乳酰苯丙氨酸、乙酰肉碱、尿囊素等多种物质含量显著高于比赛前,肌酸酐、皮质醇、硫辛酸等多种物质含量显著低于比赛前,并且这些差异代谢物主要集中在机体内糖代谢、脂代谢、蛋白质及氨基酸代谢等代谢过程。

3.1 糖代谢

皮质醇是从肾上腺皮质中提取出的对糖类代谢具有最强作用的肾上腺皮质激素,属于糖皮质激素的一种。高强度运动产生的应激压力,会导致机体分泌大量皮质醇[11],所以也表明皮质醇对大负荷运动反应强烈,并且其浓度会在大强度运动量后的30~60 min达到峰值[12]。Davics等[13]研究表明,当运动强度高于20 min以上时,皮质醇含量会随运动强度增加而增加,但当运动强度低于一定程度时,一般会引起皮质醇含量的下降。本研究结果显示,伊犁马2 000 m赛后即刻血浆皮质醇含量较赛前显著降低,可能是由于2 000 m比赛属于短距离比赛,持续时长较短,所以皮质醇含量呈显著下降。在进行运动的过程中,如果机体内部的皮质醇含量过高,会使得运动过程中蛋白质的分解速度显著增加,训练达不到预期效果[14]。对于相同强度的运动,运动后血液皮质醇含量适当的上升或下降,证明其肾上腺皮质机能越强,越易取得好成绩[15]
有研究发现,短暂运动后以及跑得更快的马拉松运动员运动后血液中烟酰胺含量显著增加[16]。在本研究中,伊犁马2 000 m运动后血浆中烟酰胺含量显著上升,可能说明机体为适应短时间高强度运动,调节胰岛素敏感性,使血糖维持在相对平衡的状态。

3.2 蛋白质和氨基酸代谢

在运动过程中,骨骼肌收缩活动会影响蛋白质和氨基酸代谢,使游离氨基酸的组成、分布、浓度出现相应的波动,这种影响还会延续到运动后。肌酸酐,也称肌酐,是生物体肌肉组织中储能物质肌酸的代谢终产物,是由肌酸与磷酸肌酸每天以一定比例脱水生成,生成的肌酐由组织细胞扩散到血液循环中,即为血肌酐,又称内生肌酐,是机体肌肉组织代谢的产物,当机体过度运动时,部分肌肉组织会急性损伤或溶解,并释放出肌酐[17],导致血肌酐含量迅速升高。因此血液中乳酸和肌酐含量可以准确地反映运动及疲劳的程度[18]。黄南浩等[19]通过对大学男生中速800 m运动前、后唾液与血清尿素氮、肌酐、尿酸含量的检测发现,运动后唾液和血清的肌酐含量有下降趋势。在本研究中,伊犁马2 000 m赛后即刻血浆肌酐含量较赛前显著降低,这可能是由于2 000 m比赛属于短途比赛,其过程中马匹能量消耗较快,肌酐代谢速率增强,以维持马匹的高速奔跑。
硫辛酸是存在于线粒体的辅酶,可以清除机体内的自由基和活性氧等,是一种高效抗氧剂[20]。当机体处于剧烈运动状态时,体内游离脂肪酸含量因机体脂肪运动速度加快而增加[21]。本研究结果显示,伊犁马2 000 m赛后即刻血浆硫辛酸含量较赛前有所下降,表明马匹在短途高强度运动中,体内的氧化自由基迅速上升,硫辛酸清除了马匹体内运动过程中堆积的大量自由基,修复并减少其对机体细胞的损伤。

3.3 脂代谢

肉碱是运动时脂肪酸氧化的候选剂,高强度运动时,糖酵解迅速增加,为线粒体提供过多的乙酰辅酶A,并被肉碱缓冲,生成乙酰肉碱[22]。有研究发现随着人类运动强度的增加,骨骼肌乙酰肉碱含量增加,同时自由肉碱含量降低[23]。Meienberg等[24]研究发现,在耐力运动后血液乙酰肉碱含量显著升高,乙酰肉碱的产生可能支持运动过程中能量代谢的调节以及耐力运动后肌肉疲劳恢复的调节。在本研究中,伊犁马2 000 m赛后血浆中乙酰肉碱含量显著高于赛前,这可能是因为剧烈运动期间骨骼肌产生高能量的需求,肌肉脂肪酸β-氧化活性增加,使得血浆乙酰肉碱的含量也迅速上升,以支持运动过程中能量代谢的调节以及运动后肌肉疲劳恢复的调节。

3.4 其他代谢

Li等[25]对在跑步机上进行力竭运动的小鼠、比赛前后的纯血马以及人类都进行了血浆靶向和非靶向代谢组学研究分析发现了一种乳酸和苯丙氨酸缩合物-N-乳酰苯丙氨酸,并观察到血浆中N-乳酰苯丙氨酸含量会在锻炼后显著升高,短跑后血浆中N-乳酰苯丙氨酸含量的上升幅度最大,其次是抗阻训练和耐力训练,表明N-乳酰苯丙氨酸在多种物种和多种运动模式中均可作为运动的分子效应因子,并保守认定N-乳酰苯丙氨酸为一种运动诱导的代谢产物。在本研究中,N-乳酰苯丙氨酸在伊犁马2 000 m赛后较赛前含量显著上升,这与前人研究结果基本一致。Hoene等[26]研究分析,对久坐超重和肥胖者进行为期8周的监督训练干预期间,剧烈运动后N-乳酰苯丙氨酸含量较高与腹部皮下脂肪组织的更大减少以及较低程度的内脏脂肪组织减少有关,并认为N-乳酰苯丙氨酸可以作为生物标志物来预测个体对基于运动的生活方式干预措施的反应。
尿酸具有抗氧化剂的作用[27],能够与活性氧反应形成尿囊素[28],尿囊素含量高低可用于测定机体的氧化应激[29]。Kand'ár等[30]研究发现,参加剧烈运动后的志愿者较运动前血浆中尿囊素含量显著升高,认为尿囊素可能是急性氧化应激适合的候选标志物。尿囊素可以与血浆乳酸作用,以校准肌肉的工作负荷,防止肌肉损伤[31]。在本研究中,伊犁马2 000 m赛后血浆中尿囊素含量显著高于赛前,可能是由于高强度运动使得马匹体内氧化应激增强,为防止机体肌肉受损,尿酸与活性氧发生氧化作用并产生大量尿囊素,以维持骨骼肌抗氧化稳态。

4 结论

综上所述,2 000 m比赛前后伊犁马血浆差异代谢物主要集中在机体内糖代谢、脂代谢、蛋白质及氨基酸代谢等过程中,主要涉及的代谢通路有类固醇激素生物合成、嘧啶代谢、维生素的消化和吸收等。这表明短距离高强度运动会激活伊犁马各类代谢途径,使得伊犁马机体内代谢物发生明显变化,以维持马匹比赛过程中的能量供应,并减少机体因剧烈运动产生的损失,降低马匹应激反应。同时,为马匹赛后恢复及优秀马匹选育提供理论依据。
[1]
KLEIN D J, ANTHONY T G, MCKEEVER K H. Metabolomics in equine sport and exercise[J]. Journal of Animal Physiology and Animal Nutrition, 2021, 105(1):140-148.

DOI

[2]
EGAN B, ZIERATH J R. Exercise metabolism and the molecular regulation of skeletal muscle adaptation[J]. Cell Metabolism, 2013, 17(2):162-184.

DOI PMID

[3]
O’NEILL M, WATT M J, HEIGENHAUSER G J F, et al. Effects of reduced free fatty acid availability on hormone-sensitive lipase activity in human skeletal muscle during aerobic exercise[J]. Journal of Applied Physiology, 2004, 97(5):1938-1945.

PMID

[4]
POHJANEN E, THYSELL E, JONSSON P, et al. A multivariate screening strategy for investigating metabolic effects of strenuous physical exercise in human serum[J]. Journal of Proteome Research, 2007, 6(6):2113-2120.

DOI PMID

[5]
MANACH C, HUBERT J, LLORACH R, et al. The complex links between dietary phytochemicals and human health deciphered by metabolomics[J]. Molecular Nutrition & Food Research, 2009, 53(10):1303-1315.

[6]
JANG H J, KIM D M, KIM K B, et al. Analysis of metabolomic patterns in thoroughbreds before and after exercise[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(11):1633-1642.

DOI

[7]
张仕琦, 李晓斌, 张文杰, 等. 基于LC/MS的伊犁马3 600 m速度赛赛前、赛后血浆代谢组学差异变化[J]. 新疆农业科学, 2023, 60(2):501-510.

DOI

ZHANG S Q, LI X B, ZHANG W J, et al. LC/MS-based metabolomics approach for exploring plasma metabolome modififications before and after 3 600 m speed race in Yili horse[J]. Xinjiang agricultural sciences, 2023, 60(2):501-510. (in Chinese)

DOI

[8]
BALL D. Metabolic and endocrine response to exercise:sympathoadrenal integration with skeletal muscle[J]. Journal of Endocrinology, 2015, 224(2):R79-R95.

[9]
HARGREAVES M. Skeletal muscle metabolism during exercise in humans[J]. Clinical and Experimental Pharmacology and Physiology, 2000, 27(3):225-228.

PMID

[10]
OHMURA H, MUKAI K, TAKAHASHI Y, et al. Metabolomic analysis of skeletal muscle before and after strenuous exercise to fatigue[J]. Scientific Reports, 2021, 11(1):11261.

DOI PMID

[11]
WALTER E E, FERNANDEZ F, SNELLING M, et al. Stress induced cortisol release and schizotypy[J]. Psychoneuroendocrinology, 2018, 89:209-215.

DOI PMID

[12]
GEISLER S, AUSSIEKER T, PALDAUF S, et al. Salivary testosterone and cortisol concentrations after two different resistance training exercises[J]. The Journal of Sports Medicine and Physical Fitness, 2019, 59(6):1030-1035.

DOI PMID

[13]
DAVIES C T, FEW J D. Effects of exercise on adrenocortical function[J]. Journal of Applied Physiology, 1973, 35(6):887-891.

PMID

[14]
李康. 三人篮球不同位置运动员运动负荷特征分析——以广东省青年女子三人篮球队为例[D].硕士学位论文. 上海: 华东师范大学, 2022.

LI K. Analysis of the sports load characteristics of players in different positions of 3x3 basketball-taking the Guangdong Provincial youth women’s triple basketball team as an example[D].Master’s Thesis. Shanghai: East China Normal University, 2022. (in Chinese)

[15]
刘佳. 尿液和血清中甾体类代谢物应用于摔跤运动员训练负荷监控的研究[D].硕士学位论文. 北京: 国家体育总局体育科学研究所, 2022.

LIU J. Study on application of urine and serum steroidmetabolites for training load monitoring of wrestlers[D].Master’s Thesis. Beijing: Sports Science Research Institute of the State Sports General Administration, 2022. (in Chinese)

[16]
LEWIS G D, FARRELL L, WOOD M J, et al. Metabolic signatures of exercise in human plasma[J]. Science Translational Medicine, 2010, 2(33):33ra37.

[17]
张宏, 王旭昀, 刘美奇, 等. 血肌酐升高的病因病机分析及中医药治疗[J]. 吉林中医药, 2014, 34(12):1195-1197.

ZHANG H, WANG X Y, LIU M Q, et al. Cause and pathogenesis analysis of high serum and its TCM treatment[J]. Jilin Journal of Traditional Chinese Medicine, 2014, 34(12):1195-1197. (in Chinese)

[18]
赵颖慧. 北京市密云县某企业高温噪声环境对作业工人肾功能水平的影响[J]. 职业与健康, 2015, 31(20):2759-2761.

ZHAO Y H. Influence of high temperature and noise environment on renal function of workers in Miyun County of Beijing[J]. Occupation and Health, 2015, 31(20):2759-2761. (in Chinese)

[19]
黄南洁, 应凤莲, 王刚. 大学男生运动前、后唾液与血清尿素氮、肌酐、尿酸含量的检测[J]. 北京体育大学学报, 2006, 29(7):939-940.

HUANG N J, YING F L, WANG G. Research on tests of the content of urea nitrogen,creatinine and uric acid in saliva and serum of male students at college before and after exercises[J]. Journal of Beijing Sport University, 2006, 29(7):939-940. (in Chinese)

[20]
黄涛, 黄开勋. α-硫辛酸的生物医学功能[J]. 生命的化学, 2004, 24(1):58-60.

HUANG T, HUANG K X. Biomedical functions of α-lipoic acid[J]. Chemistry of Life, 2004, 24(1):58-60. (in Chinese)

[21]
陈曦, 蔡宁, 佟永清. 硫辛酸对马运动性能、血浆抗氧化能力及代谢指标的影响[J]. 饲料研究, 2020, 43(7):65-68.

CHEN X, CAI N, TONG Y Q. Effect of lipoic acid on sport performance,plasma antioxidant capacity and metabolic indexes of horse[J]. Feed Research, 2020, 43(7):65-68. (in Chinese)

[22]
胡艳, 牛洁. 运动状态下脂肪氧化的调节[J]. 中国组织工程研究, 2012, 16(46):8733-8740.

HU Y, NIU J. Regulation mechanism underlying fatty acid oxidation during exercise[J]. Journal of Clinical Rehabilitative Tissue Engineering Research, 2012, 16(46):8733-8740. (in Chinese)

[23]
VAN LOON L J, GREENHAFF P L, CONSTANTIN-TEODOSIU D, et al. The effects of increasing exercise intensity on muscle fuel utilisation in humans[J]. The Journal of Physiology, 2001, 536(Pt 1):295-304.

DOI

[24]
MEIENBERG F, LOHER H, BUCHER J, et al. The effect of exercise on intramyocellular acetylcarnitine (AcCtn) concentration in adult growth hormone deficiency (GHD)[J]. Scientific Reports, 2019, 9(1):19431.

DOI PMID

[25]
LI V L, HE Y, CONTREPOIS K, et al. An exercise-inducible metabolite that suppresses feeding and obesity[J]. Nature, 2022, 606(7915):785-790.

DOI

[26]
HOENE M, ZHAO X J, MACHANN J, et al. Exercise-induced N-lactoylphenylalanine predicts adipose tissue loss during endurance training in overweight and obese humans[J]. Metabolites, 2022, 13(1):15.

DOI

[27]
WARING W S, WEBB D J, MAXWELL S R. Systemic uric acid administration increases serum antioxidant capacity in healthy volunteers[J]. Journal of Cardiovascular Pharmacology, 2001, 38(3):365-371.

DOI PMID

[28]
HELLSTEN Y, SVENSSON M, SJÖDIN B, et al. Allantoin formation and urate and glutathione exchange in human muscle during submaximal exercise[J]. Free Radical Biology & Medicine, 2001, 31(11):1313-1322.

DOI

[29]
KAN$\acute{D}$ÁR R, ŽÁKOVÁ P, MUŽÁKOVÁ V, et al. Monitoring of antioxidant properties of uric acid in humans for a consideration measuring of levels of allantoin in plasma by liquid chromatography[J]. Clinica Chimica Acta, 2006, 365(1/2):249-256.

DOI

[30]
KAN$\acute{D}$ÁR R, ŠTRAMOVÁ X, DRÁBKOVÁ P, et al. A monitoring of allantoin,uric acid,and malondialdehyde levels in plasma and erythrocytes after ten minutes of running activity[J]. Physiological Research, 2014, 63(6):753-762.

[31]
STEFANO B, FRANCO T, OBEROSLER R. Plasma lactate and purine derivatives accumulation after exercise of increasing intensity in standardbred horses[J]. Journal of Equine Veterinary Science, 1999, 19(7):463-468.

DOI

Outlines

/