Research Progress of Methionine Regulating Muscle Development

  • FU Jianhui ,
  • WANG Haibo ,
  • ZHONG Jincheng , *
Expand
  • Key Laboratory of Qinghai-Tibetan Plateau Animal Genetic Resource Conservation and Utilization of Sichuan Province, College of Grassland Resources, Southwest Minzu University, Chengdu 610041, China
* professor, E-mail:

Received date: 2023-11-13

  Online published: 2024-05-15

Abstract

In recent years, with the improvement of living standards, people have higher and higher requirements for the quantity and quality of meat products. Muscle accounts for 40% to 50% of the carcass weight of livestock and poultry, and is an important source of animal protein for humans. Its development process is regulated by genetic, nutritional and gender factors, among which nutrient intake plays a crucial role. Methionine (Met), as the main limiting amino acid for most animal growth, participates in protein metabolism and is one of the commonly used feed additives for livestock and poultry. Therefore, this paper summarized the processes of Met absorption and metabolism and its application in muscle development, combined with the structural composition, development and regeneration processes of muscle, elaborated the mechanism of Met regulation of m、uscle development, and provided a reference for improving animal diet formula and improving meat production performance.

Cite this article

FU Jianhui , WANG Haibo , ZHONG Jincheng . Research Progress of Methionine Regulating Muscle Development[J]. Chinese Journal of Animal Nutrition, 2024 , 36(5) : 2856 -2871 . DOI: 10.12418/CJAN2024.246

随着社会经济和畜牧业的迅速发展,消费者对肉制品数量和质量的需求大幅度增长[1]。肌肉作为畜禽躯体的重要组成部分,在调控机体新陈代谢、调节运动和储存能量等方面至关重要,其发育状况会对肉制品的产量和品质产生巨大影响[2]。肌肉的生长和发育可大致分为2个阶段:一是在胚胎期,此阶段主要是成肌细胞的生长发育和肌原纤维的增加;二是在动物出生后,此阶段肌纤维数量基本不变,通过肌卫星细胞的增殖和分化促进肌肉的发育[3-4]。同时,肌肉的发育过程受众多转录因子和信号通路的调控,主要包括生肌调控因子(myogenic regulatory factors,MRFs)家族、胰岛素样生长因子-Ⅰ(insulin-like growth factor-Ⅰ,IGF-Ⅰ)、肌肉生长抑制素(myostatin,MSTN)、自噬溶酶体通路(autophagic lysosomal pathway,ALP)和线粒体凋亡通路等[4-5]。研究证实,蛋白质是动物体内不可缺少的营养素,对肌肉发育具有重要的调控作用[6-7]。而豆粕作为饲料工业中最常用的蛋白质原料,由于其成本不断上涨且市场供需紧张,迫使学者们开始通过营养调控手段,降低饲料成本并实现优质肉制品的生产,且目前较多采用的是低蛋白质饲粮添加氨基酸的模式[8-10]。蛋氨酸(methionine,Met)是唯一的含硫必需氨基酸,参与机体多胺和蛋白质合成代谢,是许多动物生长的主要限制性氨基酸,也是畜禽养殖业常用的饲料添加剂之一[11-13]。研究证实,补充适量Met可促进蛋白质的合成,改善动物的肌肉发育,有效提高动物的产肉性能;但Met添加过量亦会引起动物生长抑制、蛋白质合成障碍等一系列疾病产生,严重时甚至会导致死亡[14-16]。因此,本文总结了Met的吸收和代谢过程以及在肌肉发育中的应用,并结合肌肉的结构组成以及其发育和再生过程,阐述Met调控肌肉发育的机制,旨在为Met的利用与开发以及改善动物产肉性能提供理论依据。

1 Met的吸收和代谢过程及其在肌肉发育的应用

1.1 Met的吸收和代谢过程
Met又称为2-氨基-4-甲疏基丁酸或甲硫氨酸,化学式为C5H11NO2S,相对分子质量为149.21[17]。它是一种白色的粉末状或片状结晶体,具有微弱含硫化合物气味,熔点大约在280 ℃[17-18]。Met既溶于95%乙醇,也溶于稀酸和稀碱;但在强酸下不稳定,易产生脱甲基作用[19]。Met因其旋光性差异可分为L型(左旋)和D型(右旋)[20]。其中,L-Met通过Met转运系统进行主动运输,在回肠和十二指肠中被吸收[21];D-Met也是通过主动运输的方式被吸收,经过D-氨基酸氧化酶和转氨酶的催化可以转化为L-Met[22]。此外,DL-Met、羟基蛋氨酸(OH-Met)、DL-2-羟基-4-甲硫基丁酸(HMTBA)和瘤胃保护性蛋氨酸(RP-Met)均为饲料工业中常用的Met形式[23]DL-Met含有50%的左旋异构体,主要通过多个载体介导的转运蛋白系统被主动转运吸收[23-24];OH-Met则是羟基取代α-碳上氨基的一种有机酸,可进行主动转运和被动扩散[23];HMTBA为蛋氨酸羟基类似物,主要通过扩散和氢离子依赖性载体介导的转运蛋白系统进行吸收[25-26];RP-Met是利用化学或物理法处理的单体Met,在通过反刍动物瘤胃时可不被微生物降解,直接到达小肠被吸收和利用[22,27]。任何形式的Met最终都需要转化为L-Met才能参与机体内的中间代谢或蛋白质合成过程[28-29]
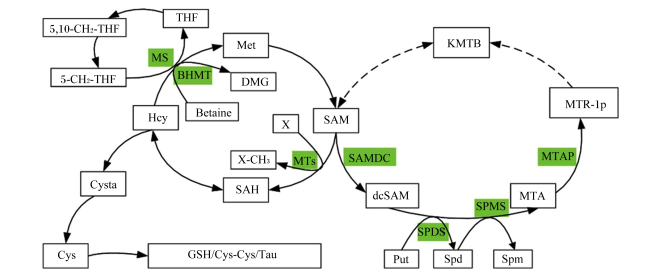
Met主要在肝脏中进行代谢,包括4个途径(图1)[30]。1)甲基转移途径:Met首先通过蛋氨酸腺苷转移酶的催化转化为S-腺苷蛋氨酸(S-adenosylmethionine,SAM),然后经过甲基转移酶催化生成S-腺苷同型半胱氨酸(S-adenosine homocysteine,SAH),并将活性甲基转移至不同甲基受体上,参与核酸的合成与修饰,从而影响基因的转录和表达[31]。2)再甲基化途径:SAH在腺苷高半胱氨酸水解酶的作用下,被水解为腺苷和同型半胱氨酸(homocysteine,Hcy);随后通过甜菜碱或叶酸提供甲基再甲基化生成Met,是Met再生的主要途径[28,32]。3)生物胺合成途径:SAM经过S-腺苷蛋氨酸脱羧酶的催化转化为脱羧S-腺苷甲硫氨酸(decarboxyl S-adenosine methionine,dcSAM);随后通过多胺合成酶的催化作用,合成亚精胺和精胺并转变为甲硫腺苷(methyl-adenosine,MTA);最后通过多步催化反应重新合成Met,是Met再生的另一途径[20,33]。4)硫基转移途径:Hcy经过胱硫醚-β-合酶催化转化为胱硫醚(cystathionine,Cysta);随后在胱硫醚γ裂解酶催化转变为半胱氨酸(cysteine,Cys);最后通过一系列酶催化作用,参与谷胱甘肽(glutathione,GSH)、牛磺酸(taurine,Tau)和胱氨酸(dicysteine,Cys-Cys)等物质的合成[11,34]
图1 Met代谢途径

SAM:S-腺苷蛋氨酸 S-adenosylmethionine;SAH:S-腺苷同型半胱氨酸 S-adenosine homocysteine;Betaine:甜菜碱;DMG:二甲基甘氨酸 dimethylglycine;Met:蛋氨酸 methionine;THF:四氢叶酸 tetrahydrofolate;5,10-CH2-THF:5,10-甲基四氢叶酸 5,10-methyl tetrahydrofolate;5-CH2-THF:5-甲基四氢叶酸 5-methyl tetrahydrofolate;dcSAM:脱羧S-腺苷甲硫氨酸 decarboxyl S-adenosine methionine;Put:腐胺 putrescine;Spd:亚精胺 spermidine;Spm:精胺 spermine;MTA:甲硫腺苷 methyl-adenosine;MTR-1p:5-甲硫核酸-1-磷酸 5-methylthioribose-1-phosphate;KMTB:α-酮-γ-甲硫基丁酸 α-keto-γ-methylthiobutyric acid;Hcy:同型半胱氨酸 homocysteine;Cysta:胱硫醚 cystathionine;Cys:半胱氨酸 cysteine;GSH:谷胱甘肽 glutathione;Tau:牛磺酸 taurine;Cys-Cys:胱氨酸 dicysteine;X:甲基受体 methyl receptor;MTs:甲基转移酶 transmethylase;BHMT:甜菜碱同型半胱氨酸甲基转移酶 betaine homocysteine methyltransferase;MS:5-甲基四氢叶酸高半胱氨酸甲基转移酶 5-methyltetrahydrofolate homocysteine methyltransferase;SAMDC:S-腺苷蛋氨酸脱羧酶 S-adenosylmethionine decarboxylase;SPDS:亚精胺合成酶 spermidine synthase;SPMS:精胺合成酶 spermine synthase;MTAP:甲硫腺苷磷酸化酶 methyl-adenosine phosphorylase。

Fig.1 Met metabolic pathways[11,28,35]

1.2 Met在肌肉发育中的应用

1.2.1 Met对家禽肌肉发育的作用

Jariyahatthakij等[36]在低蛋白质饲粮中添加0.37% DL-Met,可显著提高生长期肉鸡的胴体重、胸肌重和腿肌重。曾雨佳等[37]饲喂肉鸡3种不同Met水平的饲粮发现,当Met水平为0.25%时,19周龄肉鸡的腹脂率较高;当Met水平为0.34%时,19周龄肉鸡的胸肌率较高;当Met水平为0.42%时,21周龄肉鸡的腿肌率较高。Wu等[38]提高北京鸭饲粮中的L-Met水平(0.31%~0.56%),可显著提高腿肌重,同时胸肌重也有提高的趋势。李德生等[39]对雏鹅胚蛋注射DL-Met营养液,可显著提高雏鹅孵化第27天至出壳后第7天的胸肌重,并且出壳当天和出壳后第7天胸肌纤维直径也显著增大。

1.2.2 Met对单胃动物肌肉发育的作用

Li等[40]在初生重较低的仔猪饲粮中添加0.6% L-Met,可以促进其骨骼肌发育并增加背最长肌横截面积。原培强[29]对三元仔猪饲喂添加DL-Met或HMTBA饲粮,均显著提高母猪背最长肌的持水力和嫩度,但其肌纤维的横截面积减小。Da Silva等[41]在高温条件下饲喂仔猪高水平DL-Met或OH-Met饲粮可显著提高其胴体重和瘦肉率,此外添加OH-Met还会增加其眼肌深度。Edmonds等[42]对后期育肥猪饲粮添加不同水平DL-Met(2.0%~2.8%),可提高其胴体性状,且瘦肉率均超过56%,屠宰率均超过76%,尤其以添加1.5%~2.3% DL-Met改善眼肌深度和背膘厚的效果较好。

1.2.3 Met对反刍动物肌肉发育的作用

Zhang等[43]在围产期母羊饲粮中添加RP-Met可提高饲粮的粗蛋白质利用率,并提高羔羊的生长性能和肉品质,其中添加0.06% RP-Met可使羔羊的屠宰率和净肉重最高。曹广等[44]在湖羊饲粮中添加2 g/kg RP-Met,可显著提高其胴体重、净肉重和净肉率,并降低其背最长肌的蒸煮损失。张艳梅[45]研究发现,提高滩羊饲粮RP-Met水平可提高其宰前活重、屠宰率、胴体重和净肉率,其中添加4.5 g/d RP-Met可使滩羊获得最高的净肉率和最低的骨肉比。Baggerman等[46]研究表明,肉牛背最长肌面积随着饲粮Met水平的提高呈线性提高;其中添加13.47 g/d RP-Met肉牛的细胞核密度相较对照组提高近55%;生肌因子(myogenic factor,Myf)5阳性卫星细胞的密度随着饲粮Met水平的提高而下降,而表达配对盒蛋白7(Pax7)的细胞密度趋于增加,表明饲粮添加Met可能增加卫星细胞融合肌纤维的潜力。
以上研究表明,饲粮中补充适量Met能够促进不同畜禽物种的生长,并提高动物的产肉性能。但由于其物种、身体构造和生长阶段之间的差异,动物生长所需Met的使用形式和最适水平也存在不同。

2 肌肉发育过程

2.1 肌肉结构组成

肌肉是动物胴体中重要组成部分,也是畜牧生产的重要经济性状之一[47]。根据其形态特征和功能差异,肌肉可分为3类:心肌、平滑肌和骨骼肌[48]。心肌仅存在于心脏,组成心壁;平滑肌构成血管壁和内脏器官;骨骼肌负责维持机体运动和能量平衡[49]。同时,骨骼肌还是动物体内最大的肌肉组织,由肌纤维、神经、血管和结缔组织等多种组织组成[48]。肌纤维作为肌肉的基本单位,最外层包裹一层富含肌卫星细胞的肌纤维膜,内部则包含一个由肌浆网包围肌原纤维而成的细胞骨架[1,50]。每条肌原纤维由许多重复的肌节构成,肌节中的肌动蛋白和肌球蛋白可分别形成细肌丝和粗肌丝,二者通过相互嵌合和滑动完成肌肉收缩和舒张功能[47]。成束的肌纤维在肌束膜包裹下形成肌束,各个肌束又由肌内膜进行分隔,最终在富含血管和神经纤维的肌外膜包裹下,通过肌腱附着于骨骼上形成肌肉组织[48,51]

2.2 肌肉的生长及再生

肌肉的生长发育涉及蛋白质合成、细胞增殖、分化及融合等过程,一般会经历初级肌肉发育和次级肌肉发育2个阶段[52]。初级肌肉发育是指胚胎时期由轴旁中胚层细胞发育形成体节,背侧体节进一步发育生成生肌节,随后增殖形成肌肉祖细胞(也称为肌卫星细胞),经进一步分化为成肌细胞;次级肌肉发育则是由成肌细胞进一步融合形成肌管,肌管延伸并与卫星细胞或其他成肌细胞融合形成肌原纤维,随后进一步分化形成肌纤维,经过持续生长和发育形成肌束,从而发育为成熟的肌肉组织[47]。动物出生前,肌纤维数量的增长是影响肌肉发育的主要因素;动物个体出生后肌纤维数量基本不再增加,动物的肌肉发育主要依赖肌卫星细胞的增殖和分化[53-55]。当骨骼肌受损或受到外界刺激时,静息状态的卫星细胞会被激活并产生大量成肌细胞,经进一步分化及融合修复受损肌纤维,促进骨骼肌的再生[56-57]

3 Met调控肌肉发育的信号通路

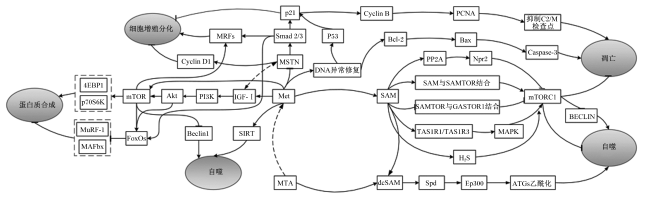
一般来说,骨骼肌质量主要取决于净蛋白质平衡,即蛋白质合成与分解之间的动态平衡[58-59]。正蛋白质平衡会增加肌肉质量,负蛋白质平衡则会减少肌肉质量[59]。并且,肌纤维损失或肌卫星细胞再生亦会对肌肉质量产生一定影响[59]。研究发现,Met水平变化会影响动物体内的净蛋白质平衡。机体Met水平较低,动物体内处于正蛋白质平衡状态,骨骼肌质量减少,肌纤维横截面积也相对减小,导致肌肉力量下降;而Met水平较高,动物体内处于负蛋白质平衡状态,骨骼肌质量则会增加,同时肌纤维的横截面积也相对增加,进而导致肌肉力量的增强。经过汇总发现,Met调控肌肉发育的过程,会受到MRFs、IGF-Ⅰ、MSTN、自噬溶酶体通路和线粒体凋亡通路等转录因子和信号通路的影响(图2)[60-62]
图2 Met调控肌肉发育的信号通路

4EBP1:4E结合蛋白1 4E-binding protein 1;p70S6K:p70核糖体蛋白S6激酶 p70 ribosomal protein S6 kinase;MuRF-1:肌肉环指蛋白-1 muscle RING-finger protein-1;MAFbx:肌肉萎缩F盒蛋白 muscle atrophy F-box protein;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;FoxOs:叉头框蛋白O Forkhead box protein O;Akt:蛋白激酶B protein kinase B;PI3K:磷脂酰肌醇-3-激酶 phosphoinositide 3-kinase;IGF-Ⅰ:胰岛素样生长因子-Ⅰ insulin-like growth factor-Ⅰ;Cyclin D1:细胞周期蛋白D1;SIRT:沉默信息调节因子 silent information regulator;MRFs:生肌调控因子 myogenic regulatory factors;Met:蛋氨酸 methionine;MSTN:肌肉生长抑制素 myostatin;Cyclin B:细胞周期蛋白B;MTA:甲硫腺苷 methyl-adenosine;Bcl-2:B细胞淋巴瘤2 B-cell lymphoma 2;SAM:S-腺苷蛋氨酸 S-adenosylmethionine;PP2A:蛋白磷酸酶2A protein phosphatase 2;PCNA:增殖细胞核抗原 proliferating cell nuclear antigen;Bax:B细胞淋巴瘤2相关X蛋白 B-cell lymphoma 2 associated X protein;SAMTOR:S-腺苷甲硫氨酸传感器 S-adenosylmethionine sensor;GATOR1:RagA GTP酶激活蛋白 GTPase activating protein for RagA;TAS1R1:味觉受体1型成员1 taste receptor type 1 member 1;TAS1R3:味觉受体1型成员3 taste receptor type 1 member 3;H2S:硫化氢 sulfuretted hydrogen;MAPK:丝裂原激活的蛋白激酶 mitogen-activated protein kinase;Caspase-3:半胱氨酸天冬氨酸蛋白酶-3 cysteine aspartate proteinase-3;mTORC1:哺乳动物雷帕霉素靶蛋白复合物1 mammalian target of rapamycin complex 1;dcSAM:脱羧S-腺苷甲硫氨酸 decarboxyl S-adenosine methionine;Spd:亚精胺 spermidine;Ep300:组蛋白乙酰转移酶p300 histone acetyltransferase p300;ATGs:自噬相关基因 autophagy-related genes。

Fig.2 Signal pathways of Met regulating muscle development[60-62]

3.1 Met调控MRFs家族

3.1.1 Met能够促进MRFs表达调控肌肉发育

MRFs是一类参与调控肌肉生长和发育的转录因子,主要包括成肌分化因子(MyoD)、肌细胞生成素(MyoG)、Myf5和Mrf4等,受蛋白激酶和钙调蛋白的调控[63]。Pax7和配对盒蛋白3(Pax3)是其上游调控元件,可分别结合其远端增强子和近端启动子,激活MyoDMyf5的转录活性,从而调控成肌细胞增殖与分化;再经过MyoG与Mrf4相互作用,促使细胞启动末端分化、融合为肌管,并进一步发育成熟为肌纤维[64]。Latimer等[65]在培养基中去除Met 72 h可显著降低肌肉中MyoDMyoG的表达,使卫星细胞处于分化停滞状态;补充Met可挽救MyoDMyoG的表达,恢复卫星细胞分化能力。Yang等[66]研究发现,与饲喂0.15% Met组相比,DL-Met限制饲粮会降低肉猪背最长肌中Mrf4表达,并对生长性能产生影响。Ibrahim等[67]在含有0.05%胍基乙酸的饲粮中分别添加0、0.2%和0.4% Met发现,添加0.2%和0.4% Met均可显著提高肉鸭胸肌中MyoG的表达,并显著改善其胴体和胸肉产量。蒋雪樱[68]提高肉鸡饲粮中的Met水平可显著提高Myf5和Mrf4表达,并提高其胸肌率、胸肌pH且降低滴水损失;降低Met水平则与之相反。

3.1.2 Met可激活哺乳动物雷帕霉素靶蛋白(mTOR)信号通路促进MRFs表达

mTOR是调控细胞増殖、分化及自噬的关键信号分子,含有哺乳动物雷帕霉素靶蛋白复合物1(mTORC1)和哺乳动物雷帕霉素靶蛋白复合物2(mTORC2)这2种形式,mTORC1可调控p70核糖体蛋白S6激酶(p70S6K)和4E结合蛋白1(4EBP1)表达,促进骨骼肌产量增加;而mTORC2可调控蛋白激酶B(Akt)发生磷酸化,进而调节细胞的生长和代谢[69-70]。Sui等[71]研究发现,Met缺乏会抑制mTORMyoDMyoG的表达,导致肌肉中的粗蛋白质含量降低,最终抑制动物的生长。Wen等[72]研究表明,提高快速生长型肉鸡饲粮中Met水平,可以提高mTORMyf5、Mrf4的表达以及细胞外信号调节激酶(ERK)磷酸化水平,说明提高Met水平可增强ERK和mTOR的磷酸化,进而促进肌源性基因表达,调控动物的肌肉发育。Baggerman等[46]研究发现,提高肉牛饲粮中RP-Met水平,Pax7阳性细胞密度呈上升趋势,Myf5阳性卫星细胞密度则呈下降趋势,表明补充Met可以促进卫星细胞增殖分化,进而促进肌肉的发育。

3.1.3 Met可激活泛素蛋白酶体系统(UPS)抑制MRFs表达

UPS是真核生物主要的蛋白质降解途径,通过泛素标记降解蛋白,由蛋白酶体识别并进行降解[73-74]。其中,肌肉环指蛋白-1(MuRF-1)和肌肉萎缩F盒蛋白(MAFbx)等E3泛素连接酶表达上调,可特异性介导肌原纤维降解并发生肌肉萎缩[75]。Wu等[76]研究发现,添加D-Met可改善顺铂引起的小鼠MuRF-1和MAFbx表达升高及MyoDMyoG表达下降,同时增加肌纤维直径和横截面积。Tintignac等[77]提高成肌细胞中MAFbx的表达,可诱导MyoD发生泛素化和降解,从而抑制细胞分化。Ahmad等[78]研究发现,肉鸡饲粮中添加1.0%的Met可降低MAFbxMuRF-1的表达,而添加0.5%的Met则提高了MyoD的表达,表明添加Met可改善肉鸡的产肉性能并抑制肌肉发生降解。Del Vesco等[79]研究发现,肉鸡饲喂3种Met水平饲粮(不补充Met、推荐水平Met和过量补充Met),补充Met对MAFbx表达有影响,并且饲粮中Met水平较高时,MAFbx表达较低。
综上所述,动物缺乏Met时,会抑制mTOR通路并激活UPS降低MRFs表达,抑制卫星细胞增殖和分化,从而阻碍肌肉的发育;通过适当补充Met,可抑制UPS系统并活化mTOR通路提高MRFs表达,促进卫星细胞增殖和分化,最终促进肌肉的发育。

3.2 Met调控IGF-Ⅰ通路

3.2.1 Met能够促进IGF-Ⅰ表达调控肌肉发育

IGF-Ⅰ是70个氨基酸组成的单链多肽,可激活细胞膜上的酪氨酸蛋白酶受体系统,诱导胰岛素受体底物-1(IRS-1)磷酸化,促使磷脂酰肌醇-3-激酶(PI3K)募集并活化,从而将磷脂酸肌醇4,5-双磷酸(PIP2)转化为磷脂酰肌醇3,4,5-三磷酸(PIP3)并激活Akt[29,69]。磷酸化Akt不仅可调控mTOR进行蛋白质合成,还可通过叉头框蛋白O(FoxOs)调控UPS进行蛋白质分解[69]。张永翠等[80]研究发现,饲粮添加0.4% Met时,断奶至2月龄肉兔肝脏和血清IGF-Ⅰ表达最高;而饲粮添加0.6% Met时,2~3月龄肉兔肝脏和血清IGF-Ⅰ表达最高。

3.2.2 Met调控IGF-Ⅰ表达激活mTOR通路

蒋雪樱[68]分别在爱拔益加和青脚麻鸡的饲粮中补充Met,2种肉鸡的胸肌IGF-Ⅰ含量显著提高;而饲粮缺乏Met,2种肉鸡胸肌IGF-Ⅰ和mTOR含量均显著降低。Wen等[72]研究表明,提高快速生长型肉鸡饲粮中Met含量,可以提高肉鸡胸肌中IGF-Ⅰ和mTOR含量,从而促进动物肌肉发育。Zhu等[81]研究证实,山羊饲粮添加DL-Met可显著提高mTOR通路的下游调节因子——真核翻译起始因子4B(EIF4B)及相关氨基酸转运蛋白的表达变化,从而增强蛋白质的合成。此外,Met还可通过溶质载体家族7成员5(SLC7A5)蛋白转运至细胞内可直接激活mTORC1通路,促进蛋白质的合成[82]

3.2.3 Met调控IGF-Ⅰ表达抑制UPS

滕战伟[83]对雏鹅胚蛋注射1.5 mL的Met营养液,可提高胸肌IGF-Ⅰ的表达,并降低叉头框蛋白O4(FoxO4)和MAFbx的表达。Gondret等[84]在屠宰前14天在猪饲粮中补充1.10%的Met可提高MuRF-1表达水平。这表明Met过量补充,会激活UPS促进蛋白质分解,导致肌肉萎缩。原培强[29]发现IGF-Ⅰ可以促进肌肉蛋白质的合成,并通过UPS和溶酶体自噬途径抑制肌肉蛋白降解。
综上所述,机体缺乏Met可抑制IGF-Ⅰ表达,进而调控UPS促进肌肉降解,并抑制mTOR通路减少蛋白质合成;而适量补充Met可促进IGF-Ⅰ的表达,进而激活mTOR通路增加蛋白质合成,并调控UPS抑制肌肉分解。

3.3 Met调控MSTN信号通路

3.3.1 Met可抑制MSTN表达促进肌肉发育

MSTN是肌肉生长和发育的负调控因子,对于调节肌纤维的类型、组成和肌肉功能具有重要作用[85-86]。MSTN能够激活细胞膜上的活化素activinⅡ型A/B受体(ActRⅡA/B)[87]。当MSTN与ActRⅡB结合时,可进一步与激活素受体样激酶4(ALK4)或者激活素受体样激酶5(ALK5)结合并磷酸化Smad2/3,使得Smad进入细胞核,促进靶基因的表达[88]。Wen等[89]提高肉鸡饲粮中Met水平,可降低胸肌MSTN的表达,并显著增加其胸肌产量。滕战伟[83]对朗德鹅胚蛋注射1.5 mL的Met营养液可降低MSTN的表达。蒋雪樱[68]研究表明,向青脚麻鸡的饲粮中添加高水平Met可以降低胸肌MSTN的表达,而添加低水平的Met则会提高MSTN的表达。李德生等[39]研究发现,对吉林白鹅胚蛋注射浓度为5 g/L的Met能够降低MSTN的表达,并显著提高雏鹅出壳当天、第7天及第28天其胸肌重和肌纤维直径。

3.3.2 Met抑制MSTN表达并促进肌源性基因表达

Liu等[89]研究表明,妊娠期间母体补充Met可显著改善后代犊牛骨骼肌的选择性剪接和DNA甲基化。Liu等[90]研究指出,低Met水平和高Met水平组肉鸡MSTN外显子的甲基化百分比分别为46%和84%,表明骨骼肌组织中MSTN基因外显子的甲基化程度与基因表达呈负相关。而Li等[40]对低出生体重仔猪补充Met,可以提高背最长肌中的SAM含量,增加DNA甲基转移酶活性,并提高MSTN基因外显子的CpG甲基化水平;与此同时,MSTN的表达水平下降,而MyoG、肌细胞增强子结合因子2A(MEF2A)和肌细胞增强子结合因子2D(MEF2D)的表达水平提高,进一步促进了背最长肌的增长,使其面积显著增加。Wen等[91]提高肉鸡饲粮中DL-Met水平,提高了Myf5、肌细胞增强子结合因子2B(MEF2B)表达并降低了MSTN表达,从而促进胸肌的发育。
综上所述,机体缺乏Met,会促进MSTN表达进而抑制MRFs表达,从而抑制肌肉的发育;经适量补充Met,可抑制MSTN的表达并促进MRFs表达,促进肌肉的发育。

3.4 Met调控自噬溶酶体通路

3.4.1 Met可抑制mTOR信号通路激活细胞自噬

自噬是动物细胞内溶酶体的降解过程,通过将受损蛋白、细胞器和代谢产物包裹成溶酶体,降解为氨基酸和核苷酸等小分子物质[92-93]。Sun等[94]研究发现,小鼠喂食Met限制饲粮会降低肝脏组织中mTOR磷酸化水平。Sutter等[95]降低酵母细胞培养基的Met水平会降低SAM含量,在蛋白磷酸酶甲基转移酶1(Ppm1p)的作用下,蛋白磷酸酶2A(PP2A)发生甲基化,促进磷酸蛋白Npr2p的去磷酸化,进而抑制Pml1p-Npr2p-Npr3p复合物相互作用,导致mTORC1活化,从而抑制自噬并促进细胞生长。Gu等[96]试验证明,当Met充足时,SAM以约7 μmol/L的解离常数直接与S-腺苷甲硫氨酸传感器(SAMTOR)结合,破坏SAMTOR-RagA GTP酶激活蛋白(GATOR1)复合物,促进mTORC1信号传导;而Met缺乏时,会降低SAM含量至该解离常数以下,促进SAMTOR与GATOR1的结合,从而抑制mTORC1促进细胞自噬。钟和局[97]研究表明,Met代谢途径产生的SAM可直接激活mOTRC1信号通路,并抑制细胞自噬。

3.4.2 Met促进自噬基因表达、溶酶体酸化抑制肌肉发育

Wu等[98]研究表明,Met限制通过miR-328-3p增加肥胖小鼠的内源性硫化氢(H2S),降低了蛋白质合成[mTORC1和核糖体蛋白S6激酶(S6K1)],并促进自噬相关基因Beclin表达。杨玉辉[99]研究表明,肥胖小鼠饲喂Met限制饲粮可提高沉默信息调节因子1(SIRT1)、轻链3A(LC3A)、轻链3B(LC3B)和Beclin1的表达,并降低mTOR和p62蛋白的表达,导致肝脏细胞中自噬空泡的数量增加,从而促进肝脏的自噬作用。陈秋月[100]研究表明,Met限制可促进转录因子EB(TFEB)在细胞核内聚集并激活其转录,进而调控靶基因表达,从而增加自噬-溶酶体通路活性。Ruckenstuhl等[101]研究指出,Met限制可诱导酵母细胞发生自噬,提高V-ATP酶的活性,导致自噬空泡酸化,从而延长寿命。Xin等[102]研究发现,Met缺乏可下调长链非编码核糖核酸(lncRNA)浆细胞瘤变异体易位1(PVT1)的表达,抑制lncRNA PVT1与DNA甲基转移酶1(DNMT1)的结合,使B细胞淋巴瘤2相互作用蛋白3(BNIP3)启动子去甲基化,从而激活线粒体自噬并抑制癌症细胞的增殖。
综上所述,机体缺乏Met会降低SAM含量,进而抑制mTORC1的激活,从而促进细胞自噬的发生;当机体Met充足时,会提高SAM含量,促进mTORC1信号通路的活化,从而抑制细胞自噬;此外,Met还可以通过促进自噬基因的表达和调节溶酶体酸化等方式,诱导细胞发生自噬作用。

3.5 Met调控线粒体凋亡通路

3.5.1 Met能够介导细胞凋亡抑制肌肉的生长和再生过程

细胞凋亡是由一系列基因的激活、表达和调控下细胞主动性死亡的过程,线粒体通路是其内在途径之一[103-104]。其中,半胱氨酸天冬氨酸蛋白酶-3(Caspase-3)、B细胞淋巴瘤2相关X蛋白(Bax)和B细胞淋巴瘤2(Bcl-2)均为反映细胞凋亡的重要指标[105]。Caspase-3是一种可水解具有凋亡特征的蛋白水解酶[106]。Bax是一种促凋亡因子,可与Bcl-2结合形成复合物并促进Bcl-2降解,从而介导细胞凋亡[107-108]。Bcl-2为抗凋亡因子,能够抑制Bax通道形成,阻止钙离子(Ca2+)和凋亡诱导因子(AIF)释放,或阻止线粒体释放凋亡信号分子,从而阻断半胱氨酸天冬氨酸蛋白酶(Caspase)级联反应抑制细胞凋亡[109-110]。当细胞发生凋亡时,会增加线粒体膜通透性,导致凋亡信号分子进入胞浆与凋亡蛋白酶激活因子结合,并招募半胱氨酸天冬氨酸蛋白酶-9(Caspase-9)形成凋亡体,进而激活Caspase-3触发细胞凋亡[111]

3.5.2 Met介导线粒体凋亡通路影响肌肉发育

段晓翔[63]研究表明,肉鸡低蛋白质饲粮缺乏Met,会提高其胸肌和肝脏中Caspase-3表达并降低其胸肌重;添加适量DL-Met可抑制Caspase-3的表达,提高肉鸡的胸肌重。Chen等[112]研究发现,添加L-Met会增加断奶仔猪的空肠紧密连接蛋白丰度并降低Caspase-3的活性。Song等[113]研究发现,肉鸡饲粮缺乏Met会降低Bcl-2的表达,并提高BaxCaspase-3的表达,从而导致肾脏凋亡细胞的数量增加;此外,还会提高p53和p21的表达,降低细胞周期蛋白B(Cyclin B)和PCNA表达,说明Met缺乏会诱导肾脏细胞发生凋亡和细胞周期停滞。Tang等[114]研究表明,感染产肠毒素性大肠杆菌的猪上皮细胞中缺乏Met,会提高Caspase-3表达并降低Bcl-2表达,从而促进细胞凋亡。Han等[115]补充Met可降低牛乳腺上皮细胞Bax/Bcl-2的表达,阻止热应激引起Caspase-3活性增加,并抑制牛乳腺上皮细胞中热应激诱导的细胞凋亡。Zhou等[116]对奶牛乳腺上皮细胞补充Met,可提高Bcl-2的表达,并降低BaxCaspase-3和Caspase-9的表达。并且,mTOR、Akt、核糖体蛋白S6激酶B1(RPS6KB1)和核糖体蛋白S6(RPS6)表达水平随Met补充量的增加而提高,表明补充Met可能通过抑制细胞凋亡、激活Akt-mTOR-RPS6KB1信号通路来促进乳蛋白合成。

3.5.3 Met介导线粒体凋亡通路影响肌肉发育

蔡海青[117]研究表明,经过24 h锰处理的神经母细胞瘤细胞缺乏Met,会增加细胞内SAH和活性氧(ROS)含量,导致蛋白磷酸酶2A催化亚基(PP2Ac)去甲基化、微管相关蛋白tau磷酸化及蛋白磷酸酶甲酯酶1(PPME1)蛋白增加,同时降低PP2Ac甲基化和亮氨酸羧甲基转移酶1(LCMT1)蛋白表达,从而降低细胞活性并触发细胞凋亡;而补充Met会降低细胞内SAH和ROS含量,进而抑制tau蛋白磷酸化,导致PP2Ac甲基化和LCMT1蛋白表达增加,从而增强细胞活性并抑制细胞发生凋亡。此外还有另一种机制,分布于线粒体中的蛋氨酸亚砜还原酶B2(MSRB2),可将游离态或蛋白质中的蛋氨酸亚砜还原为Met,其表达降低会增强氧化应激诱导的细胞死亡[118-119]。Xiang等[120]研究发现,MSRB2过表达可通过抑制ERK磷酸化和单磷酸腺苷活化蛋白激酶(AMPK)活性,抑制BaxCaspase-3的表达并增强Bcl-2表达,进而降低阿尔茨海默病小鼠体内的ROS含量以及tau蛋白过磷酸化,从而发挥抗氧化作用。
综上所述,动物体内缺乏Met时,会增加细胞内SAH含量抑制Bcl-2表达,并促进BaxCaspase-3表达,从而促进细胞凋亡;经过适当补充Met,则会降低细胞内SAH含量,促进Bcl-2表达,并抑制BaxCaspase-3表达,从而抑制细胞凋亡的发生,同时介导mTOR通路促进肌肉发育。

4 小结

Met作为动物生长发育的主要限制性氨基酸,参与机体诸多代谢过程,目前已作为常用的饲料添加剂广泛应用于畜牧生产。经大量研究证实,生长期的畜禽对Met的需求会增大,通过饲粮补充适宜Met可促进蛋白质合成及细胞增殖分化,进而促进动物骨骼肌发育,从而有效提高动物的产肉性能。此外,Met通过MRFs家族、IGF-Ⅰ等信号通路促进骨骼肌合成,并通过MSTN、Caspase-3、自噬溶酶体系统等信号通路抑制骨骼肌分解,从而协调控制畜禽动物的肌肉发育过程。不过,仍然存在一些问题:1)众多研究学者在不同物种、生长阶段和生长环境中均已开展关于Met种类和用量方面的研究,但关于Met调控肌纤维生长发育、转录因子及信号通路方面研究仍有待探究,尤其是在单胃和反刍动物[121];2)Met通过不同信号通路之前的相互作用调控动物分化形成不同类型的肌纤维是目前的研究热点之一,其具体的调控机制还有待进一步完善;3)Met通过激活相关信号通路调控MRFs家族表达促进肌肉发育,以及调控细胞自噬系统促进肌肉萎缩的相关机制目前取得一定的进展,但许多细节仍然需要深入研究和探索;4)Met通过表观遗传修饰和基因表达调控肌肉发育的具体机制也是目前研究热点。本文总结了蛋氨酸调控肌肉发育过程的机制,同时亦可为畜禽养殖及饲料配方改良提供一定的理论参考价值。
[1]
李洁, 陈楚雯, 赵瑞鹏, 等. lncRNA在畜禽肌肉发育中的研究进展[J]. 中国畜牧兽医, 2023, 50(6):2427-2438.

DOI

LI J, CHEN C W, ZHAO R P, et al. Research progress on long non-coding RNA of muscle development in livestock and poultry[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(6):2427-2438. (in Chinese).

[2]
贺喜, 宋泽和, 常凌. 肉鸡肌纤维性状形成机制及调控的研究进展[J]. 动物营养学报, 2022, 34(10):6298-6305.

DOI

HE X, SONG Z H, CHANG L. Research progress on mechanism and regulation of chicken muscle fiber development[J]. Chinese Journal of Animal Nutrition, 2022, 34(10):6298-6305. (in Chinese)

DOI

[3]
王素丽. 妊娠期母猪不同维生素D3水平对子代肌肉发育与肉品质特性的影响研究[D].硕士学位论文. 新乡: 河南科技学院, 2022.

WANG S L. Effects of different vitamin D3 levels of sows during pregnancy on muscle development and meat quality traits of offspring[D].Master’s Thesis. Xinxiang: Henan Institute of Science and Technology, 2022. (in Chinese)

[4]
杨丽丽. 隆林山羊肌肉发育相关环状RNA的筛选及circLOC102191280的功能研究[D].硕士学位论文. 南宁: 广西大学, 2022.

YANG L L. Screening of key circular RNAs for muscle development in Longlin goat and study on the functional mechanism of circLOC102191280[D].Master’s Thesis. Nanning: Guangxi University, 2022. (in Chinese)

[5]
苏昕. 大口黑鲈早期发育肌肉生长及消化性能研究[D].硕士学位论文. 贵阳: 贵州大学, 2022.

SU X. Study on muscle growth and digestive performance of Micropterus salmoides during early development[D].Master’s Thesis. Guiyang: Guizhou University, 2022. (in Chinese)

[6]
韩丹. 饲料蛋白质水平对牛羊生长发育性能和肉品质的影响[J]. 中国畜禽种业, 2023, 19(6):145-148.

HAN D. Effects of dietary protein level on growth performance and meat quality of cattle and sheep[J]. The Chinese Livestock and Poultry Breeding, 2023, 19(6):145-148. (in Chinese)

[7]
卢建, 王克华, 王龙生, 等. 饲粮粗蛋白质水平对3-8周龄如皋黄鸡生长发育和血清生化指标的影响[J]. 动物营养学报, 2022, 34(12):7664-7674.

DOI

LU J, WANG K H, WANG L S, et al. Effects of dietary crude protein level on growth and development and serum biochemical indexes of Rugao yellow chickens aged from 3 to 8 weeks[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7664-7674. (in Chinese)

[8]
赵前程, 赵国先, 马可为, 等. 蛋肉鸡豆粕减量替代研究现状[J]. 北方牧业, 2022(24):19-20.

ZHAO Q C, ZHAO G X, MA K W, et al. Research on current status of reducing and replacing soybean meal in egg broiler chickens[J]. Northern Animal Husbandry, 2022(24):19-20. (in Chinese)

[9]
李明博, 刘环宇, 张龙舟, 等. 氨基酸调控牛生长代谢及产品品质的研究进展[J]. 饲料研究, 2021, 44(17):137-140.

LI M B, LIU H Y, ZHANG L Z, et al. Research progress on amino acids regulating cattle growth metabolism and product quality[J]. Feed Research, 2021, 44(17):137-140. (in Chinese)

[10]
郭静, 孙华伟. 猪精准营养是猪群健康的“刚需”[J]. 猪业科学, 2022, 39(7):26-27.

GUO J, SUN H W. Precise nutrition for pigs is the “essential requirement” for the health of pig herds[J]. Swine Industry Science, 2022, 39(7):26-27. (in Chinese)

[11]
夏茂, 赵小刚, 郭吉余, 等. 蛋氨酸代谢及其对动物繁殖性能的影响研究进展[J]. 中国畜牧杂志, 2023, 59(5):17-23.

XIA M, ZHAO X G, GUO J Y, et al. Research progress on methionine metabolism and its effect on animal reproductive performance[J]. Chinese Journal of Animal Science, 2023, 59(5):17-23. (in Chinese)

[12]
李莉. 过瘤胃蛋氨酸对奶山羊产奶性能和血液指标的影响[D].硕士学位论文. 长沙: 湖南农业大学, 2019.

LI L. Effect of rumen protected methionine on milk performance and blood index of milk goat[D].Master’s Thesis. Changsha: Hunan Agricultural University, 2019. (in Chinese)

[13]
李亮. 蛋氨酸对雉鸡的生长、肉质、抗氧化性及免疫功能的影响[D].硕士学位论文. 长春: 吉林大学, 2017.

LI L. Effect of methionine on growth,meat quality,antioxidant properties and immune function of Phasianus colchicus[D].Master’s Thesis. Changchun: Jilin University, 2017. (in Chinese)

[14]
YANG Z Y, HTOO J K, LIAO S F. Methionine nutrition in swine and related monogastric animals:beyond protein biosynthesis[J]. Animal Feed Science and Technology, 2020, 268:114608.

[15]
谢玉生, 刘辉, 周明安. 蛋氨酸过量会引起蛋鸡代谢性中毒[J]. 中国饲料, 1998(6):19.

XIE Y S, LIU H, ZHOU M A, et al. Excessive methionine can cause metabolic intoxication in Gallus gallus domesticus[J]. China Feed, 1998(6):19. (in Chinese)

[16]
KIDD M T. Nutritional modulation of immune function in broilers[J]. Poultry Science, 2004, 83(4):650-657.

DOI PMID

[17]
陈菲. 蛋氨酸水平对杂交鸡生产性能的影响及腿肌差异表达基因的研究[D].硕士学位论文. 锦州: 锦州医科大学, 2019.

CHEN F. Effect of methionine level on production performance of hybrid chicken and study on differential expression gene of leg muscle[D].Master’s Thesis. Jinzhou: Jinzhou Medical University, 2019. (in Chinese)

[18]
左方瑞. 不同形式的蛋氨酸源在猪不同细胞系中的代谢特征和对细胞功能的影响[D]. 博士学位论文. 武汉: 华中农业大学, 2020.

ZUO F R. Metabolic characteristics and effects on cell functions of different forms of methionine sources in different pig cell lines[D]. Ph.D. Thesis. Wuhan: Huazhong Agricultural University, 2020. (in Chinese)

[19]
童云. D,L-蛋氨酸在KCl水溶液中的热力学性质研究[D].硕士学位论文. 杭州: 浙江大学, 2022.

TONG Y. Thermodynamic properties of D,L-methionine in KCl aqueous solution[D].Master’s Thesis. Hangzhou: Zhejiang University, 2021. (in Chinese)

[20]
吴炎, 赵伟刚, 郭肖兰, 等. 蛋氨酸的生物代谢途径及其对反刍动物机体健康和生产的调控研究进展[J]. 中国畜牧杂志, 2023, 59(10):53-60.

WU Y, ZHAO W G, GUO X L, et al. Research progress of methionine metabolism pathway and mechanism of regulating ruminant health and production[J]. Chinese Journal of Animal Science, 2023, 59(10):53-60. (in Chinese)

[21]
韩春晓, 苗翠. 蛋氨酸的功能及代谢吸收过程[J]. 现代畜牧兽医, 2013(9):75-80.

HAN C X, MIAO C. The function and the metabolism and absorption process of methionine[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2013(9):75-80. (in Chinese)

[22]
赫晓娜. 过瘤胃蛋氨酸对妊娠母羊瘤胃组织、微生物区系以及胎儿脂肪、毛囊组织发育的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2022.

He X N. Effects of rumen-protected methionine on the development of rumen tissue,microflora and fetal fat and hair follicle tissue in pregnant ewes[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2022. (in Chinese).

[23]
张颖. 蛋氨酸对母猪繁殖性能及其子代拮抗LPS诱导免疫应激的作用和机制[D]. 博士学位论文. 武汉: 华中农业大学, 2023.

ZHANG Y. Effects and mechanism of methionine on reproductive performance of sows and their offspring antagonizing LPS-induced immune stress[D]. Ph.D. Thesis. Wuhan: Huazhong Agricultural University, 2022. (in Chinese)

[24]
方正锋, 张晓玲, 吴德, 等. DL-蛋氨酸及其羟基类似物在单胃动物体内的代谢机制研究进展[J]. 动物营养学报, 2010, 22(1):18-23.

FANG Z F, ZHANG X L, WU D, et al. Recent advance in metabolism of DL-methionine and its hydroxy analog in monogastric animals[J]. Chinese Journal of Animal Nutrition, 2010, 22(1):18-23. (in Chinese)

[25]
BECQUET P, VAZQUEZ-ANON M, MERCIER Y, et al. Absorption of methionine sources in animals-is there more to know?[J]. Animal Nutrition, 2022, 12:159-170.

[26]
DIBNER J J. Review of the metabolism of 2-hydroxy-4-(methylthio) butanoic acid[J]. World's Poultry Science Journal, 2003, 59(1):99-110.

[27]
刘德强. 过瘤胃蛋氨酸对奶牛泌乳期生产性能、养分消化率、血清生化指标的影响[D].硕士学位论文. 邯郸: 河北工程大学, 2022.

LIU D Q. Effects of supplemental rumen-protected methionine on production performance,nutrient digestibility and serum parameters of lactation cow[D].Master’s Thesis. Handan: Hebei University of Engineering, 2022. (in Chinese)

[28]
林泽铃, 蒋守群. 家禽蛋氨酸营养研究新进展[J]. 广东畜牧兽医科技, 2021, 46(4):1-6,19.

LIN Z L, JIANG S Q. New progress of methionine nutrition in poultry[J]. Guangdong Journal of Animal and Veterinary Science, 2021, 46(4):1-6,19. (in Chinese)

[29]
原培强. 饲粮蛋氨酸水平和来源对肥育猪生长性能和肉质的影响研究[D].硕士学位论文. 雅安: 四川农业大学, 2019.

YUAN P Q. Effects of different level and source of methionine in growing-finishing pig diets on growth performance and meat quality[D].Master’s Thesis. Ya’an: Sichuan Agricultural University, 2019. (in Chinese)

[30]
SAENGKERDSUB S, LINGBECK J M, WILKINSON H H, et al. Characterization of isolated yeast growth response to methionine analogs[J]. Journal of Environmental Science and Health:Part B, 2013, 48(12):1112-1120.

[31]
王香丽. 蛋氨酸对瓦氏黄颡鱼幼鱼生长和代谢的影响[D].硕士学位论文. 青岛: 中国海洋大学, 2014.

WANG X L. Effects of dietary methionine on growth performance and methionine metabolism of juvenile darkbarbel catfish (Pelteobagrus vachelli)[D].Master’s Thesis. Qingdao: Ocean University of China, 2014. (in Chinese)

[32]
王童童. 低蛋白饲粮添加蛋氨酸对安哥拉兔生产性能和消化代谢的影响[D].硕士学位论文. 泰安: 山东农业大学, 2020.

WANG T T. Effects of low protein diet supplemented with methionine on production performance and digestive metabolism of Angola rabbits[D].Master’s Thesis. Taian: Shandong Agricultural University, 2020. (in Chinese)

[33]
LU S C, MATO J M. S-adenosylmethionine in liver health,injury,and cancer[J]. Physiological Reviews, 2012, 92(4):1515-1542.

[34]
徐友信, 李宗珍, 王杰, 等. 蛋氨酸对动物表型性状的影响及DNA甲基化调控机制的研究进展[J]. 中国畜牧兽医, 2019, 46(4):1108-1115.

DOI

XU Y X, LI Z Z, WANG J, et al. Research progress on effects of methionine on phenotypic traits and regulation mechanism of DNA methylation in animals[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(4):1108-1115. (in Chinese)

[35]
胡诚军, 江青艳, 孔祥峰. 畜禽蛋氨酸代谢及其生理功能研究进展[J]. 饲料工业, 2016, 37(15):23-27.

HU C J, JIANG Q Y, KONG X F. Research progress of methionine metabolism and its physiological functions in livestock and poultry[J]. Feed Industry, 2016, 37(15):23-27. (in Chinese)

[36]
JARIYAHATTHAKIJ P, CHOMTEE B, POEIKHAMPHA T, et al. Effects of adding methionine in low-protein diet and subsequently fed low-energy diet on productive performance,blood chemical profile,and lipid metabolism-related gene expression of broiler chickens[J]. Poultry Science, 2018, 97(6):2021-2033.

[37]
曾雨佳, 朱锐, 李德生, 等. 饲粮蛋氨酸水平对大骨母鸡育成期生长性能及胫骨发育的影响[J]. 畜牧与兽医, 2020, 52(9):25-30.

ZENG Y J, ZHU R, LI D S, et al. Effects of dietary methionine levels on growth performance and tibia development of Dagu hens in growing[J]. Animal Husbandry & Veterinary Medicine, 2020, 52(9):25-30. (in Chinese)

[38]
WU Y B, TANG J, CAO J T, et al. Effect of dietary L-methionine supplementation on growth performance,carcass traits,and plasma parameters of starter pekin ducks at different dietary energy levels[J]. Animals, 2021, 11(1):144.

[39]
李德生, 徐维国, 田玉民, 等. 胚蛋给养蛋氨酸和二糖对鹅胸肌发育的影响[J]. 饲料研究, 2021, 44(10):35-39.

LI D S, XU W G, TIAN Y M, et al. Effect of feeding methionine and disaccharides from embryo eggs on the development of goose breast muscle[J]. Feed Research, 2021, 44(10):35-39. (in Chinese)

[40]
LI Y, ZHANG H, CHEN Y P, et al. Effects of dietary L-methionine supplementation on the growth performance,carcass characteristics,meat quality,and muscular antioxidant capacity and myogenic gene expression in low birth weight pigs[J]. Journal of Animal Science, 2017, 95(9):3972-3983.

[41]
DA SILVA C A, DIAS C P, CALLEGARI M A, et al. Increased sulphur amino acids consumption as OH-methionine or DL-methionine improves growth performance and carcass traits of growing-finishing pigs fed under hot conditions[J]. Animals, 2022, 12(17):2159.

[42]
EDMONDS M S, SMITH J W. Amino acid imbalance with excess methionine in late-finishing pigs:effects on performance and carcass quality[J]. Translational Animal Science, 2021, 5(4):197.

[43]
ZHANG J H, LI H H, ZHANG G J, et al. Supplementation of guanidinoacetic acid and rumen-protected methionine increased growth performance and meat quality of Tan lambs[J]. Animal Bioscience, 2022, 35(10):1556-1565.

[44]
曹广, 吕刚, 刘伟, 等. 玉米-棉籽粕型饲粮添加过瘤胃赖氨酸和过瘤胃蛋氨酸对育肥湖羊生长性能、屠宰性能、器官指数和肉品质的影响[J]. 动物营养学报, 2023, 35(6):3812-3821.

DOI

CAO G, LV G, LIU W, et al. Effects of dietary rumen-protected lysine and rumen-protected methionine in corn-cotton seed meal type diet on growth performance,slaughter performance,organ indices and meat quality of fattening Hu sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3812-3821. (in Chinese)

[45]
张艳梅. 复合化学处理稻草日粮中添加过瘤胃氨基酸对滩羊生产性能及肉品质的影响[D].硕士学位论文. 银川: 宁夏大学, 2019.

ZHANG Y M. The effects of rumen protected amino acids added in complex chemical straw diet on production performance and meat quality of Tan sheep[D].Master’s Thesis. Yinchuan: Ningxia University, 2019. (in Chinese)

[46]
BAGGERMAN J O, THOMPSON A J, JENNINGS M A, et al. Effects of encapsulated methionine on skeletal muscle growth and development and subsequent feedlot performance and carcass characteristics in beef steers[J]. Animals, 2021, 11(6):1627.

[47]
崔旭. 硒代蛋氨酸对小鼠肌肉生长的影响及分子机理研究[D].硕士学位论文. 哈尔滨: 东北农业大学, 2022.

CUI X. Effects and molecular mechanism of selenomethionine on muscle growth in mice[D].Master’s Thesis.Harbin:Northeast Agricultural University, 2022. (in Chinese)

[48]
石斌刚. 天祝白牦牛肌肉生长和肌内脂肪沉积相关基因筛选与鉴定[D]. 博士学位论文. 兰州: 甘肃农业大学, 2020.

SHI B G. Identification of genes associated with muscle growth and intramuscular fat deposition in tianzhu white yak[D]. Ph.D. Thesis. Lanzhou: Gansu Agricultural University, 2020. (in Chinese)

[49]
何玉琳, 靳建军, 李栋, 等. MicroRNA调控猪骨骼肌发育的研究进展[J]. 生物工程学报, 2023, 39(4):1514-1524.

HE Y L, JIN J J, LI D, et al. Porcine skeletal muscle development regulated by microRNA:a review[J]. Chinese Journal of Biotechnology, 2023, 39(4):1514-1524. (in Chinese)

[50]
MATARNEH S K, SILVA S L, GERRARD D E. New insights in muscle biology that alter meat quality[J]. Annual Review of Animal Biosciences, 2021, 9:355-377.

DOI PMID

[51]
付玉, 张博, 凌遥, 等. 骨骼肌生长发育过程及调控研究现状[J]. 中国畜牧兽医, 2021, 48(10):3565-3574.

DOI

FU Y, ZHANG B, LING Y, et al. Reviews on process and regulation of skeletal muscle growth and development[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(10):3565-3574. (in Chinese)

[52]
赵晓, 莫德林, 张悦, 等. 猪的骨骼肌生长发育研究进展[J]. 生命科学, 2011, 23(1):37-44.

ZHAO X, MO D L, ZHANG Y, et al. Progress in research on skeletal muscle growth and development in swine[J]. Chinese Bulletin of Life Sciences, 2011, 23(1):37-44. (in Chinese)

[53]
闫允君. 肌肉生长抑制素基因及其调控的相关基因在中国对虾肌肉生长发育中的作用研究[D]. 博士学位论文. 南京: 南京农业大学, 2020.

YAN Y J. Study on the roles of myostatin gene and its related genes in muscle growth and development from Fenneropenaeus chinensis[D]. Ph.D. Thesis. Nanjing: Nanjing Agricultural University, 2020. (in Chinese)

[54]
张皓源. TET2介导钙信号通路调控肌肉生长发育的机制研究[D]. 博士学位论文. 武汉: 华中农业大学, 2022.

ZHANG H Y. TET2-mediated calcium signaling pathway regulates muscle growth and development[D]. Ph.D. Thesis. Wuhan: Huazhong Agricultural University, 2022. (in Chinese)

[55]
WALLACE M A, DELLA GATTA P A, AHMAD MIR B, et al. Overexpression of striated muscle activator of Rho signaling (STARS) increases C2C12 skeletal muscle cell differentiation[J]. Frontiers in Physiology, 2016, 7:7.

DOI PMID

[56]
WEBSTER M T, MANOR U, LIPPINCOTT-SCHWARTZF J, et al. Intravital imaging reveals ghost fibers as architectural units guiding myogenic progenitors during regeneration[J]. Cell Stem Cell, 2016, 18(2):243-252.

DOI PMID

[57]
FUCHS E, BLAU H M. Tissue stem cells:architects of their niches[J]. Cell Stem Cell, 2020, 27(4):532-556.

[58]
FRONTERA W R, OCHALA J. Skeletal muscle:a brief review of structure and function[J]. Calcified Tissue International, 2015, 96(3):183-195.

[59]
DELDICQUE L. Protein intake and exercise-induced skeletal muscle hypertrophy:an update[J]. Nutrients, 2020, 12(7):2023.

[60]
WANG Y N, LIU Q, QUAN H L, et al. Nutraceuticals in the prevention and treatment of the muscle atrophy[J]. Nutrients, 2021, 13(6):1914.

[61]
LATIMER M N, FREIJ K W, CLEVELAND B M, et al. Physiological and molecular mechanisms of methionine restriction[J]. Front Endocrinol (Lausanne), 2018, 9:217.

[62]
OGAWA T, MASUMURA K, KOHARA Y, et al. S-adenosyl-L-homocysteine extends lifespan through methionine restriction effects[J]. Aging Cell, 2022, 21(5):e13604.

[63]
段晓翔. 低蛋白日粮蛋氨酸水平对肉鸡氮代谢及肌肉生长相关基因表达的影响[D].硕士学位论文. 长春: 吉林大学, 2015.

DUAN X X. The effects of levels methionine in low protein diets on nitrogen metabolism,muscle growth and related genes expression in broilers[D].Master’s Thesis. Changchun: Jilin University, 2015. (in Chinese)

[64]
郑琪, 睢梦华, 凌英会. 骨骼肌卫星细胞增殖与成肌分化过程中关键信号通路的作用[J]. 畜牧兽医学报, 2017, 48(11):2005-2014.

ZHENG Q, SUI M H, LING Y H. The role of key signaling pathways in the proliferation and differentiation of skeletal muscle satellite cells[J]. Acta Veterinaria et Zootechnica Sinica, 2017, 48(11):2005-2014. (in Chinese)

[65]
LATIMER M, SABIN N, LE CAM A, et al. MiR-210 expression is associated with methionine-induced differentiation of trout satellite cells[J]. Journal of Experimental Biology, 2017, 220(Pt 16):2932-2938.

[66]
YANG Z Y, HASAN M S, HUMPHREY R M, et al. Changes in growth performance,plasma metabolite concentrations,and myogenic gene expression in growing pigs fed a methionine-restricted diet[J]. Frontiers in Bioscience(Landmark Edition), 2021, 26(9):413-422.

[67]
IBRAHIM D, EL SAYED R, ABDELFATTAH-HASSAN A, et al. Creatine or guanidinoacetic acid?Which is more effective at enhancing growth,tissue creatine stores,quality of meat,and genes controlling growth/myogenesis in Mulard ducks[J]. Journal of Applied Animal Research, 2019, 47(1):159-166.

[68]
蒋雪樱. 蛋氨酸对青脚麻鸡生长、胸肌发育及肉品质的影响[D].硕士学位论文. 南京: 南京农业大学, 2016.

JIANG X Y. Effect of dietary methionine on growth,breast muscle development and meat quality of greenleg partridge chicken[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2016. (in Chinese)

[69]
王博发. 运动及饮食干预对胰岛素抵抗小鼠骨骼肌蛋白质代谢的影响[D].硕士学位论文. 北京: 北京体育大学, 2021.

WANG B F. Effects of exercise and dietary intervention on skeletal muscle protein metabolism in insulin-resistant mice[D].Master’s Thesis. Beijing: Beijing Sport University, 2021. (in Chinese)

[70]
康成容. PI3K/Akt/mTOR介导的细胞自噬在钽颗粒促成骨细胞增殖中的作用研究[D].硕士学位论文. 广州: 南方医科大学, 2018.

KANG C R. Involvement of PI3K/Akt/mTOR mediated autophagy in tantalum particle-induced proliferation in MC3T3-E1 cells[D].Master’s Thesis. Guangzhou: Southern Medical University, 2018. (in Chinese)

[71]
SUI Z M, WANG X, SUN Y K, et al. Methionine deficiency affects myogenesis and muscle macronutrient metabolism in juvenile turbot Scophthalmus maximus[J]. Aquaculture, 2024, 578:740013.

[72]
WEN C, JIANG X Y, DING L R, et al. Effects of dietary methionine on breast muscle growth,myogenic gene expression and IGF-Ⅰ signaling in fast-and slow-growing broilers[J]. Scientific Reports, 2017, 7(1):1924.

[73]
刘慧敏, 凌能, 叶茂. 泛素-蛋白酶体系统在铁死亡中的作用[J]. 中国细胞生物学学报, 2023, 45(1):164-171.

LIU H M, LING N, YE M. Role of the ubiquitin-proteasome system in ferroptosis[J]. Chinese Journal of Cell Biology, 2023, 45(1):164-171. (in Chinese)

[74]
李兴爽, 王洋, 金一. 泛素-蛋白酶体系统研究进展[J]. 畜牧与兽医, 2016, 48(3):137-141.

LI X S, WANG Y, JIN Y. Research progress on ubiquitin-proteasome system[J]. Animal Husbandry & Veterinary Medicine, 2016, 48(3):137-141. (in Chinese)

[75]
柯志飞. 不同运动对骨骼肌萎缩相关蛋白MuRF1、MAFbx、IGF-1和Caspase-3的影响[D].硕士学位论文. 成都: 成都体育学院, 2019.

KE Z F. Effects of different exercises on skeletal muscle atrophy related proteins MuRF1,MAFbx,IGF-1 and Caspase-3[D].Master’s Thesis. Chengdu: Chengdu Sport University, 2019. (in Chinese)

[76]
WU C T, LIAO J M, KO J L, et al. D-methionine ameliorates cisplatin-induced muscle atrophy via inhibition of muscle degradation pathway[J]. Integrative Cancer Therapies, 2019, 18:1534735419828832.

[77]
TINTIGNAC L A, LAGIRAND J, BATONNET S, et al. Degradation of MyoD mediated by the SCF (MAFbx) ubiquitin ligase[J]. Journal of Biological Chemistry, 2005, 280(4):2847-2856.

DOI PMID

[78]
AHMAD S, YOUSAF M S, TAHIR S K, et al. Effects of co-supplementation of β-galacto-oligosaccharides and methionine on breast meat quality,meat oxidative stability,and selected meat quality genes in broilers[J]. Pakistan Veterinary Journal, 2023, 43(3):428-434.

[79]
DEL VESCO A P, GASPARINO E, GRIESER D O, et al. Effects of methionine supplementation on the expression of protein deposition-related genes in acute heat stress-exposed broilers[J]. PLoS One, 2015, 10(2):e0115821.

[80]
张永翠. 蛋氨酸对肉兔生长发育、免疫性能、血液生化指标及IGF-Ⅰ mRNA表达量的影响[D].硕士学位论文. 泰安: 山东农业大学, 2008.

ZHANG Y C. Effects of methionine on growth performance,immunity performance,blood metabolites in serum and the expression of IGF-Ⅰ mRNA in liver of meat rabbits[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2008. (in Chinese)

[81]
ZHU X L, JIAO J Z, ZHOU C S, et al. Effects of dietary methionine and lysine supplementation on nutrients digestion,serum parameters and mRNA expression of related amino acid sensing and transporting genes in growing goats[J]. Small Ruminant Research, 2018, 166:1-6.

[82]
宾朋. 基于啮齿类柠檬酸杆菌蛋氨酸合成的抗菌靶点研究[D]. 博士学位论文. 扬州: 扬州大学, 2022.

BIN P. Targeting the methionine biosynthesis of Citrobacter rodentium as the novel antibacterial strategies[D]. Ph.D.Thesis. Yangzhou: Yangzhou University, 2022. (in Chinese)

[83]
滕战伟. 胚胎给养蛋氨酸对朗德鹅生长性能、抗氧化性能和胸肌发育的影响[D].硕士学位论文. 长春: 吉林农业大学, 2017.

TENG Z W. Effect of in ovo feeding of methionine on growth performance,antioxdant capacity and muscle development in Landaise geese[D].Master’s Thesis. Changchun: Jilin Agricultural University, 2017. (in Chinese)

[84]
GONDRET F, LE FLOC’H N, BATONON-ALAVO D I, et al. Flash dietary methionine supply over growth requirements in pigs:multi-facetted effects on skeletal muscle metabolism[J]. Animal, 2021, 15(7):100268.

[85]
张磊, 杨永杰, 张燕君. 骨骼肌生长调控信号通路[J]. 生物学杂志, 2011, 28(5):70-72,76.

ZHANG L, YANG Y J, ZHANG Y J. Research progress on signalling of skeletal muscle size control[J]. Journal of Biology, 2011, 28(5):70-72,76. (in Chinese)

[86]
JIA H X, ZHAO Y X, LI T T, et al. MiR-30e is negatively regulated by myostatin in skeletal muscle and is functionally related to fiber-type composition[J]. Acta Biochimica et Biophysica Sinica, 2017, 49(5):392-399.

DOI PMID

[87]
ZHU X, HADHAZY M, WEHLING M, et al. Dominant negative myostatin produces hypertrophy without hyperplasia in muscle[J]. FEBS Letters, 2000, 474(1):71-75.

PMID

[88]
疏义林. 凹耳臭蛙不同生活史阶段后肢大腿肌肉发育特征及分子调控[D]. 博士学位论文. 芜湖: 安徽师范大学, 2020.

SHU Y L. Developmental characteristics and molecular regulations of the hindlimb thigh muscle of Chinese concave-eared frogs (Odorrana tormota) in different life-history stages[D]. Ph.D. Thesis. Wuhu: Anhui Normal University, 2020. (in Chinese)

[89]
LIU L H, AMORÍN R, MORIEL P, et al. Maternal methionine supplementation during gestation alters alternative splicing and DNA methylation in bovine skeletal muscle[J]. BMC Genomics, 2021, 22(1):780.

DOI PMID

[90]
LIU G Q, ZONG K, ZHANG L L, et al. Dietary methionine affect meat qulity and myostatin gene exon 1 region methylation in skeletal muscle tissues of broilers[J]. Agricultural Sciences in China, 2010, 9(9):1338-1346.

[91]
WEN C, CHEN X, CHEN G Y, et al. Methionine improves breast muscle growth and alters myogenic gene expression in broilers[J]. Journal of Animal Science, 2014, 92(3):1068-1073.

DOI PMID

[92]
孙明发. 肌酸对肉鸡骨骼肌生长发育的调控研究[D]. 博士学位论文. 泰安: 山东农业大学, 2023.

SUN M F. The regulating effects of creatine on skeletal muscle growth and development of broiler chickens[D]. Ph.D. Thesis. Tai’an: Shandong Agricultural University, 2023. (in Chinese)

[93]
KITADA M, OGURA Y, MONNO I, et al. Effect of methionine restriction on aging:its relationship to oxidative stress[J]. Biomedicines, 2021, 9(2):130.

[94]
SUN L O, SADIGHI AKHA A A, MILLER R A, et al. Life-span extension in mice by preweaning food restriction and by methionine restriction in middle age[J]. The Journals of Gerontology Series A:Biological Sciences and Medical Sciences, 2009, 64(7):711-722.

[95]
SUTTER B M, WU X, LAXMAN S, et al. Methionine inhibits autophagy and promotes growth by inducing the SAM-responsive methylation of PP2A[J]. Cell, 2013, 154(2):403-415.

DOI PMID

[96]
GU X, OROZCO J M, SAXTON R A, et al. SAMTOR is an S-adenosylmethionine sensor for the mTORC1 pathway[J]. Science, 2017, 358(6364):813-818.

[97]
钟和局. mTORC1信号通路对母猪乳腺的抗氧化作用及受蛋氨酸调控的分子机理研究[D]. 博士学位论文. 雅安: 四川农业大学, 2020.

ZHONG H J. Antioxidant effect of mTORC1 signaling pathway on sow mammary gland and its molecular mechanism regulated by methionine[D]. Ph.D. Thesis. Ya’an: Sichuan Agricultural University, 2020. (in Chinese)

[98]
WU G Q, WANG Y N, YANG Y H, et al. Dietary methionine restriction upregulates endogenous H2S via miR-328-3p:a potential mechanism to improve liver protein metabolism efficiency in a mouse model of high-fat-diet-induced obesity[J]. Molecular Nutrition & Food Research, 2019, 63(5):e1800735.

[99]
杨玉辉. 蛋氨酸限制饮食对肥胖小鼠代谢的影响及其降脂机理的研究[D]. 博士学位论文. 无锡: 江南大学. 2019.

YANG Y H. Study on the metabolic effects and lipid-lowering mechanism of methionine restriction in obese mice[D]. Ph.D. Thesis. Wuxi: Jiangnan University, 2019. (in Chinese)

[100]
陈秋月. TFEB在蛋氨酸限制诱导SH-SY5Y细胞自噬中的作用研究[D].硕士学位论文. 杭州: 杭州师范大学, 2021.

CHEN Q Y. The Regulatory effect of TFEB on the autophagy induced by methionine restriction in SH-SYSY cells[D].Master’s Thesis. Hangzhou: Hangzhou Normal University, 2021. (in Chinese)

[101]
RUCKENSTUHL C, NETZBERGER C, ENTFELLNER I, et al. Lifespan extension by methionine restriction requires autophagy-dependent vacuolar acidification[J]. PLoS Genetics, 2014, 10(5):e1004347.

[102]
XIN L, LU H, LIU C, et al. Methionine deficiency promoted mitophagy via lncRNA PVT1-mediated promoter demethylation of BNIP3 in gastric cancer[J]. The International Journal of Biochemistry & Cell Biology, 2021, 141:106100.

[103]
VASKIVUO T E, OTTANDER U, ODUWOLE O, et al. Role of apoptosis,apoptosis-related factors and 17beta-hydroxysteroid dehydrogenases in human corpus luteum regression[J]. Molecular and Cellular Endocrinology, 2002, 194(1/2):191-200.

[104]
LOSSI L. The concept of intrinsic versus extrinsic apoptosis[J]. Biochemical Journal, 2022, 479(3):357-384.

DOI PMID

[105]
LI Z X, XIAO G X, WANG H Y, et al. A preparation of Ginkgo biloba L. leaves extract inhibits the apoptosis of hippocampal neurons in post-stroke mice via regulating the expression of Bax/Bcl-2 and Caspase-3[J]. Journal of Ethnopharmacology, 2021, 280:114481.

[106]
EARNSHAW W C, MARTINS L M, KAUFMANN S H. Mammalian Caspases:structure,activation,substrates and functions during apoptosis[J]. Annual Review of Biochemistry, 1999, 68(1):383-424.

[107]
SPITZ A Z, GAVATHIOTIS E. Physiological and pharmacological modulation of BAX[J]. Trends in Pharmacological Sciences, 2022, 43(3):206-220.

[108]
PEÑA B A. GARCÍA-SÁEZ A J.Bax, Bak and beyond-mitochondrial performance in apoptosis[J]. The FEBS Journal, 2018, 285(3):416-431.

[109]
YOULE R J, STRASSER A. The BCL-2 protein family:opposing activities that mediate cell death[J]. Nature Reviews.Molecular Cell Biology, 2008, 9(1):47-59.

[110]
DADSENA S, KING L E, GARCÍA-SÁEZ A J. Apoptosis regulation at the mitochondria membrane level[J]. Biochimica et Biophysica Acta:Biomembranes, 2021, 1863(12):183716.

[111]
ELMORE S. Apoptosis:a review of programmed cell death[J]. Toxicologic Pathology, 2007, 35(4):495-516.

[112]
CHEN Y, LI D F, DAI Z L, et al. L-methionine supplementation maintains the integrity and barrier function of the small-intestinal mucosa in post-weaning piglets[J]. Amino Acids, 2014, 46(4):1131-1142.

DOI PMID

[113]
SONG B L, ZENG Q M, LIU Y, et al. Effect of methionine deficiency on the apoptosis and cell cycle of kidney in broilers[J]. Research in Veterinary Science, 2021, 135:228-236.

DOI PMID

[114]
TANG Y L, TAN B, XIONG X, et al. Methionine deficiency reduces autophagy and accelerates death in intestinal epithelial cells infected with enterotoxigenic Escherichia coli[J]. Amino Acids, 2015, 47(10):2199-2204.

[115]
HAN Z Y, MU T, YANG Z. Methionine protects against hyperthermia-induced cell injury in cultured bovine mammary epithelial cells[J]. Cell Stress and Chaperones, 2015, 20(1):109-120.

[116]
ZHOU J, YUE S M, XUE B C, et al. Enhanced supply of methionine regulates protein synthesis in bovine mammary epithelial cells under hyperthermia condition[J]. Journal of Animal Science and Technology, 2021, 63(5):1126-1141.

DOI PMID

[117]
蔡海青. PP2Ac甲基化调控在锰诱导的N2a细胞损伤中机制研究[D].硕士学位论文. 南宁: 广西医科大学, 2019.

CAI H Q. Study on the mechanism of PP2Ac methylation regulation in manganese induced N2a cell injury[D].Master’s Thesis. Nanning: Guangxi Medical University, 2019. (in Chinese)

[118]
LEVINE R L, MOSKOVITZ J, STADTMAN E R. Oxidation of methionine in proteins:roles in antioxidant defense and cellular regulation[J]. IUBMB Life, 2000, 50(4/5):301-307.

[119]
MARCHETTI M A, PIZARRO G O, SAGHER D, et al. Methionine sulfoxide reductases B1,B2,and B3 are present in the human lens and confer oxidative stress resistance to lens cells[J]. Investigative Ophthalmology & Visual Science, 2005, 46(6):2107-2112.

[120]
XIANG X J, SONG L, DENG X J, et al. Mitochondrial methionine sulfoxide reductase B2 links oxidative stress to Alzheimer’s disease-like pathology[J]. Experimental Neurology, 2019, 318:145-156.

[121]
WU L, ZHANG H W, NA L, et al. Methionine restriction at the post-weanling period promotes muscle fiber transition in piglets and improves intramuscular fat content in growing-finishing pigs[J]. Amino Acids, 2019, 51(10):1657-1666.

Outlines

/