RESEARCH PAPER

Effects of Clostridium butyricum on Growth Performance, Liver Lipid Metabolism, Antioxidant Capacity and Blood Indices of Lambs

  • LU Xiaotan ,
  • WANG Qi ,
  • JI Qiang ,
  • LYU Tuoyu ,
  • ZHU Hongxu ,
  • XIE Xiaolai , * ,
  • ZHANG Yonggen ,
  • XIN Hangshu ,
  • JIAO Peixin , *
Expand
  • College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
* XIE Xiaolai, professor, E-mail: ;
JIAO Peixin, associate professor, E-mail:

Received date: 2023-11-23

  Online published: 2024-05-15

Abstract

This experiment was conducted to investigate the effects of Clostridium butyricum on growth performance, liver lipid metabolism, antioxidant capacity and blood indices of lactating lambs. Thirty healthy Saanen male lambs at (15±3) days of age with similar body weight of (5.5±1.5) kg were randomly divided into 3 groups with 10 lambs per group. Lambs in the control group (CON group) were fed a basal diet, and the others in the experimental groups were fed the basal diet supplemented with 0.25 (LCB group) and 0.50 g/d Clostridium butyricum (HCB group), respectively. The pre-trial period lasted for 15 days and the experimental period lasted for 45 days. The results showed as follows: 1) the starter intake of lambs in LCB group was significantly higher than that in HCB group (P<0.05); compared with CON group, the average daily gain in LCB group was significantly increased (P<0.05). 2) Compared with CON group, the triglyceride (TG) content in liver of lambs in LCB and HCB groups was significantly decreased (P<0.05), the activities of hormone sensitive lipase (HSL) and hydroxymethylglutaryl-CoA reductase (HMGCR) in liver were significantly increased (P<0.05), and the activities of acetyl-CoA carboxylase (ACC), lipoprotein lipase (LPL) and fatty acid synthetase (FAS) in liver were significantly decreased (P<0.05). Meanwhile, compared with CON group, the mRNA relative expression levels of adenosine monophosphate-activated protein kinase (AMPK), CCAAT enhancer binding protein α (C/EBPα) and carnitine palmitoyl transferase 1 (CPT1) in liver of lambs in LCB and HCB groups were significantly increased (P<0.05); in addition, the mRNA relative expression level of stearoyl-CoA desaturase 1 (SCD1) in liver in HCB group was significantly lower than that in CON and LCB groups (P<0.05). 3) Compared with CON group, the total superoxide dismutase (T-SOD) activity in liver of lambs in LCB and HCB groups was significantly increased (P<0.05), and the glutathione peroxidase (GSH-Px) activity and total antioxidant capacity (T-AOC) in serum were significantly increased (P<0.05); in addition, the malondialdehyde (MDA) content in serum in LCB group was significantly lower than that in CON and HCB groups (P<0.05). 4) Compared with CON group, the glutamic oxalacetic transaminase (AST) activity in serum of lambs in LCB and HCB groups was significantly decreased (P<0.05), and the activities of alkaline phosphatase (ALP) and lactate dehydrogenase (LDH) in serum were significantly increased (P<0.05). 5) Compared with CON group, the contents of immunoglobulin A (IgA), immunoglobulin G (IgG) and interleukin-10 (IL-10) in serum of lambs in LCB and HCB groups were significantly increased (P<0.05), and the tumor necrosis factor-α (TNF-α) content in serum was significantly decreased (P<0.05); meanwhile, the interleukin-6 (IL-6) content in serum in LCB group was significantly lower than that in CON and HCB groups (P<0.05). In conclusion, Clostridium butyricum can improve the antioxidant capacity and immune function of lambs, and adding 0.25 g/d Clostridium butyricum in milk replacer can improve the average daily gain of lambs. At the same time, Clostridium butyricum can reduce the lipid deposition in liver of lambs by regulating the activity of enzymes related to lipid metabolism and the expression of genes related to lipid metabolism in liver.

Cite this article

LU Xiaotan , WANG Qi , JI Qiang , LYU Tuoyu , ZHU Hongxu , XIE Xiaolai , ZHANG Yonggen , XIN Hangshu , JIAO Peixin . Effects of Clostridium butyricum on Growth Performance, Liver Lipid Metabolism, Antioxidant Capacity and Blood Indices of Lambs[J]. Chinese Journal of Animal Nutrition, 2024 , 36(5) : 3156 -3169 . DOI: 10.12418/CJAN2024.271

脂类是反刍动物重要的能源物质,脂质代谢在维持动物机体健康、生长发育方面发挥着重要的作用[1]。脂质代谢包括脂肪生成、脂肪分解和脂质氧化,肝脏是脂质代谢和维持脂质稳态的重要器官[2]。随着羊饲养模式从传统放牧饲养向集约化饲养转变,羔羊容易获得更高的营养摄入,但也容易导致脂肪过度积累,增加了脂肪代谢疾病的风险。高能量、高脂肪的摄入导致肝脏脂肪的过度积累,这是诱发肝脏脂质代谢紊乱和非酒精性脂肪性肝病(non-alcoholic fatty liver disease,NAFLD)等肝脏疾病的主要原因之一[3]。NAFLD是一种慢性脂肪性肝脏疾病,其特征是肝细胞损伤和纤维化,并最终发展为肝硬化和肝细胞癌[4-5]。NAFLD在机体长期的发展过程中,将给动物带来不可逆的肝损伤甚至死亡[5]。因此,调节羔羊肝脏的脂质代谢对促进羔羊的生长发育、维持动物机体健康具有重要意义。
丁酸梭菌(Clostridium butyricum,CB),又名酪酸菌、丁酸梭状芽孢杆菌,可以产生丁酸,抗逆性强,为革兰氏阳性厌氧菌[6]。CB作为一种肠道的益生菌,具有维持肠道菌群平衡、减少肠道疾病发生以及提高免疫力等多方面的功能[7]。同时,Cao等[8]研究发现,CB可以通过降低14日龄仔猪血清丙二醛(malonaldehyde,MDA)含量,并提高血清总抗氧化能力(total antioxidant capacity,T-AOC),从而提高仔猪的抗氧化能力。最近的研究表明,CB可以通过激活肝X受体α(LXRα)和法尼醇X受体(FXR)调节仔猪肝脏的脂质代谢[9]。Zhao等[10]研究发现,CB对肉鸡中脂肪代谢的相关基因脂肪酸合成酶(FAS)、乙酰辅酶A羧化酶(ACC)、脂蛋白脂肪酶(LPL)mRNA的表达具有调控作用。Chen等[11]研究发现,饲粮中添加CB可以改善脂多糖胁迫下断奶仔猪的免疫能力。近年来,CB作为一种高效、低毒的新型益生菌,已被广泛应用于单胃动物和成年反刍动物的实际生产中。但是,CB对于哺乳期羔羊的研究鲜见报道。因此,本研究以哺乳期羔羊为研究对象,探究CB对哺乳期羔羊生长性能、肝脏脂质代谢、抗氧化能力及血液指标的影响,为其在幼龄反刍动物的应用提供数据参考和理论依据。

1 材料与方法

1.1 试验材料

试验所需CB产品为市售,其中活菌数为2.0×10⁸ CFU/g。

1.2 试验设计和饲养管理

试验采用完全随机分组设计,选用体重[(5.5±1.5) kg]相近、(15±3)日龄的健康萨能公羔羊30只,随机分为3组,每组10只。对照组(CON组)饲喂基础饲粮,试验组分别饲喂在基础饲粮的基础上添加0.25(LCB组)和0.50 g/d丁酸梭菌(HCB组)的饲粮。预试期15 d,正试期45 d。
试验采用单栏单圈饲养,正试期前15 d,每天在06:00、12:00、18:00和22:00各饲喂羔羊1次代乳粉(市售);正试期后30 d,每天在08:00、15:00和22:00进行饲喂。代乳粉饲喂量为羔羊平均体重的2%,随着羔羊体重增长,正试期前15 d每5 d进行1次调整,正试期后30 d每15 d进行1次调整。饲喂时用50 ℃左右的温开水进行冲泡,代乳粉与水的比例为1∶6,混匀后自然冷却至(38±2) ℃后倒入奶瓶进行饲喂,试验组饲喂的CB加入奶瓶中搅拌均匀后进行饲喂。羔羊自由采食开食料和苜蓿干草,自由饮水。
根据AOAC(2005)[12]测定代乳粉、苜蓿干草和开食料中干物质(方法930.15)、粗蛋白质(方法990.03)、粗脂肪(方法920.85)和粗灰分(方法938.08)含量;根据Van Soest等[13]的方法,采用热稳定α-淀粉酶和亚硫酸钠测定中性洗涤纤维和酸性洗涤纤维含量,测定方法参照AOAC(2005)[12](方法973.18)。根据《肉羊营养需要量》(NY/T 816—2021)计算代谢能,计算公式为:
代谢能(MJ/kg DM)=0.046+0.820×
消化能(MJ/kg DM)。
代乳粉和苜蓿干草营养水平见表1,开食料组成及营养水平见表2
表1 代乳粉和苜蓿干草营养水平(干物质基础)

Table 1 Nutrient levels of milk replacer and alfalfa hay (DM basis) %

项目
Items
代乳粉
Milk replacer
苜蓿干草
Alfalfa hay
干物质DM 95.99 92.40
粗蛋白质CP 9.09 14.33
粗脂肪EE 24.21 1.78
粗灰分Ash 3.36 7.92
中性洗涤纤维NDF 2.03 54.47
酸性洗涤纤维ADF 0.39 37.28
代谢能ME/(MJ/kg) 19.22 7.88

干物质含量为风干基础。代谢能为计算值,其余为实测值。

DM content was air-dry basis. ME was a calculated value, while the others were measured values.

表2 开食料组成及营养水平(风干基础)

Table 2 Composition and nutrient levels of the starter (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 62.50
豆粕Soybean meal 16.50
膨化大豆Extruded soybean 10.00
葡萄糖Glucose 2.00
发酵豆粕Fermented soybean meal 5.00
石粉Limestone 2.00
磷酸氢钙CaHPO4 1.00
预混料Premix1) 1.00
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 11.49
粗蛋白质CP 15.82
粗脂肪EE 6.14
粗灰分Ash 7.96
中性洗涤纤维NDF 24.15
酸性洗涤纤维ADF 7.76
钙Ca 2.45
磷P 0.43

1)预混料为每千克开食料提供 The premix provided the following per kg of the starter:VA 4 500 IU,VD 600 IU,VE 40 IU,Zn 80 mg,Mn 50 mg,Fe 50 mg,I 0.75 mg,Co 0.65 mg,Se 0.25 mg。

2)代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.3 样品采集

在正试期第44天晨饲前,对每只羔羊进行颈静脉空腹采血,将采集到的10 mL血液放入离心机中,在1 495.7×g下离心15 min,分离血清,-20 ℃保存。在正试期结束的第2天,每组随机选取3只羔羊,空腹16 h后进行屠宰,将羔羊肝脏样本剪碎后分装于10 mL无菌离心管中,立即放入液氮中冷冻保存,后迅速转移至-80 ℃保存。

1.4 指标测定

1.4.1 生长性能指标

从正试期开始到试验结束,每天记录每只羔羊开食料和苜蓿干草的投料量和剩料量,并在试验开始时以及试验第15天、第30天和第45天对羊进行空腹称重,记录数据。统计整个试验期间羔羊开食料采食量和苜蓿采食量,计算羔羊平均日增重(average daily gain,ADG)和饲料转化率(feed conversion ratio,FCR)。计算公式为:
平均日增重=(终末体重-初始体重)/试验天数;
饲料转化率=(开食料采食量+
苜蓿采食量)/平均日增重。

1.4.2 肝脏抗氧化指标测定

采用比色法测定肝脏中总超氧化物歧化酶(total superoxide dismutase,T-SOD)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)、过氧化氢酶(catalase,CAT)活性和MDA含量以及T-AOC,测定步骤按试剂盒(南京建成生物工程研究所)要求进行。

1.4.3 肝脏脂质含量测定

采用南京建成生物工程研究所试剂盒测定肝脏中甘油三酯(triglyceride,TG)和总胆固醇(total cholesterol,T-CHO)含量,测定步骤按试剂盒要求进行。

1.4.4 肝脏脂质代谢相关酶活性和相关基因表达测定

采用南京建成生物工程研究所试剂盒测定肝脏中激素敏感性脂肪酶(hormone sensitive lipase,HSL)、ACC、FAS、羟甲基戊二酰辅酶A还原酶(hydroxymethylglutaryl-CoA reductase,HMGCR)和LPL活性,测定步骤按试剂盒要求进行。
采用TRIzol试剂(Thermo Fisher Science Co.,Ltd.,美国)提取羔羊肝脏组织总RNA,然后使用纳米光度计(Implen GmbH,德国)测定总RNA浓度。使用PrimeScriptTM RT Reagent Kit(TAKARA Code:#RR037A)试剂盒进行RNA反转录反应。荧光定量PCR(RT-PCR)使用ABI PRISM 7500 SDS热循环仪(Applied Biosystems,美国)测定羔羊肝脏脂质代谢相关基因ACC、单磷酸腺苷活化蛋白激酶(AMPK)、脂肪甘油三酯脂肪酶(ATGL)、CCAAT增强子结合蛋白α(C/EBPα)、肉碱棕榈酰基转移酶1(CPT1)、FASHSLLPL、过氧化物酶体增殖物激活受体γ(PPARγ)、硬脂酰辅酶A去饱和酶1(SCD1)和甾醇调节元件结合蛋白1(SREBP1)mRNA相对表达量。PCR程序为:95 ℃预变性30 s;95 ℃变性5 s,60 ℃变性34 s,重复40个循环。以β-肌动蛋白(β-actin)为内参基因,对试验中每个样本的检测基因进行比对计算,以Ct值作为统计分析的输出形式。最终,根据2-ΔΔCt公式计算出目的基因的mRNA相对表达量。本试验基因的引物由生工生物工程(上海)股份有限公司设计合成。PCR引物序列见表3
表3 引物序列

Table 3 Primer sequences

基因
Genes
登录号
Accession No.
序列
Sequences (5'—3')
片段大小
Fragment size/bp
乙酰辅酶A羧化酶
ACC
DQ370054.1 F:GGCGGGATGGTCTCTTTTC
R:TGGGGACCTTGTCTTCATCATAC
145
单磷酸腺苷活化蛋白激酶
AMPK
XM_018065500.1 F:CGACAGCCGAGAAGCAGAAACA
R:TGCCAACCTTCACTTTGCCGAA
102
脂肪甘油三酯脂肪酶
ATGL
XM_018042656.1 F:CAAGGAGACGACGTGGAACAT
R:TATTGGCACCAGCTTCACCCAG
197
CCAAT增强子结合蛋白α
C/EBPα
XM_018062278.1 F:CCGTGGACAAGAACAGCAA
R:GGCGGTCATTGTCACTGG
141
肉碱棕榈酰基转移酶1
CPT1
XM_005700037.1 F:TCTGGGACCGAGATTGC
R:GAGCAGAGCGGAATCGT
279
脂肪酸合成酶
FAS
NM_001285629.1 F:GGGCTCCACCACCGTGTTCCA
R:GCTCTGCTGGGCCTGCAGCTG
226
激素敏感性脂肪酶
HSL
XM_018062484.1 F:CCTCCTCGTGGCTCAACTCCTT
R:CTGTTGTGTCGCTGCTGTTCCT
195
脂蛋白脂肪酶
LPL
NM_001285607.1 F:GGACACTTGCCACCTCA
R:CCGCCATCCAGTTCATA
278
过氧化物酶体增殖物激活受体γ
PPARγ
NM_001285658.1 F:CCTTCACCACCGTTGACTTCT
R:GATACAGGCTCCACTTTGATTGC
145
硬脂酰辅酶A去饱和酶1
SCD1
NM_001285619.1 F:TGGCGTTCCAGAATGACGTT
R:TGGGGATCAGCATCCGTTTC
82
甾醇调节元件结合蛋白1
SREBP1
NM_001285755.1 F:CTGCTGACCGACATAGAAGACAT
R:GTAGGGCGGGTCAAACAGG
81
β-肌动蛋白
β-actin
JX046106 F:CTCACGGAGCGTGGCTACA
R:GCCATCTCCTGCTCGAAGTC
107

1.4.5 血清生化、抗氧化和免疫指标测定

采用全自动生化分析仪(BS-240VET)测定血清中总蛋白(total protein,TP)、白蛋白(albumin,ALB)、球蛋白(globulin,GLB)、葡萄糖(glucose,GLU)、尿素氮(urea nitrogen,UN)、TG、T-CHO、高密度脂蛋白(high density lipoprotein,HDL)和低密度脂蛋白(low density lipoprotein,LDL)含量以及谷丙转氨酶(alanine aminotransferase,ALT)、谷草转氨酶(aspartate aminotransferase,AST)、碱性磷酸酶(alkaline phosphatase,ALP)和乳酸脱氢酶(lactate dehydrogenase,LDH)活性。
采用比色法测定血清中T-SOD、GSH-Px、CAT活性和MDA含量以及T-AOC,测定步骤按试剂盒(南京建成生物工程研究所)要求进行。
委托北京华英生物技术研究所采用酶联免疫吸附试验(ELISA)法/比色法(A6半自动生化仪分析)测定血清中免疫球蛋白A(immunoglobulin A,IgA)、免疫球蛋白G(immunoglobulin G,IgG)、免疫球蛋白M(immunoglobulin M,IgM)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素-6(interleukin-6,IL-6)、白细胞介素-10(interleukin-10,IL-10)和白细胞介素-1β(interleukin-1β,IL-1β)含量。

1.5 数据统计与分析

所有试验数据采用Excel 2019进行初步处理,然后采用SAS 9.4软件进行单因素方差分析,并采用Duncan氏法进行多重比较,结果以平均值和均值标准误表示,以P<0.05表示差异显著。

2 结果与分析

2.1 CB对羔羊生长性能的影响

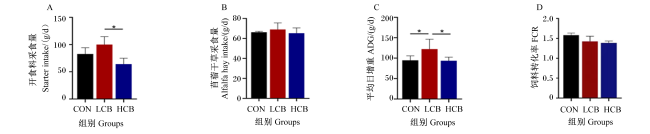
图1所示,与CON组相比,LCB组和HCB组羔羊开食料采食量无显著差异(P>0.05),但LCB组开食料采食量显著高于HCB组(P<0.05);苜蓿干草采食量在CON组、LCB组和HCB组间无显著差异(P>0.05);LCB组羔羊平均日增重较CON组和HCB组显著提高(P<0.05);此外,与CON组相比,LCB组和HCB组羔羊FCR无显著差异(P>0.05)。
图1 CB对羔羊生长性能的影响

*表示差异显著(P<0.05)。下图同。

Fig.1 Effects of CB on growth performance of lambs

*mean significant difference(P<0.05). The same as below.

2.2 CB对羔羊肝脏脂质含量的影响

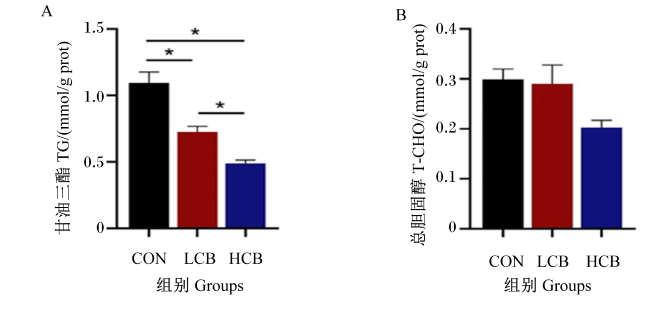
图2所示,与CON组相比,LCB组和HCB组羔羊肝脏中TG含量显著降低(P<0.05),且LCB组肝脏中TG含量显著高于HCB组(P<0.05);3组间肝脏T-CHO含量无显著差异(P>0.05)。
图2 CB对羔羊肝脏脂质含量的影响

Fig.2 Effects of CB on lipid content in liver of lambs

2.3 CB对羔羊肝脏脂质代谢相关酶活性的影响

表4可知,与CON组相比,LCB组和HCB组羔羊肝脏中HSL和HMGCR活性显著提高(P<0.05),且HCB组显著高于LCB组(P<0.05);LCB组和HCB组肝脏中ACC和LPL活性显著降低(P<0.05),且HCB组显著低于LCB组(P<0.05);此外,LCB组和HCB组肝脏中FAS活性显著降低(P<0.05)。
表4 CB对羔羊肝脏脂质代谢相关酶活性的影响

Table 4 Effects of CB on lipid metabolism related enzyme activities in liver of lambs U/L

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LCB HCB
激素敏感性脂肪酶HSL 129.13c 177.35b 213.61a 7.14 0.001
乙酰辅酶A羧化酶ACC 272.64a 229.52b 195.93c 12.80 0.016
脂肪酸合成酶FAS 10.76a 7.85b 7.69b 0.58 0.016
羟甲基戊二酰辅酶A还原酶HMGCR 61.41c 79.02b 100.91a 5.21 0.005
脂蛋白脂肪酶LPL 1 806.50a 1 402.10b 1 075.12c 119.25 0.014

同行数据肩标不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.4 CB对羔羊肝脏脂质代谢相关基因表达的影响

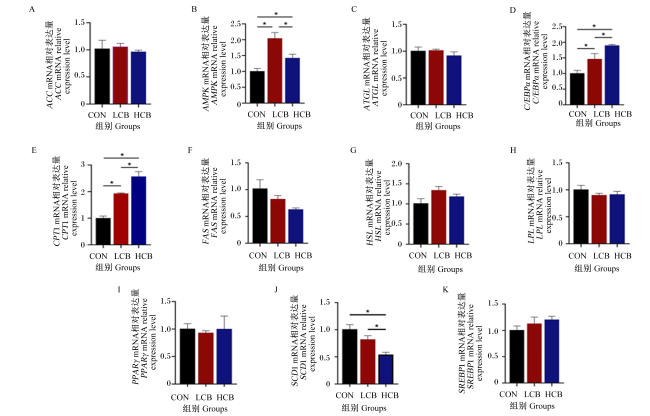
图3所示,与CON组相比,LCB组和HCB组羔羊肝脏中AMPKC/EBPαCPT1的mRNA相对表达量显著提高(P<0.05);同时,LCB组肝脏中AMPK的mRNA相对表达量显著高于HCB组(P<0.05),而肝脏中C/EBPαCPT1的mRNA相对表达量显著低于HCB组(P<0.05);HCB组肝脏中SCD1的mRNA相对表达量显著低于CON组和LCB组(P<0.05);此外,3组间肝脏中ACCATGLFASHSLLPLPPARγSREBP1的mRNA相对表达量均无显著差异(P>0.05)。
图3 CB对羔羊肝脏脂质代谢相关基因表达的影响

Fig.3 Effects of CB on expression of lipid metabolism-related genes in liver of lambs

2.5 CB对羔羊肝脏抗氧化指标的影响

表5可知,与CON组相比,LCB组和HCB组羔羊肝脏中T-SOD活性显著提高(P<0.05),且HCB组显著高于LCB组(P<0.05);3组间肝脏中GSH-Px和CAT活性、MDA含量以及T-AOC均无显著差异(P>0.05)。
表5 CB对羔羊肝脏抗氧化指标的影响

Table 5 Effects of CB on antioxidant indices in liver of lambs

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LCB HCB
谷胱甘肽过氧化物酶GSH-Px/(U/mg prot) 38.61 37.08 38.75 2.62 0.885
过氧化氢酶CAT/(U/mg prot) 9.98 9.82 10.08 0.21 0.799
总超氧化物歧化酶T-SOD/(U/mg prot) 14.48c 15.18b 17.52a 0.56 0.019
丙二醛MDA/(nmol/mg prot) 1.31 1.07 0.80 0.15 0.140
总抗氧化能力T-AOC/(U/mg prot) 2.95 2.84 2.75 0.21 0.801

2.6 CB对羔羊血清抗氧化指标的影响

表6可知,与CON组相比,LCB组和HCB组羔羊血清中GSH-Px活性和T-AOC显著提高,且在LCB组肝脏中GSH-Px活性显著高于HCB组(P<0.05);此外,LCB组血清中MDA含量显著低于CON组和HCB组(P<0.05)。
表6 CB对羔羊血清抗氧化指标的影响

Table 6 Effects of CB on antioxidant indices in serum of lambs

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LCB HCB
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 26.56c 55.32a 41.66b 6.41 0.026
过氧化氢酶CAT/(U/mL) 1.07 0.94 0.69 0.15 0.213
总超氧化物歧化酶T-SOD/(U/mL) 128.87 123.21 104.59 8.40 0.144
丙二醛MDA/(nmol/mL) 1.77a 1.51b 1.76a 0.07 0.043
总抗氧化能力T-AOC/(U/mL) 2.84b 4.46a 4.09a 0.37 0.023

2.7 CB对羔羊血清生化指标的影响

表7可知,与CON组相比,LCB组和HCB组羔羊血清中AST活性显著降低(P<0.05),且HCB组显著低于LCB组(P<0.05);HCB组血清中ALT活性显著降低(P<0.05);此外,LCB组和HCB组血清中ALP和LDH活性显著提高(P<0.05),且LCB组血清中LDH活性显著高于HCB组(P<0.05)。
表7 CB对羔羊血清生化指标的影响

Table 7 Effects of CB on biochemical indices in serum of lambs

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LCB HCB
尿素氮UN/(mmol/L) 3.50 2.48 2.87 0.39 0.211
葡萄糖GLU/(mmol/L) 5.08 4.77 4.60 0.25 0.418
谷丙转氨酶ALT/(U/L) 16.00a 15.50a 12.50b 0.59 0.002
谷草转氨酶AST/(U/L) 86.00a 81.60b 75.40c 2.02 0.010
谷草转氨酶/谷丙转氨酶AST/ALT 7.57 6.50 5.23 0.75 0.129
碱性磷酸酶ALP/(U/L) 277.60b 371.80a 398.80a 19.80 0.002
总蛋白TP/(g/L) 51.12 56.52 52.66 1.62 0.091
白蛋白ALB/(g/L) 24.34 25.98 23.50 0.93 0.198
球蛋白GLB/(g/L) 27.66 30.74 29.16 0.89 0.090
白球比ALB/GLB 0.84 0.90 0.82 0.03 0.218
乳酸脱氢酶LDH/(U/L) 328.22c 402.54a 384.84b 18.74 0.039
甘油三酯TG/(mmol/L) 0.53 0.52 0.63 0.10 0.671
总胆固醇T-CHO/(mmol/L) 3.18 3.11 2.86 0.27 0.696
高密度脂蛋白HDL/(g/L) 1.94 1.71 1.80 0.07 0.062
低密度脂蛋白LDL/(g/L) 0.93 0.96 0.91 0.08 0.910

2.8 CB对羔羊血清免疫指标的影响

表8可知,与CON组相比,LCB组和HCB组羔羊血清中IgA和IgG含量显著提高(P<0.05),且HCB组显著高于LCB组(P<0.05);LCB组和HCB组血清中IL-10含量显著提高(P<0.05),而血清中TNF-α含量显著降低(P<0.05);LCB组血清中IL-6含量显著低于CON组和HCB组(P<0.05);此外,LCB组血清中IL-10和TNF-α含量显著高于HCB组(P<0.05)。
表8 CB对羔羊血清免疫指标的影响

Table 8 Effects of CB on immune indices in serum of lambs

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON LCB HCB
免疫球蛋白A IgA/(g/L) 1.83c 2.09b 2.25a 0.05 <0.001
免疫球蛋白G IgG/(g/L) 19.98c 23.52b 24.08a 0.67 0.002
免疫球蛋白M IgM/(g/L) 0.58 0.63 0.61 0.04 0.505
肿瘤坏死因子-α TNF-α/(pg/mL) 44.79a 37.90b 36.52c 1.68 0.010
白细胞介素-6 IL-6/(pg/mL) 98.92a 89.86b 97.29a 1.93 0.014
白细胞介素-1β IL-1β/(pg/mL) 25.44 24.43 21.60 1.65 0.273
白细胞介素-10 IL-10/(pg/mL) 15.30c 20.65a 18.85b 0.85 0.003

3 讨论

3.1 CB对羔羊生长性能的影响

动物生长性能是机体代谢的综合性指标。张彩云等[14]研究发现,在断奶仔猪的饲粮中添加1%的CB能显著提高其平均日增重,而当CB的添加量提高到3%时,断奶仔猪的料重比显著降低。徐明霞[15]研究表明,饲粮中添加1×10¹²、4×10¹²、6×10¹² CFU/t的CB可极显著提高肉鸡的平均日增重,且添加4×1012和6×1012 CFU/t的CB能极显著降低料重比,说明CB具有提高肉鸡生长性能的作用。何家俊等[16]研究发现,在犊牛的饲粮中添加2×109和4×109 CFU/d的CB分别提高犊牛平均日增重90和120 g。胡志超等[17]研究发现,在肉牛的基础饲粮中添加2×10¹⁰ CFU/d的CB可以有效提高肉牛的平均日增重。有研究表明,CB的代谢产物中含有多种消化酶,可以将大分子营养物质分解成易于吸收的小分子,从而提高这些营养物质的利用效率,最终促进宿主的生长性能[18]。同时,CB还可以分泌维生素、氨基酸等对动物机体有益的物质,从而提高羔羊生长性能[19]。本试验中,代乳粉中添加0.25 g/d的CB提高了羔羊平均日增重,这与前人的研究结果一致。

3.2 CB对羔羊肝脏脂质代谢的影响

TG是机体恒定的能量供给来源,在LPL的作用下,TG被分解为游离脂肪酸,供肌肉细胞氧化或储存于脂肪组织[20]。研究表明,TG的合成增加是脂肪肝发生的重要机制之一[21]。在Shang等[22]的研究中,饲粮中添加2×10⁸ CFU/d的CB显著降低了饲喂高脂饲粮组小鼠的肝脏T-CHO含量,但是对肝脏TG含量没有影响,这与本研究具有相似之处。本试验的研究结果表明,代乳粉中添加CB显著降低了羔羊肝脏中TG含量,这与Shang等[22]的研究并不一致,这可能是CB在小鼠和羔羊中作用机制不同造成的差异,但是T-CHO和TG含量的降低都能代表脂肪的沉积受到了抑制,表明代乳粉中添加CB对减少哺乳期羔羊肝脏中脂肪沉积有积极作用。脂肪沉积包括2个相反的过程:脂肪的合成和脂肪的分解代谢,这是一个动态平衡的过程[23]。肝脏合成的胆固醇是机体胆固醇最主要的来源,而HMGCR是胆固醇合成过程中限制速率的关键酶,它能够将3-羟基-3-甲基戊二酰辅酶A转化为甲羟戊酸,因此抑制肝脏中HMGCR的活性可以减少体内胆固醇的合成,从而调节脂质代谢紊乱[24]。本试验中,代乳粉中添加CB显著提高了哺乳期羔羊肝脏中HMGCR活性,但是各组间肝脏中T-CHO含量没有显著差异,这可能是因为机体胆固醇的水平是受多条代谢途径共同调节的结果。LPL能够水解乳糜微粒和极低密度脂蛋白中的TG,为重要组织提供营养,是脂质代谢的限速酶之一[25]。本试验的研究结果表明,代乳粉中添加CB显著降低了羔羊肝脏中LPL活性,但是肝脏中TG含量没有升高,这可能是因为肝脏中TG受多种代谢途径共同调节导致的。
肝脏是脂质分解和合成的重要器官,是脂质代谢的重要场所。Zou等[26]研究发现,β-羟基丁酸可以通过AMPK通路调控绵羊肝细胞脂质合成和氧化基因的表达。也有研究显示,口服丁酸盐可以通过激活AMPK通路抑制高脂诱导的肥胖,并能预防高脂饮食引起的胰岛素抵抗,从而促进能量消耗并诱导机体的线粒体功能[27-28]。AMPK能够通过感受宿主胞浆内AMP/ATP值的变化,调节宿主的脂质代谢。一方面,AMPK可以降低胆固醇和脂肪酸的合成;另一方面,AMPK可以促进脂肪酸氧化。此外,AMPK还可以对脂质代谢相关基因的表达进行调节,使肥胖患者的脂质代谢恢复正常[28-29]。CB的主要代谢产物是丁酸和丁酸盐,在本研究中,试验组羔羊肝脏AMPK的mRNA相对表达量显著高于对照组,这与前人的研究结果一致。动物体脂沉积所需要的脂肪酸主要靠脂肪酸从头合成来得到,而脂肪酸的合成需要FAS催化乙酰辅酶A、还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)和丙二酸单酰辅酶A来实现[30]。SCD1作为脂肪酸合成路径中催化饱和脂肪酸去饱和化的关键酶,具有催化饱和脂肪酸的脂酰辅酶A脱氢的作用,对脂肪沉积、脂肪酸组成等有重要影响[31]FASSCD1基因的表达受到AMPK通路的下游基因SREBP1c的调控[32]SREBP1c在丝氨酸位点上时会被AMPK磷酸化后失活,从而抑制脂肪生成基因的表达[19,33]。HSL是一种重要的酯化酶,它能够水解TG生成甘油和脂肪酸,同时,在动物组织内的甘油二酯(DG)、胆固醇酯的脂肪动员过程中,HSL也发挥着重要作用,因此,HSL也是影响脂肪沉积的关键酶之一[34]。在本研究中,试验组羔羊肝脏中FAS活性显著降低,这可能是CB通过分泌丁酸和丁酸盐等代谢产物上调了AMPK的表达,从而抑制了FAS活性。CPT1可以说是一种能量感受器,它能够根据组织的能量需求调整脂肪酸氧化,是脂肪酸氧化关键步骤中的限速酶[35]。AMPK-ACC-CPT1通路是调节肝脏脂质代谢的重要通路[36]。AMPK活化会抑制ACC,从而降低丙二酸单酰辅酶A的活性,减弱对CPT1的抑制作用,促进脂肪酸氧化分解,从而减少脂肪的沉积[35]
C/EBPa是参与调控脂肪细胞分化的重要基因。Gao等[37]研究发现,在双向选择的高低脂系的肉鸡试验中,高脂系的腹脂中C/EBPa基因启动子CpG位点的甲基化程度低于低脂系;2周龄时,高脂系的腹脂中C/EBPa的mRNA相对表达量显著高于低脂系,这表明C/EBPa在脂肪组织中被甲基化,可能对鸡的早期脂肪发育有调节作用。综上所述,CB可能通过激活AMPK-HSL、AMPK-SREBP1c-FAS/SCD1和AMPK-ACC-CPT1途径促进脂肪酸的氧化分解,从而降低肝脏脂质的沉积。

3.3 CB对羔羊抗氧化能力的影响

动物机体的抗氧化能力强弱可以反映出动物机体的健康状况。在健康状态下,动物体内的氧化应激和抗氧化状态保持在一种平衡的状态,以维持其正常的生理功能[38]。动物在应激状态下,体内自由基和氧化物过量,就会对机体造成氧化损伤[39]。先前的研究表明,CB可以产生丁酸盐和氢气(H2),这2种物质可以通过提高抗氧化酶的活性和降低活性氧代谢物来发挥抗氧化性能[40-41]。在生物体内,氧化应激是造成细胞损伤和导致疾病发生的重要原因之一,而T-SOD和GSH-Px等抗氧化物酶不仅能够清除超氧自由基和过氧化物,还可以降低羟基自由基的形成,从而发挥着重要的保护作用。此外,T-AOC作为衡量机体抗氧化功能的综合指标,可以反映出机体对氧化应激的整体调节能力;CAT在细胞内过氧化氢分解的过程中起催化作用,可以防止过氧化,是机体防御系统的关键酶之一。与此相反,MDA则是脂质过氧化反应的产物,过度的氧化应激会导致MDA的过度积累,进一步影响生物体的健康状况。因此,MDA也被认为是衡量氧化应激程度的指标之一。
本试验研究发现,CB显著提高了羔羊血清中GSH-Px活性和T-AOC,并显著降低了血清中MDA含量;同时,CB显著提高了肝脏中T-SOD活性,这与前人的研究结果一致。这表明CB能够通过调控羔羊抗氧化物酶的活性改善哺乳期羔羊的抗氧化能力,从而改善哺乳期羔羊的机体健康。

3.4 CB对羔羊血清生化指标的影响

血清生化指标是预测羔羊健康状态的关键指数,是反映动物体一些组织器官机能的重要参数,其中ALT和AST活性可以反映肝脏的损伤情况。当肝细胞受到损伤时,血清中ALT和AST活性就会相应的提高[42-43]。研究表明,在饲粮中添加2×10⁸、4×10⁸和8×10⁸ CFU/kg的CB可以提高肉鸡血清中ALB含量,而ALB可以将更多的蛋白质以血清非蛋白氮(NPN)的形式用于动物生长和发育,提高动物机体的健康水平[44]。王冯玲等[45]研究表明,饲粮中添加100、250和400 mg/kg CB显著降低了家兔血清中AST和ALT活性,并显著提高了血清中ALP活性。邹函峪等[46]研究表明,饲粮中添加CB和凝结芽孢杆菌显著提高了肉鸭血清中TP含量,并显著降低了血清中ALT活性。在本研究中,饲粮中添加CB降低了羔羊血清中ALT和AST活性,与上述结果一致,表明CB可能对肝脏损伤的修复有积极的作用。此外,本试验中添加CB显著提高了血清中ALP活性,这可能与CB的代谢产物丁酸有关。李馨童等[47]研究发现,在牛奶中添加4.4和17.6 g/d的丁酸钠显著提高了犊牛血清中ALP活性,这与本研究的结果一致。ALP和LDH是反映肝脏健康水平的重要指标。ALP和LDH活性的提高增加了肝脏损伤的风险,但肝脏健康受多种调节机制共同影响,因此CB对肝脏损伤的调节机制还有待进一步研究。

3.5 CB对羔羊血清免疫指标的影响

免疫球蛋白包括IgA、IgG和IgM等,是机体抗感染的重要物质,能与相应抗原特异性结合,具有抗菌、抗病毒等多种功能[48]。最近的研究表明,在饲粮中添加1×10⁸、2×10⁸和4×10⁸ CFU/kg 的CB可以激活动物机体的免疫系统,从而维持动物健康[8]。Yang等[44]研究发现,在肉鸡饲粮中添加2×10⁸、4×10⁸和8×10⁸ CFU/kg 的CB能显著提高肉鸡血清中IgA和IgG含量。本试验结果发现,羔羊代乳粉中添加CB能够显著提高其血清中IgA、IgG和IL-10含量,同时显著降低血清中TNF-α和IL-6含量。这表明在代乳粉中添加CB有助于增强动物机体免疫力,维持其健康状态。

4 结论

代乳粉中添加0.25 g/d的CB(活菌数为2×108 CFU/g)能够提高羔羊的平均日增重;同时,CB提高了羔羊的抗氧化能力,增强了其免疫功能。此外,CB可能通过调控肝脏AMPK信号通路进而调节肝脏脂质代谢,减少肝脏脂质沉积。
[1]
JINNO C, SAELAO P, MAGA E A, et al. Enzymatically digested food waste altered fecal microbiota but not meat quality and carcass characteristics of growing-finishing pigs[J]. Animals, 2019, 9(11):970.

[2]
XU H Y, YU L, CHEN J H, et al. Sesamol alleviates obesity-related hepatic steatosis via activating hepatic PKA pathway[J]. Nvutrients, 2020, 12(2):329.

[3]
PANG Q W, SUN Z, SHAO C, et al. CML/RAGE signal bridges a common pathogenesis between atherosclerosis and non-alcoholic fatty liver[J]. Frontiers in Medicine, 2020, 7:583943.

[4]
LOMONACO R, GODINEZ LEIVA E, BRIL F, et al. Advanced liver fibrosis is common in patients with type 2 diabetes followed in the outpatient setting:the need for systematic screening[J]. Diabetes Care, 2021, 44(2):399-406.

[5]
CUI K L, ZHANG L C, LA X Q, et al. Ferulic acid and p-coumaric acid synergistically attenuate non-alcoholic fatty liver disease through HDAC1/PPARG-Mediated free fatty acid uptake[J]. International Journal of Molecular Sciences, 2022, 23(23):15297.

[6]
JIAO P X, WANG Z W, WANG X, et al. Effect of Clostridium butyricum supplementation on in vitro rumen fermentation and microbiota with high grain substrate varying with media pH levels[J]. Frontiers in Microbiology, 2022, 13:912042.

[7]
彭浩, 任莹, 马灵燕, 等. 丁酸梭菌及其胞外囊泡对结肠炎小鼠肠道真菌菌群结构的影响[J]. 动物营养学报, 2023, 35(7):4686-4696.

DOI

PENG H, REN Y, MA L Y, et al. Effects of Clostridium butyricum and its extracellular vesicles on intestinal fungal community structure of mice with colitis[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4686-4696. (in Chinese)

DOI

[8]
CAO M, LI Y, WU Q J, et al. Effects of dietary Clostridium butyricum addition to sows in late gestation and lactation on reproductive performance and intestinal microbiota1[J]. Journal of Animal Science, 2019, 97(8):3426-3439.

[9]
ZHANG X, YUN Y, LAI Z, et al. Supplemental Clostridium butyricum modulates lipid metabolism by reshaping the gut microbiota composition and bile acid profile in IUGR suckling piglets[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):36.

[10]
ZHAO X, GUO Y M, GUO S S, et al. Effects of Clostridium butyricum and Enterococcus faecium on growth performance,lipid metabolism,and cecal microbiota of broiler chickens[J]. Applied Microbiology and Biotechnology, 2013, 97(14):6477-6488.

[11]
CHEN L, LI S, ZHENG J, et al. Effects of dietary Clostridium butyricum supplementation on growth performance,intestinal development,and immune response of weaned piglets challenged with lipopolysaccharide[J]. Journal of Animal Science and Biotechnology, 2018, 9:62.

[12]
AOAC International. Official methods of analysis of AOAC International[M]. 18th ed. Gaithersburg: AOAC International, 2005.

[13]
VAN SOEST P J. ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[14]
张彩云, 刘来亭, 杜灵广, 等. 酪酸芽孢杆菌对断奶仔猪生产性能和血清生化指标的影响[J]. 中国畜牧杂志, 2009, 45(13):43-45.

ZHANG C Y, LIU L T, DU L G, et al. The effect of Bacillus butyricum on the production performance and serum biochemical indicators of weaned piglets[J]. Chinese Journal of Animal Science, 2009, 45(13):43-45. (in Chinese)

[15]
徐明霞. 丁酸梭菌替代抗生素对肉鸡生长性能及血清生化指标的影响[J]. 饲料研究, 2021, 44(2):54-57.

Xu M X. Effect of clostridium butyricum replacing antibiotics on growth performance and serum biochemical indexes of broilers[J]. Feed Research, 2021, 44(2):54-57. (in Chinese)

[16]
何家俊, 吴汉葵, 杨昕涧, 等. 丁酸梭菌对犊牛生长性能和血清生化、抗氧化、免疫指标及粪便微生物数量的影响[J]. 动物营养学报, 2021, 33(9):5076-5085.

DOI

HE J J, WU H K, YANG X J, et al. Effects of clostridium butyricum on growth performanse,serum biochemical,antioxidant,immune indexes and fecal microorganism number of calves[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):5076-5085. (in Chinese)

[17]
胡志超, 周振明, 李民峰, 等. 丁酸梭菌对肉牛营养物质表观消化率、 生长性能、粪便微生物组成和血清生化指标的影响[J]. 饲料研究, 2022, 45(7):13-17.

HU Z C, ZHOU Z M, LI M F, et al. Effect of Clostridium butyricum on apparent digestibility of nutrients,growth performance,fecal microbial composition and serum biochemical indices of beef cattle[J]. Feed Research, 2022, 45(7):13-17. (in Chinese)

[18]
LU J J, YAO J Y, XU Q Q, et al. Clostridium butyricum relieves diarrhea by enhancing digestive function,maintaining intestinal barrier integrity,and relieving intestinal inflammation in weaned piglets[J]. Livestock Science, 2020, 239:104112.

[19]
侯冉, 郭月英, 张敏, 等. 丁酸梭菌对小尾寒羊生长性能、肉品质、血清生化指标、肌肉脂肪酸组成及脂肪代谢相关基因表达的影响[J]. 动物营养学报, 2023, 35(1):391-402.

DOI

HOU R, GUO Y Y, ZHANG M, et al. Effects of Clostridium butyricum on growth performance,meat quality,serum biochemical indexes,muscle fatty acid composition and lipid metabolism related gene expression of small?Tailed Han sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):391-402. (in Chinese)

DOI

[20]
杨榕. 联苯双酯对动物血和肝脏脂质含量的影响[D].硕士学位论文. 北京: 北京中医药大学, 2005.

YANG R. Effects of bifendate on lipid content in blood and liver of animals[D].Master’s Thesis. Beijing: Beijing University of Chinese Medicine, 2005. (in Chinese)

[21]
DEY A, CEDERBAUM A I. Alcohol and oxidative liver injury[J]. Hepatology, 2006, 43(< W>2 Suppl 1):S63-S74.

[22]
SHANG H X, SUN J, CHEN Y Q. Clostridium butyricum CGMCC0313.1 modulates lipid profile,insulin resistance and colon homeostasis in obese mice[J]. PLoS One, 2016, 11(4):e0154373.

[23]
邝良德, 任永军, 谢晓红, 等. 不同品种肉兔FASHSL基因发育性表达特性研究[J]. 黑龙江畜牧兽医, 2016(1):205-208.

KUANG L D, REN Y J, XIE X H, et al. Study on the developmental expression characteristics of FAS and HSL genes in different breeds of meat rabbits[J]. Heilongjiang Animal Science and Veterinary Medicine, 2016(1):205-208. (in Chinese)

[24]
LIU J X, LI Y, SUN C, et al. Geniposide reduces cholesterol accumulation and increases its excretion by regulating the FXR-mediated liver-gut crosstalk of bile acids[J]. Pharmacological Research, 2020, 152:104631.

[25]
BIRRANE G, BEIGNEUX A P, DWYER B, et al. Structure of the lipoprotein lipase-GPIHBP1 complex that mediates plasma triglyceride hydrolysis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(5):1723-1732.

DOI PMID

[26]
ZOU D M, LIU R N, SHI S J, et al. BHBA regulates the expressions of lipid synthesis and oxidation genes in sheep hepatocytes through the AMPK pathway[J]. Research in Veterinary Science, 2021, 140:153-163.

DOI PMID

[27]
GAO Z G, YIN J, ZHANG J, et al. Butyrate improves insulin sensitivity and increases energy expenditure in mice[J]. Diabetes, 2009, 58(7):1509-1517.

DOI PMID

[28]
DEN BESTEN G, BLEEKER A, GERDING A, et al. Short-chain fatty acids protect against high-fat diet-induced obesity via a PPARγ-dependent switch from lipogenesis to fat oxidation[J]. Diabetes, 2015, 64(7):2398-2408.

DOI PMID

[29]
魏冰. 运动和EGCG、肉碱对肥胖大鼠减肥和脂代谢及基因表达的影响[D]. 博士学位论文. 北京: 北京体育大学, 2012.

WEI B. Effects of exercise,EGCG and carnitine on weight loss,lipid metabolism and gene expression in obese rats[D].Ph.D. Thesis. Beijing: Beijing Sport University, 2012. (in Chinese)

[30]
SMITH S, WITKOWSKI A, JOSHI A K. Structural and functional organization of the animal fatty acid synthase[J]. Progress in Lipid Research, 2003, 42(4):289-317.

DOI PMID

[31]
JIANG Z H, MICHAL J J, TOBEY D J, et al. Significant associations of stearoyl-CoA desaturase (SCD1) gene with fat deposition and composition in skeletal muscle[J]. International Journal of Biological Sciences, 2008, 4(6):345-351.

PMID

[32]
FAN J, CHEN J Y, WU H C, et al. Chitosan oligosaccharide inhibits the synthesis of milk fat in bovine mammary epithelial cells through AMPK-mediated downstream signaling pathway[J]. Animals, 2022, 12(13):1692.

[33]
CHEN Y C, CHEN H J, HUANG B M, et al. Polyphenol-rich extracts from toona sinensis bark and fruit ameliorate free fatty acid-induced lipogenesis through AMPK and LC3 pathways[J]. Journal of Clinical Medicine, 2019, 8(10):1664.

[34]
张艳芳. 不同日粮营养水平对荣昌猪肉品质和肌内脂肪代谢的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2007.

ZHANG Y F. Effects of different dietary nutrient levels on pork quality and intramuscular fat metabolism in Rongchang[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2007. (in Chinese)

[35]
LI R R, LI Y Q, YANG X L, et al. Reducing VEGFB accelerates NAFLD and insulin resistance in mice via inhibiting AMPK signaling pathway[J]. Journal of Translational Medicine, 2022, 20(1):341.

DOI PMID

[36]
ZHANG K, SHI Y, HUANG C L, et al. Activation of AMP-activated protein kinase signaling pathway ameliorates steatosis in laying hen hepatocytes[J]. Poultry Science, 2021, 100(3):100805.

[37]
GAO Y, SUN Y N, DUAN K, et al. CpG site DNA methylation of the CCAAT/enhancer-binding protein,alpha promoter in chicken lines divergently selected for fatness[J]. Animal Genetics, 2015, 46(4):410-417.

[38]
KUME H, YAMADA R, SATO Y, et al. Airway smooth muscle regulated by oxidative stress in COPD[J]. Antioxidants, 2023, 12(1):142.

[39]
李可, 罗建杰, 孟昆, 等. 益生菌对肉仔鸡生产性能、胴体性状、免疫功能和肉品质的影响[J]. 动物营养学报, 2015, 27(9):2903-2910.

DOI

LI K, LUO J J, MENG K, et al. Effects of probiotics on performance,carcass traits,immune function and meat quality of broiler chickens[J]. Chinese Journal of Animal Nutrition, 2015, 27(9):2903-2910. (in Chinese)

[40]
贾聪慧, 杨彩梅, 曾新福, 等. 丁酸梭菌对肉鸡生长性能、抗氧化能力、免疫功能和血清生化指标的影响[J]. 动物营养学报, 2016, 28(3):908-915.

JIA C H, YANG C M, ZENG X F, et al. Effects of Clostridium butyricum on growth performance,antioxidant capacity,immune function and serum biochemical parameters of broilers[J]. Chinese Journal of Animal Nutrition, 2016, 28(3):908-915. (in Chinese)

[41]
李文茜. 丁酸梭菌对犊牛及育成牛生长性能、血液指标和瘤胃发酵的影响[D].硕士学位论文. 哈尔滨: 东北农业大学, 2019.

LI W Q. Effects of Clostridium butyricum on growth performance, blood index and rumen fermentation in calves and bred cattle[D].Master’s Thesis.Harbin:Northeast Agricultural University, 2019. (in Chinese)

[42]
LIANG Y, WANG J J, XU C L, et al. Remodeling collagen microenvironment in liver using a biomimetic nano-regulator for reversal of liver fibrosis[J]. Advanced Science, 2023, 10(18):e2300127.

[43]
ZAHRAN R F, GEBA Z M, TABLL A A, et al. Therapeutic potential of a novel combination of curcumin with sulfamethoxazole against carbon tetrachloride-induced acute liver injury in Swiss albino mice[J]. Journal of Genetic Engineering and Biotechnology, 2020, 18(1):13.

[44]
YANG T T, DU M S, ZHANG J, et al. Effects of Clostridium butyricum as an antibiotic alternative on growth performance,intestinal morphology,serum biochemical response,and immunity of broilers[J]. Antibiotics, 2023, 12(3):433.

[45]
王冯玲, 王萍萍, 佘韶峰, 等. 丁酸梭菌替代抗生素对家兔生长性能及血清生化指标的影响[J]. 饲料研究, 2023, 46(4):65-68.

WANG F L, WANG P P, SHE S F, et al. Effect of Clostridium butyricum replacing antibiotics on growth performance and serum biochemical indexes of rabbits[J]. Feed Research, 2023, 46(4):65-68. (in Chinese)

[46]
邹函峪, 王宝维, 张名爱, 等. 凝结芽孢杆菌和丁酸梭菌对肉鸭生长性能、屠宰性能、血清生化指标及肠道健康的影响[J]. 动物营养学报, 2023, 35(5):3025-3040.

DOI

ZOU H Y, WANG B W, ZHANG M A, et al. Effects of Bacillus coagulans and Clostridium butyricum on growth performance,slaughter performance,serum biochemical indexes and intestinal health of meat ducks[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3025-3040. (in Chinese)

[47]
李馨童, 黄甫东, 王星, 等. 牛奶中丁酸钠添加量对犊牛生长性能,血液生化指标和健康状况的影响[J]. 饲料工业, 2023, 44(24):60-67.

LI X T, HUANG F D, WANG X, et al. Effects of different levels of sodium butyrate in milk on growth performance,blood biochemical indexes and health status of calves[J]. Feed Industry, 2023, 44(24):60-67. (in Chinese)

[48]
纪雯雯, 云燕, 张艳芳, 等. 丁酸钠对哺乳期湖羊羔羊生长性能、血浆指标和瘤胃发育的影响[J]. 动物营养学报, 2023, 35(3):1803-1815.

DOI

JI W W, YUN Y, ZHANG Y F, et al. Effects of sodium butyrate on growth performance,plasma indexes,rumen development of Hu lambs during suckling period[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1803-1815. (in Chinese)

Outlines

/