RESEARCH PAPER

Effects of Emulsified Phytosterol on Growth Performance, Intestinal Morphology, Cecal Microbial Communities and Metabolites of Fujian White Rabbits

  • HE Yuqin , 1, 2 ,
  • CHEN Dongjin 3 ,
  • YAO Langqun 4 ,
  • XU Weihua 1 ,
  • CAO Chong 1 ,
  • LIN Biaosheng , 1, 2, *
Expand
  • 1 College of Life Science, Longyan University, Longyan 364012, China
  • 2 Key Laboratory of Fujian Universities Preventive Veterinary Medicine and Biotechnology, Longyan 364012, China
  • 3 Institute of Animal Husbandry and Veterinary Medicine, Fujian Academy of Agricultural Sciences, Fuzhou 350013, China
  • 4 Beijing Ailv Biotechnology Co., Ltd., Beijing 100094, China
* associate professor, E-mail:

Received date: 2023-11-27

  Online published: 2024-05-15

Abstract

This study aimed to investigate the effects of emulsified phytosterol on the growth performance, intestinal morphology, cecal microbial communities and metabolites of Fujian white rabbits. A total of 150 healthy and similarly weighted 40-day-old Fujian white rabbits were selected and randomly divided into 5 groups with 30 rabbits in each group (half male and half female), and the rabbits were fed separately. The control group was fed a basal diet, and test group A added 20 mg/kg of ordinary phytosterol to the basal diet, while test groups B, C and D added 10, 20 and 40 mg/kg of optimized emulsified phytosterol, respectively. The experimental period was 60 days. The growth performance, intestinal morphology, the composition of cecal microbial communities, and the composition and relative contents of cecal metabolites in each group were measured. The results showed as follows: 1) compared with the control group and test group A, the diarrhea rate and mortality of Fujian white rabbits in test groups B, C and D obviously decreased, and various growth performance indicators such as average daily feed intake, average daily gain, and feed to gain ratio improved to a certain extent. The average daily gain and feed to gain ratio of test group C were the best, and the difference between the test group C and the other groups was significant (P<0.05). 2) Compared with the control group, the duodenal villi length in the test group C and the jejunal villi length in the test groups B and C were significantly increased (P<0.05), the duodenal crypt depth in the test groups A, B, C, D and the jejunal crypt depth in the test groups B, C, D were significantly decreased (P<0.05), the duodenal and jejunal villus length/crypt depth (V/C value) in the test groups A, B, C, D and the ileal V/C value in the test groups B, C, D were significantly increased (P<0.05). The jejunal and ileal V/C value in the test group A was significantly lower than that in the test groups B, C, D (P<0.05); the duodenal villi length in the test group C and the duodenal V/C value in the test groups C, D were significantly higher than those in the other groups (P<0.05). 3) There are large differences on the composition of cecal microbial communities between the test groups B, C, D and the control group and the test group A. At the phylum level, Firmicutes and Bacteroidota were the main phyla in test groups B, C, D; Firmicutes/Bacteroidota (F/B) showed a trend of first increasing and then slightly decreasing with the increase of emulsified phytosterol additive dosage. At the genus level, Muribaculaceae, Ruminococcaceae_NK4A214_group, Akkermansia, Clostridia_UCG-014 and Clostridia_vadinBB60_group were the dominant microbial genus of each group. 4) The relative contents of metabolites such as sugars, alcohols, organic acids and amino acids in the cecum of rabbits in each test group with emulsified phytosterol were increased, while the relative contents of some lipids and lipid substances decreased, and the relative contents of hormone like substances increased compared with the control group. Spearman correlation analysis indicated that these metabolites were closely related to the Eubacterium_coprostanoligenes and Ruminococcaceae_V9D2013_group. In summary, adding emulsified phytosterol to the diet of Fujian white rabbits can reduce the diarrhea rate and mortality, increase the average daily feed intake and average daily gain, reduce the feed to weight ratio, improve the intestinal morphology and cecal microbial community composition, and increase the relative contents of metabolites in cecum, especially the short chain fatty acids. When the additive dosage of emulsified phytosterol is 20 mg/kg, the growth performance and intestinal mucosal morphological integrity of Fujian white rabbits are best, that is the suitable additive dosage of emulsified phytosterol in the diet for Fujian white rabbits.

Cite this article

HE Yuqin , CHEN Dongjin , YAO Langqun , XU Weihua , CAO Chong , LIN Biaosheng . Effects of Emulsified Phytosterol on Growth Performance, Intestinal Morphology, Cecal Microbial Communities and Metabolites of Fujian White Rabbits[J]. Chinese Journal of Animal Nutrition, 2024 , 36(5) : 3231 -3246 . DOI: 10.12418/CJAN2024.277

词: 乳化植物甾醇;福建白兔;生长性能;肠道形态;菌群组成;代谢物
福建白兔是原产于福建省山区的小型地方兔品种遗传资源,主产区为武平县,已被列入省级畜禽遗传资源保护名录[1]。据统计,2022年福建白兔存栏达10万余只,年出栏60万只以上,产值2 000多万元[2]。我国自2020年7月在饲料端全面禁抗以来,兔大肠杆菌病、魏氏梭菌病频繁爆发,仔幼兔腹泻死亡率增加以及生长速度缓慢等问题极大地影响着福建白兔产业的健康发展[3]。为了解决以上问题,探索绿色、高效的功能性(替抗)饲料添加剂,对实现家兔的健康生长及兔肉产品的高质量和无药物残留具有十分重要意义。
植物甾醇(phytosterol,PS)是一种结构与胆固醇相似的甾体化合物,主要来源于植物油脂精炼过程中的脱臭馏出物,大多是各种植物甾醇的混合物,种类有谷甾醇、豆甾醇、菜油甾醇及菜籽甾醇等[4-5]。植物甾醇可调节动物生长,促进蛋白质合成;降低血液胆固醇含量,发挥抗氧化作用,改善动物性产品品质;且具有抗炎、抗癌等功能[6-7]。2008年,我国农业部正式批准植物甾醇作为“新型功能性饲料添加剂”在畜禽商品饲料中使用[8]。然而,植物甾醇属于脂溶性物质,熔点高(130~180 ℃)、水溶性差、生物利用率低,实际应用中在动物体内的吸收率很低,严重影响其功能的发挥。而采用乳化剂对植物甾醇进行乳化可以有效降低两相表面张力,提高植物甾醇在动物体内的吸收能力,还能促进机体脂肪代谢以及机体免疫和抗氧化能力提升[9],成为了近年来植物甾醇饲料添加剂应用的研究热点[10]
目前植物甾醇在畜牧业上的应用研究主要集中在生猪[11]和家禽[12-13]方面,植物甾醇及乳化植物甾醇在家兔上的应用研究还未见报道。因此,本试验对植物甾醇进行超声乳化,探讨不同添加量的乳化植物甾醇对福建白兔生长性能、肠道形态及盲肠菌群与代谢物的影响,分析其对福建白兔肠道功能发挥作用的机理,为进一步开发以植物甾醇为核心的新型功能性饲料添加剂及其在家兔生产上的应用及推广提供理论参考。

1 材料与方法

1.1 试验材料

普通植物甾醇中总甾醇质量分数≥95%;乳化植物甾醇中总甾醇质量分数≥40%,其是以普通植物甾醇为原料,以蔗糖酯为乳化剂,经乳化处理制成,工艺参数如下:乳化剂添加量为2.4%,乳化时间为40 min、乳化温度为40 ℃。
试验动物为健康、体重相近的40日龄福建白兔150只(公母各占1/2),35日龄时购自武平县武东镇福建白兔生态养殖场,暂养5 d后开始试验。

1.2 饲养方式

将150只健康、体重相近的福建白兔随机分为5个组,每组30只(公母各占1/2),饲养于仔兔代谢笼,每笼1只。对照组饲喂基础饲粮,试验组A在基础饲粮中添加20 mg/kg的普通植物甾醇,试验组B、C、D在基础饲粮中分别添加10、20和40 mg/kg的乳化植物甾醇,试验期为60 d。采用全价颗粒料饲喂,每天早、晚各饲喂1次,乳头式饮水器自由饮水。饲养管理与免疫程序按常规进行,基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 10.0
大麦Barley 12.0
豆粕Soybean meal 16.0
麸皮Wheat bran 16.0
大豆皮Soybean husk 5.0
花生秧粉Peanut seedling powder 10.0
苜蓿草粉Alfalfa meal 15.0
燕壳粉Swallow shell powder 10.0
石粉Limestone 1.4
磷酸氢钙CaHPO4 0.8
氯化钠NaCl 0.4
L-赖氨酸硫酸盐L-lysine sulfate(99%) 0.1
DL-蛋氨酸DL-methionine(99%) 0.2
L-苏氨酸L-threonine(98.5%) 0.1
预混料Premix1) 3.0
合计Total 100.0
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 9.36
粗蛋白质CP 16.66
粗纤维CF 15.51
粗脂肪EE 1.55
钙Ca 0.88
磷P 0.46
赖氨酸Lys 0.88
蛋氨酸+胱氨酸Met+Cys 0.68
苏氨酸Thr 0.68
中性洗涤纤维NDF 33.99
酸性洗涤纤维ADF 20.55
酸性洗涤木质素ADL 3.87

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:CaHPO4 15 000 mg,NaCl 5 000 mg,VA 8 000 IU,VD3 800 IU,VE 50 mg,VK3 1.5 mg,硫胺素 thiamine 2 mg,VB12 0.02 mg,核黄素 riboflavin 5 mg,泛酸 pantothenic acid 15 mg,烟酸 niacin 50 mg,叶酸 folic acid 0.5 mg,生物素 biotin 0.2 mg,氯化胆碱 choline chloride 600 mg,Fe 80 mg,Zn 80 mg,Cu 20 mg,Mn 50 mg,I 0.5 mg,Se 0.03 mg,Co 1 mg,其余为载体补足 the rest will be supplemented by carriers。

2)消化能为计算值,其余为实测值。DE was a calculated value, while the rest were measured values.

1.3 测定指标及方法

1.3.1 营养成分含量测定

饲粮消化能按照各原料消化能值和配比进行计算,配方中燕麦壳消化能值参考INRA数据库,其他原料消化能值参照《肉兔营养需要量》(NY/T 4049—2021)。饲粮中粗蛋白质含量参照《饲料中粗蛋白的测定 凯氏定氮法》(GB/T 6432—2018)进行测定,粗纤维含量参照《饲料中粗纤维的含量测定》(GB/T 6434—2022)进行测定,粗脂肪含量参照《饲料中粗脂肪的测定》(GB/T 6433—2006),钙含量参照《饲料中钙的测定》(GB/T 6436—2018)进行测定,磷含量参照《饲料中总磷的测定》(GB/T 6437—2018)进行测定,赖氨酸、蛋氨酸、胱氨酸、苏氨酸参照《饲料中氨基酸的测定》(GB/T 18246—2019)进行测定,中性洗涤纤维含量参照《饲料中中性洗涤纤维(NDF)的测定》(GB/T 20806—2022)进行测定,酸性洗涤纤维含量参照《饲料中酸性洗涤纤维的测定》(NY/T 1459—2022)进行测定,酸性洗涤木质素含量参照《饲料中酸性洗涤木质素(ADL)的测定》(GB/T 20805—2006)进行测定。

1.3.2 生长性能测定

试验开始时对试验兔空腹称重,记为初始体重,试验结束时对试验兔禁食12 h后称重,记为终末体重;试验期间每日观察并记录试验兔腹泻和死亡情况,计算腹泻率和死亡率;试验期间统计喂料量,计算平均日增重(ADG)、平均日采食量(ADFI)及料重比(F/G)。

1.3.3 肠道组织形态观察

试验结束时,从各组随机选取健康且体重相近的6只试验兔进行屠宰,迅速采集十二指肠、空肠和回肠的相同部位,各取下一段长度在1 cm的肠管,生理盐水冲洗干净,用4%多聚甲醛固定。固定状态良好后,严格按照病理实验检查支持导向流程(SOP)程序进行修剪、脱水、包埋、切片、染色、封片,最后镜检合格的样片。使用Eclipse Ci-L拍照显微镜选取肠道组织的目的区域进行100倍成像,成像时尽量让组织充满整个视野,保证每张照片的背景光一致。成像完成后使用Image-Pro Plus 6.0分析软件,分别测量每张切片中5根完整的绒毛长度(mm)以及对应的5处隐窝深度(mm),求平均值,计算肠道绒毛长度和隐窝深度比值(V/C值)[14]

1.3.4 盲肠菌群及代谢物分析

1.3.4.1 盲肠菌群组成

每组随机抽取3只试验兔进行屠宰,无菌采集盲肠食糜,共15个样品,迅速放置于液氮中,采用MoBioPowerSoil DNA Isolation Kit(100)试剂盒提取样品细菌总DNA,采用NanoDrop 2000测定所提取样品总DNA的浓度和纯度,采用338F(5'-ACTCC TACGGGAGGCAGCAG-3')和806R(5'-GGACTAC HVGGGTWTCTAAT-3')引物对各组样品进行16S rRNA基因V3~V4可变区的PCR扩增。PCR仪型号ABI GeneAmp® 9700,PCR反应体系(25 μL):模板DNA 30 ng、正向引物(5 μmol/L)1 μL、反向引物(5 μmol/L)1 μL、牛血清白蛋白(BSA,2 ng/μL)3 μL、2×Taq Plus Master Mix 12.5 μL,ddH2O补足至25 μL。PCR扩增程序为:94 ℃ 5 min,30个循环(94 ℃ 30 s,55 ℃ 30 s,72 ℃ 60 s),72 ℃ 7 min,4 ℃保存。PCR产物使用1%琼脂糖凝胶电泳检测扩增目的条带大小,并用Agencourt AMPure XP核酸纯化试剂盒纯化。
纯化后PCR产物用于构建微生物多样性测序文库,在北京奥维森基因科技有限公司使用Illumina PE300高通量测序平台进行双末端(paired-end)测序。下机数据经过滤、拼接,将获得的优质序列使用Vsearch(v2.7.1)软件的uparse算法进行操作分类单元(OTU)聚类,序列相似性阈值为97%。所得的数据经过均一化处理后,使用RDP Classifier算法与Silva128数据库进行比对,设置70%的置信度阈值,得到每个OTU对应的物种分类信息,根据物种分类信息分析各组样品的菌群组成。使用R(v3.6.0)软件的ade4、ggplot2、ggrepel包进行主成分分析(PCA)和作图,使用Phython(v2.7)软件进行LEfSe分析[线性判别分析(LDA)值>4],探讨各组家兔盲肠菌群组成差异[15]

1.3.4.2 盲肠代谢物的提取及液相色谱-质谱联用(LC-MS)的非靶向代谢组学分析

收集各组试验兔盲肠内容物样品各3份,取适量样品加入含内标预冷甲醇∶乙腈∶水(2∶2∶1)溶液及2颗钢珠,组织研磨机60 Hz研磨120 s,超声10 min;-20 ℃静置1 h,13 000 r/min 4 ℃离心15 min;取上层清液冷冻干燥。质谱分析时加入适量乙腈∶水(1∶1)溶液复溶,涡旋振荡器振荡30 s,超声10 min;14 516×g 4 ℃离心15 min;吸取上层清液到进样瓶中,待超高效液相色谱-串联质谱(UPLC-MS/MS)分析。
在Sciex Exion LC液相色谱系统超高效液相控制下进行UPLC-MS/MS分析,色谱柱为Waters公司的ACQUITY UPLC HSS T3(1.8 μm,2.1 mm×100 mm),进样体积为2 μL,流速为0.3 mL/min,柱温为50 ℃。流动相A:0.1%甲酸水;流动相B:0.1%甲酸乙腈。梯度洗脱程序为:0~0.5 min,5% A、95% B;0.5~2.5 min,30% A、70% B;2.5~7.5 min,100% B;7.5~9.0 min,100% B;9.0~9.5 min,95% A,5% B;9.5~12.0 min,95% A、5% B。
从色谱柱流出的样本代谢分析物经高分辨率质谱Triple TOF 5600+进行正、负离子模式各采集1次,具体参数为:离子源气体1 50 psi,离子源气体2 50 psi,幕式气体35 psi,离子源温度500 ℃,离子源电压5 500 V和-4 500 V(正极和负极),去簇电压(DP)±80V(正、负);飞行时间质谱(TOF-MS)扫描质荷比(m/z)范围60~1 200,产物离子扫描m/z范围25~1 200,TOF-MS扫描累积时间0.25s/光谱,产物离子扫描累积时间0.03s/光谱;二级质谱采用信息相关获取获得,并且采用High Sensitivity模式,毛细管电泳(CE)范围(30±15) V。
将上述获得的原始下机的数据采用ProteoWizard软件进行转化,生成mzML格式数据,再采用内核为XCMS的自主编写R程序包进行峰识别、提取、对齐和积分等处理,然后使用内部MS2数据库(Allwegene. DB)进行代谢物注释。匹配进行物质注释,算法打分的Cutoff值设为0.7。根据注释的结果对各组样品进行PCA、正交偏最小二乘法判别分析(OPLS-DA)和差异代谢物富集分析,探讨各组试验兔盲肠代谢物组成的差异[16]

1.3.4.3 盲肠菌群与代谢物的关联分析

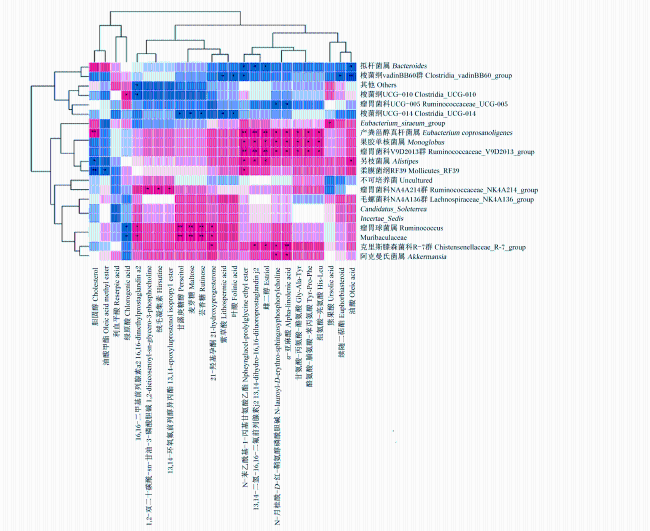
为了解盲肠菌群对主要代谢物的影响,选取25种代谢物和相对丰度排名前20的细菌进行Spearman相关性层次聚类分析,相关系数(r)以颜色来表示,r>0表示正相关,以红色来表示,r<0表示负相关,以蓝色来表示,颜色越深表示相关性越强[17]

1.4 数据统计与分析

对生长性能和肠道形态指标数据采用SPSS 25.0进行方差分析和Duncan氏法多重比较,结果用平均值±标准差表示,以P<0.05表示差异显著。

2 结果与分析

2.1 不同添加剂量的乳化植物甾醇对福建白兔生长性能的影响

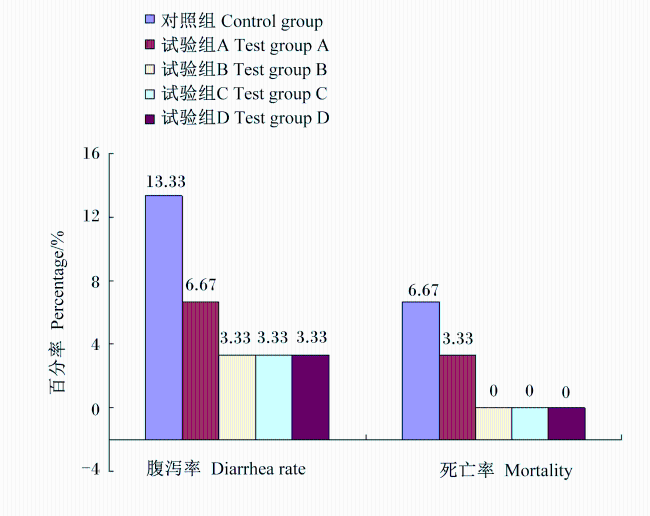
图1表2所示,与对照组相比,添加普通植物甾醇的试验组A与添加不同剂量乳化植物甾醇的试验组B~D福建白兔的腹泻率、死亡率均明显下降,平均日采食量、平均日增重、料重比等各项生长性能指标均有一定程度的改善,其中试验组C(添加20 mg/kg乳化植物甾醇)平均日增重、料重比与其他各组的差异达显著水平(P<0.05)。总体上,与添加普通植物甾醇相比,添加乳化植物甾醇对福建白兔生长性能的促进作用更为明显。
图1 不同添加剂量的乳化植物甾醇对福建白兔腹泻率和死亡率的影响

Fig.1 Effects of different additive dosages of emulsified phytosterol on diarrhea rate and mortality of Fujian white rabbits

表2 不同添加剂量的乳化植物甾醇对福建白兔生长性能的影响

Table 2 Effects of different additive dosages of emulsified phytosterol on growth performance of Fujian white rabbits

项目
Items
初始体重
IBW/g
终末体重
FBW/g
平均日采食量
ADFI/(g/d)
平均日增重
ADG/(g/d)
料重比
F/G
对照组Control group 476.36±34.85 1 670.00±126.02 106.20±5.27 19.89±1.94a 5.38±0.60a
试验组A Test group A 479.30±34.63 1 710.00±101.98 106.71±4.62 20.51±1.17a 5.21±0.15a
试验组B Test group B 474.31±21.08 1 741.00±148.59 107.73±8.24 21.12±2.52a 5.13±0.32a
试验组C Test group C 465.23±26.94 1 791.00±108.19 109.05±7.66 22.10±1.46b 4.94±0.34b
试验组D Test group D 476.59±21.04 1 776.00±109.00 110.94±3.05 21.66±1.89a 5.15±0.47a

同列数据肩标相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same column, values with the same letter superscripts indicates no significant difference (P>0.05), while with different letter superscripts indicate significant difference (P<0.05). The same as below.

2.2 不同添加剂量的乳化植物甾醇对福建白兔肠道形态的影响

表3所示,与对照组相比,添加普通植物甾醇以及添加不同剂量的乳化植物甾醇均能不同程度地提高福建白兔十二指肠、空场、回肠绒毛长度和降低隐窝深度,提高V/C值,使肠道形态得到改善,其中试验组C的十二指肠绒毛长度与试验组B、C的空肠绒毛长度,试验组A、B、C、D十二指肠的隐窝深度与试验组B、C、D空肠的隐窝深度以及试验组A、B、C、D十二指肠和空肠的V/C值与试验组B、C、D回肠的V/C值与对照组的差异达到显著水平(P<0.05);各试验组间对比,试验组C十二指肠的绒毛长度、试验组C、D十二指肠的V/C值与其他各组显著差异(P<0.05);添加普通植物甾醇的试验组A空肠、回肠的V/C值显著低于添加不同剂量乳化植物甾醇的试验组B、C、D(P<0.05)。
表3 不同添加剂量的乳化植物甾醇对福建白兔肠道形态的影响

Table 3 Effects of different additive dosages of emulsified phytosterol on intestinal morphology of Fujian white rabbits

项目
Items
绒毛长度
Villus length/mm
隐窝深度
Crypt depth/mm
绒毛长度与隐窝深度
比值V/C ratio
十二指肠
Duodenum
空肠
Jejunum
回肠
Ileum
十二指肠
Duodenum
空肠
Jejunum
回肠
Ileum
十二指肠
Duodenum
空肠
Jejunum
回肠
Ileum
对照组
Control group
0.78±0.04a 0.64±0.02a 0.52±0.02 0.25±0.04b 0.19±0.02b 0.12±0.01 3.12±0.26a 3.37±0.36a 4.33±0.35a
试验组A
Test group A
0.82±0.06a 0.77±0.05ab 0.54±0.03 0.14±0.02a 0.15±0.01ab 0.11±0.01 5.86±0.68b 5.13±0.26b 4.91±0.53a
试验组B
Test group B
0.80±0.05a 0.88±0.06b 0.55±0.02 0.14±0.01a 0.13±0.02a 0.09±0.01 5.71±0.45b 6.77±0.45c 6.11±0.23b
试验组C
Test group C
1.12±0.02b 0.82±0.02b 0.58±0.02 0.12±0.02a 0.12±0.01a 0.09±0.01 9.34±0.65c 6.83±0.53c 6.44±0.36b
试验组D
Test group D
0.86±0.04a 0.77±0.04ab 0.63±0.04 0.10±0.01a 0.12±0.01a 0.10±0.01 8.60±0.46c 6.42±0.36c 6.30±0.35b

2.3 不同添加剂量的乳化植物甾醇对福建白兔盲肠菌群的影响

2.3.1 各组样品菌群组成分析

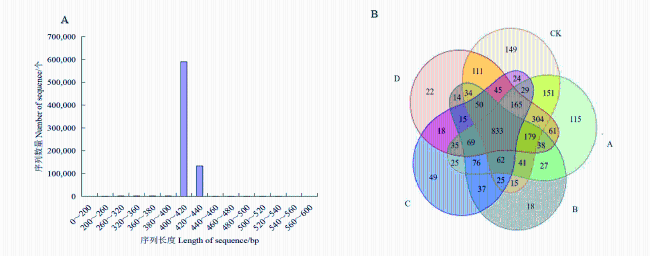
经测序平台高通量测序后,去除低质量序列和模糊序列,每个样品分别获得3万~6万多条Index完全匹配的有效序列量,主要分布在400~440 bp(图2-A)。5组样品的OTU数如图2-B所示,5组样品共有的OTU数为833个,表明各样品中存在着大量的相同菌群,对照组、试验组A特有的OTU数分别为149和115个,明显高于其他3组,表明这2组的菌群组成可能与试验组B、C、D的差异较大。
图2 各组序列长度分布图(A)和OTU分布Venn图(B)

CK:对照组 control group;A:试验组A test group A;B:试验组B test group B;C:试验组C test group C;D:试验组D test group D。下图同 the same as below.

Fig.2 Distribution diagram of sequence length (A) and Venn diagram of OTU distribution (B) for each group

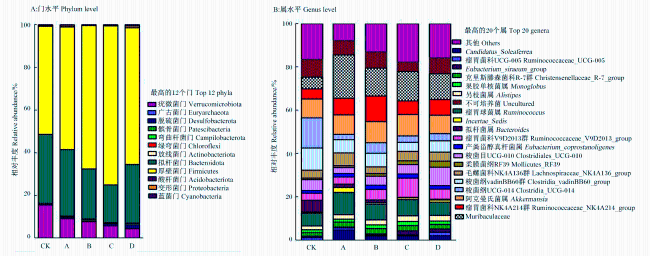
对所获得的各样品的OTU进行物种注释,结果如图3所示。从门水平(图3-A)上看,各组福建白兔盲肠菌群均以厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)和疣微菌门(Verrucomicrobiota)为主,尤以厚壁菌门占比最高,其相对丰度在57%~74%;与对照组相比,各试验组厚壁菌门相对丰度明显增加,拟杆菌门和疣微菌门相对丰度降低;经统计分析,厚壁菌门/拟杆菌门(F/B)随着乳化植物甾醇添加剂量的增加呈现先增加后略微下降的趋势。从属水平(图3-B)上看,各组福建白兔盲肠菌群中的优势菌属均为Muribaculaceae(相对丰度5%~20%)、瘤胃菌科NK4A214群(Ruminococcaceae_NK4A214_group)(相对丰度4%~12%)、阿克曼氏菌属(Akkermansia)(相对丰度8%~10%)、梭菌纲UCG-014(Clostridia_UCG-014)(相对丰度2%~15%)、梭菌纲vadinBB60群(Clostridia_vadinBB60_group)(相对丰度4%~11%)。与对照组相比,各试验组Muribaculaceae、Ruminococcaceae_NK4A214_group、Akkermansia、瘤胃菌科下新发现的Candidatus_Soleaferrea、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)、另支菌属(Alistipe)、瘤胃球菌属(Ruminococcus)、产粪甾醇真杆菌属(Eubacterium_coprostanoligenes)等有益菌群的相对丰度明显增加,Clostridia_UCG-014、Clostridia_vadinBB60_group、拟杆菌属(Bacteroides)等有害菌群的相对丰度明显降低。总体上,与添加普通植物甾醇的试验组A相比,添加不同剂量乳化植物甾醇的试验组B、C、D组有益菌群的相对丰度更高,且有害菌群的相对丰度更低,但添加不同剂量乳化植物甾醇的各试验组之间菌群组成差异并不明显。
图3 各组样品门、属水平上主要菌群比较

Fig.3 Comparison of main microbial communities of samples in each group at phylum and genus levels

2.3.2 各组样品菌群组成差异分析

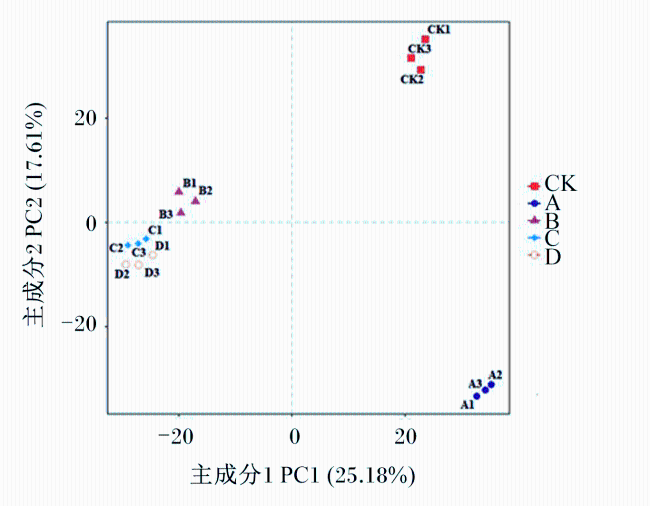
各组样品属水平上菌群组成的PCA结果如图4所示,对照组、普通植物甾醇的试验组A与添加不同剂量乳化植物甾醇的试验组B、C、D菌群组成差异较大,无法聚类在一起;试验组C和D的菌群组成最为接近,能较好地聚类在一起。
图4 各组样品属水平菌群组成的PCA

Fig.4 PCA of microbiota composition of samples in each group at genus level

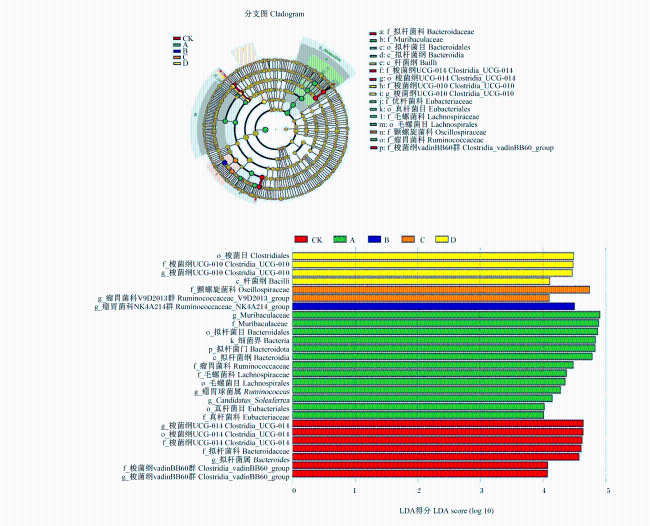
各组样品的LEfSe分析如图5所示,从对照组和添加普通植物甾醇的试验组A中筛选得到的差异菌群种类明显高于添加不同剂量乳化植物甾醇的试验组B、C、D,表明添加不同剂量乳化植物甾醇的3个试验组菌群组成差异较小(图5-A)。LDA分析(图5-B)进一步表明,属水平上对照组中Clostridia_UCG-014、Bacteroides和Clostridia_vadinBB60_group等有害菌群的相对丰度明显高于其他组;试验组A、B、C、D中以有益菌群为主,包括可代谢产生短链脂肪酸、改善肠黏膜炎症的Muribaculaceae[18]、纤维分解中发挥重要作用的纤维素降解细菌Ruminococcus[19],具有抗炎症、减轻高血糖症作用的瘤胃菌科下新发现的Candidatus_Soleaferrea[20],短链脂肪酸产生菌Ruminococcaceae_NK4A214_group[21]、瘤胃菌科V9D2013群(Ruminococcaceae_V9D2013_group)[22]和帮助纤维、淀粉降解的梭菌目UCG-010(Clostridiales_UCG-010)[23]
图5 各组样品的LEfSe分析

Fig.5 LEfSe analysis of samples in each group

2.4 不同添加剂量的乳化植物甾醇对福建白兔盲肠代谢物的影响

2.4.1 各组样品代谢物的聚类分析

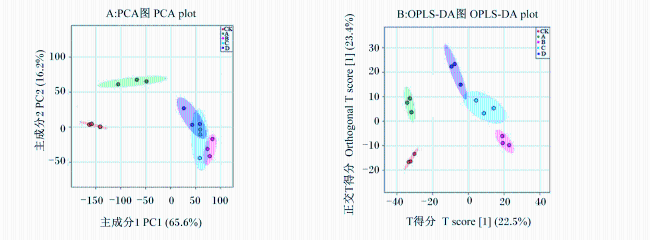
将5组的15个样品通过UPLC-MS/MS平台分析后得到1 720个代谢物。PCA和OPLS-DA(图6)均表明,对照组、添加普通植物甾醇的试验组A以及添加不同剂量乳化植物甾体的试验组(试验组B、C、D)分别聚集在不同区位,其代谢物组成差异较大;添加不同剂量乳化植物甾体的试验组B、C、D能较好的聚集在一起,特别是试验组C、D之间差异最小,说明代谢物组成差异小。
图6 各组样品的PCA和OPLS-DA

Fig.6 PCA and OPLS-DA of samples in each group

2.4.2 各组样品差异代谢物变化趋势分析

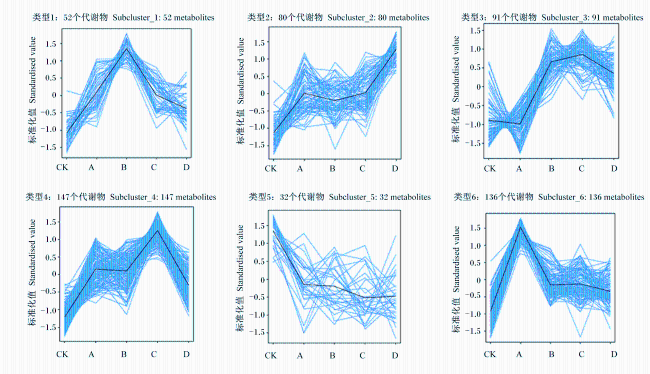
各组样品共获得638个差异代谢物,为了研究各差异代谢物在不同分组中的相对含量变化趋势,将差异代谢物相对含量进行标准化处理和中心化处理,随后进行K均值(K-means)聚类分析,所有差异代谢物的变化趋势分为6类,如图7所示。总体趋势上,与对照组相比,添加植物甾醇后大部分代谢物的相对含量增加,仅第5类代谢物中有32种物质相对含量(占总代谢物的5.02%)降低,主要为胆固醇(cholesterol)、油酸甲酯(oleic acid methyl ester)、N-月桂酰-D-红-鞘氨醇磷酰胆碱(N-lauroyl-D-erythro-sphingosylphosphorylcholine)、1,2-二二十碳酰-sn-甘油-3-磷酸胆碱(1,2-dieicosenoyl-sn-glycero-3-phosphocholine)、N-苯乙酰基-1-丙基甘氨酸乙酯(N-phenylacetyl-1-prolylglycine ethyl ester)等脂类和类脂类物质;而随着乳化植物甾醇添加剂量的增加,第3、4、6类代谢物中共有374种物质相对含量(占总代谢物的58.62%)表现为先增加后下降的趋势。上述结果表明虽然添加乳化植物甾醇有利于增加福建白兔盲肠代谢物相对含量,但过多的乳化植物甾醇反而可能抑制了部分代谢物相对含量的增加。
图7 各组样品差异代谢物的K-means聚类分析

Fig.7 K-means clustering analysis of differential metabolites of samples in each group

2.4.3 各组样品差异代谢物热图聚类分析

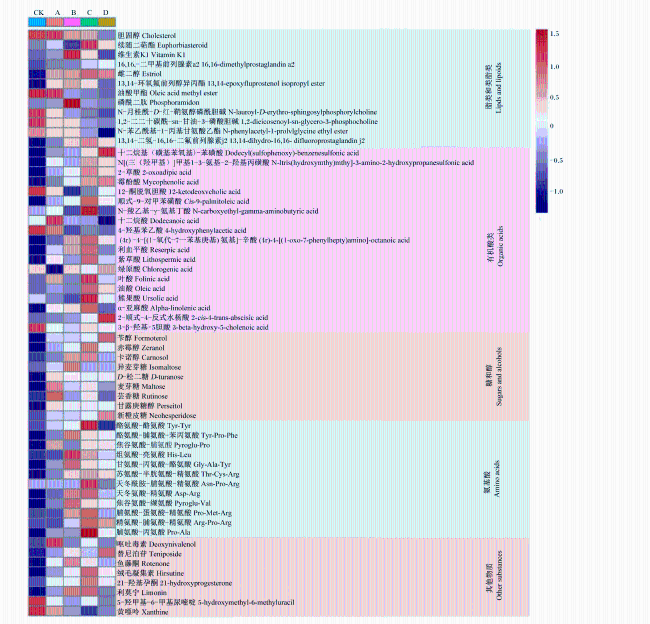
按变量重要投影度(VIP)>1、P<0.05作为筛选标准,将各组排在前60位的差异代谢物进行热图聚类,如图8所示,可将各组差异代谢物分为脂类和类脂类(12个)、有机酸(19个)、糖和醇(9个)、氨基酸(12个)以及其他物质(8个)五大类。总体上,与对照组相比,添加植物甾醇后大部分代谢物的相对含量增加(与K-means聚类分析一致),包括糖和醇、有机酸、氨基酸等物质;部分脂类和类脂类如胆固醇、油酸甲酯、N-月桂酰-D-红-鞘氨醇磷酰胆碱、1,2-二二十碳酰-sn-甘油-3-磷酸胆碱、N-苯乙酰基-1-丙基甘氨酸乙酯相对含量下降,而雌二醇(estriol)、16,16-二甲基前列腺素a2(16,16-dimethylprostaglandin a2)、13,14-二氢-16,16-二氟前列腺素j2(13,14-dihydro-16,16-difluoroprostaglandin j2)、21-羟基孕酮(21-hydroxyprogesterone)等类激素物质相对含量增加。除脂类和类脂类,其他各类代谢物在各乳化植物甾醇组中的相对含量总体上要高于在普通植物甾醇组(试验组A),添加中等剂量乳化植物甾醇的试验组C的相对含量总体上均要高于添加低剂量乳化植物甾醇的试验组B和添加高剂量乳化植物甾醇的试验组D。
图8 各组样品差异代谢物相对含量的热图

Fig.8 Heat map of relative contents of differential metabolites in samples of each group

2.5 不同添加剂量的乳化植物甾醇对福建白兔盲肠菌群组成与代谢物影响的关联分析

选取25种差异代谢物和相对丰度排名前20的菌群进行Spearman相关性层次聚类分析,2组数据之间共获得58个显著相关关系(P<0.05)、16个极显著相关关系(P<0.01),进一步通过热图进行可视化分析,结果如图9所示。Eubacterium_coprostanoligenes、Ruminococcaceae_V9D2013_group、Ruminococcus、Muribaculaceae对差异代谢物的形成影响较大;图中颜色标注显示,部分有害菌群如Bacteroides、Clostridia_vadinBB60_group和Clostridia_UCG-014等对大部分差异代谢物的形成呈负相关(蓝色标注),而大部分菌群对差异代谢物的形成呈正相关(红色标注),其中与胆固醇呈极显著正相关性的为Eubacterium_coprostanoligenes,与N-苯乙酰基-1-丙基甘氨酸乙酯、13,14-二氢-16,16-二氟前列腺素j2、雌二醇等脂类和类脂类、类激素物质呈极显著正相关性的是Eubacterium_coprostanoligenes和Ruminococcaceae_V9D2013_group。
图9 盲肠内主要差异代谢物与相关菌群之间的Spearman相关性分析

Fig.9 Spearman correlation analysis between main differential metabolites and related microbial communities in cecum

3 讨论

近年来,植物甾醇作为新型的饲料添加剂在畜禽饲粮中的应用受到人们的重视。在哺乳动物上,研究已证实植物甾醇具有降低血浆胆固醇含量、抗氧化应激、促进生长、抗癌等作用。有研究表明,植物甾醇可通过与靶细胞受体结合,刺激DNA转录活动,诱导蛋白质合成,从而发挥促进动物生长的作用[24]。但植物甾醇属于油溶性物质,难以与水溶性物质混溶,将其制为饲料添加剂均匀性和稳定性均比较差,作为动物饲料饲喂动物很难被机体吸收,极大地限制了植物甾醇在饲粮中的应用,而将植物甾醇进行乳化可以促进植物甾醇功能的有效发挥,进一步拓宽其应用范围[25]
动物机体对营养物质吸收利用情况可通过动物生长状况及肠道黏膜形态的完整性(小肠的绒毛长度和隐窝深度)进行判断[26]。本研究结果表明,与对照组和添加普通植物甾醇的试验组B相比,添加不同剂量乳化植物甾醇的各试验组福建白兔各项生长性能指标均有一定程度的改善,小肠各段绒毛长度提高、隐窝深度降低,证实饲粮中添加乳化植物甾醇提升了动物机体的免疫力、改善了肠道形态结构,有利于营养物质在机体内的吸收,促进了动物的生长。各添加乳化植物甾醇的试验组之间,试验组C(添加剂量为20 mg/kg)各项生长性能和肠道形态指标均优于其他试验组,总体上其对福建白兔生长性能和肠道形态的促进或改善效果最佳。
家兔属于单胃草食动物,其断奶进行自由采食后易发生非特异性消化道紊乱(non-specific digestive disorders)[27],主要临床表现为腹泻甚至死亡,而肠道菌群失调是造成家兔腹泻的主要原因[28]。因此,改善肠道菌群组成、维持肠道菌群稳定,对调节家兔肠道健康、提高免疫效力、促进有益代谢物的产生均有重要意义。本试验通过对福建白兔盲肠内容物进行16S rRNA基因V3~V4 可变区进行高通量测序,发现各组样品盲肠菌群组成均以厚壁菌门、拟杆菌门为主,随着乳化植物甾醇添加剂量的增加,各试验组厚壁菌门/拟杆菌门呈现先增加后略微下降的趋势。厚壁菌门有利于摄取食物中的能量,拟杆菌门在圈养动物的肠道消化方面发挥着重要作用,厚壁菌门/拟杆菌门是评价畜禽肠道菌群组成的重要指标,厚壁菌门/拟杆菌门提高能促进厚壁菌门获取更高的能量以促进畜禽生产。属水平上,瘤胃球菌科下的许多菌属如Ruminococcus、瘤胃菌科下新发现的Candidatus_Soleaferrea、Ruminococcaceae_NK4A214_group、Ruminococcaceae_V9D2013_group等菌群在各试验组中的相对丰度比对照组明显增加,此类菌群易分解植物细胞壁多糖、胶质,能产生短链脂肪酸,在调节宿主能量代谢使宿主免于炎症反应、促进机体对营养物质的吸收和提高饲料转化率方面具有重要作用[29]。研究还发现,试验组C和D盲肠菌群组成最为接近,能较好地聚类在一起。
各组样品UPLC-MS/MS平台分析结果表明,与对照组相比,添加植物甾醇有利于增加福建白兔盲肠中糖和醇、有机酸、氨基酸等代谢物的相对含量,而部分脂类和类脂类物质的相对含量下降,表明添加植物甾醇确实有利于肠道减少胆固醇吸收,有效地降低胆固醇含量,还有利于促进磷脂、胆碱类物质的代谢分解;此外,本研究还发现添加植物甾醇还有利于增加雌二醇、16,16-二甲基前列腺素、13,14-二氢-16,16-二氟前列腺素j2、21-羟基孕酮等物质的相对含量,证实植物甾醇具有一定的类激素活性,可能在雌激素效应方面对动物机体产生一定的生理影响[30];同时,本研究还发现,添加不同剂量乳化植物甾醇的试验组与对照组、添加普通植物甾醇的试验组福建白兔盲肠代谢物组成差异较大,添加不同剂量乳化植物甾醇的试验组之间代谢物组成差异较小。差异代谢物的热图聚类分析进一步表明,与普通植物甾醇相比,乳化植物甾醇更有利于提高代谢物的相对含量,但过多的乳化植物甾醇反而可能会抑制某些代谢物相对含量的进一步增加。
肠道菌群在调节动物代谢和健康方面起着关键作用,肠道菌群也可以通过调节肠内分泌系统、产生短链脂肪酸等方式在调节脂质吸收、脂质代谢、激素代谢方面发挥重要作用[31]。本试验中,福建白兔盲肠菌群组成与差异代谢物的Spearman相关性分析表明,胆固醇的相对含量和Eubacterium_coprostanoligenes呈极显著正相关性。已有研究表明,Eubacterium_coprostanoligenes的3β-羟基类固醇脱氢酶同系物可将胆固醇转化为粪甾醇,在胆固醇转化过程中起着关键的作用[32]。此外,本研究还发现,Eubacterium_coprostanoligenes和短链脂肪酸产生菌Ruminococcaceae_V9D2013_group均和一些脂类和类脂类、类激素物质呈极显著正相关性,结合前述的盲肠菌群组成变化,表明乳化植物甾醇促进了盲肠中Eubacterium_coprostanoligenes、Ruminococcaceae_V9D2013_group相对丰度的增加,从而有利于短链脂肪酸的产生,进而促进了肠道中胆固醇、脂类和类脂类与类激素物质的代谢。

4 结论

① 在饲粮中添加乳化植物甾醇后福建白兔的腹泻率和死亡率下降,平均日采食量、平均日增重、料重比等各项生长性能指标均有一定程度的改善,绒毛长度、隐窝深度、V/C值等反映肠道黏膜形态完整性的指标也得到了提升,同时还有利于改善福建白兔的盲肠菌群组成,产生短链脂肪酸,促进肠道胆固醇、脂类和类脂类与激素等物质的代谢。
② 当饲粮中乳化植物甾醇添加剂量为20 mg/kg时,对福建白兔生长性能和肠道黏膜形态完整性的改善效果最好。
[1]
林萍萍. 武平县福建白兔遗传资源历史渊源[J]. 福建畜牧兽医, 2017, 39(1):18-19.

LIN P P. The historical origin of Fujian white rabbit genetic resources in Wuping county[J]. Journal of Animal Husbandry and Veterinary Medicine Fujian, 2017, 39(1):18-19. (in Chinese)

[2]
中共武平县委党史和地方志研究室. 武平县年鉴-2022[M]. 北京: 线装书局, 2022:275-276.

Research Office of Party History and Local Chronicles of the Wuping County Committee of the Communist Party of China.Wuping county yearbook-2022[M]. Beijing: Thread-Binding Books Publishing House, 2022:275-276. (in Chinese)

[3]
陈冬金, 王锦祥, 孙世坤, 等. 大蒜素及纳豆菌对福建白兔生产性能、抗氧化活性、肠道形态及菌群的影响[J]. 福建农业学报, 2021, 36(12):1395-1405.

CHEN D J, WANG J X, SUN S K, et al. Effects of allicin and Bacillus natto supplements on production,antioxidant enzymes,intestinal morphology,and cecal microbiota of Fujian white rabbits[J]. Fujian Journal of Agricultural Sciences, 2021, 36(12):1395-1405. (in Chinese)

[4]
陈硕, 王崇川, 朱德强, 等. 植物天然甾体化合物研究进展[J]. 齐鲁工业大学学报, 2023, 37(2):66-73.

CHEN S, WANG C C, ZHU D Q, et al. Research progress of plant natural steroids[J]. Journal of Qilu University of Technology, 2023, 37(2):66-73. (in Chinese)

[5]
王小康, 陈文, 张太军, 等. 植物甾醇(酯)的研究与应用前景[J]. 日用化学工业, 2023, 53(4):445-452.

WANG X K, CHEN W, ZHANG T J, et al. Research and application prospect of phytosterols (esters)[J]. China Surfactant Detergent & Cosmetics, 2023, 53(4):445-452. (in Chinese)

[6]
彭建, 陈刘浦, 贝亦江, 等. 植物甾醇的生理功能及在动物生产中的应用[J]. 饲料研究, 2021, 44(5):152-154.

PENG J, CHEN L P, BEI Y J, et al. Physiological functions and application in animal production of phytosterols[J]. Feed Research, 2021, 44(5):152-154. (in Chinese)

[7]
许栋, 李景军, 林丽秀, 等. 植物甾醇对猪生产性能、免疫指标及不同组织Wnt1基因表达的影响[J]. 饲料研究, 2021, 44(17):14-17.

XU D, LI J J, LIN L X, et al. Effects of plant sterols on pig production performance,immune indicators,and expression of Wnt1 gene in different tissues[J]. Feed Research, 2021, 44(17):14-17. (in Chinese)

[8]
吕鑫. 植物甾醇的生物学功能及其在畜禽养殖中的应用研究[J]. 广东饲料, 2014, 23(6):30-33.

LYU X. The biological function of plant sterols and their application in livestock and poultry breeding[J]. Guangdong Feed, 2014, 23(6):30-33. (in Chinese)

[9]
刘颖沙, 李国秀, 时静, 等. 乳化植物甾醇(酯)研究进展[J]. 农产品加工, 2018(1):39-42.

LIU Y S, LI G X, SHI J, et al. Research on the progress of phytosterol emulsification[J]. Farm Products Processing, 2018(1):39-42. (in Chinese)

[10]
程业飞, 胡琴, 王春梅, 等. 普通和乳化植物甾醇对育肥猪生长性能、血清生化指标和养分消化率的影响[J]. 中国粮油学报, 2017, 32(4):98-102.

CHENG Y F, HU Q, WANG C M, et al. Effects of common and emulsified phytosterols on growth performance,serum biochemical indexes and nutrient digestibility in finishing pigs[J]. Journal of the Chinese Cereals and Oils Association, 2017, 32(4):98-102. (in Chinese)

[11]
赵云博, 胡永员, 郭建琦, 等. 植物甾醇配方添加剂对仔猪生长性能及免疫功能的影响[J]. 饲料研究, 2022, 45(6):34-37.

ZHAO Y B, HU Y Y, GUO J Q, et al. Effect of phytosterols formula additives on growth performance and immune function of piglets[J]. Feed Research, 2022, 45(6):34-37. (in Chinese)

[12]
LIU X, ZHAO H L, THIESSEN S, et al. Effect of plant sterol-enriched diets on plasma and egg yolk cholesterol concentrations and cholesterol metabolism in laying hens[J]. Poultry Science, 2010, 89(2):270-275.

DOI PMID

[13]
祝惠, 陈柏东, 陈晓林, 等. 植物甾醇对黄羽肉鸡生长性能、血清生化指标和抗氧化能力的影响[J]. 家畜生态学报, 2022, 43(9):32-37.

ZHU H, CHEN B D, CHEN X L, et al. Effects of phytosterols supplementation on growth performance,serum biochemical indices and antioxidant capacity of yellow-feather broilers[J]. Acta Ecologae Animalis Domastici, 2022, 43(9):32-37. (in Chinese)

[14]
HU X B, LIN B S, LUO M C, et al. The isolation,identification,physiological property of pig-isolate Clostridium butyricum LY33 using lactic acid and its effects on intestinal function of weaned piglets[J]. Italian Journal of Animal Science, 2019, 18(1):910-921.

[15]
林标声, 何玉琴, 谢璐娜, 等. 菌酶协同发酵饲料对肉鸡肌肉风味物质含量、肠道转录组及菌群组成的影响[J]. 动物营养学报, 2022, 34(11):7049-7062.

DOI

LIN B S, HE Y Q, XIE L N, et al. Effects of fermented feed by bacteria coupled fermentation with enzymes on meat flavor contents,intestinal transcriptome and flora composition of broilers[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):7049-7062. (in Chinese)

[16]
林标声, 陈冠羲, 张清霁, 等. Neurospora crassa LY03菌株在客家“红菌豆渣”营养物质转化中转录组及转化产物分析[J]. 食品科学, 2023, 44(14):197-205.

LIN B S, CHEN G X, ZHANG Q J, et al. Transcriptomic analysis and products of nutrient transformation in Hongjundouzha,a traditional hakka fermented okara food fermented by Neurospora crass a LY03,during fermentation[J]. Food Science, 2023, 44(14):197-205. (in Chinese)

[17]
唐瑞霞, 苏晗, 邢倩. 类风湿关节炎患者肠道菌群变化及其骨代谢的相关性研究[J]. 风湿病与关节炎, 2022, 11(12):6-11,34.

TANG R X, SU H, XING Q. Study on the relationship between intestinal flora and bone metabolism in patients with rheumatoid arthritis[J]. Rheumatism and Arthritis, 2022, 11(12):6-11,34. (in Chinese)

[18]
聂远洋, 贾亚娟, 卢森, 等. 乳酸菌发酵香菇对肠道菌群的调节作用及其产品研制[J]. 食品与生物技术学报, 2022, 41(12):75-84.

NIE Y Y, JIA Y J, LU S, et al. Regulation of Lentinus edodes fermented by lactic acid bacteria on gut microbiota and product development[J]. Journal of Food Science and Biotechnology, 2022, 41(12):75-84. (in Chinese)

[19]
田威龙, 刘笑笑, 程锋, 等. 巴马香猪不同生长阶段的肠道菌群特征分析[J]. 中国畜牧杂志, 2021, 57(增刊1):187-194.

TIAN W L, LIU X X, CHENG F, et al. Analysis of gut microbiota characteristics in different growth stages of Bama Xiang pigs[J]. Chinese Journal of Animal Science, 2021,57 (Suppl.1):187-194. (in Chinese)

[20]
QIANG T, WANG J Y, JIANG L, et al. Modulation of hyperglycemia by sodium alginate is associated with changes of serum metabolite and gut microbiota in mice[J]. Carbohydrate Polymers, 2022, 291:119359.

[21]
高仁, 田时祎, 汪晶, 等. 低聚半乳糖对脂多糖刺激哺乳仔猪盲肠微生物区系、肠道炎症和屏障功能的影响[J]. 动物营养学报, 2022, 34(1):177-189.

DOI

GAO R, TIAN S Y, WANG J, et al. Effects of galacto-oligosaccharides on cecal microflora,intestinal inflammation and barrier function of suckling piglets stimulated by lipopolysaccharides[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):177-189. (in Chinese)

[22]
董艳如. 牛乳蛋白过敏儿童肠道菌群结构及短链脂肪酸分析[D].硕士学位论文. 哈尔滨: 东北农业大学, 2018:30-33.

DONG Y R. Characterization of fecal microbiota,short-chain fatty acids concentrations in children with cow milk protein allergy[D].Master’s Thesis.Harbin:Northeast Agricultural University, 2018:30-33. (in Chinese)

[23]
陈昊, 马旭林, 刘永军, 等. 添加维生素E、有机锌和有机硒对围产前期奶牛瘤胃微生物的影响[J]. 中国饲料, 2022(14):35-40.

CHEN H, MA X L, LIU Y J, et al. Effects of supplementing vitamin E,organic zinc and organic selenium on the ruminal microbiota of prenatal dairy cows[J]. China Feed, 2022(14):35-40. (in Chinese)

[24]
谢颖, 金志红, 朱靖, 等. 植物甾醇对奶牛生产性能、血液胆固醇和抗氧化能力的影响[J]. 中国奶牛, 2020(2):12-18.

XIE Y, JIN Z H, ZHU J, et al. Effects of phytosterols on production performance,blood chole-sterol and antioxidant capacity of dairy cows[J]. China Dairy Cattle, 2020(2):12-18. (in Chinese)

[25]
PAVANI M, SINGHA P, DASH D R, et al. Novel encapsulation approaches for phytosterols and their importance in food products:a review[J]. Journal of Food Process Engineering, 2022, 45(8):e14041.

[26]
YANG W Y, HUANG L B, WANG P W, et al. The effect of low and high dose deoxynivalenol on intestinal morphology,distribution,and expression of inflammatory cytokines of weaning rabbits[J]. Toxins, 2019, 11(8):473.

[27]
DE BLAS J C. Nutritional impact on health and performance in intensively reared rabbits[J]. Animal, 2013,7 (Suppl.1):102-111.

[28]
陈端端, 刘伟, 孟德志, 等. 新西兰兔产气荚膜梭菌性腹泻引起的脏器损伤和肠道菌群分析[J]. 中国兽医学报, 2019, 39(12):2336-2341,2349.

CHEN D D, LIU W, MENG D Z, et al. Analysis of organ damage and intestinal flora caused by Clostridium perfringens diarrhea in New Zealand rabbits[J]. Chinese Journal of Veterinary Science, 2019, 39(12):2336-2341,2349. (in Chinese)

[29]
陈冬金, 孙世坤, 王锦祥, 等. 限饲对福建白兔生长性能、屠宰性能、肉品质、血清免疫和脂类指标、肠道形态及盲肠菌群的影响[J]. 动物营养学报, 2022, 34(9):6043-6055.

DOI

CHEN D J, SUN S K, WANG J X, et al. Effects of feed restriction on growth performance,slaughter performance,meat quality,serum immune and lipid indexes,intestinal morphology and cecal microflora of Fujian white rabbits[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):6043-6055. (in Chinese)

[30]
HE S, LI H, YU Z H, et al. The gut microbiome and sex hormone-related diseases[J]. Frontiers in Microbiology, 2021, 12:711137.

[31]
YU Y J, RAKA F, ADELI K. The role of the gut microbiota in lipid and lipoprotein metabolism[J]. Journal of Clinical Medicine, 2019, 8(12):2227.

[32]
KENNY D J, PLICHTA D R, SHUNGIN D, et al. Cholesterol metabolism by uncultured human gut bacteria influences host cholesterol level[J]. Cell Host & Microbe, 2020, 28(2):245-257.

Outlines

/