REVIEW

Research Progress on Degradation Mechanism of Lactose in Raw Milk and Effects of Its Degradation Products on Raw Milk Quality

  • QI Yingjie ,
  • ZHENG Nan ,
  • WANG Jiaqi ,
  • ZHANG Yangdong , *
Expand
  • State Key Laboratory of Animal Nutrition and Feedings, Milk and Milk Products Inspection Center of Ministry of Agriculture and Rural Affairs (Beijing), Laboratory of Quality and Safety Risk Assessment for Dairy Products of Ministry of Agriculture and Rural Affairs, Key Laboratory of Quality & Safety Control for Milk and Dairy Products of Ministry of Agriculture and Rural Affairs, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
*professor, E-mail:

Received date: 2023-11-10

  Online published: 2024-06-07

Abstract

Lactose plays a key role in giving dairy products their unique characteristics and flavor, while also plays an important role in keeping dairy products fresh and maintaining the health of consumers. The relationship between lactose and lactic acid shapes the unique flavor of dairy products, and understanding this relationship is essential for the dairy industry and quality control. This paper focused on the degradation mechanism of lactose in raw milk and the effects of its degradation products on milk quality, systematically analyzed the metabolic pathway of lactose, and further studied the key enzymes that affected the generation of lactose degradation products, including β-galactosidase, phospho-β-galactosidase, enzymes of Embden-Meyerhof-Parnas (EMP) pathway and lactate dehydrogenase. The mechanism of lactose degradation products (such as lactic acid, antimicrobial peptides, bifidobacterin and hydrogen peroxide) on milk quality was also discussed.

Cite this article

QI Yingjie , ZHENG Nan , WANG Jiaqi , ZHANG Yangdong . Research Progress on Degradation Mechanism of Lactose in Raw Milk and Effects of Its Degradation Products on Raw Milk Quality[J]. Chinese Journal of Animal Nutrition, 2024 , 36(6) : 3491 -3499 . DOI: 10.12418/CJAN2024.299

乳糖由葡萄糖和半乳糖这2种简单的糖分子通过特殊的β-1,4-糖苷键连接而成,具有独特的非还原性糖结构[1-2],且仅存在于乳及乳制品中,不存在其他任何植物或植物产品中。乳糖在不同个体之间存在显著差异[3],它是乳制品中的主要碳水化合物[4-5],不仅高度关联于乳的质量,还能影响乳脂和乳蛋白的质量[6-7]。乳糖的非还原性糖结构在乳制品生产过程中具有关键作用,因为其能够防止与蛋白质和脂肪等其他成分发生非酶性褐变反应,从而维持乳及乳制品的品质[8]
此外,乳糖是牛奶中最容易被微生物利用的碳水化合物之一,能够被乳酸菌等微生物快速降解成乳酸等有机酸,从而赋予乳制品酸味和独特的风味[9-10]。乳酸的生成还导致乳制品的酸度升高,影响产品的质地和口感,同时有益于延长产品的保质期[11]。乳糖与乳酸之间的关系赋予了众多乳制品独特性质,例如酸奶和奶酪,通过控制乳糖降解,它们实现了不同的风味和质地[12]。这一关系还延伸到乳制品的保鲜,因为乳酸的生成有助于维持产品的酸度,抑制有害微生物的生长,延长产品的保质期。
乳糖在赋予乳制品其独特特性和风味方面发挥着关键作用,同时在乳品的保鲜和维护消费者健康方面扮演着重要角色。乳糖与乳酸之间的关系塑造了乳制品风味的独特性,了解这种关系对于乳制品工业和品质控制至关重要。

1 乳糖在生乳中的代谢途径

乳糖的代谢是微生物世界中一项复杂而精密的过程,涉及多个酶系统的协同作用[13]。这一代谢过程的最终结果是将乳糖这一复杂的碳水化合物分解成更简单且更有用的代谢产物。

1.1 乳糖/半乳糖透过酶系统

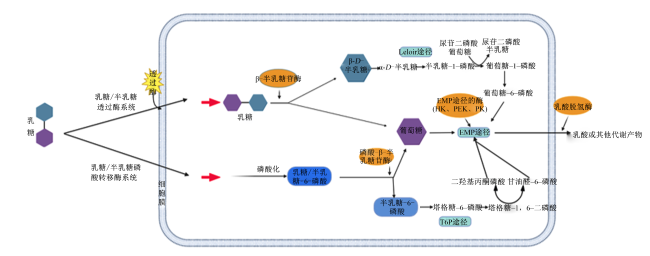
乳糖代谢的第1种方式涉及通过乳糖/半乳糖透过酶将乳糖运输到细胞内,这是一些乳酸菌,如嗜热链球菌和保加利亚乳杆菌常用的代谢路径[14]。在细胞内,乳糖会被β-半乳糖苷酶降解为2种单糖,即葡萄糖和β-D-半乳糖[15]。这2种单糖会进入不同的代谢途径,其中葡萄糖进入糖酵解(Embden-Meyerhof-Parnas,EMP)途径进行代谢,而β-D-半乳糖则进入Leloir途径进行代谢[16]
Leloir途径是乳糖代谢的关键步骤之一[17-18],它允许乳酸菌将β-D-半乳糖转化为其他有机酸和代谢产物[19]。通过一系列反应,β-D-半乳糖首先被底物特异性的酶水解为半乳糖-1-磷酸。然后,半乳糖-1-磷酸经过进一步的反应,最终转化为乳酸等代谢产物[20]。这一过程不仅产生了有机酸,还释放了能量,使乳酸菌能够生存和繁殖。

1.2 乳糖/半乳糖磷酸转移酶系统

除了乳糖透过酶介导的代谢途径外,另一种乳糖代谢方式为乳糖/半乳糖-特异性磷酸转移酶系统[21-23]。该系统的作用是将乳糖或半乳糖磷酸化,同时将其运送至细胞内。当乳糖进入细胞后,已被磷酸化为乳糖-6-磷酸,磷酸-β-半乳糖苷酶会催化其水解为2种更容易代谢的单糖,即葡萄糖和半乳糖-6-磷酸,然后分别进入EMP途径和塔格糖-6-磷酸(tagatose-6-phosphate,T6P)途径进一步反应,满足细胞所需的能量和有机酸。
T6P途径存在于部分乳酸菌中,位于细胞质内,负责将半乳糖-6-磷酸转化为葡萄糖-3-磷酸,从而进入EMP过程,是细胞内生化反应的重要组成部分[24]。细胞内半乳糖-6-磷酸除了由乳糖-6-磷酸水解产生得到外,也可以由半乳糖-特异性磷酸转移酶系统介导摄入。进入T6P途径后,半乳糖-6-磷酸在半乳糖-6-磷酸异构酶的作用下,发生异构化反应,形成T6P[25-26],又在T6P激酶的催化下再次被磷酸化,生成塔格糖-1,6-二磷酸[26]。随后,塔格糖-1,6-二磷酸醛缩酶将塔格糖-1,6-二磷酸分解为2个三碳分子,分别为二羟基丙酮磷酸和甘油醛-3-磷酸,最终进入EMP途径[26-27]
这些不同的代谢途径使得一些乳酸菌能够以多样的方式代谢乳糖和半乳糖,但这些代谢途径的存在和表达也不仅仅表现在乳酸菌中。近年的研究发现,某些酵母菌也具有代谢乳糖的潜力。其中,克鲁维酵母属(Kluyveromyces)中的乳酸克鲁维酵母(Kluyveromyces lactis)和脆壁克鲁维酵母(Kluyveromyces fragilis)是常见的乳糖代谢能力较强的酵母菌[28-29]。这些酵母菌使用主动运输方式将乳糖引入细胞膜,并利用乳糖酶催化其水解。研究表明,乳糖可以诱导某些酵母菌产生乳糖酶[30-31],这种诱导效应随着乳糖浓度的增加而增强,这表明乳糖在酵母菌的代谢中既起到碳源的作用,又作为酶的诱导物[32]。Varela等[29]研究指出,相对于酿酒酵母,在有氧和无氧条件下,乳酸克鲁维酵母能更高效地分解乳糖,尤其是在无氧条件下。Domingues等[33]研究证实,乳酸克鲁维酵母能够完全代谢乳糖,而酿酒酵母则无法代谢乳糖。这样的代谢途径不仅有助于乳糖在不同环境中的降解和供能,还能为乳制品生产提供了更多的选择和可能性。图1描述了乳糖在乳酸菌中代谢的主要过程以及涉及的关键酶类物质。
图1 乳糖在乳酸菌中的代谢途径

HK:己糖激酶 hexokinase;PFK:磷酸果糖激酶 phosphofructokinase;PK:丙酮酸激酶 pyruvate kinase;EMP:糖酵解 Embden-Meyerhof-Parnas;T6P:塔格糖-6-磷酸 tagatose-6-phosphate。

乳糖的结构是由2个单糖通过β-1,4-糖苷键连接而成,乳糖通过2种代谢方式进入胞内进行代谢。图中蓝灰色六边形为半乳糖分子,紫色六边形为葡萄糖分子,因为2个单糖均属于六碳糖。4种重要的酶类使用橘黄色进行标注。

Fig.1 Lactose metabolic pathways in lactic acid bacteria

The structure of lactose is composed of two monosaccharides connected by the β-1,4-glucoside bond, and lactose enters cell through two metabolic ways. The blue-gray hexagon in figure is galactose molecule, and the purple hexagon is glucose molecule, because both monosaccharides are six-carbon sugars. Four important enzymes are marked in orange.

2 影响乳糖降解的酶类物质

乳糖降解的复杂过程中,涉及众多关键酶类和代谢途径,这些要素直接影响乳糖的分解和产物生成。本部分将深入分析这些与乳糖降解密切相关的重要酶类和代谢途径,包括β-半乳糖苷酶、磷酸-β-半乳糖苷酶、EMP途径的酶以及乳酸脱氢酶(lactate dehydrogenase,LDH)(表1)。透彻理解这些要素的功能和调控机制,有助于全面把握乳糖降解的分子机制和其影响因素。
表1 影响乳糖降解的酶类物质

Table 1 Enzymes affecting lactose degradation

酶类物质
Enzymes
主要作用
Main function
原理
Theory
参考文献
References
β-半乳糖苷酶
β-galactosidase
将乳糖水解为葡萄糖和
β-D-半乳糖
乳糖代谢的起始步骤,为细
胞提供能量和碳源
[28-29]
磷酸-β-半乳糖苷酶
Phospho-β-galactosidase
水解半乳糖-6-磷酸为葡萄糖
和半乳糖-6-磷酸
半乳糖的关键转化,为细胞
提供能量和代谢产物
[30]
EMP途径的酶
Enzymes in EMP pathway
影响糖代谢速率 EMP途径中的关键酶 [31-35]
乳酸脱氢酶
Lactate dehydrogenase
将丙酮酸转化为乳酸 影响牛奶凝固 [36-37]

2.1 β-半乳糖苷酶

β-半乳糖苷酶是乳糖代谢的关键酶之一,它在乳糖降解中发挥着至关重要的作用[34]。它催化了半乳糖的磷酸化反应,将半乳糖转化为半乳糖-6-磷酸。这一反应是乳糖代谢的起始点,也是细胞获取能量和碳源的关键一步。它将半乳糖引入到EMP途径中,从而能够进一步分解为葡萄糖-6-磷酸(glucose-6-phosphate,G6P),G6P可以随后参与糖代谢过程,产生能量和代谢产物,供细胞使用。β-半乳糖苷酶的活性受到细胞内代谢调控的影响,当细胞需要能量或碳源时,其活性会提高,促使乳糖迅速转化为半乳糖-6-磷酸,进一步参与能量产生和代谢过程[35]。这种调控机制确保了细胞能够在需要时高效地利用乳糖,同时也维持了细胞内糖代谢的平衡。
β-半乳糖苷酶的来源微生物包括乳酸菌和酵母菌,其活性和表达水平受到多方面的调控[36]。当存在诱导物乳糖时,乳糖分子会与阻遏蛋白和辅阻遏蛋白相互作用形成复合物,进一步激活操纵基因,刺激结构基因的合成与表达,促使β-半乳糖苷酶的生成。这个调控机制确保了只有在需要降解乳糖时才会合成足够的β-半乳糖苷酶。

2.2 磷酸-β-半乳糖苷酶

磷酸-β-半乳糖苷酶是乳糖代谢中的另一个重要酶,在乳糖-特异性磷酸转移酶系统和半乳糖-特异性磷酸转移酶系统起关键作用[21-23],其主要作用是将乳糖-6-磷酸转化成为2种可进一步代谢的单糖,即葡萄糖和半乳糖-6-磷酸[34,37],这2种单糖分别通过EMP途径和T6P途径进一步分解代谢。
磷酸-β-半乳糖苷酶的活性和表达水平受到细胞内代谢的调控[37],当细胞需要分解乳糖时,乳糖的存在会促使相关基因的表达,包括磷酸-β-半乳糖苷酶的基因。这种诱导表达机制确保了在需要时产生足够的酶来降解乳糖,这个酶介导的半乳糖-6-磷酸水解被认为是整个乳糖代谢过程的限速步骤之一,它决定了半乳糖的进一步代谢和利用方式。
在乳糖代谢中,葡萄糖和半乳糖-6-磷酸可以进一步参与糖代谢,产生能量和代谢产物,供细胞使用。磷酸-β-半乳糖苷酶的活性和调控机制确保了细胞能够高效地利用乳糖,从而满足其能量和代谢需求。

2.3 EMP途径中与乳糖代谢相关的关键酶

EMP途径是细胞内糖代谢的关键途径之一,对乳糖代谢产生直接或间接的影响[38]。在这个途径中,磷酸果糖激酶(phosphofructokinase,PFK)、己糖激酶(hexokinase,HK)和丙酮酸激酶(pyruvate kinase,PK)对乳糖的代谢产生了直接或间接的影响。
PFK在EMP途径中促使果糖-6-磷酸转化为果糖-1,6-二磷酸[39],这个过程被认为是该途径的限速步骤。PFK的活性受到多种因素的调控,当ATP和柠檬酸浓度较高时,PFK的活性会受到抑制;当AMP和果糖-2,6-二磷酸的浓度升高时,PFK的活性会被激活。这种精密的调控机制确保了细胞能够根据能量需求来调整磷果糖的代谢过程。在乳糖代谢中,果糖-1,6-二磷酸是产生丙酮酸和乳酸的关键中间产物。因此,PFK的活性变化将直接影响乳糖代谢的速率,尤其是对于丙酮酸和乳酸的生成。
HK是EMP途径的一个关键酶,它催化葡萄糖生成G6P[40-42]。此酶的活性受到G6P和ADP的抑制。对于乳糖代谢,HK的活性可以影响整个途径的速率,因为它是葡萄糖进入EMP途径的关键步骤。如果HK受到抑制,葡萄糖的代谢速率会减慢,从而影响乳糖的降解。
PK会促使磷酸烯醇式丙酮酸转化为丙酮酸和ATP[43]。该酶会受到丙氨酸和ATP的负性调控,但会被果糖-1,6-二磷酸激活。在乳糖代谢中,丙酮酸是产生乙醇或其他代谢产物的中间产物。因此,PK的活性变化将影响乳糖降解产物的生成。

2.4 LDH

LDH在乳糖代谢中扮演着至关重要的角色,尤其是在同型乳酸发酵过程中[44-45]。在这种发酵中,葡萄糖被消耗并生成乳酸,而LDH是这个过程中的关键酶之一。LDH催化丙酮酸在无氧条件下转化为乳酸,这个反应导致了乳酸的产生,进而促使牛奶凝固。
除了同型乳酸发酵外,个别异型发酵乳酸菌,例如乳酸杆菌,表现出多功能性。除了产生乳酸外,它们还具有还原丙酮酸为乙醛的LDH活性,然后将乙醛进一步还原为乙醇。这种多功能性使乳酸杆菌能够适应不同的代谢条件,并产生不同的代谢产物。
此外,除了乳酸菌,某些酵母菌也具有LDH活性。Mourier等[46]研究表明,一些啤酒酵母也可以制备LDH。LDH在酵母菌中的活性受多种因素影响,包括温度和pH。对这种酶的研究不仅有助于了解酵母菌的代谢能力,还对乳糖代谢的工业应用具有潜在的重要性。

3 乳糖降解产物对生乳品质的影响

生乳制品的品质和口感通常受多个因素的共同影响,其中乳糖及其降解产物在维护产品的新鲜度和特性方面扮演关键角色(表2)。探讨乳酸菌降解乳糖产物对生乳制品的影响,包括乳酸的酸化作用、抗菌肽的生成、双歧杆菌素的作用以及过氧化氢的氧化作用有助于更好地了解乳酸菌降解产物的作用机理,以及影响生乳制品性质和品质的机制。
表2 乳糖不同降解产物对生乳品质的影响

Table 2 Effects of different lactose degradation products on raw milk quality

项目
Items
主要作用
Main function
原理
Theory
参考文献
References
乳酸
Lactic acid
酸化食品环境,降低pH,
维持食品品质
由乳酸菌产生的有机酸在无氧条件下分解底物中的
碳水化合物,使环境变得酸性,不利于多数微生物的生长
[37-40]
抗菌肽
Antimicrobial peptide
抑制微生物生长 乳酸菌通过蛋白质水解生成抗菌肽,抗菌肽
具有亲疏水性,可以改变微生物细胞膜的完整性
[42-46]
双歧杆菌素
Bifidobacterin
防止有害微生物的滋生,
维持乳酸菌的优势地位
具有出色的杀菌活性,通过破坏其他微生物的
细胞膜,抑制有害微生物的生长
[47-48]
过氧化氢
Hydrogen peroxide
延长乳酸发酵食品的保质期,
降低食品变质的风险
由乳酸菌代谢产生,对微生物产生
氧化作用,影响微生物的生长和代谢
[49-51]

3.1 乳酸的酸化作用

乳酸是由乳酸菌(通常是乳杆菌属)通过代谢碳水化合物而产生的有机酸[47]。这个过程通常发生在无氧条件下进行,其中葡萄糖或其他碳水化合物被分解为乳酸。乳酸的产生与食品发酵密切相关[48],如酸奶、酸黄瓜、奶酪等产品都是通过乳酸发酵制成的。此外,乳酸还在面包、蔬菜醃製、腌制食品、葡萄酒和啤酒制作等过程中起着关键作用。
乳酸菌进行代谢时,将底物中的碳水化合物分解为乳酸,并将其释放到周围环境中,导致环境的酸化,从而降低了pH,将其带入酸性范围。乳酸的酸性作用是由其离子形式(乳酸根离子)和非离子形式(乳酸分子)的存在而产生的[49-50],它们可以平衡并使环境酸化。
酸性环境可以导致微生物细胞内的蛋白质失活,因为酸性条件可能改变蛋白质的结构和功能[51]。这会影响微生物的代谢途径和细胞功能,导致微生物DNA的解旋,从而干扰DNA复制和基因表达,减缓微生物的生长速率;酸性环境可能导致微生物细胞壁的损伤,使细胞更容易受到外部环境的压力和损害;酸性环境还可能干扰微生物内外的离子平衡,对细胞膜的完整性产生负面影响。因此,酸性环境可以有效地抑制大多数微生物的生长,尤其是致病微生物。此外,乳酸对牛奶微生物组成也有显著影响,为病原菌创造了不利环境,从而保护产品的完整性和消费者的健康。这也是乳酸发酵食品在无需过多添加防腐剂的情况下可以保持相对长时间的新鲜度和品质的原因。

3.2 抗菌肽的生成

抗菌肽是由乳酸菌通过水解蛋白质生成的,通常在食品发酵过程中产生[52-53]。乳酸菌具有能够水解蛋白质的酶,这些酶能够切割蛋白质分子,生成小分子抗菌肽。这些肽可以来自不同的蛋白质来源,如牛奶中的酪蛋白或其他食品原料中的蛋白质。这种蛋白质通过被乳酸菌水解产生的抗菌肽被称为乳酸菌素[54]。它们的存在不仅增强了乳制品的微生物安全性,还有助于延长其货架寿命,是对化学防腐剂的天然而有益的替代。
抗菌肽通常具有亲疏水性可以与微生物的细胞膜相互作用,使它们能够融入微生物细胞膜中[55],改变膜的完整性,使膜的渗透性增加,最终导致细胞内外物质的外泄,使微生物死亡。
一些抗菌肽不仅可以破坏细胞膜,还可以通过干扰微生物的代谢途径来抑制其生长[56]。这涉及到抑制特定酶的活性,影响微生物的关键代谢过程。由于这些肽通常具有高度选择性,它们可以有针对性地干扰致病微生物的生长,而对益生菌和有益微生物的影响较小。
此外,抗菌肽通常还表现出高度的选择性,这意味着它们对某些微生物具有强烈的抑制作用,而对其他微生物的影响较小[56]。这种选择性是由于抗菌肽与不同微生物细胞膜之间的相互作用、抗菌肽与特定酶的亲和力以及微生物对这些肽的敏感性之间的差异。

3.3 双歧杆菌素的作用

双歧杆菌素是一类由乳酸菌产生的抗菌蛋白质,具有出色的杀菌活性[57]。它们在乳酸发酵食品的制备中起着至关重要的作用,因为它们有助于维持乳酸菌的优势地位,防止有害微生物的滋生。
双歧杆菌素具有与微生物细胞膜上的非共价相互作用机制来达到强烈的抑菌效果[58],即破坏其他微生物的细胞膜。这个机制类似于物理性的破坏,包括静电吸引、氢键、疏水作用等,这些相互作用可以使双歧杆菌素与细胞膜上的特定部分结合,导致细胞膜的结构变化和损伤,从而使细胞内外的物质相互渗透,最终导致微生物的细胞壁崩溃,细胞死亡。

3.4 过氧化氢的氧化作用

过氧化氢是乳酸菌代谢的产物之一,具有氧化性,可以对其他微生物产生氧化作用。过氧化氢的强烈氧化性可以与微生物的细胞膜和DNA等生物分子发生反应。这个氧化反应导致细胞膜的氧化损伤,从而使细胞膜失去完整性[59]。此外,过氧化氢还能氧化微生物的DNA,干扰其遗传信息的复制和传递[60];过氧化氢还可以氧化微生物内部的酶和蛋白质[61],这些酶和蛋白质对于微生物的代谢和生长至关重要。通过氧化这些关键分子,过氧化氢削弱了微生物的代谢能力,使其无法正常生长和繁殖。
乳酸菌通过生产过氧化氢,可以在复杂的微生物群落中获得竞争优势。其他微生物,尤其是致病微生物,通常对过氧化氢非常敏感。因此,乳酸菌可以通过释放过氧化氢来抑制它们的生长,这种竞争性抑制机制有助于乳酸菌在生态系统中占据主导地位。
在食品工业中,过氧化氢在牛奶保鲜中发挥双重作用。它有效地抑制微生物的生长,从而延长了乳制品的保质期[62]。然而,其氧化性质也可能影响牛奶的营养质量,特别是脂肪和蛋白质含量。目前的研究重点是确定最大化保鲜效益同时最小化营养降解的过氧化氢的最佳水平,以确保牛奶保持其基本的有益健康品质。

4 小结与展望

本文阐述了乳糖在生乳中的主要代谢过程,探讨了乳糖的代谢途径和不同酶类在乳糖降解中的关键作用,同时还详细研究了乳糖降解产物对维持生乳品质的作用,包括乳酸的酸化作用、抗菌肽的生成、双歧杆菌素和过氧化氢的氧化作用,共同揭示了乳糖代谢的复杂性,为乳糖的进一步研究提供了有力的基础。未来的研究可继续深化对乳糖代谢分子机制的理解,特别是酵母菌和乳酸菌的互动,为未来的乳制品工业和生物医学研究提供有益的见解。
[1]
MU W M, LI Q X, FAN C, et al. Recent advances on physiological functions and biotechnological production of epilactose[J]. Applied Microbiology and Biotechnology, 2013, 97(5):1821-1827.

DOI PMID

[2]
SADOVNIKOVA A, GARCIA S C, HOVEY R C. A comparative review of the cell biology,biochemistry,and genetics of lactose synthesis[J]. Journal of Mammary Gland Biology and Neoplasia, 2021, 26(2):181-196.

[3]
OFTEDAL O T, JENNESS R. Interspecies variation in milk composition among horses,zebras and asses (Perissodactyla:Equidae)[J]. Journal of Dairy Research, 1988, 55(1):57-66.

[4]
HUPPERTZ T, GAZI I. Lactose in dairy ingredients:effect on processing and storage stability[J]. Journal of Dairy Science, 2016, 99(8):6842-6851.

[5]
SCHAAFSMA G. Lactose and lactose derivatives as bioactive ingredients in human nutrition[J]. International Dairy Journal, 2008, 18(5):458-465.

[6]
MIGLIOR F, SEWALEM A, JAMROZIK J, et al. Genetic analysis of milk urea nitrogen and lactose and their relationships with other production traits in Canadian Holstein cattle[J]. Journal of Dairy Science, 2007, 90(5):2468-2479.

DOI PMID

[7]
SHAHBAZKIA H R, AMINLARI M, TAVASOLI A, et al. Associations among milk production traits and glycosylated haemoglobin in dairy cattle;importance of lactose synthesis potential[J]. Veterinary Research Communications, 2010, 34(1):1-9.

[8]
HEMMLER D, ROULLIER-GALL C, MARSHALL J W, et al. Insights into the chemistry of non-enzymatic browning reactions in different ribose-amino acid model systems[J]. Scientific Reports, 2018, 8(1):16879.

DOI PMID

[9]
STÜLKE J, HILLEN W. Carbon catabolite repression in bacteria[J]. Current Opinion in Microbiology, 1999, 2(2):195-201.

PMID

[10]
TURNER T L, KIM E, HWANG C, et al. Short communication:conversion of lactose and whey into lactic acid by engineered yeast[J]. Journal of Dairy Science, 2017, 100(1):124-128.

[11]
SHARMA H, OZOGUL F, BARTKIENE E, et al. Impact of lactic acid bacteria and their metabolites on the techno-functional properties and health benefits of fermented dairy products[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(21):4819-4841.

[12]
CHEN C, ZHAO S S, HAO G F, et al. Role of lactic acid bacteria on the yogurt flavour:a review[J]. International Journal of Food Properties, 2017, 20(Supp1.):S316-S330.

[13]
SADOVNIKOVA A, GARCIA S C, HOVEY R C. A comparative review of the extrinsic and intrinsic factors regulating lactose synthesis[J]. Journal of Mammary Gland Biology and Neoplasia, 2021, 26(2):197-215.

DOI PMID

[14]
BURGOS-RUBIO C N, OKOS M R, WANKAT P C. Kinetic study of the conversion of different substrates to lactic acid using Lactobacillus bulgaricus[J]. Biotechnology Progress, 2000, 16(3):305-314.

[15]
DE VOS W M, VAUGHAN E E. Genetics of lactose utilization in lactic acid bacteria[J]. FEMS Microbiology Reviews, 1994, 15(2/3):217-237.

[16]
DE VRIES M C, VAUGHAN E E, KLEEREBEZEM M, et al. Lactobacillus plantarum-survival,functional and potential probiotic properties in the human intestinal tract[J]. International Dairy Journal, 2006, 16(9):1018-1028.

[17]
TEGL G, NIDETZKY B. Leloir glycosyltransferases of natural product C-glycosylation:structure,mechanism and specificity[J]. Biochemical Society Transactions, 2020, 48(4):1583-1598.

[18]
HOLDEN H M, RAYMENT I, THODEN J B. Structure and function of enzymes of the Leloir pathway for galactose metabolism[J]. The Journal of Biological Chemistry, 2003, 278(45):43885-43888.

[19]
HOLDEN H M, THODEN J B, TIMSON D J, et al. Galactokinase:structure,function and role in type Ⅱ galactosemia[J]. Cellular and Molecular Life Sciences, 2004, 61(19/20):2471-2484.

[20]
NEVES A R, POOL W A, SOLOPOVA A, et al. Towards enhanced galactose utilization by Lactococcus lactis[J]. Applied and Environmental Microbiology, 2010, 76(21):7048-7060.

[21]
DE VOS W M, BOERRIGTER I, VAN ROOYEN R J, et al. Characterization of the lactose-specific enzymes of the phosphotransferase system in Lactococcus lactis[J]. The Journal of Biological Chemistry, 1990, 265(36):22554-22560.

[22]
MCCOY J G, LEVIN E J, ZHOU M. Structural insight into the PTS sugar transporter EIIC[J]. Biochimica et Biophysica Acta, 2015, 1850(3):577-585.

DOI PMID

[23]
SOSSNA-WUNDER G, HENGSTENBERG W, BRIOZZO P, et al. Photoinactivation of the Staphylococcus aureus lactose-specific EIICB phosphotransferase component with p-azidophenyl-β-D-galactoside and phosphorylation of the covalently bound substrate[J]. Journal of Molecular Microbiology and Biotechnology, 2018, 28(3):147-158.

[24]
WU Q L, SHAH N P. The potential of species-specific tagatose-6-phosphate (T6P) pathway in Lactobacillus casei group for galactose reduction in fermented dairy foods[J]. Food Microbiology, 2017,62:178-187.

[25]
PARK H Y, PARK C S, KIM H J, et al. Substrate specificity of a galactose 6-phosphate isomerase from Lactococcus lactis that produces D-allose from D-psicose[J]. Journal of Biotechnology, 2007, 132(1):88-95.

[26]
ROSEY E L, OSKOUIAN B, STEWART G C. Lactose metabolism by Staphylococcus aureus:characterization of lacABCD,the structural genes of the tagatose 6-phosphate pathway[J]. Journal of Bacteriology, 1991, 173(19):5992-5998.

[27]
VAN ROOIJEN R J, VAN SCHALKWIJK S, DE VOS W M. Molecular cloning,characterization,and nucleotide sequence of the tagatose 6-phosphate pathway gene cluster of the lactose operon of Lactococcus lactis[J]. The Journal of Biological Chemistry, 1991, 266(11):7176-7181.

[28]
LANE M M, BURKE N, KARREMAN R, et al. Physiological and metabolic diversity in the yeast Kluyveromyces marxianus[J]. Antonie Van Leeuwenhoek, 2011, 100(4):507-519.

[29]
VARELA J A, PURICELLI M, ORTIZ-MERINO R A, et al. Origin of lactose fermentation in Kluyveromyces lactis by interspecies transfer of a neo-functionalized gene cluster during domestication[J]. Current Biology, 2019, 29(24):4284-4290.e2.

[30]
NASCIMENTO M F, BARREIROS R, OLIVEIRA A C, et al. cultivation using cheese whey:new yeast extract-free media,β-galactosidase biosynthesis and mannosylerythritol lipids production[J/OL]. Biomass Conversion and Biorefinery, 2022:1-14.(2022-06-02)[2023-09-26]. https://pubmed.ncbi.nlm.nih.gov/35669232/.

[31]
PONNUSAMY V, SANKARANARAYANAN M. Targeted gene manipulation of Leloir pathway genes for the constitutive expression of β-galactosidase and its transgalactosylation product galacto-oligosaccharides from Kluyveromyces lactis GG799 and knockout strains[J]. Enzyme and Microbial Technology, 2023,169:110263.

[32]
LI Y H, YU J Z, ZHANG P, et al. Comparative transcriptome analysis of Trichoderma reesei reveals different gene regulatory networks induced by synthetic mixtures of glucose and β-disaccharide[J]. Bioresources and Bioprocessing, 2021, 8(1):57.

[33]
DOMINGUES L, GUIMARÃES P M R, OLIVEIRA C. Metabolic engineering of Saccharomyces cerevisiae for lactose/whey fermentation[J]. Bioengineered bugs, 2010, 1(3):164-171.

[34]
LU L L, GUO L C, WANG K, et al. β-galactosidases:a great tool for synthesizing galactose-containing carbohydrates[J]. Biotechnology Advances, 2020,39:107465.

[35]
KALATHINATHAN P, SAIN A, PULICHERLA K, et al. A review on the various sources of beta-galactosidase and its lactose hydrolysis property[J]. Current Microbiology, 2023, 80(4):122.

[36]
JUERS D H, MATTHEWS B W, HUBER R E. LacZ beta-galactosidase:structure and function of an enzyme of historical and molecular biological importance[J]. Protein Science, 2012, 21(12):1792-1807.

[37]
MOVAHEDPOUR A, AHMADI N, GHALAMFARSA F, et al. β-galactosidase:from its source and applications to its recombinant form[J]. Biotechnology and Applied Biochemistry, 2022, 69(2):612-628.

[38]
JOJIMA T, INUI M. Engineering the glycolytic pathway:a potential approach for improvement of biocatalyst performance[J]. Bioengineered, 2015, 6(6):328-334.

[39]
FUNATO Y, HAYASHI T, IRINO Y, et al. Nucleoredoxin regulates glucose metabolism via phosphofructokinase 1[J]. Biochemical and Biophysical Research Communications, 2013, 440(4):737-742.

DOI PMID

[40]
HOFMANN E. The significance of phosphofructokinase to the regulation of carbohydrate metabolism[J]. Reviews of Physiology,Biochemistry and Pharmacology, 1976,75:1-68.

[41]
WANG H Z, PENALOZA T, MANEA A J, et al. PFKP:more than phosphofructokinase[J]. Advances in Cancer Research, 2023,160:1-15.

[42]
SUN J C, ZHU F, CHEN H L, et al. Identification and subcellular localisation of hexokinase-2 in Nosema bombycis[J]. Folia Parasitologica, 2020,67:2020.023.

[43]
SCHORMANN N, HAYDEN K L, LEE P, et al. An overview of structure,function,and regulation of pyruvate kinases[J]. Protein Science, 2019, 28(10):1771-1784.

[44]
MARKERT C L. Lactate dehydrogenase.Biochemistry and function of lactate dehydrogenase[J]. Cell Biochemistry and Function, 1984, 2(3):131-134.

[45]
FARHANA A, LAPPIN S L. Biochemistry,lactate dehydrogenase[M/OL]// Anon.StatPearls [Internet]. Treasure Island: StatPearls Publishing,2023:NBK557536.[2023-09-28]. https://pubmed.ncbi.nlm.nih.gov/32491468/.

[46]
MOURIER A, VALLORTIGARA J, YOBOUE E D, et al. Kinetic activation of yeast mitochondrial D-lactate dehydrogenase by carboxylic acids[J]. Biochimica et Biophysica Acta:Bioenergetics, 2008, 1777(10):1283-1288.

[47]
ABEDI E, HASHEMI S M B. Lactic acid production-producing microorganisms and substrates sources-state of art[J]. Heliyon, 2020, 6(10):e04974.

[48]
SAUER M, HAN N S. Lactic acid bacteria:little helpers for many human tasks[J]. Essays in Biochemistry, 2021, 65(2):163-171.

[49]
WANG Y Q, WU J T, LV M X, et al. Metabolism characteristics of lactic acid bacteria and the expanding applications in food industry[J]. Frontiers in Bioengineering and Biotechnology, 2021,9:612285.

[50]
BROOKS G A. Lactate:link between glycolytic and oxidative metabolism[J]. Sports Medicine, 2007, 37(4/5):341-343.

[51]
KOBAYASHI H, SAITO H, KAKEGAWA T. Bacterial strategies to inhabit acidic environments[J]. The Journal of General and Applied Microbiology, 2000, 46(5):235-243.

[52]
FERNANDES A, JOBBY R. Bacteriocins from lactic acid bacteria and their potential clinical applications[J]. Applied Biochemistry and Biotechnology, 2022, 194(10):4377-4399.

DOI PMID

[53]
SIMONS A, ALHANOUT K, DUVAL R E. Bacteriocins,antimicrobial peptides from bacterial origin:overview of their biology and their impact against multidrug-resistant bacteria[J]. Microorganisms, 2020, 8(5):639.

[54]
WANG S, ZHANG Y J, MANDLAA, et al. Properties and mechanism of the antimicrobial peptide APT produced by Lactobacillus ALAC-4[J]. LWT, 2022,165:113713.

[55]
HUAN Y C, KONG Q, MOU H J, et al. Antimicrobial peptides:classification,design,application and research progress in multiple fields[J]. Frontiers in Microbiology, 2020,11:582779.

[56]
LUO Y, SONG Y Z. Mechanism of antimicrobial peptides:antimicrobial,anti-inflammatory and antibiofilm activities[J]. International Journal of Molecular Sciences, 2021, 22(21):11401.

[57]
DARBANDI A, ASADI A, MAHDIZADE ARI M, et al. Bacteriocins:properties and potential use as antimicrobials[J]. Journal of Clinical Laboratory Analysis, 2022, 36(1):e24093.

[58]
HIDALGO-CANTABRANA C, DELGADO S, RUIZ L, et al. Bifidobacteria and their health-promoting effects[J]. Microbiology Spectrum, 2017, 5(3):1-19.

[59]
CADENAS E, DAVIES K J. Mitochondrial free radical generation,oxidative stress,and aging[J]. Free Radical Biology & Medicine, 2000, 29(3/4):222-230.

[60]
HOFF C A, SCHMIDT S S, HACKERT B J, et al. Events associated with DNA replication disruption are not observed in hydrogen peroxide-treated Escherichia coli[J]. G3(Bethesda), 2021, 11(4):jkab044.

[61]
HICKEY M W, HILLIER A J, JAGO G R. Transport and metabolism of lactose,glucose,and galactose in homofermentative lactobacilli[J]. Applied and Environmental Microbiology, 1986, 51(4):825-831.

[62]
ZHANG C C, ZHANG S S, LIU W, et al. Potential application and bactericidal mechanism of lactic acid-hydrogen peroxide consortium[J]. Applied Biochemistry and Biotechnology, 2019, 189(3):822-833.

DOI PMID

Outlines

/