RESEARCH PAPER

Effects of Microecological Preparations and Fermented White Distiller’s Grains on Growth Performance, Serum Biochemical and Immune Indices and Fecal Microflora of Simmental Cattle

  • TONG Haifeng , 1, 2 ,
  • JIANG Yangyang 1, 2 ,
  • WU Guofang 1, 3, 4 ,
  • ZHANG Jianbo 1, 3, 4 ,
  • ZHANG Fei , 5, 6, * ,
  • XIA Jun 5 ,
  • WANG Lei , 1, 2, 3, *
Expand
  • 1 College of Animal Science and Veterinary Science, Qinghai University, Xining 810016, China
  • 2 Qinghai Plateau Grazing Livestock Key Laboratory of Animal Nutrition and Feed Science, Xining 810016, China
  • 3 Key Laboratory of Livestock and Poultry Genetics and Breeding on Qinghai-Tibet Plateau, Ministry of Agriculture and Rural Affairs, Xining 810016, China
  • 4 Qinghai Plateau Key Laboratory of Animal Genetic Resources Conservation and Innovative Utilization, Xining 810016, China
  • 5 Road Environment Technology Co., Ltd., Wuhan 430070, China
  • 6 Road Biological Environmental Protection Technology Co., Ltd., Bozhou 236800, China
*senior livestock specialist, E-mail: ;
associate professor, E-mail:

Received date: 2023-12-14

  Online published: 2024-06-07

Abstract

This experiment was conducted to investigate the effects of dietary microecological preparations and fermented white distiller’s grains on growth performance, serum biochemical and immune indices and fecal microflora of Simmental cattle. Using a single-factor experimental design, twelve healthy Simmental cattle aged about 6 months with body weight of (155±5) kg were randomly divided into 2 groups with 6 cattle in each group. Cattle in the control group were fed a basal diet, and those in experimental group were fed the basal diet supplemented with 2.0% and 2.5% fermented white distiller’s grains and 60 g/t microecological preparations on days 1 to 60 and 61 to 120, respectively. The pre-trial period lasted for 7 days and the experimental period lasted for 120 days. The results showed as follows: 1) compared with the control group, the average daily gain (ADG) of Simmental cattle in experimental groups was extremely significantly increased (P<0.01), and the ratio of feed to gain (F/G) was significantly decreased (P<0.05). 2) Compared with the control group, the contents of immunoglobulin A (IgA), immunoglobulin G (IgG) and immunoglobulin M (IgM) in serum of Simmental cattle in experimental group were significantly increased (P<0.05). 3) Compared with the control group, the Shannon index of fecal microflora of Simmental cattle in experimental group was significantly increased (P<0.05); the results of principal coordinate analysis (PCoA) and analysis of similarity (ANOSIM) showed that there were significant differences in fecal microflora between the control group and the experimental group (R=0.327, P=0.007). At the phylum level, Firmicutes and Bacteroidetes were the dominant bacteria in fecal microflora of Simmental cattle; at the genus level, the dominant genus in fecal microflora was Ruminococcaceae_UCG-005. In conclusion, dietary microecological preparations and fermented white distiller’s grains can improve the growth performance and immune function, increase fecal microflora diversity, and maintain the homeostasis of the digestive tract of Simmental cattle.

Cite this article

TONG Haifeng , JIANG Yangyang , WU Guofang , ZHANG Jianbo , ZHANG Fei , XIA Jun , WANG Lei . Effects of Microecological Preparations and Fermented White Distiller’s Grains on Growth Performance, Serum Biochemical and Immune Indices and Fecal Microflora of Simmental Cattle[J]. Chinese Journal of Animal Nutrition, 2024 , 36(6) : 3725 -3738 . DOI: 10.12418/CJAN2024.320

随着我国畜牧业迅速发展壮大,动物饲料的消耗量也与日俱增,大豆、玉米等主要饲料原料需要依赖进口才能缓解严重短缺的状况,“人畜争粮”、“受制于人”的局面日益严峻。面对以上情况,积极开发利用非常规饲料资源并研究其在畜牧业中的应用具有重要的意义。研究表明,在动物饲粮中添加酒糟具有替代部分精料的作用[1]。研究还表明,酒糟饲料具有提高动物生长性能的作用[2-3]。此外,研究表明,微生态制剂具有促进动物生长、防止腹泻的作用,具有替代抗生素的潜力[4]
白酒糟作为酿造白酒的副产物,蛋白质含量高,具有较高的营养价值,但因其粗纤维含量高、酸度高以及功能单一等限制因素,直接饲喂会导致动物生长缓慢,且容易发生酸中毒、消化不良和便秘等疾病。将白酒糟通过微生物发酵处理,可提高白酒糟中氨基酸种类和蛋白质含量,降低粗纤维含量[5]。周芯宇[6]研究表明,与饲喂湿酒糟的奶公牛相比,饲喂发酵酒糟的奶公牛平均日增重(ADG)显著提高,料重比(F/G)显著降低。微生态制剂作为天然的生物活性制剂,具有促进营养物质消化吸收以及动物生长发育等作用[4]。Signorini等[7]和Frizzo等[8]研究发现,饲喂微生态制剂可提高犊牛的生长性能和饲料转化率,降低犊牛腹泻率。有研究表明,微生态制剂中的枯草芽孢杆菌可以产生纤维素酶、枯草菌素和多黏菌素等多种活性物质,具有提高动物饲料消化率,调节肠道微生态平衡等作用[9-11]。然而,微生态制剂和发酵白酒糟对西门塔尔牛生长发育和肠道菌群等的影响还未见报道。因此,本研究通过探究微生态制剂和发酵白酒糟对西门塔尔牛生长性能、血清生化和免疫指标及粪便菌群的影响,旨在为合理利用微生态制剂和发酵白酒糟提供参考。

1 材料与方法

1.1 试验材料

微生态制剂为市售,其主要成分为枯草芽孢杆菌(有效活菌数≥5.0×10¹⁰ CFU/g)、地衣芽孢杆菌(有效活菌数≥5.0×1010 CFU/g)、屎肠球菌(有效活菌数≥1.0×109 CFU/g)及沸石粉等。采用酿酒酵母固体高密度发酵和酵母自溶水解等微生物技术发酵白酒糟(有效活菌数≥2.0×108 CFU/g),试验所用发酵白酒糟为烘干酒糟(烘干温度68 ℃),发酵白酒糟营养成分见表1,氨基酸组成见表2
表1 发酵白酒糟营养成分

Table 1 Nutrients of fermented white distiller’s grains%

项目 Items 含量 Content
水分 Moisture 10.6
粗蛋白质 Crude protein 25.8
粗纤维 Crude fiber 13.3
粗灰分 Crude ash 9.5
粗脂肪 Crude fat 7.1
总氨基酸 Total amino acids 21.2
甘露聚糖 Mannan 2.8
总能 Gross energy/(MJ/kg) 19.6
表2 发酵白酒糟氨基酸组成

Table 2 Amino acid composition of fermented white distiller’s grains%

氨基酸 Amino acids 含量 Content 氨基酸 Amino acids 含量 Content
天冬氨酸 Asp 1.28 亮氨酸 Leu 2.06
苏氨酸 Thr 0.67 酪氨酸 Tyr 0.64
丝氨酸 Ser 0.83 苯丙氨酸 Phe 1.04
谷氨酸 Glu 5.32 赖氨酸 Lys 0.40
甘氨酸 Gly 0.81 组氨酸 His 0.73
丙氨酸 Ala 1.62 精氨酸 Arg 0.49
缬氨酸 Val 1.04 脯氨酸 Pro 1.71
蛋氨酸 Met 0.26 胱氨酸 Cys 1.43
异亮氨酸 Ile 0.83

1.2 试验时间及地点

本试验于2022年6月25日至2022年10月29日在青海海东市盛沁农牧业发展有限公司进行。预试期7 d,正试期120 d,其中正试期分2个阶段,分别为第1~60天和第61~120天。

1.3 试验设计和饲养管理

本试验采用单因素试验设计,选取12头6月龄左右健康的西门塔尔牛,体重(155±5) kg,随机分为2组,每组6头。对照组饲喂基础饲粮;试验组分别在第1~60天和第61~120天在基础饲粮中添加2.0%和2.5%发酵白酒糟,并添加60 g/t微生态制剂。第1~60天饲粮精粗比为4∶6,第61~120天饲粮精粗比为5∶5。试验牛每天饲喂2次(07:00和16:00各1次),圈舍饲喂,自由采食与饮水,定期打扫卫生,保持圈舍通风。

1.4 试验饲粮组成

试验饲粮为参照《肉牛饲养标准》(NY/T 815—2004)配制的全混合日粮(TMR),其组成及营养水平见表3
表3 饲粮组成及营养水平(干物质基础)

Table 3 Composition and nutrient levels of diets (DM basis)%

项目
Items
对照组 Control group 试验组 Experimental group
第1~60天
Days 1 to 60
第61~120天
Days 61 to 120
第1~60天
Days 1 to 60
第61~120天
Days 61 to 120
原料 Ingredients
玉米青贮 Corn silage 45.000 37.500 45.000 37.500
燕麦干草 Oat hay 15.000 12.500 15.000 12.500
玉米 Corn 23.530 29.420 22.520 28.150
豆粕 Soybean meal 6.150 7.690 5.160 6.450
小麦麸 Wheat bran 4.360 5.450 4.360 5.450
菜籽粕 Rapeseed meal 4.000 5.000 4.000 5.000
发酵白酒槽 Fermented white distiller grains 2.000 2.500
预混料 Premix1) 1.600 2.000 1.600 2.000
食盐 NaCl 0.180 0.220 0.180 0.225
碳酸氢钠 NaHCO3 0.180 0.220 0.180 0.225
合计 Total 100.000 100.000 100.000 100.000
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 10.49 10.74 10.49 10.74
粗蛋白质 CP 11.46 12.28 11.29 12.13
钙 Ca 0.84 0.85 0.88 0.89
总磷 TP 0.61 0.64 0.69 0.72

1)每千克预混料含有 One kilogram of premix contained the following:VA 110 000 IU,VD 320 000 IU,VE 400 IU,Mn 1 000 mg,Zn 1 250 mg,Fe 1 200 mg,Cu 260 mg,I 20 mg,Se 7 mg。

2)代谢能为计算值,根据各原料比例及其在中国饲料数据库(http://www.chinafeeddata.org.cn)中的代谢能值进行计算;其余为实测值。ME was a calculated value which was calculated according to the proportion and ME value of each raw material in China Feed Database (http://www.chinafeeddata.org.cn), while the others were measured values.

1.5 样品采集与保存

饲养试验结束后,对各组试验牛空腹进行血样和粪便采集。于颈静脉采血10 mL,室温静置凝固后,4 ℃、1 095×g离心10 min,收集血清于离心管中,于-80 ℃冷冻保存待测;将采集的新鲜粪便样本放入无菌管后进行标号并密封,于-80 ℃冰箱保存待测。

1.6 测定指标及方法

1.6.1 饲粮营养水平测定

饲粮样品中的粗蛋白质(CP)含量根据GB/T 6432—2018并通过连续流动分析仪进行测定;样品经GB 5009.268—2016中规定的干式消解法预处理后,在电感耦合等离子体发射光谱仪上测定钙(Ca)和总磷(TP)含量。

1.6.2 生长性能测定

所有试验牛于预试期结束后空腹测定初始体重(IBW),并于正试期结束后测定终末体重(FBW),计算每头牛ADG;每天饲喂后,记录给料量,次日清晨称量剩料量,计算平均日采食量(ADFI)和F/G。

1.6.3 血清生化和免疫指标测定

解冻血清样品,通过酶联免疫吸附试验(ELISA)法,使用酶标仪Infinite-F50测定血清总蛋白(TP)、甘油三酯(TG)、总胆固醇(TC)、肌酐(Cr)、白蛋白(ALB)、葡萄糖(GLU)、尿素氮(UN)、免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)、白细胞介素-2(IL-2)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)以及肿瘤坏死因子-α(TNF-α)含量。

1.6.4 粪便菌群测定

解冻粪便样本,根据E.Z.N.A.® Soil DNA Kit(Omega Bio-Tek,美国)说明书进行微生物群落总DNA抽提,使用1%的琼脂糖凝胶电泳检测抽提的基因组DNA的质量,并使用分光光度计(NanoDrop-2000,Thermo Scientific,美国)测定DNA浓度和纯度。以上述提取的DNA为模板,使用携带Barcode序列的上游引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和下游引物806R(5'-GGACTACHVGGGTWTCTAAT-3')对16S rRNA基因V3~V4可变区进行PCR扩增,使用2%琼脂糖凝胶回收PCR产物,利用DNA凝胶回收纯化试剂盒进行回收产物纯化,并用Qubit 4.0荧光定量仪(Thermo Fisher Scientific,美国)对回收产物进行检测定量。使用NEXTFLEX Rapid DNA-Seq Kit对纯化后的PCR产物进行建库,并使用Illumina-PE300/PE250平台(上海美吉生物医药科技有限公司)进行16S rRNA高通量测序。
基于默认参数,使用QIIME 2软件中的DADA 2插件对优化后的序列进行降噪处理,处理后的序列被称为扩增子序列变体(amplicon sequence variant,ASV)。使用QIIME 2软件中的Naive Bayes分类器对ASV进行物种分类学分析,使用Mothur软件计算alpha多样性指数;使用基于Bray-Curtis距离算法的主坐标分析(PCoA)检验样本间微生物群落结构的相似性,并结合相似性分析(ANOSIM)非参数检验分析样本组间微生物群落结构差异是否显著;采用线性判别分析(linear discriminant analysis,LDA)效应大小(linear discriminant analysis effect size,LEfSe)分析确定不同组间从门到属水平上相对丰度差异显著(LDA>3,P<0.05)的细菌类群;以Pearson相关系数为量度,对生长性能、血清生化和免疫指标以及粪便微生物属水平上相对丰度进行相关性分析。

1.7 数据处理与统计分析

试验数据通过Excel 2019整理后,采用SPSS 21.0软件进行独立样本t检验,P<0.05表示差异显著,P<0.01表示差异极显著,结果数据用“平均值±标准差(mean±SD)”形式表示。

2 结果与分析

2.1 微生态制剂和发酵白酒糟对西门塔尔牛生长性能的影响

表4可知,与对照组相比,试验组西门塔尔牛ADG极显著提高(P<0.01),F/G显著降低(P<0.05),但FBW和ADFI均无显著差异(P>0.05)。
表4 微生态制剂和发酵白酒糟对西门塔尔牛生长性能的影响

Table 4 Effects of microecological preparations and fermented white distiller’s grains on growth performance of Simmental cattle

项目 Items 对照组 Control group 试验组 Experimental group PP-value
初始体重 IBW/kg 152.33±30.07 152.08±35.73 0.990
终末体重 FBW/kg 257.00±26.22 298.33±43.03 0.072
平均日增重 ADG/(kg/d) 0.87±0.22A 1.22±0.11B 0.007
平均日采食量 ADFI/(kg/d) 5.42±0.10 5.45±0.05 0.485
料重比 F/G 6.69±2.33b 4.50±0.39a 0.047

同行数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 微生态制剂和发酵白酒糟对西门塔尔牛血清生化和免疫指标的影响

表5可知,与对照组相比,试验组西门塔尔牛血清IgA、IgG和IgM含量均显著提高(P<0.05);血清TP、ALB、TG、Cr、IL-2、IL-10和TNF-α含量有升高趋势,血清GLU、UN、TC和IL-6含量有降低趋势,但差异均不显著(P>0.05)。
表5 微生态制剂和发酵白酒糟对西门塔尔牛血清生化和免疫指标的影响

Table 5 Effects of microecological preparations and fermented white distiller’s grains on serum biochemical and immune indices of Simmental cattle

项目 Items 对照组 Control group 试验组 Experimental group PP-value
总蛋白 TP/(g/L) 73.29±14.75 89.55±21.59 0.159
白蛋白 ALB/(g/L) 44.26±11.95 64.16±23.17 0.091
葡萄糖 GLU/(mmol/L) 6.78±1.27 5.63±1.61 0.198
尿素氮 UN/(mmol/L) 16.66±4.81 14.38±3.83 0.385
甘油三酯 TG/(mmol/L) 6.57±1.58 7.06±2.36 0.685
总胆固醇 TC/(mmol/L) 6.01±1.54 5.25±1.25 0.369
肌酐 Cr/(μmol/L) 88.09±25.37 90.90±21.68 0.841
免疫球蛋白A IgA/(pg/mL) 424.94±23.71a 476.82±32.07b 0.032
免疫球蛋白G IgG/(pg/mL) 1 459.33±161.86a 1 889.73±363.00b 0.045
免疫球蛋白M IgM/(pg/mL) 729.36±143.80a 935.59±106.43b 0.049
白细胞介素-2 IL-2/(pg/mL) 243.60±46.71 270.25±44.32 0.747
白细胞介素-6 IL-6/(pg/mL) 156.98±36.28 141.36±46.14 0.446
白细胞介素-10 IL-10/(pg/mL) 115.29±35.41 131.04±26.23 0.674
肿瘤坏死因子-α TNF-α/(pg/mL) 143.79±51.89 156.97±33.81 0.358

2.3 微生态制剂和发酵白酒糟对西门塔尔牛粪便菌群的影响

2.3.1 微生态制剂和发酵白酒糟对西门塔尔牛粪便菌群多样性的影响

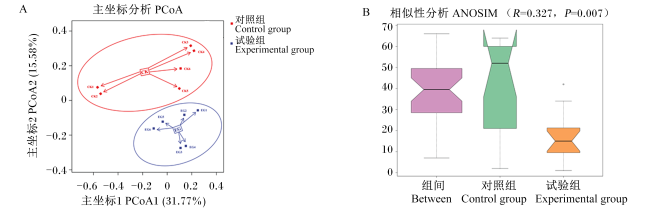
表6可知,与对照组相比,试验组西门塔尔牛粪便菌群Shannon指数显著提高(P<0.05),说明饲粮添加微生态制剂和发酵白酒糟可以提高西门塔尔牛粪便菌群多样性。Beta多样性分析是通过对不同生境或微生物群落间的物种多样性进行组间比较分析,探索不同分组样本间群落组成的相似性和差异性。在PCoA中,样本之间的距离代表两者的相似度,样本距离越近,表示物种组成结构越相似,且群落结构相似度高的样本相互聚集,群落结构差异大的样本相互分离。如图1-A所示,主坐标1(PCoA1)和主坐标2(PCoA2)贡献值分别为31.77%和15.58%,对照组和试验组相互分开,且试验组样本相互聚集,而对照组样本相对分散,表明2组间菌群差异较大,且对照组内各样本群落结构差异较大。ANOSIM是一种基于置换检验和秩和检验的非参数检验方法,用来检验组间的差异是否显著大于组内差异,从而判断分组是否有意义。如图2-B所示,ANOSIM结果表明,对照组和试验组之间差异显著(R=0.327,P=0.007),说明分组有意义。
表6 微生态制剂和发酵白酒糟对西门塔尔牛粪便菌群alpha多样性的影响

Table 6 Effects of microecological preparations and fermented white distiller’s grains on alpha diversity in fecal microflora of Simmental cattle

项目 Items 对照组 Control group 试验组 Experimental group PP-value
可见物种指数 Observed species index 492.64±67.93 536.57±34.30 0.188
ACE指数 ACE index 493.09±68.02 537.08±34.41 0.188
Chao1指数 Chao1 index 493.56±68.18 537.66±34.73 0.188
Shannon指数 Shannon index 7.36±0.27a 7.73±0.22b 0.026
Simpson指数 Simpson index 0.98±0.01 0.98±0.01 0.722
PD指数 PD index 32.91±3.19 35.11±1.79 0.171
图1 西门塔尔牛粪便菌群beta多样性分析

0<R<1表示组间差异显著,-1<R<0表示组间差异不显著。

Fig.1 Beta-diversity analysis in fecal microflora of Simmental cattle

0<R<1 indicated significant difference between groups, and -1<R<0 indicated no significant difference between groups.

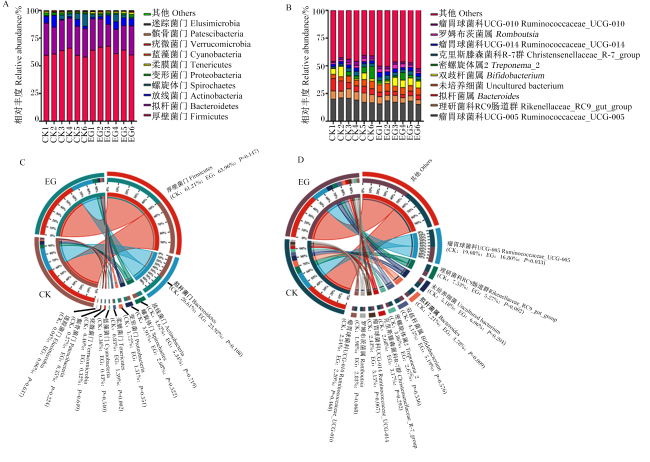
图2 微生态制剂和发酵白酒糟对西门塔尔牛粪便菌群组成的影响

A:门水平上群落结构柱状图 histogram of community structure at phylum level;B:属水平上群落结构柱状图 histogram of community structure at genus level;C:门水平上群落结构Circos图 Circos graph of community structure at phylum level;D:属水平上群落结构Circos图 Circos graph of community structure at genus level;CK:对照组 control group;EG:试验组 experimental group。

Fig.2 Effects of microecological preparations and fermented white distiller’s grains on fecal microflora composition of Simmental cattle

2.3.2 微生态制剂和发酵白酒糟对西门塔尔牛粪便菌群组成的影响

通过与Silva 132数据库比对,进行物种注释,本研究共获得2个界、20个门、28个纲、64个目、136个科、345个属和178个种。Circos图是一种描述分组与物种之间对应关系的可视化圈图,其不仅反映了每个分组的优势物种的组成比例,同时也反映了各优势物种在不同分组中的分布比例。Circos图左半圈表示分组中物种组成比例,外层彩带代表分组,内层彩带的颜色代表不同的物种,长度代表该物种在对应分组中的相对丰度;Circos图右半圈表示物种在不同分组中的分布比例,外层彩带代表物种,内层彩带的颜色代表不同的分组,长度代表该分组在某一物种中的分布比例。本试验中,在门水平和属水平上取排名前10的菌群进行群落结构柱状图和Circos图分析,结果如图2所示。在门水平上,西门塔尔牛粪便菌群中的优势菌门为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes),其中对照组厚壁菌门和拟杆菌门相对丰度分别为61.21%和26.61%,试验组厚壁菌门和拟杆菌门相对丰度分别为63.96%和23.92%;在属水平上,西门塔尔牛粪便菌群中的优势菌属为瘤胃球菌科UCG-005(Ruminococcaceae_UCG-005),其中对照组瘤胃球菌科UCG-005相对丰度为19.08%,试验组瘤胃球菌科UCG-005相对丰度为16.80%。

2.3.3 相关性分析

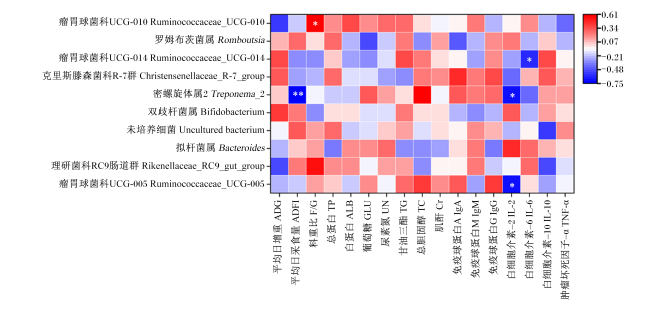
为进一步探索西门塔尔牛粪便菌群与表型数据间的关系,以Pearson相关系数为量度,对生长性能以及血清生化和免疫指标与粪便菌群在属水平上的相对丰度进行关联性分析,结果如图3所示。ADFI与粪便菌群中密螺旋体属2(Treponema_2)相对丰度呈极显著负相关(P<0.01),F/G与粪便菌群中瘤胃球菌科UCG-010(Ruminococcaceae_UCG-010)相对丰度呈显著正相关(P<0.05),血清IL-2含量与粪便菌群中密螺旋体属2和瘤胃球菌科UCG-005相对丰度呈显著负相关(P<0.05),血清IL-6含量与粪便菌群中瘤胃球菌科UCG-014(Ruminococcaceae_UCG-014)相对丰度呈显著负相关(P<0.05),其他指标与粪便菌群均无显著相关性(P>0.05)。
图3 相关性分析

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.3 Correlation analysis

* mean significant correlation (P<0.05), and ** mean extremely significant correlation (P<0.05).

2.3.4 西门塔尔牛粪便菌群组成差异性分析

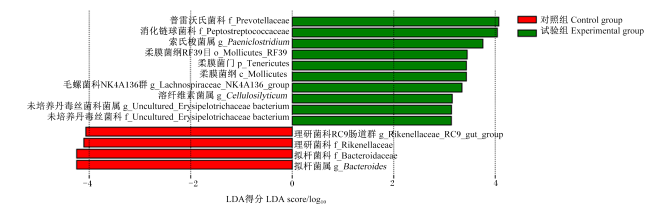
图4所示,LEfSe分析结果表明,在科水平上,普雷沃氏菌科(Prevotellaceae)、消化链球菌科(Peptostreptococcaceae)和未培养丹毒丝菌科(uncultured_Erysipelotrichaceae bacterium)在试验组西门塔尔牛粪便菌群中更丰富,而拟杆菌科(Bacteroidaceae)和理研菌科(Rikenellaceae)在对照组中更丰富。在属水平上,与对照组相比,试验组西门塔尔牛粪便菌群中索氏梭菌属(Paeniclostridium)、毛螺菌科NK4A136群(Lachnospiraceae_NK4A136_group)、溶纤维素菌属(Cellulosilyticum)和未培养丹毒丝菌科菌属(uncultured_Erysipelotrichaceae bacterium)等更丰富。
图4 西门塔尔牛粪便菌群LEfSe分析

Fig.4 LEfSe analysis of fecal microflora of Simmental cattle

3 讨论

3.1 微生态制剂和发酵白酒糟对西门塔尔牛生长性能的影响

本试验结果显示,饲粮中添加微生态制剂和发酵白酒糟可以极显著提高西门塔尔牛ADG,显著降低F/G。白雪等[12]研究表明,饲喂复合微生态制剂和甘露寡糖可以提高荷斯坦犊牛ADG和干物质采食量(DMI),降低F/G;韦秋汝[13]研究表明,饲喂微生态制剂可以提高西门塔尔牛ADG和ADFI,降低F/G;汪成[14]结果表明,饲喂发酵白酒糟可以提高西门塔尔牛DMI和ADG,降低F/G;曹等[15]研究表明,饲喂发酵白酒糟可以提高牦牛ADG,降低F/G。在本试验中,2组西门塔尔牛FBW和ADFI均无显著差异,其原因可能与微生态制剂和发酵白酒糟添加量有关,且在试验末期处于秋冬季节交替,牛舍内温差过大,导致个别肉牛生长缓慢。

3.2 微生态制剂和发酵白酒糟对西门塔尔牛血清生化和免疫指标的影响

血清生化指标是反映动物健康状态以及判断动物疾病的重要指标,血清TP和ALB含量的变化可以反映动物机体内蛋白质的消化代谢及生长发育状况。血清中的ALB可参与机体组织修复和能量供应。UN是蛋白质代谢终产物,主要来源于瘤胃氮吸收,可随尿液排出体外,血清UN含量较低可减少机体氮损失,有利于机体氮沉积。TC和TG含量能够反映机体能量平衡和脂肪代谢情况。研究表明,血清TG含量升高有助于动物育肥,可以促进动物体内脂肪的合成和积累[16]。GLU可以通过反刍动物瘤胃发酵的丙酸转化而来,所以GLU含量可以反映机体对糖代谢的状态和瘤胃发酵的状态。汪成[14]研究表明,饲喂发酵白酒糟可以显著提高西门塔尔牛血清TP、ALB、球蛋白(GLB)和TC含量,降低血清UN含量。本试验结果表明,饲粮中添加微生态制剂和发酵白酒糟可以提高西门塔尔牛血清TP、ALB、TG和Cr等含量,降低血清GLU、UN和TC等含量,但均无显著差异,究其原因可能是由于组内个体差异较大影响到组间差异。
免疫指标主要是免疫球蛋白和细胞因子,免疫球蛋白是一类由浆细胞产生的具有抗体活性的蛋白,包括IgA、IgG和IgM,是评价动物体液免疫的重要指标,也是机体免疫功能的直接体现。细胞因子是由免疫细胞合成和分泌的小分子多肽,具有调节免疫应答、参与炎症反应等多种功能。细胞因子包括肿瘤坏死因子、白细胞介素、干扰素(IFN)和趋化因子等。免疫功能是反映机体健康状态的重要生理功能。发酵酒糟中含有大量的益生菌,可以降低肠道内pH,改善动物肠道微生态环境,提高动物免疫力;而微生态制剂能够刺激机体淋巴细胞分泌,提高免疫球蛋白和细胞因子含量,并提高细胞免疫和体液免疫功能,增强机体的免疫能力和抗病能力,从而提高动物的免疫功能。Devyatkin等[17]研究表明,在羔羊饲粮中添加枯草芽孢杆菌和地衣芽孢杆菌可以显著提高羔羊血清中TP、ALB和GLB含量。彭涛等[18]研究表明,饲喂复合益生菌制剂可以提高山羊血清IgA和IgG含量。管晓轩等[19]研究结果显示,在犊牛饲粮中添加枯草芽孢杆菌、地衣芽孢杆菌等复合微生态制剂可以显著提高血清IgA、IgG和白细胞介素-4(IL-4)含量。谢大识[20]和刘庆雨等[21]研究表明,饲粮中添加复合微生态制剂可以显著提高断奶仔猪血清IgG、IgM、IL-2和IFN-γ含量。卢浩诚等[22]研究发现,在肉牛饲粮中添加复合微生态制剂可以显著提高肉牛血清IgA、IgG和IgM含量。陈相如等[23]研究表明,饲粮中添加微生态制剂可以降低断奶羔羊血清IL-4和TNF-α含量。徐镀涵等[24]研究表明,饲喂发酵酒糟可以提高西门塔尔杂交牛血清IgA含量。本试验结果表明,饲粮中添加微生态制剂和发酵白酒糟可以显著提高西门塔尔牛血清IgA、IgG和IgM含量,说明饲喂微生态制剂和发酵白酒糟可以提高西门塔尔牛的免疫功能。

3.3 微生态制剂和发酵白酒糟对西门塔尔牛粪便菌群的影响

在动物生长过程中通常以粪便菌群来反映肠道微生物群落状况,以此来了解判定动物胃肠道微生态是否平衡。动物粪便菌群多样性是微生物与动物本身共同进化的结果,由于宿主本身的种类差异、不同年龄和生理阶段的不同,其粪便菌群多样性也会有所不同,同时动物瘤胃微生物多样性也受饲粮结构的影响[25]。张谚鹏等[26]研究发现,Shannon指数和Simpson指数可以反映物种多样性,ACE指数和Chao1指数可以反映微生物群落丰富度。包海林等[27]研究表明,饲粮中添加复合乳酸菌制剂可以显著提高犊牛粪便菌群ACE指数和Chao1指数。本试验西门塔尔牛采用圈舍饲养,其饲粮结构单一,可能会使得粪便菌群多样性较低。本试验结果显示,饲粮中添加微生态制剂和发酵白酒糟显著提高了西门塔尔牛粪便菌群Shannon指数,说明饲喂微生态制剂和发酵白酒糟可以提高粪便菌群物种多样性。刘垚等[28]研究表明,饲喂白酒糟和发酵白酒糟可以提高西门塔尔杂交牛瘤胃菌群Shannon指数,但对西门塔尔杂交牛瘤胃菌群多样性和物种丰富度没有影响。在陈凤梅等[29]的试验中,通过非加权组平均法(UPGMA)聚类分析表明,饲粮中添加微生态制剂可影响瘤胃菌群。在包海林等[27]的试验中,通过PCoA发现,对照组与复合乳酸菌制剂组犊牛粪便菌群明显区分,表明对照组与复合乳酸菌制剂组犊牛粪便菌群组成存在差异。本试验通过PCoA发现,对照组与试验组西门塔尔牛粪便菌群明显区分,说明2组粪便菌群之间存在差异。
本试验结果显示,在门水平上,与对照组相比,试验组西门塔尔牛粪便中厚壁菌门、放线菌门(Actinobacteria)、柔膜菌门(Tenericutes)、蓝藻菌门(Cyanobacteria)、髌骨菌门(Patescibacteria)以及迷踪菌门(Elusimicrobia)等相对丰度有所提高,而粪便中拟杆菌门、变形菌门(Proteobacteria)、疣微菌门(Verrucomicrobia)和螺旋体门(Spirochaetes)等相对丰度有所降低,其中厚壁菌门和拟杆菌门是优势菌门,相对丰度达87%以上,这与聂洪辛等[30]、Yeoman等[31]和Malmuthuge等[32]的研究结果相似。拟杆菌门可以提高动物机体对碳水化合物的吸收和利用,是参与碳水化合物代谢过程的优势菌。厚壁菌门和放线菌门有助于动物机体微生物降解纤维素,是参与纤维素分解过程的优势菌。拟杆菌门相对丰度提高有助于机体吸收利用营养物质,厚壁菌门相对丰度提高可促进机体对纤维的溶解消化,但厚壁菌门相对丰度过高会引起菌群失调,因此拟杆菌门与厚壁菌门的比例具有一定研究意义,比例提高时,拟杆菌门数量增加而厚壁菌门数量减少,可对肠道致病菌有一定抑制,具有维持微生态区系稳定的作用。研究表明,厚壁菌门与拟杆菌门的比值可以反映动物机体的肥胖状况[33-34]。Kim等[35]研究表明,在成年牛粪便中拟杆菌门的相对丰度与饲粮中纤维含量呈反比,这与本试验结果不一致。研究还表明,在动物肠道中拟杆菌门的相对丰度与动物的体脂含量呈显著负相关[36]。本试验中,试验组西门塔尔牛粪便拟杆菌门相对丰度降低的原因可能是饲粮中添加微生态制剂和发酵白酒糟使得肉牛体脂含量提高,导致粪便拟杆菌门相对丰度降低。Zhang等[37]研究表明,断奶后不同月份犊牛肠道微生物群落中厚壁菌门相对丰度升高,拟杆菌门相对丰度降低,这与本试验结果一致。放线菌门具有利用碳水化合物合成乳酸的能力,有助于调节内环境的酸度水平,抑制肠道内有害细菌的增殖。柔膜菌门是一类独特的细菌,缺乏细胞壁,它对动物具有一定的致病性。房海等[38]研究表明,柔膜菌门中的支原体属是鱼类和虾类的致病病源,其中运动支原体和类支原体寄生于这些动物的肠道绒毛上皮细胞内,导致消化功能障碍。在本试验中,西门塔尔牛粪便柔膜菌门相对丰度提高的原因可能是试验末期处于秋冬季节,牛舍内温度较低,导致西门塔尔牛肠道微生物群落失调,破坏了微生物群落的稳定性,从而影响微生物在消化道的定殖。因此,柔膜菌门相对丰度升高可以作为微生物群落结构开始不稳定的标志。Ormerod等[39]研究表明,髌骨菌门缺乏生物合成和DNA修复能力,这表明它们是其他生物体的外共生生物或寄生生物。迷踪菌门中的某些菌种是共生菌,它们可以寄生在生物肠道中。变形菌门中包含多种致病菌,其中包括大肠杆菌、沙门氏菌、铜绿假单胞杆菌和胃幽门螺旋杆菌等。Shin等[40]和Su等[41]研究发现,变形菌门与哺乳动物肠道健康密切相关,其相对丰度越低说明动物越健康。Derrien等[42]研究发现,疣微菌门中的阿克曼氏菌属可降解黏蛋白,使黏液层变薄,减弱肠道保护屏障,导致肠道内环境失衡。吴家慧等[43]研究表明,在反刍动物肠道中疣微菌门的相对丰度过高会引起肠道菌群失调,引起动物腹泻。研究表明,螺旋体门中的大多数菌株都是致病菌或具有潜在致病性的菌株,可能会导致仔猪腹泻[44]
在属水平上,与对照组相比,试验组西门塔尔牛粪便中双歧杆菌属(Bifidobacterium)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)、瘤胃球菌科UCG-014、罗姆布茨菌属(Romboutsia)和未培养细菌(uncultured bacterium)等相对丰度有所提高,粪便中瘤胃球菌科UCG-005、瘤胃球菌科UCG-010、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、拟杆菌属(Bacteroides)和密螺旋体属2等相对丰度有所降低,其中瘤胃球菌科UCG-005是优势菌属。瘤胃球菌属(Ruminococcus)是厚壁菌门中的一部分,它主要通过分解和利用非淀粉多糖来维持肠道健康。非淀粉多糖是植物细胞壁的主要成分,包括纤维素、半纤维素和果胶等。瘤胃球菌属能够分解这些复杂的多糖,产生短链脂肪酸,如丙酸、丁酸和乙酸,这些短链脂肪酸为肠道黏膜细胞提供能量,并有助于维持肠道的正常功能。此外,瘤胃球菌属能够分解淀粉中的支链淀粉,生成可以被吸收利用的葡萄糖。双歧杆菌属具有改善肠道功能,促进胃肠道健康等作用。Jungersen等[45]研究表明,双歧杆菌能够抑制大肠杆菌和李斯特菌等病原菌生长的能力,并能够附着在肠道黏膜上,从而减少黏液中的鼠伤寒沙门氏菌和金黄色葡萄球菌等有害菌的数量。Liu等[46]研究发现,克里斯滕森菌科R-7群和罗姆布茨菌属都是厚壁菌门中的一部分,它们在维持胃肠道结构、功能和动物机体免疫调节方面发挥重要作用。Li等[47]研究发现,在肉牛饲养过程中,饲料效率高的牛瘤胃中细菌谱与饲料效率低的牛瘤胃中细菌谱不同,特别是瘤胃球菌属的相对丰度与饲料效率密切相关。金鹿等[48]研究发现,瘤胃球菌属在瘤胃中相对丰度仅有6%,在小肠中相对丰度仅为4%~7%。项开合[49]研究表明,与健康奶牛相比,酮病奶牛瘤胃液中瘤胃球菌属相对丰度显著降低,而菌群丰度的变化主要与动物采食量下降有关。本试验中,试验组西门塔尔牛粪便中瘤胃球菌科UCG-005和瘤胃球菌科UCG-010相对丰度降低的原因可能是试验末期处于秋冬季节,牛舍内温度较低,采食量下降,导致肉牛肠道菌群紊乱,菌群丰度发生变化。Zhang等[50]研究发现,理研菌科具有降解纤维素、木质素等结构性碳水化合物的作用,理研菌科RC9肠道群相对丰度随着饲粮纤维含量的下降而降低,导致其相对丰度降低的原因可能与肉牛饲粮中精粗比例的调整有关。此外,粪便中密螺旋体属2相对丰度降低的原因可能是由于饲粮中微生态制剂和发酵白酒糟提高了西门塔尔牛的采食量,本试验通过粪便菌群与表型数据相关性分析发现,西门塔尔牛ADFI与粪便中密螺旋体属2相对丰度呈极显著负相关。
综上所述,饲粮中添加微生态制剂和发酵白酒糟可以提高西门塔尔牛免疫功能以及对营养物质的消化、吸收和利用能力,抑制胃肠道致病菌的定植,有利于改善消化道内环境稳态。

4 结论

饲粮中添加微生态制剂和发酵白酒糟可以提高西门塔尔牛生长性能和免疫功能,并提高粪便菌群多样性,维持消化道内环境稳态。
[1]
GURUNG N, SOLAIMAN S G, RANKINS D L, et al. Effects of distillers dried grains with solubles on feed intake,growth performance,gain efficiency and carcass quality of growing Kiko×Spanish male goats[J]. Journal of Animal and Veterinary Advances, 2009, 8(10):2087-2093.

[2]
AL-SUWAIEGH S, FANNING K C, GRANT R J, et al. Utilization of distillers grains from the fermentation of sorghum or corn in diets for finishing beef and lactating dairy cattle[J]. Journal of Animal Science, 2002, 80(4):1105-1111.

[3]
REIS V A, REIS R A, ARAÚJO T L D R, et al. Performance,beef quality and expression of lipogenic genes in young bulls fed low-fat dried distillers grains[J]. Meat Science, 2020,160:107962.

[4]
李雪莉, 王超, 虞德夫, 等. 微生态制剂对断奶仔猪生长性能、器官重及其胃肠道发育的影响[J]. 草业学报, 2017, 26(8):192-199.

DOI

LI X L, WANG C, YU D F, et al. Effects of probiotics on the growth performance,organ relative weight,and intestine development of weaned piglets[J]. Acta Prataculturae Sinica, 2017, 26(8):192-199. (in Chinese)

[5]
张玉诚. 白酒糟菌体蛋白饲料开发研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2016.

ZHANG Y C. Study on bacterial protein feeds production from distillers grains[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2016. (in Chinese)

[6]
周芯宇. 不同类型酒糟与干草组合对奶公牛瘤胃发酵和生产性能的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2020.

ZHOU X Y. Effects of different source of distiller’s grains combined with hay on rumen fermentation and production performance of dairy bulls[D]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2020. (in Chinese)

[7]
SIGNORINI M L, SOTO L P, ZBRUN M V, et al. Impact of probiotic administration on the health and fecal microbiota of young calves:a meta-analysis of randomized controlled trials of lactic acid bacteria[J]. Research in Veterinary Science, 2012, 93(1):250-258.

[8]
FRIZZO L S, ZBRUN M V, SOTO L P, et al. Effects of probiotics on growth performance in young calves:a meta-analysis of randomized controlled trials[J]. Animal Feed Science and Technology, 2011, 169(3/4):147-156.

[9]
刘俊斌, 张利平, 宋淑珍. 枯草芽孢杆菌对湖羊胃肠道发育、瘤胃发酵参数及微生物区系的影响[J]. 动物营养学报, 2022, 34(9):5984-5994.

DOI

LIU J B, ZHANG L P, SONG S Z. Effects of Bacillus subtilis on gastrointestinal development,rumen fermentation parameters and microflora of Hu sheep[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5984-5994. (in Chinese)

[10]
SEN S, INGALE S L, KIM Y W, et al. Effect of supplementation of Bacillus subtilis LS 1-2 to broiler diets on growth performance,nutrient retention,caecal microbiology and small intestinal morphology[J]. Research in Veterinary Science, 2012, 93(1):264-268.

[11]
王桔红, 史生晶, 陈文, 等. 枯草芽孢杆菌和3种放线菌对盐胁迫下鬼针草和鳢肠种子萌发及幼苗生长的影响[J]. 草业学报, 2020, 29(12):112-120.

DOI

WANG J H, SHI S J, CHEN W, et al. Effects of bacillus subtilis and three actinomycetes on seed germination and seedling growth of bidens pilosa and eclipta prostrata under salt stress[J]. Acta Prataculturae Sinica, 2020, 29(12):112-120. (in Chinese)

[12]
白雪, 吴妍妍, 张文举. 复合微生态制剂和甘露寡糖对断奶犊牛生长性能和血清生化指标的影响[J]. 家畜生态学报, 2023, 44(4):31-36.

BAI X, WU Y Y, ZHANG W J, et al. Effects of compound probiotics and mannose-oligosaccharides on growth performance and serum biochemical indexes of weaned calves[J]. Journal of Domestic Animal Ecology, 2023, 44(4):31-36. (in Chinese)

[13]
韦秋汝. 日粮中添加复合微生态制剂对肉牛生产性能和经济效益的影响[J]. 畜牧兽医科学(电子版), 2021(10):17-18,180.

WEI Q R. Effects of compound microecological agents on production performance and economic benefit of beef cattle[J]. Graziery Veterinary Sciences (Electronic Version), 2021(10):17-18,180. (in Chinese)

[14]
汪成. 不同类型白酒糟对肉牛生产性能及胃肠道微生物区系的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2021.

WANG C. Effects of different types of distiller’s grains on performance and gastrointestinal microflora of beef cattle[D]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2021. (in Chinese)

[15]
曹广. 发酵酒糟对育肥牦牛生产性能和瘤胃菌群组成的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2020.

CAO G. Effects of fermented distiller’s grains on the production performance and rumen bacteria composition of finishing yaks[J]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2020. (in Chinese)

[16]
LIU H, JI H F, ZHANG D Y, et al. Effects of Lactobacillus brevis preparation on growth performance,fecal microflora and serum profile in weaned pigs[J]. Livestock Science, 2015,178:251-254.

[17]
DEVYATKIN V, MISHUROV A, KOLODINA E. Probiotic effect of Bacillus subtilis B-2998D,B-3057D,and Bacillus licheniformis B-2999D complex on sheep and lambs[J]. Journal of Advanced Veterinary and Animal Research, 2021, 8(1):146-157.

[18]
彭涛, 郭贝贝, 张水印, 等. 复合益生菌制剂对舍饲山羊育肥性能和血清生化指标的影响[J]. 动物营养学报, 2020, 32(1):440-446.

DOI

PENG T, GUO B B, ZHANG S Y, et al. Effects of complex-probiotic-preparation on fattening performance and serum biochemical indexes of captive goats[J]. Chinese Journal of Animal Nutrition, 2020, 32(1):440-446. (in Chinese)

[19]
管晓轩, 高民, 赵濛, 等. 复合微生态制剂对断奶前犊牛生长性能、腹泻率及血清生化、抗氧化和免疫指标的影响[J]. 动物营养学报, 2023, 35(2):1008-1017.

DOI

GUAN X X, GAO M, ZHAO M, et al. Effects of compound probiotics on growth performance, diarrhea rate and serum biochemical,antioxidant and immune indexes of pre-weaning calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(2):1008-1017.

[20]
谢大识. 复合微生态制剂对母猪繁殖性能和仔猪生长性能的影响[J]. 家畜生态学报, 2023, 44(1):32-36.

XIE D S. Effects of compound probiotics on reproductive performance of sows and growth performance of piglets[J]. Acta Ecologae Animalis Domastici, 2023, 44(1):32-36. (in Chinese)

[21]
刘庆雨, 李娜, 于永生, 等. 复合微生态制剂对断奶仔猪生长性能和血清免疫指标的影响[J]. 养猪, 2018(6):11-13.

LIU Q Y, LI N, YU Y S, et al. Effects of probiotics on growth performance and immune indexes of weaned piglets[J]. Swine Production, 2018(6):11-13. (in Chinese)

[22]
卢浩诚, 叶丙奎, 唐宇杰, 等. 复合微生态制剂对肉牛生长性能、血清免疫指标及肉品质的影响[J]. 畜牧与兽医, 2021, 53(11):26-30.

LU H C, YE B Q, TANG Y J, et al. Effects of composite microecologics on the growth performance and serum immunity and meat quality of beef cattle[J]. Animal Husbandry & Veterinary Medicine, 2021, 53(11):26-30. (in Chinese)

[23]
陈相如, 高航, 寇楠楠, 等. 发酵中药补中益气散对小鼠肠道功能及抗氧化指标的影响[J]. 中国预防兽医学报, 2021, 43(4):425-430.

CHEN X R, GAO H, KOU N N, et al. Effects on intestinal function and antioxidant capacity of mice by fermented Buzhong Yiqi powder[J]. Chinese Journal of Preventive Veterinary Medicine, 2021, 43(4):425-430. (in Chinese)

[24]
徐镀涵, 陈超, 朱鸣鸣, 等. 发酵酒糟饲喂水平对西杂牛生长性能、血液生化指标和肌肉氨基酸组成的影响[J]. 中国畜牧杂志, 2023, 59(4):212-216.

XU D H, CHEN C, ZHU M M, et al. Effects of fermented lees feeding level on growth performance,blood biochemical indexes and muscle amino acid composition of western hybrid cattle[J]. Chinese Journal of Animal Science, 2019, 59(4):212-216. (in Chinese)

[25]
高俊勤, 江芸, 张耀, 等. 木聚糖酶对肉仔鸡后肠道微生物的影响[J]. 草业学报, 2008, 17(5):104-110.

DOI

GAO J Q, JIANG Y, ZHANG Y, et al. The effects of xylanase supplementation on the hindgut microbe in broiler chickens[J]. Acta Prataculturae Sinica, 2008. 17(5):104-110. (in Chinese)

[26]
张谚鹏, 林苗, 肖亚红, 等. 姜黄提取物与石榴皮提取物的复合物对文昌鸡生长性能、血清免疫指标和盲肠微生物的影响[J]. 动物营养学报, 2023, 35(11):7086-7098.

DOI

ZHANG Y P, LIN M, XIAO Y H, et al. Effects of compound of curcuma longa extract and pomegranate peel extract on growth performance,serum immune indexes and cecal microbiota of Wenchang broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):7086-7098. (in Chinese)

[27]
包海林, 董晨扬, 魏曼琳, 等. 饲喂复合乳酸菌制剂对犊牛粪便微生物多样性及其功能的影响[J]. 中国微生态学杂志, 2023, 35(1):16-23.

BAO H L, DONG C Y, WEI M L, et al. Effects of compound lactic acid bacteria preparation on fecal microbial diversity and function of calves[J]. Chinese Journal of Microecology, 2023, 35(1):16-23. (in Chinese)

[28]
刘垚, 姜菲, 彭忠利, 等. 白酒糟和发酵白酒糟对西门塔尔杂交牛瘤胃发酵参数和微生物区系的影响[J]. 中国饲料, 2022(11):111-122.

LIU Y, JIANG F, PENG Z L, et al. Effects of distiller’s grains and fermented distiller’s grains on rumen fermentation parameters and microflora of Simmental hybrid cattle[J]. China Feed, 2022(11):111-122. (in Chinese)

[29]
陈凤梅, 程光民, 张永翠, 等. 复合微生态制剂对哺乳期犊牛生长性能及瘤胃微生态区系的影响[J]. 动物营养学报, 2020, 32(7):3234-3245.

DOI

CHEN F X, CHENG G M, ZHANG Y C, et al. Effects of compound microecologics on growth performance and rumen microbiota of calves in lactation period[J]. Chinese Journal of Animal Nutrition, 2020, 32(7):3234-3245. (in Chinese)

[30]
聂洪辛, 李毓敏, 庞凯悦, 等. 不同精粗比对牦牛粪便菌群结构的影响[J]. 草业学报, 2023, 32(12):189-197.

DOI

NIE H X, LI Y M, PANG K Y, et al. Effect of different concentrate to forage ratios on the structure of microflora in yak manure[J]. Acta Prataculturae Sinica, 2023, 32(12):189-197. (in Chinese)

[31]
YEOMAN C J, ISHAQ S L, BICHI E, et al. Biogeographical differences in the influence of maternal microbial sources on the early successional development of the bovine neonatal gastrointestinal tract[J]. Scientific Reports, 2018, 8(1):3197.

DOI PMID

[32]
MALMUTHUGE N, GRIEBEL P J, GUAN L L. Taxonomic identification of commensal bacteria associated with the mucosa and digesta throughout the gastrointestinal tracts of preweaned calves[J]. Applied and Environmental Microbiology, 2014, 80(6):2021-2028.

DOI PMID

[33]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

[34]
GANGARAPU V, YILDIZ K, INCE A T, et al. Role of gut microbiota:obesity and NAFLD[J]. Turkish Journal of Gastroenterology, 2014, 25(2):133-140.

[35]
KIM M, KIM J, KUEHN L A, et al. Investigation of bacterial diversity in the feces of cattle fed different diets[J]. Journal of Animal Science, 2014, 92(2):683-694.

DOI PMID

[36]
郭秀兰. 猪肠道硬壁菌门和拟杆菌门数量的检测及其相对丰度与脂肪沉积的相关性研究[D]. 博士学位论文. 雅安: 四川农业大学, 2008.

GUO X L. Detection of firmicutes and bacteroidetes in the pig gut and the correlation between their abundance and fat deposit[D]. Ph.D. Thesis. Ya’an: Sichuan Agricultural University, 2008. (in Chinese)

[37]
ZHANG J, LIANG Z, KAO R D, et al. Maternal gut microbes contribute to rapid acquisition of intestinal microbiota and high-altitude adaptation of pre-weaning yak calves[EB/OL].(2021-02-11)[2023-11-05]. https://www.researchsquare.com/article/rs-170399/v1.

[38]
房海, 陈翠珍, 张晓君. 水产养殖动物病原细菌学[M]. 北京: 中国农业出版社,2010:171-693.

FANG H, CHEN C Z, ZHANG X J. Aquacultural animal pathogenic bacteriology[M]. Beijing: China Agriculture Press,2010:171-693. (in Chinese)

[39]
ORMEROD K L, WOOD D L A, LACHNER N, et al. Genomic characterization of the uncultured Bacteroidales family S24-7 inhabiting the guts of homeothermic animals[J]. Microbiome, 2016, 4(1):36.

[40]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

[41]
SU S F, ZHAO Y P, LIU Z Z, et al. Characterization and comparison of the bacterial microbiota in different gastrointestinal tract compartments of Mongolian horses[J]. MicrobiologyOpen, 2020, 9(6):1085-1101.

DOI PMID

[42]
DERRIEN M, BELZER C, de VOS W M. Akkermansia muciniphila and its role in regulating host functions[J]. Microbial Pathogenesis, 2017,106:171-181.

[43]
吴家慧, 石明慧, 王一晨, 等. 冬末春初圈养梅花鹿健康与腹泻个体粪便菌群的比较分析[J]. 微生物学杂志, 2023, 43(2):68-77.

WU J H, SHI M H, WANG Y C, et al. Comparative analysis of fecal flora of healthy and diarrheic captive sika deer (Cervus nippon) in late winter and early spring[J]. Journal of Microbiology, 2023, 43(2):68-77. (in Chinese)

[44]
UDDIN M K, HASAN S, MAHMUD M R, et al. In-feed supplementation of resin acid-enriched composition modulates gut microbiota,improves growth performance,and reduces post-weaning diarrhea and gut inflammation in piglets[J]. Animals (Basel), 2021, 11(9):2511.

[45]
JUNGERSEN M, WIND A, JOHANSEN E, et al. The science behind the probiotic strain Bifidobacterium animalis sub sp. Lactis BB-12[J]. Microorganisms, 2014, 2(2):92-110.

[46]
LIU J H, XUE C X, SUN D M, et al. Impact of high-grain diet feeding on mucosa-associated bacterial community and gene expression of tight junction proteins in the small intestine of goats[J]. MicrobiologyOpen, 2019, 8(6):e00745.

[47]
LI F Y, GUAN L L. Metatranscriptomic profiling reveals linkages between the active rumen microbiome and feed efficiency in beef cattle[J]. Applied and Environmental Microbiology, 2017, 83(9):e00061-17.

[48]
金鹿, 桑丹, 张崇志, 等. 滩羊羔羊瘤胃和小肠菌群多样性的比较研究[J]. 畜牧与饲料科学, 2022, 43(4):48-56.

JIN L, SANG D, ZHANG C Z, et al. Comparison of microbial diversity in rumen and small intestine of tan sheep lambs[J]. Animal Husbandry and Feed Science, 2022, 43(4):48-56. (in Chinese)

[49]
项开合. 基于瘤胃菌群紊乱研究奶牛酮病对乳腺炎的影响及治疗试验[D]. 博士学位论文. 长春: 吉林大学, 2023.

XIANG K H. Effect of ketosis on mastitis in dairy cows based on rumen microbiota disturbance and treatment trial[D]. Ph.D. Thesis. Changchun: Jilin University, 2023. (in Chinese)

[50]
ZHANG X M, MEDRANO R F, WANG M, et al. Corn oil supplementation enhances hydrogen use for biohydrogenation,inhibits methanogenesis,and alters fermentation pathways and the microbial community in the rumen of goats[J]. Journal of Animal Science, 2019, 97(12):4999-5008.

Outlines

/