RESEARCH PAPER

Comparative Analysis of Plasma Metabolome of Kazakh Horses with High and Low Milk Fat Rates

  • LIU Xiaoxiao , 1 ,
  • ZENG Yaqi 1, 2 ,
  • WANG Jianwen 1, 2 ,
  • LUO Penghui 3 ,
  • XIE Xiaoyu 3 ,
  • MENG Chen 1 ,
  • LI Pengcheng 1 ,
  • WANG Chuankun 1 ,
  • GAO Feng 1 ,
  • MENG Jun , 1, 2, * ,
  • YAO Xinkui , 1, 2, *
Expand
  • 1 College of Animal Science, Xinjiang Agricultural University, Urumqi 830052, China
  • 2 Xinjiang Key Laboratory of Equine Breeding and Exercise Physiology, Urumqi 830052, China
  • 3 Xinjiang Uygur Autonomous Region Animal Husbandry Station, Urumqi 830000, China
*professor, E-mail: ;
professor, E-mail:

Received date: 2023-12-15

  Online published: 2024-06-07

Abstract

The purpose of this study was to analyze the differences in plasma metabolites of Kazakh horses with different milk fat rates, and to screen out the marker metabolites in plasma of Kazakh horses with high milk fat rate, so as to provide data support for the breeding of Kazakh horses with high milk fat rate. Twelve Kazakh horses with similar age, parity, body condition, and feeding and management conditions during lactation were selected, and 288 milk samples and blood samples were collected from Kazakh horses during days 30 to 105 after delivery. According to the determination results of milk fat rate, six Kazakh horses with high milk fat rate (≥1.84%) were selected, and their blood samples were divided into high milk fat rate group (HF group); six Kazakh horses with low milk fat rate (≤0.90%) were selected, and their blood samples were divided into low milk fat rate group (LF group). Subsequently, plasma metabolites in blood samples were analyzed by non-targeted liquid chromatography-mass spectrometry (LC-MS) metabolomics technique. The results showed that a total of 53 differential metabolites were detected in the plasma of high and low milk fat rate Kazakh horses. The concentrations of 36 substances such as arachidonic acid, D-erythro-sphingosine-1-phosphate, prostaglandin, 5-hydroxyindole-3-acetic acid, thromboxane B2, uric acid and so on in the plasma of the high milk fat rate Kazakh horses were significantly higher than those of the low milk fat rate Kazakh horses (P<0.05), while the concentrations of 17 substances such as L-pyroglutamic acid, D-fructose-6-phosphate, biotin and D-homocysteine and so on in the plasma of the high milk fat rate Kazakh horses were significantly lower than those of the low milk fat rate Kazakh horses (P<0.05). These differential metabolites were mainly enriched in metabolic pathways such as arachidonic acid metabolism, linoleic acid metabolism, purine metabolism, galactose metabolism, glycine, serine and threonine metabolism, etc. The results of this study provide a theoretical basis for further exploring the synthesis of milk fat and further improving the quality of mare’s milk.

Cite this article

LIU Xiaoxiao , ZENG Yaqi , WANG Jianwen , LUO Penghui , XIE Xiaoyu , MENG Chen , LI Pengcheng , WANG Chuankun , GAO Feng , MENG Jun , YAO Xinkui . Comparative Analysis of Plasma Metabolome of Kazakh Horses with High and Low Milk Fat Rates[J]. Chinese Journal of Animal Nutrition, 2024 , 36(6) : 3845 -3856 . DOI: 10.12418/CJAN2024.330

马乳由乳脂、乳糖、乳蛋白、非脂固形物和水等营养物质组成的,其成分含量与人乳及其接近。乳脂是马乳的重要组成成分之一,马乳中的乳脂率为0.4%~1.9%,乳脂在乳中呈球形,直径比牛乳中的乳脂小,但其质量优于牛乳。马乳中不饱和脂肪酸、低分子脂肪含量较高,尤其是亚油酸(C18∶2)和亚麻油酸(C18∶3)[1]。马乳中C16以下的脂肪酸含量较多,据姚新奎[2]报道,马乳中含有15种脂肪酸,中链脂肪酸∶长链脂肪酸为6∶9,饱和脂肪酸∶单不饱和脂肪酸∶多不饱和脂肪酸为9∶4∶2。马乳中丰富的脂肪酸和较低的熔点,使其与其他乳品比起来更容易被人体所消化吸收[3]
哈萨克马具有较好的产乳性能,主要分布在新疆北部的伊犁、塔城和阿勒泰等地区,其中阿勒泰地区哈萨克马多数以放牧为主,主要选育方向为乳用[4],但是目前关于阿勒泰地区哈萨克马产奶性能的相关研究还相对较少,仅见刘玲玲等[5]对哈萨克马泌乳曲线的研究。目前,大多数研究主要集中在利用乳成分分析的方法来探究乳成分的差异性,其中关于马乳乳脂率的研究主要集中在饲粮营养、育种优化和牧场管理等方面,但是关于马匹自身生理代谢对乳脂率影响的研究少有提及。因此,探究血浆代谢物对乳脂代谢调控的分子机制,对马乳的营养调控及提高马乳营养价值具有重要的理论和实践意义。
血浆代谢物是反映机体系统内生理变化情况的标志之一[6],但是目前对于血液中不同代谢物浓度与乳脂率之间的关联还不清楚。王影等[7]通过对泌乳中后期荷斯坦奶牛乳样进行代谢组学分析发现,不同乳脂率奶牛乳样中差异代谢物有60种,并筛选出了4种高乳脂率潜在标志性差异代谢物。孙睿凡[8]在对大足黑山羊、萨能山羊和荷斯坦牛的乳成分与乳代谢组的比较分析研究中发现,筛选出的差异代谢物主要是与羔羊生长发育、脂肪代谢、免疫调节等有关的脂类代谢物。目前,关于乳腺代谢物对乳脂率的影响已有相关报道,但利用代谢组学技术研究血浆代谢物与乳脂率的关系鲜有涉及。因此,本研究以哈萨克马为研究对象,在相同饲养管理条件下,采集不同乳脂率哈萨克马的血液样本,采用非靶向代谢组学技术筛选出标志性的血浆差异代谢物,为深层次探究乳脂的合成以及进一步提升马乳乳品质提供理论基础。

1 材料与方法

1.1 样品采集

选取阿勒泰市阿克库勒马业自有马场年龄、胎次、体况相近,饲养管理条件一致的泌乳期哈萨克马12匹,在马匹产后第30~105天,每隔15 d分别在10:00、13:00、16:00、19:00 4个时间段对马匹进行机械挤奶,马匹挤奶期间正常补饲。每个时间点采集50 mL乳样置于100 mL乳样瓶中冷冻保存,用于乳脂率的测定。在采集乳样前1 h通过颈静脉采集血液,共采集哈萨克马乳样和血液样本各288份。根据测定的乳脂率数据,选取乳脂率高(≥1.84%)的6匹哈萨克马,其血样组成高乳脂率组(HF组),乳脂率低(≤0.90%)的6匹哈萨克马),其血样组成低乳脂率组(LF组),马匹具体信息见表1。浆血样置于乙二胺四乙酸(EDTA)抗凝真空采血管中,2 350×g离心10 min,吸取上层血浆,置于-80 ℃冷冻保存,用于代谢组分析。
表1 试验马匹具体信息表

Table 1 Test horse specific information table

样本编号
Sample number
马匹烙号(别征)
Horse branding (signature)
泌乳天数
Lactation days/d
挤奶次数
Milking times/次
乳脂率
Milk fat rate/%
HF1 50;AK 79 3 3.17
HF2 无烙号(红骝) 73 4 2.34
HF3 无烙号(红骝) 73 3 2.18
HF4 50;AK 79 4 2.08
HF5 无烙号(黑骝) 121 3 1.85
HF6 18/8;AK 84 3 1.84
LF1 8/13;AK 70 1 0.90
LF2 18/8;AK 84 1 0.89
LF3 19/1;AK 110 4 0.83
LF4 50;AK 79 1 0.77
LF5 40/13;AK 100 4 0.74
LF6 9/27;AK 70 3 0.72

1.2 乳成分测定

利用MilkoScan FT-3型多功能乳品分析仪(Foss Electric,丹麦)测定乳脂率及其他常规乳成分含量。

1.3 非靶向代谢组学分析

取100 μL血浆置于EP管中,加入400 μL的80%甲醇水溶液,涡旋振荡,冰浴静置5 min,在4 ℃条件下15 000×g离心20 min后,取一定量的上清加质谱级水稀释至甲醇含量为53%,离心后收集上清,预处理后进行液相色谱-质谱(LC-MS)检测。采用超高效液相色谱系统Vanquish UHPLC对处理后的样品进行色谱分离,色谱柱为Hypesil Gold column C18,具体色谱条件:柱温为40 ℃;流速为0.2 mL/min;正离子模式下流动相A为0.1%甲酸,流动相B为甲醇;负离子模式下流动相A为5 mmol/L醋酸铵(pH 9.0),流动相B为甲醇。色谱洗脱梯度程序见表2
表2 液相色谱中流动相的梯度洗脱程序

Table 2 Gradient elution procedure for mobile phases in liquid chromatography%

时间 Time/min 流动相A Mobile phase A 流动相B Mobile phase B
0 98 2
1.5 98 2
3.0 15 85
10.0 0 100
10.1 98 2
11.0 98 2
12.0 98 2

1.4 数据处理与分析

使用KEGG数据库(https://www.genome.jp/kegg/pathway.html)、HMDB数据库(https://hmdb.ca/metabolites)和LIPIDMaps数据(http://www.lipidmaps.org/)对鉴定到的代谢物进行注释。多元统计分析部分,使用代谢组学数据处理软件metaX对数据进行转换后再进行主成分分析(PCA)和偏最小二乘法判别分析(PLS-DA),进而得每个代谢物的变量投影重要度(VIP)。单变量分析部分,基于t检验来分析各代谢物在2组间的统计学显著性(P值),并计算代谢物在2组间的差异倍数(FC)。差异代谢物筛选的默认标准为VIP>1,P<0.05 且FC≥2.0或FC≤0.5。

2 结果与分析

2.1 QC样本的相关性分析

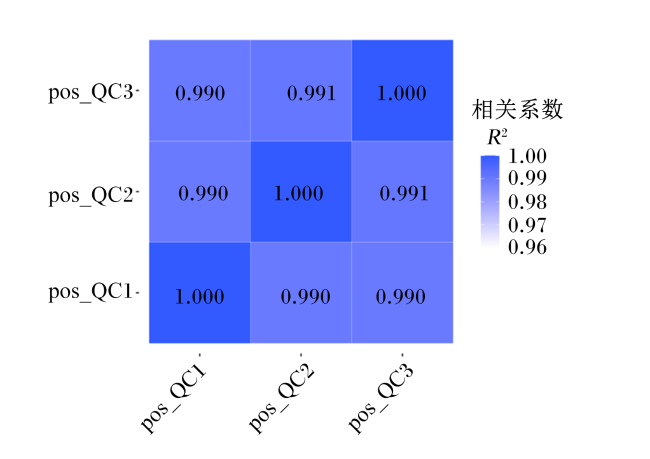
通过代谢物的相对定量值可以计算出QC样本之间的Pearson相关系数,对QC样本进行相关性分析(图1)分析,QC样本相关系数(R2)接近于1,说明整个检测过程稳定性好,数据质量高。
图1 QC样本相关性分析

Fig.1 Correlation analysis of QC samples

2.2 HF组与LF组哈萨克马血浆代谢物的PLS-DA

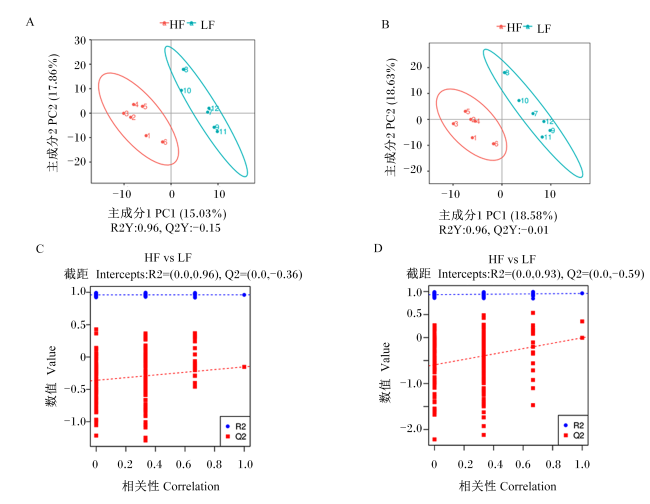
为了更好地评估HF组与LF组的血浆样本的差异,使用监督的PLS-DA进行区分。在正离子模式下,PLS-DA得分散点图(图2-A)显示R2Y=0.96、Q2Y=-0.15;在负离子模式下,PLS-DA得分散点图(图2-B)显示R2Y=0.96、Q2Y=-0.01。此模型中R2Y均高于0.5,Q2Y介于-0.15~1,表明此模型的解释率高,预测能力可以接受。进一步对正、负离子模式数据PLS-DA模型进行置换检验可以得出,在正离子模式下,Q2截距为-0.36(Q2<0)(图2-C);负离子模式下,Q2截距为-0.59(Q2<0)(图2-D)。以上模型Q2均小于1,表明PLS-DA模型未过度拟合,说明HF组和LF组哈萨克马血浆代谢物存在差异。
图2 不同乳脂率哈萨克马PLS-DA得分散点图及排序验证图

A:正离子模式下PLS-DA得分散点图;B:负离子模式下PLS-DA得分散点图;C:正离子模式下PLS-DA排序验证图;D:负离子模式下PLS-DA排序验证图。R2Y表示模型的解释率,Q2Y表示模型的预测能力。

Fig.2 PLS-DA score scatter plot and ranking verification plot of different milk fat percentage of Kazakh horses

A: PLS-DA score scatter plot in positive ion mode; B: PLS-DA score scatter plot in negative ion mode; C: PLS-DA ranking verification plot in positive ion mode; D: PLS-DA ranking verification plot in negative ion mode. R2Y represents the explanatory power of the model, and Q2Y represents the predictive power of the model.

2.3 HF组与LF组哈萨克马血浆差异代谢物的筛选

本试验在正离子模式下共鉴定到代谢物443个,负离子模式下共鉴定到代谢物321个。按照VIP>1,FC≥2.0或FC≤0.5且P<0.05的标准进行差异代谢物的筛选,HF组与LF组在正离子模式下有27个代谢物差异显著(P<0.05)(表3),在负离子模式下有26个代谢物差异显著(P<0.05)(表4)。
表3 HF组与LF组哈萨克马血浆差异代谢物(正离子模式)

Table 3 Differential metabolites in plasma of Kazakh horses in HF and LF groups (positive ion mode)

差异代谢物
Differential metabolites
保留时间
RT/min
差异倍数
FC
P
P-value
变量投影
重要度
VIP
上/下调
Up/down
regulation
氢溴酸西酞普兰 Citalopram hydrobromide 7.201 17.883 0.001 2.551 上调
D-高半胱氨酸 D-homocysteine 1.421 0.628 0.002 2.279 下调
1,2-二羟基十七碳-16-炔-4-基乙酸酯
1,2-dihydroxyheptadec-16-yn-4-yl acetate
7.961 4.962 0.004 2.233 上调
3-(甲磺酰基)-2H-色烯-2-酮
3-(methylsulfonyl)-2H-chromen-2-one
5.678 0.389 0.005 2.152 下调
苯丙胺 Papaverine 6.210 0.346 0.005 2.212 下调
甜菜碱 Betaine 1.312 0.404 0.012 2.125 下调
3-(1-苄基哌啶-4-基)-3H-[1,2,3]三唑并[4,5-b]吡啶
3-(1-benzylpiperidin-4-yl)-3H-[1,2,3]triazolo[4,5-b]pyridine
5.442 0.471 0.013 2.069 下调
1,7-双(4-羟基苯基)庚-3-酮
1,7-bis(4-hydroxyphenyl)heptan-3-one
6.034 2.020 0.014 2.010 上调
DL-3-羟基犬尿氨酸 DL-3-hydroxy-kynurenine 2.075 0.545 0.016 1.931 下调
(1S,2S,3R,5S)-3-[7-[[(1R,2S)-2-(3,4-二氟苯基)环
丙基]氨基]-5-丙硫基三唑并[4,5-d]嘧啶-3-基]-5-
(2-羟乙氧基)-1,2-环戊二醇 WMH
8.776 0.699 0.017 1.963 下调
多杀菌素A Spinosyn A 10.554 1.556 0.017 2.053 上调
(±)8-环氧乙烷 (±)8-HEPE 7.585 2.839 0.021 2.008 上调
AL 8810甲酯 AL 8810 methyl ester 6.905 0.537 0.023 1.902 下调
D-赤式-1-磷酸鞘氨醇
D-erythro-sphingosine-1-phosphate
8.423 1.436 0.023 1.896 上调
L-羟基脯氨酸 L-hydroxyproline 5.131 1.837 0.025 1.838 上调
生物素 Biotin 4.865 0.426 0.026 1.923 下调
D-果糖-6-磷酸 D-fructose-6-phosphate 5.601 0.649 0.032 1.792 下调
2-[(3S)-1-(3,4-二氟苄)-3-吡咯烷基]-1,3-苯并恶唑
2-[(3S)-1-(3,4-difluorobenzyl)-3-pyrrolidinyl]-
1,3-benzoxazole
6.092 1.831 0.033 1.767 上调
XLR11 N-(2-氟戊基)异构体
XLR11 N-(2-fluoropentyl) isomer
5.521 0.529 0.033 1.772 下调
L-麦角硫因 L-ergothioneine 1.393 1.513 0.041 1.840 上调
磷脂酰胆碱 PC 19∶2_18∶5 10.531 1.577 0.041 1.695 上调
聚碳酸酯 PC O-38∶2 11.814 0.412 0.042 1.823 下调
3-氧代-3-(1H-吡唑-5-基氨基)丙酸乙酯
ethyl 3-oxo-3-(1H-pyrazol-5-ylamino) propanoate
1.313 0.679 0.045 1.707 下调
L-焦谷氨酸 L-pyroglutamic acid 2.165 0.647 0.045 1.678 下调
2-脱氧尿嘧啶核苷-5'-单磷酸二钠盐 dUMP 1.857 1.411 0.045 1.684 上调
2-羟基-6-[(8Z,11E)-8,11-十五烷烯-1-基]苯甲酸
2-hydroxy-6-[(8Z,11Z)-pentadeca-8,11,14-trien-1-yl]
benzoic acid
9.217 1.569 0.047 1.681 上调
L-(+)-瓜氨酸 L-(+)-citrulline 1.310 0.636 0.049 1.674 下调
表4 HF组与LF组哈萨克马血浆差异代谢物(负离子模式)

Table 4 Differential metabolites in plasma of Kazakh horses in HF and LF groups (negative ion mode)

差异代谢物
Differential metabolites
保留时间
RT/min
差异倍数
FC
P
P-value
变量投影
重要度
VIP
上/下调
Up/down
regulation
血栓素B2 Thromboxane B2 6.235 9.914 0.001 2.195 上调
11-酮睾酮(CRM) 11-keto testosterone (CRM) 7.207 13.302 0.001 2.174 上调
12-epi白三烯-B4 12-epi leukotriene B4 7.580 3.661 0.001 2.172 上调
5-羟基吲哚-3-乙酸 5-hydroxyindole-3-acetic acid 5.081 3.673 0.002 2.074 上调
8,15-二乙烯 8,15-dihete 7.420 5.066 0.002 2.123 上调
脱氧胞苷 Deoxycytidine 1.382 1.965 0.003 2.063 上调
11,12-环氧-(5Z,8Z,11Z)-二十碳三烯酸
11,12-epoxy-(5Z,8Z,11Z)-icosatrienoic acid
7.966 4.578 0.004 1.997 上调
麦角硫因 Ergothioneine 1.385 1.892 0.004 2.042 上调
3'-腺苷酸单磷酸 3'-AMP 5.213 1.534 0.005 1.955 上调
2-羟基十四烷酸 2-hydroxymyristic acid 6.998 1.267 0.005 2.013 上调
脂多糖18∶0 LPS 18∶0 10.412 2.779 0.011 1.865 上调
(+/-)-雌马酚 (+/-)-equol 7.323 1.251 0.012 1.834 上调
3-(1-氰基-1,2-二氢异喹啉-2-基)-3-丙酰丙酸酯
3-(1-cyano-1,2-dihydroisoquinolin-2-yl)-3-oxopropyl propionate
10.396 1.567 0.017 1.818 上调
前列腺素 Prostaglandins 6.983 3.493 0.020 1.832 上调
二磷酸肌苷 IDP 5.529 2.074 0.024 1.668 上调
7-甲基黄嘌呤 7-methylxanthine 7.593 1.630 0.025 1.687 上调
花生四烯酸 Arachidonic acid 9.756 2.060 0.028 1.734 上调
8Z,11Z,14Z-二十烷三烯酸甲酯 8Z,11Z,14Z-eicosatrienoic acid 10.177 1.511 0.030 1.693 上调
犬尿喹啉酸 Kynurenic acid 5.195 3.092 0.030 1.655 上调
尿酸 Uric acid 1.822 1.258 0.032 1.677 上调
二十二碳五烯酸 DHA 9.981 1.295 0.034 1.593 上调
2-异丙基丙二酸酯 2-isopropylmalate 5.412 0.633 0.034 1.626 下调
N-[6-[4-(叔丁基)苯氧基]-3-吡啶基]-4-(三氟甲基)苯甲酰胺
N-[6-[4-(tert-butyl)phenoxy]-3-pyridinyl]-4-
(trifluoromethyl)benzamide
5.183 2.066 0.040 1.574 上调
(9Z)-12,13-二羟基-9-十八烷基酸(+/-)12(13)-DiHOME 7.733 0.823 0.044 1.515 下调
19-去甲睾酮 19-nortestosterone 6.090 3.633 0.048 1.566 上调
硫酸雌酮 Estrone sulfate 5.967 2.912 0.048 1.682 上调

2.4 HF组与LF组哈萨克马血浆差异代谢物的聚类分析

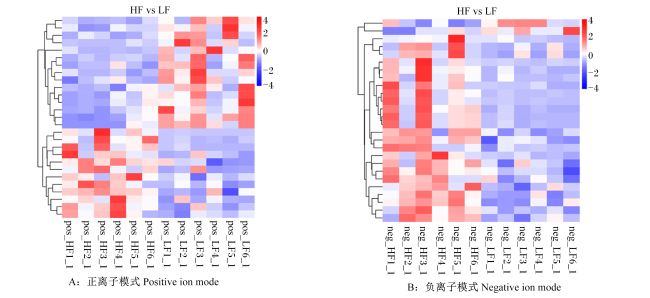
使用R包Pheatmap对差异代谢物进行聚类分析并绘制聚类热图(图3),聚类热图直观展示了HF组与LF组间差异代谢物浓度的变化;聚类热图显示,HF组和LF组的数据都可以很好地聚集在一起,表示试验样本组内无明显差异,相似代谢物的聚集效果良好。
图3 HF组与LF组哈萨克马血浆差异代谢物的聚类热图

Fig.3 Cluster heat map of plasma differential metabolites of Kazakh horses in HF and LF groups

2.5 KEGG代谢通路分析

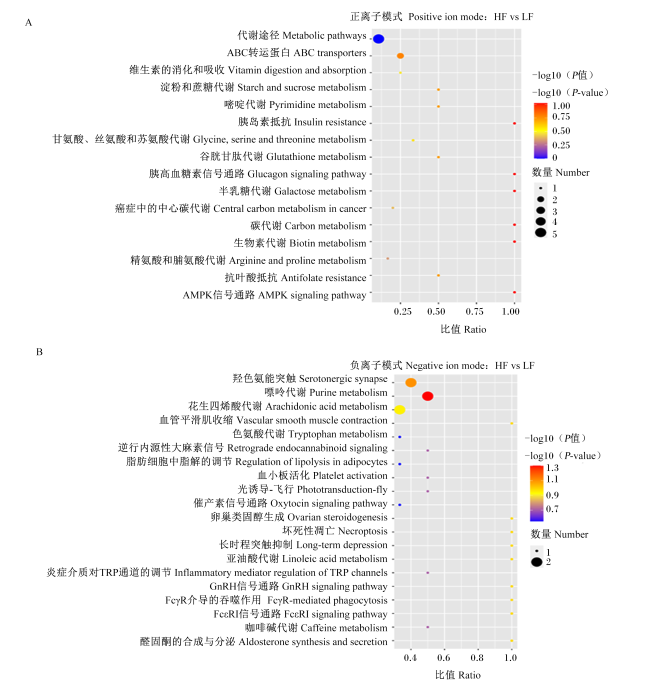
对正、负离子模式下53种差异代谢物进行KEGG代谢通路富集分析,由图4可知,差异代谢物主要富集在花生四烯酸代谢、亚油酸代谢、嘌呤代谢、半乳糖代谢及甘氨酸、丝氨酸和苏氨酸代谢等途径。
图4 HF与LF组哈萨克马血浆代谢物KEGG富集气泡图

A:正离子模式下KEGG通路富集气泡图 bubble chart of KEGG pathway enrichment in positive ion mode;B:负离子模式下KEGG通路富集气泡图 bubble chart of KEGG pathway enrichment in negative ion mode。

Fig.4 KEGG enrichment bubble diagram of Kazakh horse plasma metabolites in HF and LF groups

3 讨论

3.1 不同乳脂率哈萨克马脂质代谢分析

本试验中,HF组和LF组哈萨克马之间血浆中最多的差异代谢物是脂类代谢物,其中,HF组中D-赤式-1-磷酸鞘氨醇、花生四烯酸、前列腺素和5-羟基吲哚-3-乙酸含量高于LF组。鞘磷脂和甘油磷酰胆碱均由磷脂酰胆碱合成,当乳中鞘磷脂浓度升高时,甘油磷酰胆碱浓度下降[9]。有研究表明,相同饲粮条件下,高乳脂率奶牛血浆中植物鞘氨醇的浓度显著高于低乳脂率奶牛[10]。这与本研究的结果一致,这表明血液中的鞘氨醇在被催化生成鞘氨醇1-磷酸后参与到多种信号转导途径用于乳腺中脂肪的合成,血液中的磷脂酰胆碱是乳腺的细胞能量来源,可以提升甘油磷酸胆碱和游离脂肪酸的浓度,从而促进甘油三酯的合成。花生四烯酸是ω-6多不饱和脂肪酸,在生物体内主要是以磷脂的形式存在于细胞膜中[11],主要与肝脏糖类、脂质代谢紊乱有密切的关系[12]。本研究发现,HF组哈萨克马血浆中花生四烯酸的浓度显著高于LF组,这说明花生四烯酸在机体肝脏糖类、脂质代谢稳定调节中发挥了重要作用。前列腺素是一种十分重要的脂质介质,可在提高仔猪活力及母猪产奶质量方面发挥重要作用[13]。有学者发现,前列腺素及其类似物不仅有利于母猪产后子宫的修复,还可以预防子宫炎-乳腺炎-无乳综合征(mastitismetritis-agalactia,MMA)的发生[14]。有研究表明,前列腺素可以降低母猪子宫炎症的发生,还可以改善母猪的泌乳能力、增强仔猪活力等[15]。本研究发现,HF组哈萨克马血浆中前列腺素的浓度显著低于LF组,表明前列腺素可以提高马匹的产奶量,从而降低马乳中脂肪的含量。HF组哈萨克马血浆中5-羟基吲哚-3-乙酸的浓度显著高于LF组。有研究表明,乙酸可以通过改变固醇调控元件结合蛋白1和过氧化物酶增殖物激活受体γ的mRNA表达情况,增加脂肪酸合成相关酶的表达水平来促进乳脂的合成[16]。研究表明,血液中的3'-腺苷酸单磷酸能够促进乳腺中乳脂的合成,并为其提供能量,从而增加体内游离脂肪酸的含量,有利于甘油三酯的合成[17]。本研究发现,HF组哈萨克马血浆中3'-腺苷酸单磷酸的浓度显著高于LF组,说明哈萨克马血浆中3'-腺苷酸单磷酸的合成增多可以导致乳中脂肪含量的升高。

3.2 不同乳脂率哈萨克马糖类代谢分析

生物素作为葡萄糖激酶(GK)、磷酸烯醇丙酮酸羧激酶(PEPCK)、磷酸果糖激酶(PEK)、丙酮酸激酶(PK)等关键酶的活化因子,是三羧酸循环不可缺少的成分[18],生物素主要通过参与糖酵解和糖原异生途径诱导胰岛素分泌来维持血糖稳定。有研究表明,当机体生物素缺乏时,会导致丙酮酸不能异生为葡萄糖[19]。有学者发现,生物素通过降低高果糖诱导代谢综合征小鼠血清中低密度脂蛋白胆固醇、甘油三酯和游离脂肪酸的浓度提高血糖水平和胰岛素耐受性[20]。本研究发现,HF组哈萨克马血浆中生物素的浓度显著低于LF组,说明高乳脂率哈萨克马血液中的生物素通过参与胰高血糖素信号通路降低了血糖水平。抵抗素是由脂肪细胞和巨噬细胞产生,可以促进脂肪的分解,其中D-高半胱氨酸在抵抗素中含量较高[21]。有研究发现,在肥胖小鼠体内血清抵抗素的浓度与体内胰岛素抵抗浓度呈正相关关系[22]。有研究在巴马香猪体内注入不同浓度的抵抗素,结果表明,高浓度抵抗素组猪血清中总胆固醇的浓度低于低浓度抵抗素组[23]。这与本研究结果相似,HF组哈萨克马血浆中D-高半胱氨酸的浓度显著低于LF组,说明抵抗素对甘油三酯分解成脂肪酸和甘油具有促进作用,从而降低了LF组哈萨克马乳中脂肪的含量。

3.3 不同乳脂率哈萨克马氨基酸代谢分析

氨基酸在蛋白质的合成和分解中起到关键作用,是动物机体内必需的营养成分,在机体的脑发育、神经系统、脂质和糖类代谢等生理功能中均起到重要作用[24]。有研究发现,牛初乳中脯氨酸的含量显著高于常乳,并且脯氨酸对新生牛犊生命早期的生存有一定的促进作用[25]。本研究发现,HF组哈萨克马血浆中L-羟基脯氨酸的浓度显著高于LF组,说明母体内的脯氨酸可以通过血液参与乳脂的合成。色氨酸在机体内的代谢途径主要有犬尿氨酸途径、血清素途径和吲哚途径,最终代谢产物以烟酸、二氧化碳、喹啉和黄尿酸等形式呈现[26]。有研究发现,在饲粮中添加色氨酸可以显著降低小鼠血清中尿素和胆固醇的含量[27]。本研究发现,与HF组相比,LF组哈萨克马血浆中犬尿喹啉酸的浓度显著降低,说明犬尿喹啉酸在促进乳脂合成方面存在某些关键作用。甜菜碱又称三甲基甘氨酸,具有提高生长速度、改善肉质、提高抗应激能力、改善免疫功能和提高氧化能力等功能,对于脂肪代谢的调控作用尤为明显。有研究发现,甜菜碱可以通过提高血浆脂联素的浓度诱导肝细胞腺苷酸激活蛋白激酶(AMPK)的激活,从而抑制糖酵解和脂肪合成等过程中的关键酶的激活。在生长猪饲粮中添加甜菜碱,可以提高血浆中生长激素、胰岛素样生长因子-Ⅰ和胰岛素等的浓度,通过加强脂肪的降解来减少脂肪的沉积[28]。这与本研究结果一致,HF组哈萨克马血浆中甜菜碱的浓度显著低于LF组,说明甜菜碱在哺乳动物脂肪组织分解过程中起到关键作用。

3.4 不同乳脂率哈萨克马其他成分代谢分析

核苷酸及其衍生物在机体内种类分布广泛,是构成DNA和RNA的主要基础,对细胞的增值和分化具有重要作用。有研究表明,乳中高浓度的核苷酸可以影响脂肪酸代谢[29]。尿酸是嘌呤核苷酸的代谢产物,可以通过影响线粒体形态及功能促进线粒体氧化应激增加,从而增加脂肪的合成[30]。有研究发现,牛乳中的尿酸含量与奶牛泌乳量呈线性正相关关系[31]。张涛等[32]的研究发现,亚急性瘤胃酸中毒(SARA)易感组奶牛乳脂的合成能力显著低于SARA耐受组奶牛。本研究发现,HF组哈萨克马血浆中尿酸的浓度显著高于LF组,说明高乳脂率哈萨克马血液中的尿酸促进了马乳中脂肪的合成。生物素是动物机体维持正常生理活动所必需的维生素之一,参与动物生长、发育、繁殖等生命活动,在动物脂肪、蛋白质等代谢过程中发挥着重要的作用[33]

4 结论

本试验从高、低乳脂率哈萨克马血浆中共检测出53种差异代谢物,通过对不同乳脂率哈萨克马血浆代谢物进行分析发现,高乳脂率哈萨克马血浆中花生四烯酸、D-赤式-1-磷酸鞘氨醇、前列腺素、5-羟基吲哚-3-乙酸、血栓素B2和尿酸等36种物质的浓度显著高于低乳脂率哈萨克马,它们可通过乳腺合成甘油三酯,而L-焦谷氨酸、D-果糖-6-磷酸、生物素和D-高半胱氨酸等17种物质的浓度显著低于低乳脂率哈萨克,涉及的代谢通路有花生四烯酸代谢、亚油酸代谢、嘌呤代谢、半乳糖代谢及甘氨酸、丝氨酸和苏氨酸代谢等。本研究结论筛选出的高乳脂率哈萨克马血浆中的标志代谢物可为乳用马的选育以及后续代谢物机制的研究奠定理论基础。
[1]
MALACARNE M, MARTUZZI F, SUMMER A, et al. Protein and fat composition of mare’s milk:some nutritional remarks with reference to human and cow’s milk[J]. International Dairy Journal, 2002, 12(11):869-877.

[2]
姚新奎. 伊犁马、新吉马及其杂交马乳理化指标、泌乳特性初步研究[D]. 博士学位论文. 乌鲁木齐: 新疆农业大学, 2011.

YAO X K. Preliminary study on chemical-physical indicators of mare’s milk and lactation characteristics of Yili horse,new Kirgiz horse and hybrid horse and hybrid horse[D]. Ph.D.Thesis. Urumqi: Xinjiang Agricultural University, 2011. (in Chinese)

[3]
杨茉莉, 樊凌翰. 马奶成分分析及开发利用现状[J]. 陕西农业科学, 2001, 47(1):13-14,25.

YANG M L, FAN L H. Present situation on exploitation and utilization and component analysis of horse milk[J]. Shaanxi Journal of Agricultural Sciences, 2001, 47(1):13-14,25. (in Chinese)

[4]
格明古丽·木哈台. 哈萨克马生产性能比较分析[J]. 中国草食动物, 2011, 31(2):69-71.

MUHATAI G M G L. Comparative analysis of the production performance of Kazakh horses[J]. China Herbivore Science, 2011, 31(2):69-71. (in Chinese)

[5]
刘玲玲, 吕士鹏, 方超, 等. 哈萨克马泌乳曲线的拟合研究[J]. 中国畜牧杂志, 2020, 56(8):91-94.

LIU L L, LYU S P, FANG C, et al. Study on the fitting of the lactation curve of Kazakh horse[J]. Chinese Journal of Animal Science, 2020, 56(8):91-94. (in Chinese)

[6]
沈子亮, 王全, 曹辉, 等. 不同乳脂率奶牛瘤胃微生物及其代谢物差异分析[J]. 动物营养学报, 2022, 34(5):3000-3011.

DOI

SHEN Z L, WANG Q, CAO H, et al. Differential analysis of rumen microbes and their metabolites for dairy cows with different milk fat percentages[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):3000-3011. (in Chinese)

DOI

[7]
王影, 文亮, 母童, 等. 荷斯坦牛高、低乳脂率牛乳代谢组分析[J]. 畜牧兽医学报, 2022, 53(5):1396-1408.

DOI

WANG Y, WEN L, MU T, et al. Metabolomic analysis of milk from Holstein cows with high and low milk fat percentage[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(5):1396-1408. (in Chinese)

DOI

[8]
孙睿凡. 基于代谢组学和乳成分分析研究大足黑山羊乳及其影响因素[D]. 硕士学位论文. 重庆: 西南大学, 2023.

SUN R F. Study of Dazu black goat milk and its influencing factors based on metabolomics and milk composition analysis[D]. Master’s Thesis. Chongqing: Southwest University, 2023. (in Chinese)

[9]
LU J, BOEREN S, VAN HOOIJDONK T, et al. Effect of the DGAT1 K232A genotype of dairy cows on the milk metabolome and proteome[J]. Journal of Dairy Science, 2015, 98(5):3460-3469.

DOI PMID

[10]
SONNWEBER T, PIZZINI A, NAIRZ M, et al. Arachidonic acid metabolites in cardiovascular and metabolic diseases[J]. International Journal of Molecular Sciences, 2018, 19(11):3285.

[11]
VESHKINI A, HAMMON H M, VOGEL L, et al. Liver proteome profiling in dairy cows during the transition from gestation to lactation:effects of supplementation with essential fatty acids and conjugated linoleic acids as explored by PLS-DA[J]. Journal of Proteomics, 2022,252:104436.

[12]
范潇, 何国威, 黄薇, 等. 体外催化花生四烯酸生产前列腺素F2α[J/OL]. 中国油脂:1-11[2023-12-01].https://doi.org/10.19902/j.cnki.zgyz.1003-7969.220662. DOI:10.19902/j.cnki.zgyz.1003-7969.220662.

FAN X, HE G W, HUANG W, et al. In vitro production of prostaglandin F2α using arachidonic acid[J/OL]. China Oils and Fats:1-11[2023-12-01].https://doi.org/10.19902/j.cnki.zgyz.1003-7969.220662. DOI:10.19902/j.cnki.zgyz.1003-7969.220662. (in Chinese)

[13]
王秀锦, 张军, 周维. 前列腺素在养猪生产上的应用[J]. 国外畜牧学(猪与禽), 2021, 41(5):43-44.

WANG X J, ZHANG J, ZHOU W, et al. Application of prostaglandin in pig production[J]. Animal Science Abroad (Pigs and Poultry), 2021, 41(5):43-44. (in Chinese)

[14]
徐立仁, 康爱梅, 庄景新, 等. 律胎素降低产后“不洁猪”发生比率的试验[J]. 畜牧与兽医, 1999, 31(5):27.

XU L R, KANG A M, ZHUANG J X, et al. Experiment on reducing the incidence of postpartum‘unclean pig’by progestin[J]. Animal Husbandry & Veterinary Medicine, 1999, 31(5):27. (in Chinese)

[15]
SCHALLER J P, KUCHAN M J, THOMAS D L, et al. Effect of dietary ribonucleotides on infant immune status.Part 1:humoral responses[J]. Pediatric Research, 2004, 56(6):883-890.

[16]
ZHAO Y L, GUO X Y, YAN S M, et al. Acetate regulates milk fat synthesis through the mammalian target of rapamycin/eukaryotic initiation factor 4E signaling pathway in bovine mammary epithelial cells[J]. Journal of Dairy Science, 2021, 104(1):337-345.

DOI PMID

[17]
侯昆. 青蒿素对奶牛乳汁代谢物的影响及其调控机制的研究[D]. 硕士学位论文. 北京: 北京农学院, 2020.

HOU K. The effect and mechanism of artemisinin on milk metabolites in dairy cows[D]. Master’s Thesis. Beijing: Beijing University of Agriculture, 2020. (in Chinese)

[18]
DAKSHINAMURTI K, LI W. Transcriptional regulation of liver phosphoenolpyruvate carboxykinase by biotin in diabetic rats[J]. Molecular and Cellular Biochemistry, 1994, 132(2):127-132.

PMID

[19]
KUROISHI T, SUGAWARA S. Metabolomic analysis of liver from dietary biotin deficient mice[J]. Journal of Nutritional Science and Vitaminology, 2020, 66(1):82-85.

DOI PMID

[20]
SONE H, KAMIYAMA S, HIGUCHI M, et al. Biotin augments acetyl CoA carboxylase 2 gene expression in the hypothalamus,leading to the suppression of food intake in mice[J]. Biochemical and Biophysical Research Communications, 2016, 476(3):134-139.

[21]
STEPPAN C M, BAILEY S T, BHAT S, et al. The hormone resistin links obesity to diabetes[J]. Nature, 2001, 409(6818):307-312.

[22]
LIU Y, WANG Q, PAN Y B, et al. Effects of over-expressing resistin on glucose and lipid metabolism in mice[J]. Journal of Zhejiang University Science B, 2008, 9(1):44-50.

DOI PMID

[23]
白翠玲, 罗丹, 刘艳芬, 等. 抵抗素成熟肽的制备及其对猪葡萄糖和脂肪代谢的影响[J]. 动物医学进展, 2013, 34(11):46-50.

BAI C L, LUO D, LIU Y F, et al. Preparation of resistin mature peptide and its effect on glucose and fat metabolism in pigs[J]. Progress in Veterinary Medicine, 2013, 34(11):46-50. (in Chinese)

[24]
付力立. 基于代谢组学研究奶牛初乳与常乳组分差异及补饲酵母硒的影响[D]. 硕士学位论文. 成都: 四川农业大学, 2019.

FU L L. Differential metabolome between colostrum and normal milk in dairy cows and effects of supplementary yeast selenium-based on metabonomics[D]. Master’s Thesis. Chengdu: Sichuan Agricultural University, 2019. (in Chinese)

[25]
郭延生, 陶金忠. 基于LC-Q/TOF-MS代谢组学方法筛选奶牛妊娠识别阶段乳样生物标志物的研究[J]. 畜牧兽医学报, 2018, 49(8):1633-1641.

GUO Y S, TAO J Z. Selection of milk biomarkers of pregnancy recognition in dairy cows based on LC-Q/TOF-MS metabolomics[J]. Acta Veterinaria et Zootechnica Sinica, 2018, 49(8):1633-1641. (in Chinese)

DOI

[26]
苏美丞. 不同加工工艺奶产品脂肪酸及色氨酸代谢物差异研究[D]. 硕士学位论文. 北京: 中国农业科学院, 2020.

SU M C. Study on differences of fatty acids and tryptophan metabolites in milk products with different processing technology[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2020. (in Chinese)

[27]
RUAN Z, YANG Y H, WEN Y M, et al. Metabolomic analysis of amino acid and fat metabolism in rats with L-tryptophan supplementation[J]. Amino Acids, 2014, 46(12):2681-2691.

[28]
阳金金. 甜菜碱对脂多糖刺激仔鹅生长性能、免疫及抗氧化功能的影响[D]. 硕士学位论文. 扬州: 扬州大学, 2021.

YANG J J. Effects of betaine on growth performance,immune and antioxidant function of goslings challenged by lipopolysaccharide[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2021. (in Chinese)

[29]
LU J, ANTUNES FERNANDES E, PÁEZ CANO A E, et al. Changes in milk proteome and metabolome associated with dry period length,energy balance,and lactation stage in postparturient dairy cows[J]. Journal of Proteome Research, 2013, 12(7):3288-3296.

[30]
SANCHEZ-LOZADA L G, ANDRES-HERNANDO A, GARCIA-ARROYO F E, et al. Uric acid activates aldose reductase and the polyol pathway for endogenous fructose and fat production causing development of fatty liver in rats[J]. Journal of Biological Chemistry, 2019, 294(11):4272-4281.

[31]
GÜLER Z, KESKĪN M, DURSUN A, et al. Effects of waiting period before milking on orotic,uric and hippuric acid contents of milks from Shami and Kilis goats[J]. Tarīm Bilimleri Dergisi, 2018, 24(2):170-178.

[32]
张涛, 牟英玉, 亓王盼, 等. 亚急性瘤胃酸中毒耐受性不同的奶牛血浆和乳中脂肪酸及代谢物组成分析[J]. 草业学报, 2021, 30(7):101-110.

DOI

ZHANG T, MU Y Y, QI W P, et al. Analysis of plasma and milk fatty acid and metabolite composition in lactating dairy cows with differing tolerance to subacute ruminal acidosis[J]. Acta Prataculturae Sinica, 2021, 30(7):101-110. (in Chinese)

DOI

[33]
RIVERON-NEGRETE L, FERNANDEZ-MEJIA C. Pharmacological effects of biotin in animals[J]. Mini Reviews in Medicinal Chemistry, 2017, 17(6):529-540.

Outlines

/