REVIEW

Research Progress on Digestive Kinetics Characteristics of Macronutrients in Monogastric Animals

  • KOU Zehua ,
  • FAN Yueli ,
  • HAN Rui ,
  • CHE Dongsheng , *
Expand
  • Jilin Provincial Swine Industry Technical Innovation Center, Jilin Provincial Key Laboratory of Animal Nutrition and Feed Science, Key Laboratory of Animal Production and Product Quality and Safety, Ministry of Education, College of Animal Science and Technology, Jilin Agricultural University, Changchun 130118, China

Received date: 2024-01-05

  Online published: 2024-07-09

Abstract

At present, the precision feeding technology represented by the digital model has gradually become one of the mainstream technologies in animal husbandry. The digestive kinetics characteristics of diet and raw materials can reflect the potential of feed nutrition value multidimensional and quantitatively to a certain extent, and can be used to reveal the relationship between the nutrient composition of feed and the endogenous rational changes of animal digestive tract during digestion, and provide dynamic parameters for the establishment of precise feeding models. The purpose of this paper is to analyze the factors affecting the digestive characteristics and digestive kinetics of macronutrients. By reviewing the research progress of macronutrient enzymatic reaction kinetics, chyme transport kinetics, chyme fermentation kinetics and digestible nutrient absorption kinetics, the focus of current research on digestive kinetics of monogastric animals and the problems to be solved are expounded. The application prospect of this method in the research of precision feeding of single stomach animals in the future was prospected, in order to provide reference for the realization of precision nutrition regulation and production performance prediction in the field of single stomach animal production.

Cite this article

KOU Zehua , FAN Yueli , HAN Rui , CHE Dongsheng . Research Progress on Digestive Kinetics Characteristics of Macronutrients in Monogastric Animals[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4094 -4102 . DOI: 10.12418/CJAN2024.351

精准饲养(precision livestock feeding,PLF)是指将饲料所含营养物质与家畜机体需要的营养物质进行精确匹配,用以满足两者之间“供需”关系,以提高饲料资源的利用效率[1-2]。现阶段饲料评价体系大多以“静态”的固定数据的形式,呈现各种大宗饲料原料的营养成分含量和消化率,如荷兰中央畜牧局(centraal veevoederbureau,CVB)标准、法国农业科学研究院(national institute for agricultural research,INRA)标准、美国国家科学研究委员会(united states national research council,NRC)标准、中国国家标准《猪营养需要量》(GB/T 39235—2020)等。然而,饲料原料的产地、品种、加工工艺的差异均会影响不同饲料原料甚至同种饲料原料的不同样本,使其营养物质的消化特性和利用率存在着明显差异;单胃动物的不同品种、健康状态以及个体差异也可能导致对不同饲料原料甚至同种饲料原料营养物质消化能力的差异。这些差异均可能使饲料原料的“静态”数据应用效果与理论值存在偏差。因此,关于不同饲料原料的营养潜力和单胃动物营养需要的“动态”特征性数据是实现精准饲养的必要条件。这意味着,实时监测与精准调控消化进程中各营养物质在不同时间节点内动态酶解特征需要纳入测量范围中。这需要通过大量的动物体内、体外试验数据以弥补“静态”数据的不足,最终建立用于模拟单胃动物生长、代谢和营养物质利用的“动态”数学模型。
消化动力学(digestion kinetics)是通过对不同营养物质消化率随时间变化的动力学建模(包括线性、多项指数和非指数模型)所获得的计算特征,用以客观分析消化的速率及其影响因素的方法[3]。其主要目的是定量揭示饲料原料营养物质在动物胃肠道内的消化、吸收和在体内的利用关系[4]。动物的消化方式包括物理消化、化学消化和微生物消化3种,单胃动物的微生物消化主要集中在后肠部分,因此饲料原料在单胃动物后肠部分的动力学也被描述为发酵动力学(fermentation kinetics)。常量营养物质消化动力学特征的研究可以进一步构建饲料原料与家畜机体之间“动态”的“供需”关系,为建立更精准的单胃动物消化机理模型和饲料原料营养潜力预测模型提供动态参数。本文旨在分析影响常量营养物质的消化特性和消化动力学特征的因素,通过综述常量营养物质的酶促反应动力学、食糜转运动力学、食糜发酵动力学和可消化营养物质吸收动力学4个方面的研究进展,阐述目前单胃动物消化动力学研究的侧重角度以及亟待解决的问题,对消化动力学特征参数在未来单胃动物精准饲养研究中的应用前景进行展望,以期为未来在单胃动物生产领域中实现精准营养调控和生产性能预测提供参考。

1 常量营养物质的消化特征

常量营养物质(碳水化合物、蛋白质和脂类)是维持细胞稳态、代谢和蛋白质合成所必需的能量和氨基酸的来源[5-6]。碳水化合物、蛋白质和脂类3类常量营养物质内均包含着众多不同分子大小和结构复杂的化合物,根据分类方式的不同,这些化合物分属于不同种类,不同种类化合物之间的消化特征可能也存在着明显差异,如碳水化合物由单糖、二糖、低聚糖和多糖等组成。

1.1 碳水化合物(糖类)

碳水化合物主要由单糖、二糖、低聚糖、多糖和共轭碳水化合物组成,碳水化合物的分类方法众多,尤其是对多糖的划分,根据其自身的生理作用角度进行划分,多糖可分为营养性多糖(淀粉、菊糖和糖原等)和结构性多糖(纤维素、几丁质等);根据其营养性可分为储存多糖(主要为淀粉)和非淀粉多糖(non-starch polysaccharides,NSP),其中,根据化学结构的不同,淀粉可分为直链淀粉(amylose,AM)和支链淀粉(amylopection,AMP)[7],在植物的块茎和根茎中,直链淀粉占淀粉种类的10%~38%[8];根据其组成的单体糖基是否相同,可分为由同种的单体糖基组成的同聚多糖(淀粉、纤维素、糖原、几丁质等)和杂聚多糖(半纤维素等)。淀粉作为多糖的代表,食物基质(膨化大麦)中约有10%的淀粉被猪唾液-α-淀粉酶转化为葡萄糖、麦芽糖和麦芽三糖[9]。人的十二指肠胰-α-淀粉酶将过胃食糜剩余的大部分淀粉水解为麦芽糖、麦芽三糖和α-限制性糊精[10-11]。这些产物与部分二糖、低聚糖和多糖通过胰淀粉酶和刷状边界酶进一步水解为单糖后被小肠上皮吸收利用[10-11]。根据所需消化时长的不同,淀粉可分为快消化淀粉(rapidly digestible starch,RDS)(在体外消化模拟时20 min内被消化的淀粉)、慢消化淀粉(slowly digestible starch,SDS)(在体外消化模拟时20~120 min被消化的淀粉)[12]。研究表明,在体外模拟条件下,10种谷物产品基质中RDS的消化率为23.4%~76.9%,SDS的消化率为0.8%~24.2%[13]。消化道前段中未被消化吸收的营养性多糖和结构性多糖则被大肠内的微生物发酵为挥发性脂肪酸(volatile fatty acid,VFA)、二氧化碳和甲烷,用以进一步的消化和吸收。在小肠中不被酶水解,但可以在结肠中发酵产生短链脂肪酸的淀粉被称为抗性淀粉(resistant starch,RS)[14]。不同的NSP在大肠中的发酵产物也存在显著差异。研究表明,在体外条件下发酵,阿拉伯木聚糖和β-葡聚糖可产生醋酸盐和乳酸,纤维素的发酵率和产气量低于阿拉伯木聚糖和β-葡聚糖,pH则高于阿拉伯木聚糖和β-葡聚糖[15]

1.2 蛋白质

蛋白质是由氨基酸以共价多肽链的方式形成的生物大分子物质,蛋白质的种类极其丰富,通过区分是否含有非蛋白质的辅基和配基,可以将蛋白质分为简单蛋白质和结合蛋白质。在蛋白质的消化进程中,酶切位点的区别导致了蛋白酶之间存在极强的特异性[16]。胃蛋白酶特异性地切割疏水和芳香族残基之间的肽键[17],将蛋白质切分为多肽,而胰酶主要遵循“Keil规则”[18],选择精氨酸或赖氨酸旁的肽键进行切割,将多肽分割为可吸收的小肽和游离氨基酸[19-20],聚合度较大的肽也可由位于刷状缘的氨基肽酶进一步水解[21]。受酶特异性的影响,不同饲粮中蛋白质的酶解效率存在显著差异[22-23]。这将导致氨基酸动态释放模式存在差异,而氨基酸释放的同步性将会对氮的生物利用度造成显著影响[24]。研究表明,氨基酸动态释放规律不同的饲粮在单胃动物氮素的吸收和代谢效果上存在差异[25]。因此,Boirie等[26]根据餐后7 h血液中净亮氨酸的平衡性分别将乳清蛋白(whey protein,WP)和酪蛋白(casein,CAS)归类为“快消化蛋白质”和“慢消化蛋白质”。单胃动物对蛋白质的消化和吸收主要集中在回肠末端之前,未被小肠消化的蛋白质在大肠部分被微生物种群用于其自身的蛋白质合成和分解代谢,产生菌体蛋白、生物胺、酚、吲哚、硫化氢、氨、短链脂肪酸和支链脂肪酸等产物[27]

1.3 脂类

脂类是对溶于脂溶性溶剂所有物质的统称,包括脂肪(真脂)和类脂。脂类是所有细胞膜的关键结构成分,对脂溶性维生素的吸收也是必不可少的[28]。脂类是机体长期储存能量的形式,单位质量的脂类所含的能量是蛋白质的1.7倍[29]。由于脂类属于非极性物质,所以其消化和吸收与碳水化合物和蛋白质不同,需要先乳化为乳糜微粒才可被小肠微绒毛吸收。脂类的消化过程受胃脂肪酶、胰脂肪酶和胆盐的共同作用。以甘油三酯为例,甘油三酯在胃肠道中的消化过程始于舌脂酶或胃脂肪酶(取决于物种),其水解胃中5%~40%的膳食脂质和十二指肠中7.5%的膳食脂质;然后,胰脂肪酶水解小肠中剩余的大部分(40%~70%)膳食脂质,未消化的脂质可能会在大肠中发酵[30]

2 单胃动物常量营养物质动态消化进程的影响因素

现阶段消化动力学模型所需的各时间点的指标数据大多数通过体外法的方式获得,通常模拟2个及以上消化区段(胃、前肠和中肠)的消化条件(pH、营养物质的种类、消化时间、消化产物的被动吸收),以观测常量营养物质消化的进程[31]。营养物质的消化进程是由动物的消化能力与饲粮的可消化性共同构成的,两者相互关联不可分割,共同决定着饲粮营养物质的消化率。因此,在引入时间作为动态变量,探讨动态消化进程中影响常量营养物质消化速率的因素时,也需要从动物的消化能力与饲粮的可消化性2个方面进行分析,分别进行归纳总结。
在动物消化能力对常量营养物质动态消化进程影响因素进行分析时,根据消化方式的不同,可将影响因素细分为化学影响因素、物理影响因素和微生物影响因素。化学影响因素主要包括消化酶的种类、消化液的pH等。物理影响因素是指食糜通过消化道时以物理的方式影响食糜的形态和转运过程[32],主要包括胃排空、肠蠕动冲等。胃肠道平滑肌层一系列波动收缩产生的脉冲(胃排空和肠蠕动冲)为食糜的转运提供动力,食糜在肠道中的初始速度来自胃排空效应,脉冲的效率与推注的体积成正比,并且与推注和幽门之间的距离成反比[33]。微生物因素主要包括菌群的密集度和多样性等。
在饲粮可消化性对常量营养物质动态消化进程影响因素进行分析时,根据观察尺度的不同,可以分为宏观的理化特性的影响和微观的理化特性的影响。宏观的理化特性主要包括概略养分、饲料颗粒度大小、饲料膨化效果和食糜的流变特性等。研究表明,饲粮中各营养物质的结合方式会影响其余营养物质的消化进程[34-36]。饲粮中蛋白质基质与淀粉颗粒结合可阻碍淀粉分解,在蛋白质基质逐渐水解后,淀粉酶与淀粉的接触增强,从而促进淀粉分解[37]。膳食纤维和蛋白质可能会干扰脂类乳化,延迟脂类的消化和吸收[38],食物基质中纤维种类的不同对体外肠道发酵动力学的特征也存在着显著的影响[39]。此外,也有研究表明,食物基质消化的速率主要取决于其粒径分布和几何形状,在具有紧密结构的食物基质中,消化酶只能分解其表层颗粒[40-42]。食糜是饲粮经消化道物理和化学消化后的微小颗粒、肠道消化酶、肠壁脱落细胞、肠道微生物及其发酵产物的呈流体状混合物[43],其流变特性是通过流体在特定环境(如流动体系、温度和压力等)下的部分运动学变量(如应力、应变速率)和动力学变量(如剪切应力)的因果关系来反映的。因此,受流变特性的影响,在黏性消化液中,底物和消化酶之间的扩散和相互作用将受到限制并最终影响淀粉的消化率[44]。研究表明,添加瓜尔豆胶增强食糜黏度可使液态食物基质中的葡萄糖的释放减少45%,使固态食物基质中葡萄糖的释放减少35%[45]
微观的理化特性主要包括营养物质分子键的种类和数量、营养物质分子的空间结构和聚集程度等。这是由于不同营养物质在分子和微观尺度层面的结构中均存在异质排列(如不同纤维素的晶体结构、蛋白质的空间结构等)[46]。研究表明,蛋白质的二硫键含量、脂类油滴大小造成的界面反应均会分别影响其自身的酶解速率[47]。值得注意的是,常量营养物质的微观理化特性可能是其宏观理化特性的成因,如食糜内膳食纤维的溶解度、黏度、发酵性和持水性与食糜内营养物质分子空间结构以及分子之间的相互作用有关[43]

3 单胃动物消化动力学的研究进展

现阶段单胃动物的消化动力学结果主要通过建立数学模型,从中获得相关参数进行计算,目前主要的建模方法可归类为3种:1)基于底物浓度下降或产物浓度增加的经典动力学模型(包括Michaelis-Menten方程、零级、伪一级和一级动力学方程);2)基于共同反应或级联反应描述的多响应动力学模型(由1个或多个偏微分方程构成);3)将至少1个随机变量的每个反应步骤视为迭代过程建立的随机模型[48]。根据模型的应用场景和描述角度的不同,可将现阶段单胃动物消化动力学的研究角度分为:酶促反应动力学、食糜转运动力学、食糜发酵动力学和可消化营养物质吸收动力学。

3.1 酶促反应动力学

酶促反应动力学是研究酶促反应速率以及影响此速率的各种因素的科学,其研究的主体为酶促反应。大部分酶促反应动力学的研究主要依赖于经典动力学模型和多响应动力学模型,其中经典动力学模型目前应用最为广泛,其主要通过伪一级和一级动力学方程对底物浓度因酶促反应随时间变化情况进行描述,反应速率常数通常被用于说明酶解进程反应速率大小。现阶段,淀粉消化的一阶动力学曲线的指数现象最为明显,不同种类的淀粉可呈现出明显的快慢速率的划分[49]。蛋白质消化的一级动力学则更多的是通过氮素增溶的角度进行描述,但部分情况下通过伪一级和一级动力学方程拟合的效果相对较差,需要通过线性方程进行拟合[50-52]。脂类的消化也可通过一级动力学方程进行拟合,用以说明乳化剂结构和乳液稳定性在胃肠道条件下调节脂类分解动力学的重要性[53]
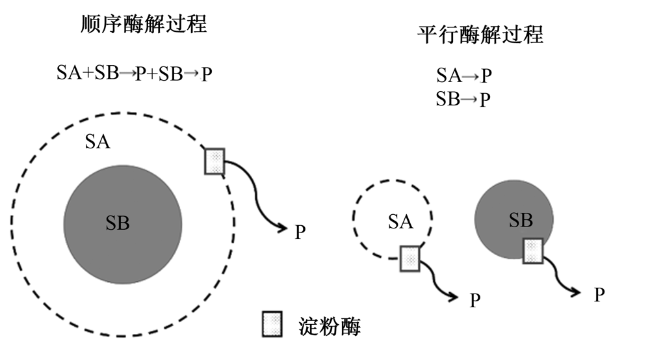
酶促反应的多响应动力学模型主要用于描述在消化进程中结构相对复杂的分子因酶促反应同时生成不同种类的结构相对简单的分子的进程,在大多数情况下,多响应动力学模型用于描述酶解过程的“平行性”和“顺序性”。以Li等[54]对饲粮中的淀粉酶解进程构建的模型为例(图1),在此模型中,2种均能被淀粉酶酶解的具有不同消化率的淀粉馏分(SA和SB)混合在一起,但由于SA更易于被酶解,因此根据酶促反应中消化底物的竞争性原则SA的消化速率加快,而SB的消化进程被抑制,仅有少部分SB在此过程中也被淀粉酶分解,因此在整体的消化进程中就包含了“顺序”和“平行”2个同时进行的酶解进程。多级响应模型也用于描绘蛋白质酶解的连续性过程。Herman等[55]开发具有2个连续指数步骤的理论模型,用于模拟蛋白质折叠和水解,以探索蛋白质折叠作为蛋白质胃消化的限制因素。多级响应模型在脂类的逐级水解中受到了广泛的应用,其可用于描述胰腺磷脂酶A在界面上反应的界面性质[56]、甘油三酯水解[57]、底物饱和与界面竞争[58]、阐明乳化液稳定性对脂类消化的影响[53]
图1 饲粮中淀粉酶解过程示意图

SA和SB表示具有不同消化率的淀粉馏分,P为酶水解的产物(寡糖)。

Fig.1 Schematic diagram of starch enzymatic hydrolysis process in diet[54]

SA and SB represent starch fractions with different digestibility rates, and P is the product of enzymatic hydrolysis (oligosaccharide).

3.2 食糜转运动力学

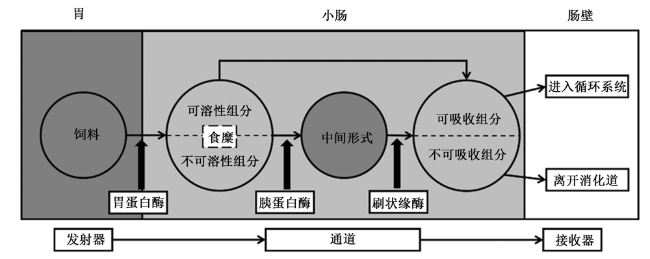
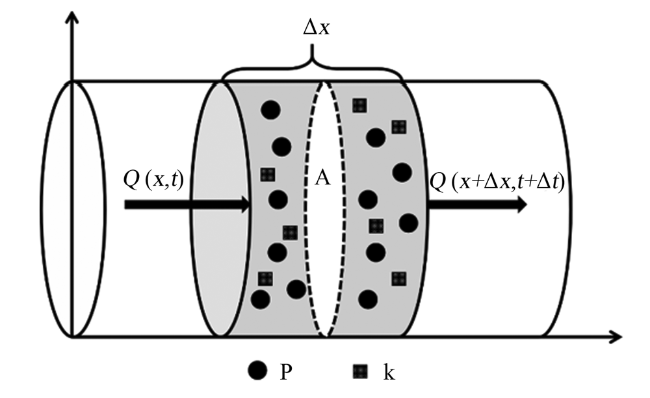
相较于酶促反应动力学,食糜转运动力学则倾向于对食糜的物理性质动态变化与其在消化道内转运时间关系的探究。食糜转运动力学主要通过物理和化学原理对消化进程进行模拟[48,59]。用于帮助理解和优化食物结构或成分与消化道内食物降解之间的关系。由于在建模过程中的变量较多,因此主要通过随机模型进行模拟。以Vimalajeewa等[60]利用分子通讯(molecular communications,MC)概念构建的用以描述淀粉消化的数字孪生模型为例,在此模型中消化被描述为具有“延迟”和“路径损耗”的动力学进程,消化进程的特征被映射成一个具有对流-扩散反应的MC系统(图2),胃作为发射器,将食糜释放到小肠肠道内,食糜沿胃肠道壁移动,为食糜颗粒转化为可吸收的营养物质提供环境。小肠肠壁作为系统的受体,有选择地允许可吸收营养物质通过,进入循环系统。食糜颗粒在小肠中的转化过程中(图3),食糜颗粒的质量逐渐减小,各常量营养物质(蛋白质、碳水化合物、脂类)的分子结构因酶促反应裂解为低分子质量的可吸收营养物质[61-62]
图2 消化过程作为一种分子通讯系统的描述图

Fig.2 Descriptive diagram of digestion process as a molecular communication system[60]

图3 小肠消化过程中营养物质的运输和产生

Q:固体食糜颗粒质量;A:小肠横截面积;P:常量营养物质分解产生的可吸收营养物质的速率;k:固体食糜颗粒质量的消失速率;t:Q的起始运行时间;x:Q的起始位置;Δt:Q移动Δx所需的时间;Δx:Q移动的位移。

Fig.3 Transport and production of nutrients during digestion process in small intestine[60]

Q: quality of solid chyme granules; A: small intestine cross-sectional area; P: the rate of absorbable nutrients produced by the decomposition of macronutrients; k: disappearance rate of quality of solid chyme granules; t: start run time of Q; start position of Q; Δt: Q mobile Δx required time; Δx: Q moving displacement.

3.3 食糜发酵动力学

现阶段食糜发酵动力学主要用于描述大肠部分食糜经微生物发酵后的产物和菌群密集度与多样性和时间的动态变化规律。与酶促反应动力学类似,现阶段食糜发酵动力学主要应用的模型为伪一级和一级动力学以及多响应动力学模型,但观测的主体为食糜的pH、菌群的丰度、发酵过程中产气量、微生物发酵代谢产物(如不同的短链脂类酸,主要为乙酸盐、丙酸盐和丁酸盐)的动态变化情况。现阶段食糜发酵动力学主要集中在对碳水化合物发酵特性的研究中,淀粉发酵动力学主要对累计产气量(将气体压力测量值转换为气体体积)与发酵时间进行建模。研究表明,不同来源的淀粉发酵动力学特征参数存在极显著差异,淀粉来源的组成与其体外研究的发酵变量相关,丁酸盐产量与总淀粉含量呈正相关(r=0.91,P<0.001),与直链淀粉含量呈负相关(r=-0.57,P<0.001);淀粉降解速率与直链淀粉含量呈负相关(r=-0.90,P<0.001),与淀粉结晶度呈正相关(r=0.83,P<0.001)[63]。由于大肠中的细菌会代谢蛋白质,根据肠道中的微生物组或生理条件,蛋白质既可能作为细菌细胞的组成部分,也可能进入不同的分解代谢途径并成为细菌的能量来源,因此,目前仍难以对进入大肠的未消化蛋白质的“命运”做出良好的预测[64]。而关于脂类在单胃动物大肠部分的发酵动力学也有待进一步研究。

3.4 可消化营养物质吸收动力学

相对于前3种消化动力学的分支对于“消化过程”的模拟,可消化营养物质吸收动力学主要是对已转化为可吸收小分子的营养物质的“吸收过程”的分析。然而现阶段关于可消化营养物质吸收动力学的模型相对较少,仅Schop等[65]通过计算机模拟的多室动态模型(结合了上述3种动力学中出现的模型)用于探索生长猪的消化和吸收的机理模型(simulating nutrient digestion and absorption kinetics in pigs,SNAPIG),该模型可以解释葡萄糖吸收动力学的变化,并预测回肠末端蛋白质和脂类的消化程度,但对氨基酸吸收的预测效果则相对较差,若想进一步校正预测效果则需要更多的体内数据进行补充。

4 小结与展望

消化动力学的研究对于从定量的角度揭示动物生理性的消化机制和饲粮的营养价值潜力是必不可少的。不同形式的数学建模在进一步定量的推测反应机理方面具有巨大的潜力,尤其有助于更好地理解消化过程中饲粮中不同营养物质之间发生的相互作用,以及饲粮或食糜的宏观和微观结构引起导致的营养物质消化吸收进程的改变。但现阶段消化动力学的研究仍存在着相关指标的数据较少、部分模型在应用时拟合度较差、部分参数解释较为困难、不同体外模拟方法对于消化或发酵的时长不统一、体内验证较为困难等问题。随着体外模拟技术的不断发展,未来或许可采用更贴近体内的消化方法观测饲粮整体动态消化的影响因素以收集新的科学数据。深入筛选和比较常量营养物质对饲粮消化的影响,进而提出更贴近单胃动物生理需求的饲料配方,为单胃动物生产领域实现精准营养调控提供数据参数和理论参考。
[1]
周宇君, 曾正程, 张姝雅, 等. 数字化模型化助力猪精准营养和豆粕减量研究进展及未来展望[J]. 中国饲料, 2023(22):241-247.

ZHOU Y J, ZENG Z C, ZHANG S Y, et al. Research progress and future prospect of digitalized modeling to assist pig precision nutrition and soybean meal reduction[J]. China Feed, 2023(22):241-247. (in Chinese)

[2]
ZUIDHOF M J. Precision livestock feeding:matching nutrient supply with nutrient requirements of individual animals[J]. Journal of Applied Poultry Research, 2020, 29(1):11-14.

[3]
SOPADE P A. Computational characteristics of kinetic models for in vitro protein digestion:a review[J]. Journal of Food Engineering, 2024, 360:111690.

[4]
GERRITS W J J, SCHOP M T A, DE VRIES S, et al. ASAS-NANP symposium:digestion kinetics in pigs:the next step in feed evaluation and a ready-to-use modeling exercise[J]. Journal of Animal Science, 2021, 99(2):skab020.

[5]
SONG G, WANG Y, CHEN X, et al. Influences of ratio of macro-nutrients intake to human and animals:an overview[J]. Food and Agricultural Immunology, 2019, 30(1):190-207.

[6]
SOHEL M M H. Macronutrient modulation of mRNA and microRNA function in animals:a review[J]. Animal Nutrition, 2020, 6(3):258-268.

[7]
VARATHARAJAN V, HOOVER R, LI J H, et al. Impact of structural changes due to heat-moisture treatment at different temperatures on the susceptibility of normal and waxy potato starches towards hydrolysis by porcine pancreatic alpha amylase[J]. Food Research International, 2011, 44(9):2594-2606.

[8]
HOOVER R. Composition,molecular structure,and physicochemical properties of tuber and root starches:a review[J]. Carbohydrate Polymers, 2001, 45(3):253-267.

[9]
MARTENS B M J, BRUININX E M A M, GERRITS W J J, et al. The importance of amylase action in the porcine stomach to starch digestion kinetics[J]. Animal Feed Science and Technology, 2020, 267:114546.

[10]
BOLAND M. Human digestion—a processing perspective[J]. Journal of the Science of Food and Agriculture, 2016, 96(7):2275-2283.

[11]
FEHER J. Digestion and absorption of the macronutrients[M]//FEHER J. Quantitative human physiology. Boston: Academic Press, 2012:731-743.

[12]
LI C, YU W W, ZHANG X W, et al. Definition of starch components in foods by first-order kinetics to better understand their physical basis[J]. Food Hydrocolloids, 2022, 133:107953.

[13]
ENGLYST K, GOUX A, MEYNIER A, et al. Inter-laboratory validation of the starch digestibility method for determination of rapidly digestible and slowly digestible starch[J]. Food Chemistry, 2018, 245:1183-1189.

DOI PMID

[14]
LIU S D, SUN S W, CHEN W J, et al. Structural,physicochemical properties,and digestibility of lotus seed starch-conjugated linoleic acid complexes[J]. International Journal of Biological Macromolecules, 2022, 214:601-609.

[15]
BAI Y, ZHOU X J, LI N, et al. In vitro fermentation characteristics and fiber-degrading enzyme kinetics of cellulose,arabinoxylan,β-glucan and glucomannan by pig fecal microbiota[J]. Microorganisms, 2021, 9(5):1071.

[16]
RIVERA DEL RIO A, KEPPLER J K, BOOM R M, et al. Protein acidification and hydrolysis by pepsin ensure efficient trypsin-catalyzed hydrolysis[J]. Food & Function, 2021, 12(10):4570-4581.

[17]
KAGEYAMA T K H. Role of S'1 loop residues in the substrate specificities of pepsin A and chymosin[J]. Biochemistry, 2004, 43(48):15122-15130.

PMID

[18]
KEIL B. Essential substrate residues for action of endopeptidases[M]//KEIL B.Specificity of proteolysis. Berlin:Springer, 1992:43-228.

[19]
RODRIGUEZ J, GUPTA N, SMITH R D, et al. Does trypsin cut before proline?[J]. Journal of Proteome Research, 2008, 7(1):300-305.

PMID

[20]
GOLDBERG D M, WORMSLEY K G. The interrelationships of pancreatic enzymes in human duodenal aspirate[J]. Gut, 1970, 11(10):859-866.

PMID

[21]
GOODMAN B E. Insights into digestion and absorption of major nutrients in humans[J]. Advances in Physiology Education, 2010, 34(2):44-53.

DOI PMID

[22]
SUWAREH O, CAUSEUR D, JARDIN J, et al. Statistical modeling of in vitro pepsin specificity[J]. Food Chemistry, 2021, 362:130098.

[23]
JUNG K H, CHOI Y C, CHUN J Y, et al. Effects of concentration and reaction time of trypsin,pepsin,and chymotrypsin on the hydrolysis efficiency of porcine placenta[J]. Korean Journal for Food Science of Animal Resources, 2014, 34(2):151-157.

[24]
ZHANG Q Y, WANG B, HU N Z, et al. Relationship between dietary amino acid release kinetics and nitrogen deposition in growing pigs[J]. Animal Nutrition, 2022, 9:233-239.

DOI PMID

[25]
DANGIN M, BOIRIE Y, GARCIA-RODENAS C, et al. The digestion rate of protein is an Independent regulating factor of postprandial protein retention[J]. American Journal of Physiology Endocrinology and Metabolism, 2001, 280(2):E340-E348.

[26]
BOIRIE Y, DANGIN M, GACHON P, et al. Slow and fast dietary proteins differently modulate postprandial protein accretion[J]. Proceedings of the National Academy of Sciences of the United States of America, 1997, 94(26):14930-14935.

DOI PMID

[27]
PORTUNE K J, BEAUMONT M, DAVILA A M, et al. Gut microbiota role in dietary protein metabolism and health-related outcomes:the two sides of the coin[J]. Trends in Food Science & Technology, 2016, 57(Part B):213-232.

[28]
MATTHEWMAN M C, COSTA-PINTO R. Macronutrients,minerals,vitamins and energy[J]. Anaesthesia & Intensive Care Medicine, 2023, 24(2):134-138.

[29]
郭枫. 饲料脂肪源和脂肪水平对黄鳝生长和代谢的影响[D]. 硕士学位论文. 南昌: 江西农业大学, 2019.

GUO F. Effects of dietary lipid species and level on the growth and metabolism of Monopterus albus[D]. Master's Thesis. Nanchang: Jiangxi Agricultural University, 2019. (in Chinese)

[30]
GALLIER S, ZHU X Q, RUTHERFURD S M, et al. In vivo digestion of bovine milk fat globules:effect of processing and interfacial structural changes.Ⅱ.Upper digestive tract digestion[J]. Food Chemistry, 2013, 141(3):3215-3223.

[31]
MULET-CABERO A I, EGGER L, PORTMANN R, et al. A standardised semi-dynamic in vitro digestion method suitable for food—an international consensus[J]. Food & Function, 2020, 11(2):1702-1720.

[32]
MOXON T E, GOUSETI O, BAKALIS S. In silico modelling of mass transfer & absorption in the human gut[J]. Journal of Food Engineering, 2016, 176:110-120.

[33]
TAGHIPOOR M, LESCOAT P, LICOIS J R, et al. Mathematical modeling of transport and degradation of feedstuffs in the small intestine[J]. Journal of Theoretical Biology, 2012, 294:114-121.

DOI PMID

[34]
BHATTARAI R R, DHITAL S, GIDLEY M J. Interactions among macronutrients in wheat flour determine their enzymic susceptibility[J]. Food Hydrocolloids, 2016, 61:415-425.

[35]
MARZE S. Bioaccessibility of nutrients and micronutrients from dispersed food systems:impact of the multiscale bulk and interfacial structures[J]. Critical Reviews in Food Science and Nutrition, 2013, 53(1):76-108.

[36]
ZHONG R Q, GAO L X, ZHANG L L, et al. Effects of optimal carbohydrases cocktails screened using an in vitro method on nutrient and energy digestibility of different fiber source diets fed to growing pigs[J]. Animal Feed Science and Technology, 2021, 271:114728.

[37]
PÄLCHEN K, MICHELS D, DUIJSENS D, et al. In vitro protein and starch digestion kinetics of individual chickpea cells:from static to more complex in vitro digestion approaches[J]. Food & Function, 2021, 12(17):7787-7804.

[38]
CALVO-LERMA J, FORNÉS-FERRER V, HEREDIA A, et al. In vitro digestion of lipids in real foods:influence of lipid organization within the food matrix and interactions with nonlipid components[J]. Journal of Food Science, 2018, 83(10):2629-2637.

[39]
YAO H, FLANAGAN B M, WILLIAMS B A, et al. Particle size of dietary fibre has diverse effects on in vitro gut fermentation rate and end-products depending on food source[J]. Food Hydrocolloids, 2023, 134:108096.

[40]
MONRO J A, MISHRA S S, HARDACRE A. Glycaemic impact regulation based on progressive geometric changes in solid starch-based food particles during digestion[J]. Food Digestion, 2011, 2(1):1-12.

[41]
HOEBLER C, KARINTHI A, DEVAUX M F, et al. Physical and chemical transformations of cereal food during oral digestion in human subjects[J]. British Journal of Nutrition, 1998, 80(5):429-436.

PMID

[42]
YE A Q, CUI J, DALGLEISH D, et al. Formation of a structured clot during the gastric digestion of milk:impact on the rate of protein hydrolysis[J]. Food Hydrocolloids, 2016, 52:478-486.

[43]
王克坤. 家禽消化道食糜流变特性的研究[D]. 硕士学位论文. 郑州: 河南工业大学, 2019.

WANG K K. Study on the rheological characteristics of the digestive tract of poultry[D]. Master's Thesis. Zhengzhou: Henan University of Technology, 2019. (in Chinese)

[44]
SINGH J, DARTOIS A, KAUR L. Starch digestibility in food matrix:a review[J]. Trends in Food Science & Technology, 2010, 21(4):168-180.

[45]
JAIME-FONSECA M R, GOUSETI O, FRYER P J, et al. Digestion of starch in a dynamic small intestinal model[J]. European Journal of Nutrition, 2016, 55(8):2377-2388.

[46]
DUIJSENS D, PÄLCHEN K, GUEVARA-ZAMBRANO J M, et al. Strategic choices for in vitro food digestion methodologies enabling food digestion design[J]. Trends in Food Science & Technology, 2022, 126:61-72.

[47]
MAT D J L, LE FEUNTEUN S, MICHON C, et al. In vitro digestion of foods using pH-stat and the INFOGEST protocol:impact of matrix structure on digestion kinetics of macronutrients,proteins and lipids[J]. Food Research International, 2016, 88(Part B):226-233.

[48]
LE FEUNTEUN S, VERKEMPINCK S, FLOURY J, et al. Mathematical modelling of food hydrolysis during in vitro digestion:from single nutrient to complex foods in static and dynamic conditions[J]. Trends in Food Science & Technology, 2021, 116:870-883.

[49]
BUTTERWORTH P J, WARREN F J, GRASSBY T, et al. Analysis of starch amylolysis using plots for first-order kinetics[J]. Carbohydrate Polymers, 2012, 87(3):2189-2197.

[50]
CHEN H, WIERENGA P A, HENDRIKS W H, et al. In vitro protein digestion kinetics of protein sources for pigs[J]. Animal, 2019, 13(6):1154-1164.

[51]
BRYAN D D S L, ABBOTT D A, VAN KESSEL A G, et al. In vivo digestion characteristics of protein sources fed to broilers[J]. Poultry Science, 2019, 98(8):3313-3325.

[52]
SCHOP M. Modelling digestion kinetics in pigs:predicting nutrient absorption based on diet and ingredient properties[D]. Ph.D.Thesis. Wageningen: Wageningen University, 2020:65-82.

[53]
VERKEMPINCK S H E, SALVIA-TRUJILLO L, MOENS L G, et al. Kinetic approach to study the relation between in vitro lipid digestion and carotenoid bioaccessibility in emulsions with different oil unsaturation degree[J]. Journal of Functional Foods, 2018, 41:135-147.

[54]
LI H T, DHITAL S, GIDLEY M J, et al. A more general approach to fitting digestion kinetics of starch in food[J]. Carbohydrate Polymers, 2019, 225:115244.

[55]
HERMAN R, GAO Y, STORER N. Acid-induced unfolding kinetics in simulated gastric digestion of proteins[J]. Regulatory Toxicology and Pharmacology, 2006, 46(1):93-99.

PMID

[56]
VERGER R, MIERAS M C E, DE HAAS G H.Action of phospholipase A at interfaces[J]. Journal of Biological Chemistry, 1973, 248(11):4023-4034.

PMID

[57]
LYKIDIS A, MOUGIOS V, ARZOGLOU P. Kinetics of the two-step hydrolysis of triacylglycerol by pancreatic lipases[J]. European Journal of Biochemistry, 1995, 230(3):892-898.

PMID

[58]
MITCHELL D A, CARRIÈRE F, KRIEGER N. An analytical method for determining relative specificities for sequential reactions catalyzed by the same enzyme:general formulation[J]. Biochimica et Biophysica Acta:Proteins and Proteomics, 2008, 1784(4):705-715.

[59]
VAN BOEKEL M A J S. Multiresponse kinetic modeling of chemical reactions[M]//VAN BOEKEL M A J S. Kinetic modeling of reactions in foods. Boca Raton: CRC Press, 2008:113-119.

[60]
VIMALAJEEWA D, BALASUBRAMANIAM S. Digestive system dynamics in molecular communication perspectives[C]// Bio-Inspired Information and Communications Technologies.Cham:Springer, 2021:117-133.

[61]
CAPUANO E, JANSSEN A E M. Food matrix and macronutrient digestion[J]. Annual Review of Food Science and Technology, 2021, 12:193-212.

DOI PMID

[62]
VERKEMPINCK S, PALLARES PALLARES A, HENDRICKX M, et al. Processing as a tool to manage digestive barriers in plant-based foods:recent advances[J]. Current Opinion in Food Science, 2020, 35:1-9.

[63]
JHA R, ZIJLSTRA R T. Physico-chemical properties of purified starch affect their in vitro fermentation characteristics and are linked to in vivo fermentation characteristics in pigs[J]. Animal Feed Science and Technology, 2019, 253:74-80.

[64]
LAMMERS-JANNINK K C M, PELLIKAAN W F, DE VRIES S, et al. Standardisation of the C∶N ratio in ileal digesta changes relationships among fermentation end-products during in vitro hindgut fermentation in pigs[J]. Animal, 2023, 17(12):101026.

[65]
SCHOP M, NGUYEN-BA H, JANSMAN A J M, et al. SNAPIG:a model to study nutrient digestion and absorption kinetics in growing pigs based on diet and ingredient properties[J]. Animal, 2023,17(Suppl.5):101025.

Outlines

/