REVIEW

Research Progress of Citrus Flavonoid Spectrum-Structure-Volume-Effect Relationship and Their Application in Dairy Cows

  • YANG Shuo ,
  • GAO Pengxiang ,
  • JIANG Linshu ,
  • FANG Luoyun , *
Expand
  • Key Laboratory for Dairy Cow Nutrition, College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
*E-mail:

Received date: 2024-01-25

  Online published: 2024-07-09

Abstract

Citrus flavonoids are a class of important natural polyphenol compounds, which have anti-inflammatory, antioxidant, anti-microbial, immune regulation, anti-tumor cell and other bioactive functions, and have broad application prospects in animal husbandry industry. However, in the process of research and development, citrus flavonoids are not conducive to elucidating their active functions and exploiting specific metabolites due to their numerous components, complex metabolic pathways and diverse metabolites. Therefore, in this paper, the spectral structure-volume-to-effect relationship and metabolic pathway of citrus flavonoids and their application to dairy cows are systematically reviewed in order to provide theoretical basis for further development and utilization of citrus flavonoids in animal production.

Cite this article

YANG Shuo , GAO Pengxiang , JIANG Linshu , FANG Luoyun . Research Progress of Citrus Flavonoid Spectrum-Structure-Volume-Effect Relationship and Their Application in Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4145 -4155 . DOI: 10.12418/CJAN2024.356

柑橘黄酮(citrus flavonoids)具有抗炎[1]、抗氧化[2]、抗微生物[3]、调节机体免疫[4]以及抗肿瘤细胞[5]等生物活性,近年来已经有越来越多的植物黄酮提取物以能够提高生产性能、增强动物机体健康等功效被应用到畜牧生产行业中,为畜牧业带来了巨大的收益[6]。柑橘黄酮在动物消化系统内的消化酶与微生物的作用下被分解成多种羟基化、氢化、脱氢和乙酰化的代谢产物[7],这些代谢产物继续在动物体内发挥作用。与此同时,柑橘黄酮及其代谢产物还可能会影响动物消化道内的微生物,改变其菌群丰度或菌群结构,进而影响动物机体的生理状态。
柑橘提取物中的柑橘黄酮是多种黄酮类化合物的混合物,柑橘黄酮中黄酮的含量和种类受到柑橘原料的产地、品种、采集时间和提取工艺参数等影响[2,8],因此在研究过程中分离和鉴别其中的单一成分就尤为重要。谱-构-量-效关系就是结合谱-效、构-效、量-效3种关系对柑橘黄酮进行综合考量,从而更精准高效的发掘功能活性与柑橘黄酮之间的关系。基于此,本文结合目前的研究进展,对柑橘黄酮图谱、结构、含量和效果之间的关系以及在奶牛生产中的应用进行梳理,以期对柑橘黄酮的开发及在畜牧生产中更广泛的利用提供理论依据。

1 柑橘黄酮的结构与功能

1.1 柑橘黄酮的结构及其分类

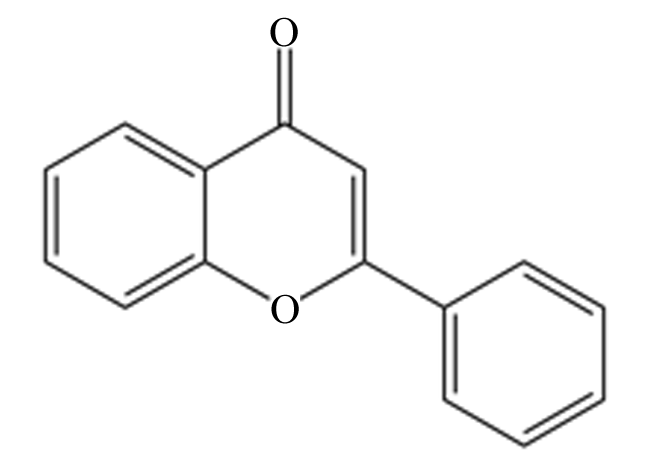
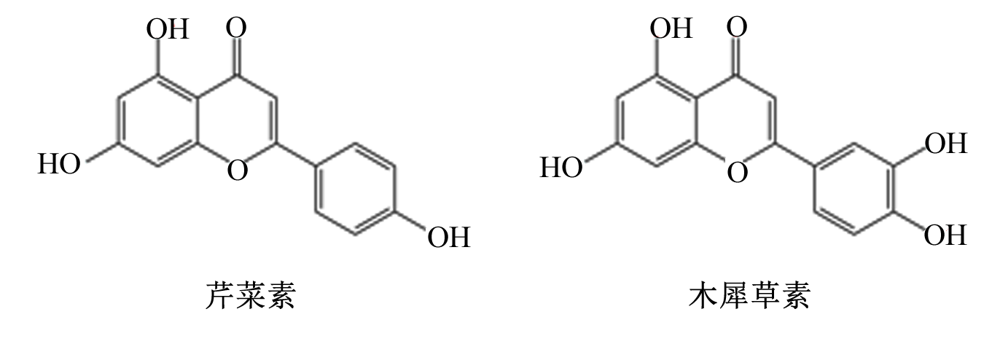
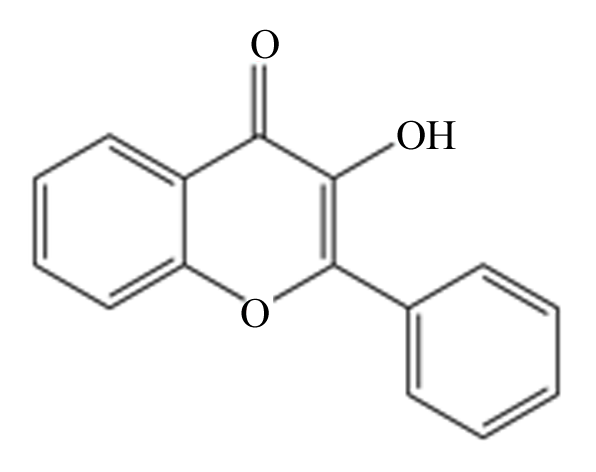
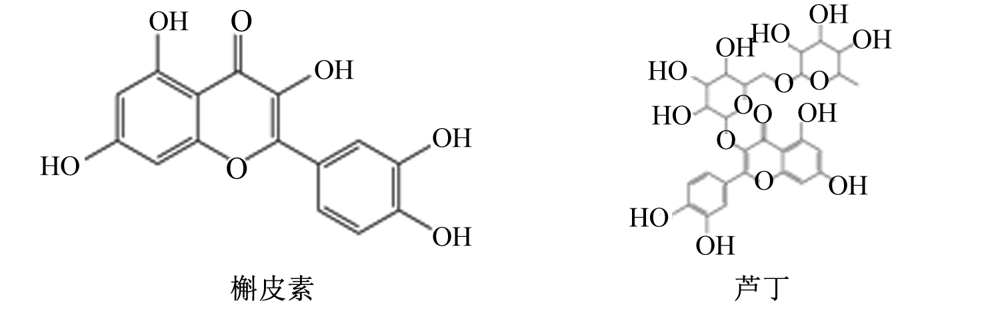
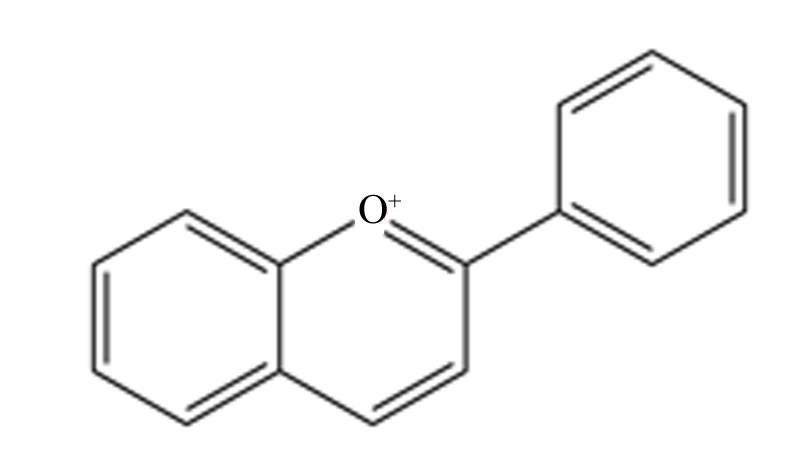
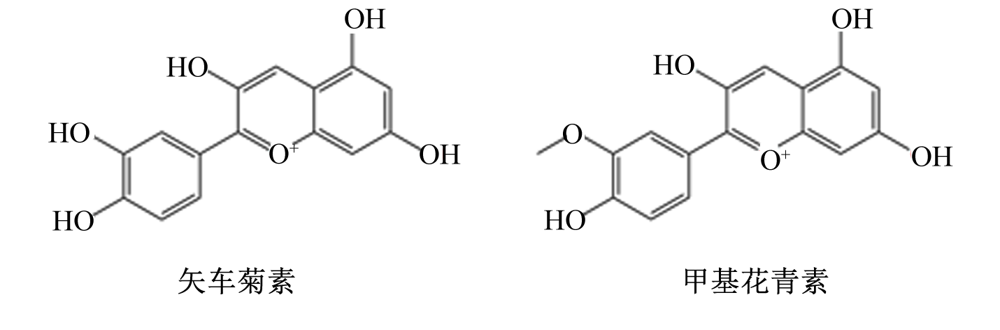
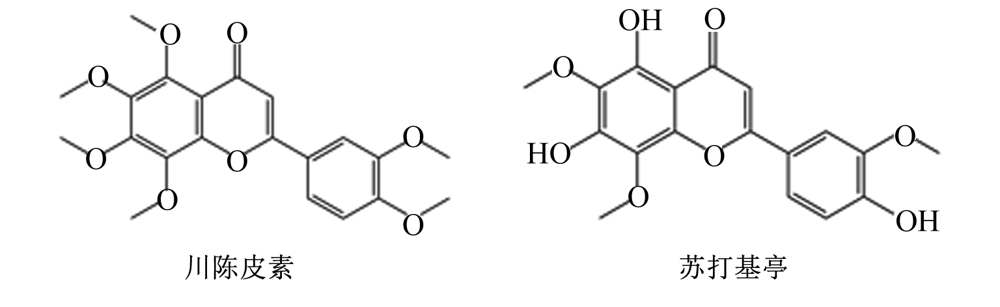
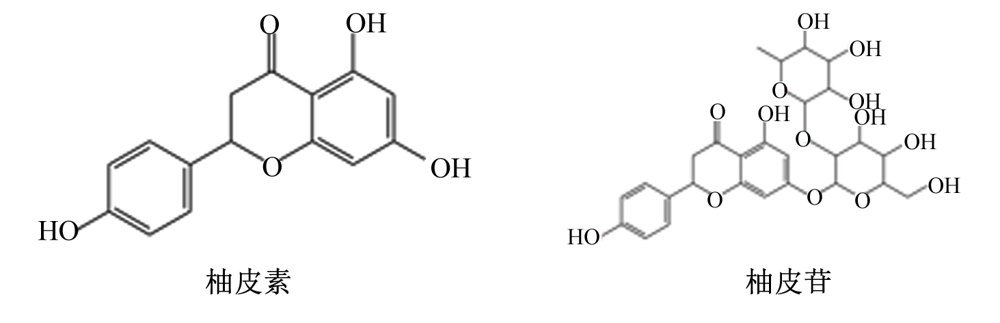
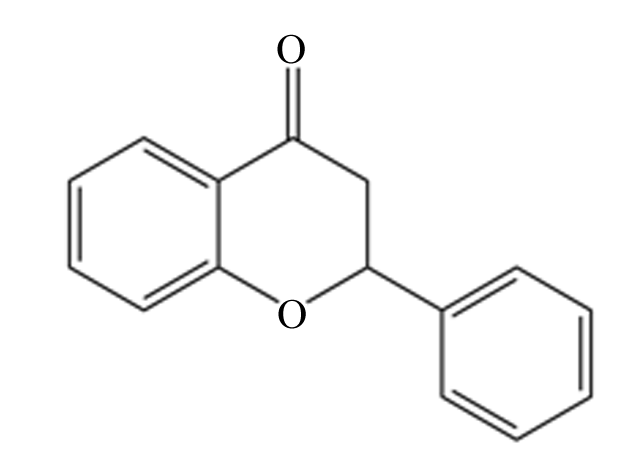
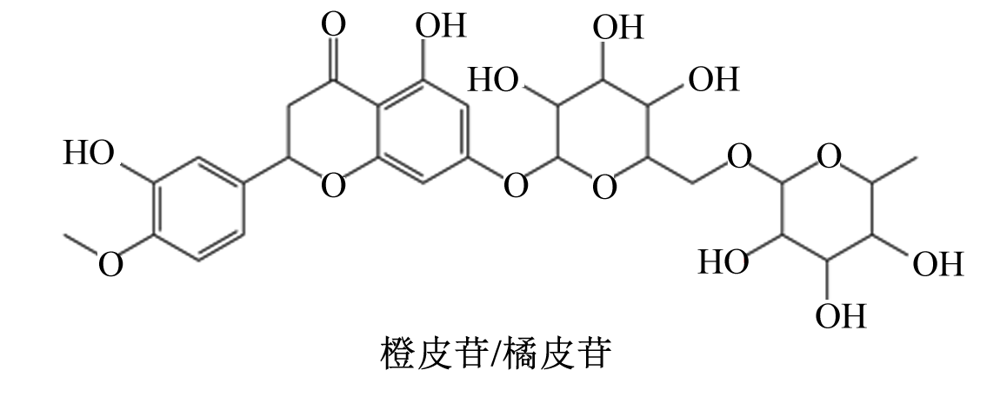
柑橘黄酮是从柑橘中提取的包含多种黄酮类化合物的混合物,同时也是一类多酚植物次生代谢产物,在橘、橙、桔、柑、柚等芸香科柑橘属木本植物果实的果皮中广泛存在[9],至今为止约有超过80种柑橘黄酮被人们发现[10]。在化学结构层面,柑橘黄酮是由2个芳香环(A与B)通过3个碳原子连接而成,形成C6(A环)-C3(C环)-C6(B环)的基本骨架,即2-苯基色原酮结构[11],当其碳骨架上的氢被羟基、甲氧基和糖基等官能团所取代,就形成了各种各样的柑橘黄酮。它们的生物学功能及生物利用度与其本身的化学结构是密不可分的,据前人及本实验室前期研究发现,柑橘黄酮主要包括黄酮(芹菜素、木犀草素)、黄酮醇(槲皮素、芦丁)、花青素(矢车菊素、甲基花青素)、多甲氧基黄酮(polymethoxylated flavones,PMFs)(川陈皮素、苏打基亭)以及二氢黄酮(柚皮素、柚皮苷、圣草次苷、圣草酚、橙皮苷)等类别[12-13]。柑橘黄酮结构示意见表1[14]
表1 柑橘黄酮结构示意

Table 1 Schematic structure of citrus flavonoids[14]

柑橘黄酮种类
Types of citrus flavonoids
主要结构
Primary structure
举例
Ensample
黄酮
Flavone
黄酮醇
Flavonol
花青素
Anthocyanin
多甲氧基黄酮
Polymethoxylated flavones
二氢黄酮
Flavanone

1.2 柑橘黄酮的生物学功能

1.2.1 抗炎

柑橘黄酮是炎症细胞因子的活性抑制因子,炎症相关通路的调节剂,以及一氧化氮(NO)和活性氧(ROS)积累的降低剂[1]。Chung等[15]对灌服柚皮素的小鼠进行热板法和诱导足肿法试验,发现在100和200 mg/kg柚皮素的处理中,柚皮素能通过增强小鼠体内神经系统的疼痛耐受性而发挥其抗神经病变性疼痛和抗炎的作用,具体表现为与对照组(8 s)相比,处理2周的小鼠对热板做出反应的时间延长了4~11 s。Feng等[16]证明,芹菜素可在糖尿病大鼠体内通过结合和激活过氧化物酶体增殖物激活受体γ(peroxisome proliferator activated receptor γ,PPARγ)并抑制核转录因子-κB(nuclear factor-kappa B,NF-κB)通路,成功地将巨噬细胞极化为抗炎的M2表型,从而减轻炎症。研究表明,100 μmol/L芹菜素处理抑制了小鼠单核巨噬细胞白血病细胞(RAW264.7)80%的一氧化氮合酶的相对表达量,以及60%的环氧合酶-2的相对表达量;另外,15 μmol/L槲皮素的处理也有相似的结果,RAW264.7细胞一氧化氮合酶和环氧合酶-2的相对表达量分别降低了约80%和90%[17-18];而这些酶负责产生大量的一氧化氮、前列腺素、白三烯以及炎症过程中的其他介质,如细胞因子、趋化因子或黏附分子[19]

1.2.2 抗氧化

氧化应激会导致部分脂类、蛋白质和DNA等其他分子的氧化损伤,进而引起神经细胞死亡和神经退化,最终诱发阿尔茨海默病(AD)、帕金森氏病等神经退行性疾病[20]。Lu等[21]研究表明,柚皮苷能通过恢复谷胱甘肽(GSH)含量和超氧化物歧化酶(SOD)活性,提高线粒体膜电位,降低丙二醛(MDA)和ROS含量,抑制半胱氨酸天冬氨酸蛋白酶-3(Caspase-3)活性和膜损伤,表现出抗氧化和抗凋亡活性。Aalikhani等[22]检测了橙皮苷对铁过量的小鼠脑组织的影响,发现添加100 mg/(kg·d)橙皮苷不仅能显著螯合小鼠脑组织中的非血红素铁,达到与对照组相当的水平(铁螯合剂一般作为AD的治疗药物),还能使过氧化氢酶和超氧化物歧化酶的活性显著升高,达到抗氧化的效果。Huang等[2]对8种柑橘皮提取物(citrus peel extract,CPE)(主要成分为黄酮类化合物)进行黄酮种类的鉴定,并对其抗氧化活性、抑制胰脂肪酶(pancrelipase,PL)的能力和机制进行了评价和比较,结果显示橙皮苷是主要的PL抑制剂,且具有最强的综合抗氧化活性,是一种很有前景的清除自由基的天然成分。

1.2.3 抗微生物

许多柑橘黄酮如芹菜素[23]、柚皮素[24]及槲皮素[25]等已经被证实具有抑菌作用。Guo等[26]评价了富含PMFs的柑橘乙酸乙酯提取物的抑菌效果,结果显示其在100 mg/mL浓度下能显著抑制大肠杆菌、枯草芽孢杆菌和金黄色葡萄球菌等多种微生物。Liu等[27]通过分子对接方法发现,柚皮苷与橙皮素对血管紧张素转化酶2(angiotensin converting enzyme 2,ACE2)具有较强的结合亲和力,能预防冠状病毒的感染。Makni等[3]对柠檬提取物(主要成分为多酚和黄酮类化合物)进行研究,其中,柠檬果肉提取物因相较果皮具有更多的黄酮类化合物,而展现出了更显著的抗菌能力,表明柑橘黄酮具有良好的抑菌性能。

1.2.4 调节机体免疫

柑橘黄酮对动物机体和组织有免疫调节作用。Diab等[4]发现,柑橘皮乙醇提取物(富含多酚和黄酮类化合物)具有免疫刺激活性,能促进小鼠脾细胞(T淋巴细胞)的增殖,并且其浓度在100 mg/mL时能显著降低(69.1%~79.4%)顺铂在24 h内对小鼠脾细胞诱导的染色体畸变。Camps-Bossacoma等[28]的研究结果表明,大鼠摄入0.5%橙皮苷饲粮后会改善肠系膜淋巴结淋巴细胞的组成和功能,并且能增加肠道免疫球蛋白A(IgA)含量,还能改变上皮内淋巴细胞(intraepithelial lymphocytes,IEL)和固有层淋巴细胞(lamina propria lymphocytes,LPL)的组成,证明橙皮苷在肠道免疫反应中确实具有免疫调节作用。柑橘黄酮中的一种名为苏打基亭(sudachitin)的PMFs被发现不仅能提高小鼠卵清蛋白特异性白细胞介素-4(IL-4)、白细胞介素-10(IL-10)、免疫球蛋白E(IgE)和免疫球蛋白G1(IgG1)的产生水平,还能使体外的骨髓树突状细胞的抗原呈递能力有一定的增强[29]

1.2.5 抗肿瘤细胞

有研究表明,槲皮素在体内研究中抑制了肝脏肿瘤的初始发生,并通过提高B淋巴细胞瘤-2相关X蛋白(Bax)/B淋巴细胞瘤-2(Bcl-2)比值促进了细胞凋亡;除此以外,在一项动物研究中,槲皮素显著降低了前列腺癌异种移植小鼠模型实体瘤的体积和重量,表明槲皮素通过靶向血管生成抑制肿瘤发生[5]。Dükel等[30]研究发现,柚皮素对结肠癌细胞活力的抑制作用非常显著(100 μmol/L浓度下处理24 h降低80%),同时该研究还揭示了柚皮素可通过降低线粒体的代谢活性而增加癌细胞ROS的产生、诱导ROS介导的细胞凋亡、细胞自噬和ROS依赖性细胞周期停滞而达到抑制结肠癌细胞生长的目的。Kim等[31]的细胞和异种移植试验表明,在10 μmol/L川陈皮素处理72 h条件下,三阴性乳腺癌细胞系MDA-MB-231的增殖得到了显著抑制;另外,与对照组(2 175.7 mm3)相比,饲喂川陈皮素含量为0.1%的饲粮后,小鼠第43天平均肿瘤体积显著减小(1 199.6 mm3),说明川陈皮素在体外和体内均能显著抑制三阴性乳腺癌细胞的增殖和运动。
综上所述,柑橘黄酮具有抗炎、抗氧化、抗微生物、调节机体免疫以及抗肿瘤细胞等重要生物活性,但以往的传统研究方法缓慢的效率及粗略的结果都难以适应当今快速增长的应用需求,为了更加高效精准地对柑橘黄酮进行开发利用,就必须对柑橘黄酮的谱-构-量-效关系进行细致的研究。

2 柑橘黄酮谱-构-量-效关系及在动物体内的代谢

在目前对柑橘黄酮的研究中,通过对谱-构-量-效关系的解读能帮助我们完整清晰的解释其生物活性及效用。与此同时,柑橘黄酮的代谢途径及生物利用度低下的问题也是其研究利用过程中的一大阻碍。

2.1 柑橘黄酮谱-构-量-效关系

2.1.1 柑橘黄酮的谱-效关系

由于柑橘黄酮是混合物,其在代谢过程中各成分会被肠道内微生物进一步转变成其他活性物质,导致难以确定在实际应用中真正发挥生物学功能的具体成分。不仅如此,柑橘黄酮中仍有很多黄酮类化合物还未被鉴定,这就需要利用高通量高分辨率的定量定性检测技术,目前较为常用的鉴定方法有核磁共振波谱(NMR)法、串联质谱(MS/MS)法、高效液相色谱-质谱联用(HPLC-MS)法等。Luo等[32]通过高效液相色谱(HPLC)法和超高效液相色谱-四极杆飞行时间质谱法对佛手柑提取物进行分析,鉴定出其中5种黄酮类化合物,并通过体内体外试验测定出纯化后的佛手柑提取物具有更优异的抗氧化及抗衰老活性。Tan等[33]采用HPLC法定量测定陈皮及其提取物的橙皮苷含量,建立其指纹图谱,达到了对陈皮的质量控制的目的,也从一定程度上解释了陈皮的血管舒张功能。Sun等[34]利用液相色谱-质谱联用(LC-MS)法对灌服广陈皮的脾虚小鼠进行了一系列活性评估,发现陈年广陈皮具有更高的黄酮含量且对脾虚有更好的改善效果,并揭示了缓解脾虚的主要活性成分是橙皮苷、川陈皮素和高圣草酚等黄酮类化合物。Zhang等[35]借助HPLC等方法对栀子厚朴汤药方中所使用的不同枳壳进行分析,检测出了柚皮苷、橙皮苷、新圣草次苷、新橙皮苷和京尼平苷5种化合物,并通过谱-效分析表明复方制剂的潜在毒性不仅与有毒成分有关,还可能是各成分协同作用的结果,这不仅为中药复方制剂潜在毒性成分的研究提供了新思路,也对研究柑橘黄酮有一定的启发。

2.1.2 柑橘黄酮的构-效关系

物质的化学结构决定其功能,柑橘黄酮基本骨架上不同官能团的取代也会使各种柑橘黄酮发挥独特的生物活性。比如,黄烷酮的抗氧化活性极其依赖于羟基的数量和空间排列,这包括B环上的儿茶酚、糖苷的存在与否以及羟基的形式(游离或取代)如何[36]。通常羟基越多,抗氧化活性越强,B环上的儿茶酚赋予黄酮类化合物更高的抗氧化活性[10],而Majo等[36]研究表明,在糖基化形式的黄烷酮中,30,40-儿茶酚结构会明显提高抗氧化能力,而O-甲基化则会降低抗氧化活性,但2种结构在苷元形式中的影响差异并不显著。Guan等[37]发现柑橘黄酮的分子结构与公认的核因子E2相关因子2(Nrf2)激动剂类似,所以对8种柑橘黄酮进行了密度泛函理论计算、吸收、分布、代谢、排泄和分子对接等方法的评估,确定了其中3种(柚皮素、橙皮素和白皮素)为与Kelch样环氧氯丙烷相关蛋白1(Keap1)-Nrf2相互作用的潜在膳食抗氧化剂,可用于氧化应激相关慢性疾病的控制和治疗。Ma等[38]从佛手柑提取物中分离鉴定出了6个新的(3'→7″)-双黄酮,并发现前3种具有一定的降血脂活性,其中第1种可能由于12,13-二甲基呋喃-15-1取代具有更显著的降血脂效果,后3种可能因H-3被β-D-葡萄糖基取代而都具有较强免疫抑制活性。
与其他具有游离羟基的黄酮类化合物相比,PMFs具有多个甲氧基,这使得它们的结构极性较小且近似平面,因此具有高度的生物膜渗透性和更强的膜转运能力,所以PMFs往往表现出更高效的生物活性[39]。然而,甲氧基的存在也会使得水溶性降低,导致溶解速度减慢,并极大地限制在小肠中的吸收[10]。羟基化多甲氧基黄酮(OH-PMFs)具有与PMFs相似的渗透性和膜传输能力,由于羟基可提高溶解度,因此OH-PMFs比PMFs更易溶于水,且具有更强的生物活性[10,40]
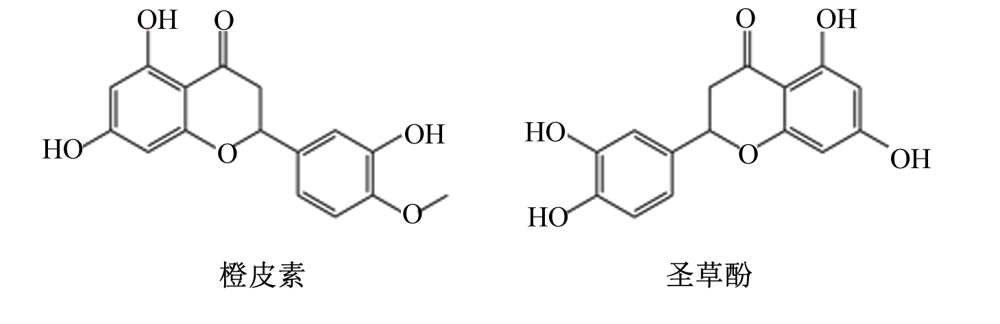
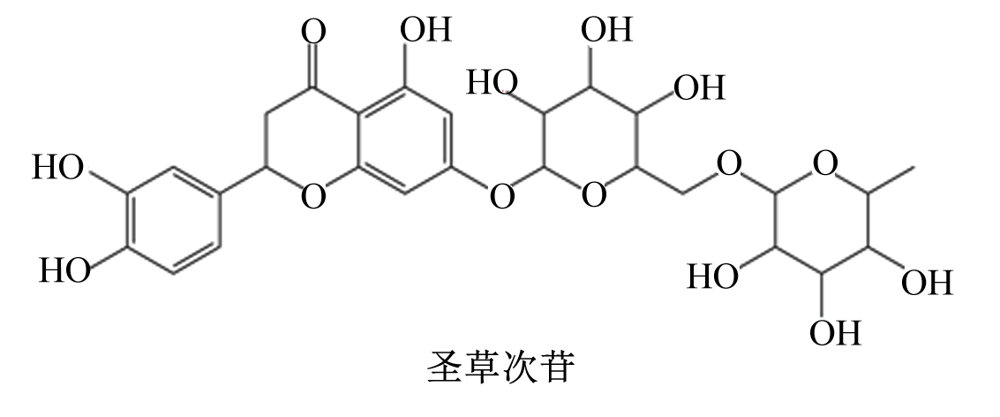
近年来,逐渐有一些其他领域的研究方法被开发应用到柑橘黄酮构效关系的探索过程中,如分子对接、分子动力学模拟和网络药理学等,不仅提高了研究效率,还节约了研究经费。Liu等[41]结合光谱和分子对接技术,研究了2种柑橘黄酮——圣草次苷和圣草酚与α-葡萄糖苷酶之间的相互作用机制,结果表明它们可以与α-葡萄糖苷酶结合,并可能导致α-葡萄糖苷酶活性降低,且因其结构相似但拥有不同位置和数量的羟基而导致表现出了不同的抑制活性。Li等[42]对5种柑橘黄酮的酪氨酸酶抑制作用进行了比较分析,傅里叶变换红外光谱(FITR)以及分子动力学分析的结果表明其中的橙皮素和柚皮素是潜在的混合型可逆酪氨酸酶抑制剂。

2.1.3 柑橘黄酮的量-效关系

柑橘黄酮的含量与品质会受到提取原料(如柑橘)的产地、品种、采集时间和提取工艺参数等条件影响,所以柑橘黄酮中各组分的比例也不尽相同,导致其在动物饲喂试验中的效果也不易复现。Wang等[43]对浙江省的5类柑橘的35个品种各部位的黄酮类化合物进行鉴定并定量分析,共检测出39种,包括4种黄酮、9种黄烷酮和26种PMFs,其中PMFs只在橘皮中检出;进一步的相关分析表明,二氢黄酮、橙皮苷、新橙皮苷、枸橘苷和柚皮苷可能对柑橘提取物的抗氧化能力起主导作用;PMFs对胃肿瘤细胞有显著的细胞毒性作用,起主要作用的成分可能为川陈皮素。Aranganathan等[40]给1,2-二甲基肼(1,2-dimethylhydrazine,DMH)诱导结肠癌处理的小鼠服用橙皮素,20 mg/kg组大鼠肿瘤发生率、病灶数量明显低于10和30 mg/kg组,说明橙皮素的抗结肠癌作用与剂量不为简单的线性正相关关系。Long等[44]对赣南脐橙皮使用95%乙醇、石油醚(PE)、乙酸乙酯(EtOAc)和水进行提取,并对4种提取物的抗氧化效果进行评价,结果表明EtOAc提取物中的总黄酮含量是最高的,其抗氧化潜力也是最好的。
随着科技发展而不断进步的各种定量分析仪器方法,如紫外可见分光光度法、近红外光谱法、HPLC法和HPLC-MS法等,也对柑橘黄酮量效关系的研究提供了巨大的帮助。Chen等[45]使用超高效液相色谱-质谱联用(UPLC-MS)法对不同采摘时间的茶枝柑皮进行了黄酮含量的分析,发现随着采摘时间的推移,异黄酮、二氢黄酮和二氢黄酮醇的相对含量逐渐增加,黄烷醇的相对含量逐渐减少。Mu等[46]研究表明,不同品种柑橘药材中的黄酮类化合物含量波动明显,并且通过正交投影潜在结构判别分析(OPLS-DA)和聚类分析,可以很好地区分不同品种和成熟阶段的药材,为鉴定柑橘黄酮的含量和品质提供了新的思路。综上所述,深入研究柑橘黄酮的谱-构-量-效关系对于柑橘黄酮在实际生产中的开发应用大有裨益。

2.2 柑橘黄酮在动物体内的生物利用度及代谢

生物利用度指的是摄入的营养物质通过正常的途径被机体消化、吸收和代谢的比例。每种黄酮因其天然化学结构的不同而导致生物利用度也不尽相同,其化学结构要比浓度更能决定吸收的速率和程度以及血浆中代谢产物循环的性质[47],柑橘黄酮通常具有较低的生物利用度,并且大多数不能以自然形式直接被机体吸收。还有一些因素如植物中的黄酮含量、提取物的加工工艺、黄酮本身的化学结构(如糖基等基团的存在)、生物体内其他物质相互作用、酶活性和肠道微生物等都会对生物利用度产生影响[48]。同时,人们逐渐认识到肠道微生物可以将黄酮化合物代谢为酚类和芳香环裂变分解代谢物,从而提高其生物利用度[49]。此外,得益于近年来纳米技术在食品和制药行业中的迅速发展,得以开发出一些对生物活性物质进行保护的方法,其中一种就是将其掺入纳米颗粒中进行包封处理[50],这种方法可以保护柑橘黄酮免受各种因素的影响,促进它们在适当位置的化学降解,从而提高生物利用度,与之类似的还有乳剂、自乳化体系和固体分散相等物质递送系统[9]。除此以外,还可以在柑橘黄酮的加工、储存过程中筛选最适合的温度湿度等条件,或改进加工工艺,以减少摄入前造成的损失。
目前,关于黄酮类化合物在小肠中的吸收机制主要有2种途径:一种是可被存在于哺乳动物小肠边缘的乳糖酶-根皮苷水解酶(lactase-phlorizin hydrolase,LPH)水解为苷元[51];另一种途径是可以通过存在于小肠刷状膜中的钠依赖性葡萄糖转运蛋白1(Na-dependent glucose transporter 1,SGLT1)转运到肠上皮细胞,以苷元或结合产物的形式进入循环系统[52]。这2种肠道吸收机制都揭示了黄酮进入体内应水解成苷元,而不是以其原型的形式。黄酮类苷元具有较大的疏水性和较小的分子结构,可通过被动扩散直接被小肠壁上的绒毛上皮细胞吸收,并由于黄酮类化合物的结构和pH不同,其吸收率也不同[53]
柑橘黄酮在肝脏中的代谢形式主要有2种:氧化反应(Ⅰ相代谢)和结合反应(Ⅱ相代谢)[54]。氧化反应主要是肝内细胞色素P450酶系对柑橘黄酮的代谢以及去甲基化;结合反应主要包括葡萄糖醛酸化、硫酸化化和甲基化等[53]。原药或氧化后的Ⅰ相代谢物中所含的一些极性官能团(如羟基),在各种催化酶的作用下,会与一些内源性物质偶联或结合,产生各种结合产物。橙皮苷在小肠和主要在结肠中被肠道微生物鼠李糖苷酶水解为苷元形式,然后在大肠中转化为葡萄糖醛酸苷,橙皮苷在摄入3 h后以葡萄糖醛酸(87%)和硫代葡萄糖醛酸(13%)的形式出现在血浆中,在5~7 h达到最大值[55]。不同于其他大多数黄酮类化合物不能在胃部被有效吸收,花青素的主要吸收部位是胃,胃上皮表达的有机阴离子载体胆汁酸转移酶可以使其被快速有效的吸收,但由于胃黏膜特殊的酸性环境和较小的吸收面积,花青素在胃中的吸收效果仍然相对较差,不过花青素还可以通过肠道以原型形式快速有效地吸收,并通过循环系统转移,最终通过尿液排出体外[56-57]。为解决在检测柑橘黄酮代谢产物时其他代谢过程产生的干扰问题,Zeng等[58]使用同位素标记法(即[5',6'-D4]-柚皮苷)结合HPLC-MS定量方法成功筛选出了21种黄酮类代谢物和11种酚类代谢物,并阐明了11条分解代谢途径。
虽然对于柑橘黄酮的生物利用度低下的问题已经有了一些解决的办法,但解决办法的成本往往是实际应用中的巨大阻碍,所以更多的成本更低的提高柑橘黄酮利用度的方法亟待开发,而越来越多揭示柑橘黄酮代谢途径的研究也为其开发提供巨大助力。

3 柑橘黄酮在奶牛上的应用研究进展

3.1 改善奶牛泌乳性能

多项研究表明,柑橘黄酮的添加能较显著的改善奶牛的泌乳性能。Yu等[59]研究发现,在奶牛的饲粮中添加150 g/d的柑橘黄酮提取物(citrus flavonoids extract,CFE)使牛奶中体细胞数减少约16.8%,总挥发性脂肪酸含量提高约10.5%,同时瘤胃微生物组成和代谢物也发生了显著变化,比如瘤胃中存在较高丰度的厚壁菌门和较低丰度的拟杆菌门,甲烷杆菌等主要产甲烷菌也受到了抑制,并且显著提高了奶牛的抗氧化能力,从而综合提高了奶牛的泌乳性能。Zhao等[60]应用气相色谱(GC)法和LC-MS法对饲喂CPE的奶牛进行脂质组学分析,结果表明CPE饲喂量在100和150 g/d时能提高奶牛的产奶量,并将部分抗氧化生物活性物质通过乳腺转移到牛奶中,此外还可以调节牛奶中的脂质组成,如降低饱和脂肪酸;提高单不饱和脂肪酸、共轭亚油酸和有益磷脂的含量。Ítavo等[61]用橙皮青贮替代玉米青贮饲喂奶牛,为奶牛提供了更多的脂肪和蛋白质,研究结果表明其对瘤胃环境没有负面影响,并且在替代水平为750 g/kg时使乳脂含量相较于对照组提高了20.6%。

3.2 改善奶牛机体健康

Yu等[62]采用宏基因组学方法对饲粮中添加150 g/d CFE的泌乳奶牛瘤胃抗生素抗性基因和毒力因子基因进行了鉴定,结果表明,CFE显著降低了瘤胃多药和抗吞噬功能水平,提高了四环素、铁和镁摄取系统水平,这表明CFE可作为一种天然植物产物,调节瘤胃菌群的毒力因子和抗生素耐药性,从而改善奶牛瘤胃内稳态,促进奶牛健康。Balcells等[63]在奶牛饲粮中添加柑橘类黄酮化合物(300 mg/kg),发现其可通过提高埃氏巨球形菌的相对丰度而增加瘤胃内乳酸的消耗,进而减少瘤胃酸中毒的发生。Zhao等[64]发现,在奶牛饲粮中添加150 g/d CFE时,不仅提高了粪中总挥发性脂肪酸的含量(约15.9%),还可调节后肠鞘脂代谢和次级胆汁酸的产生,并降低了体内白细胞介素-1β、白细胞介素-2和白细胞介素-6含量,说明CFE的添加不仅保护了脂质和肠道稳态,还降低了体内的炎症水平。Zhao等[65]结合多组学分析,发现饲粮中添加100 g/d CFE能显著降低饲喂高淀粉饲粮的奶牛血清中的脂多糖和促炎细胞因子的含量,并且揭示了CFE可以通过维持后肠微生物群平衡和调节鞘脂代谢来减少全身炎症。Zhao等[66]对饲粮中添加CPE的奶牛进行研究,发现添加量为150 g/d时可显著降低乳汁中白细胞介素-6和MDA的含量,提高溶菌酶活性和1,1-二苯基-2-三硝基苯肼的自由基清除活性,还能降低乳汁中几种机会性致病菌和嗜冷细菌的相对丰度。总之,柑橘黄酮类化合物对奶牛的机体及乳腺具有抗氧化、抗微生物、缓和瘤胃酸中毒和抗炎等促进健康的重要价值。

4 小结

近年来,由于对柑橘黄酮谱-构-量-效关系的研究不断深入,柑橘黄酮逐渐在医药、化妆品与畜牧等领域成为不可或缺的一部分。然而,如何提高柑橘黄酮的生物利用度仍然是目前亟待解决的问题;同时,柑橘黄酮数据库的缺乏也对其成分的分析与鉴别工作造成了巨大的困难。工艺更简单、成本更低廉的活性物质包被递送技术还有待进一步的开发,更权威、更完善的柑橘黄酮数据库的建立也需要国内外科研工作者的共同努力。在研究柑橘黄酮的同时结合其他研究领域的技术如分子动力学模拟、网络药理学与分子对接等方法,也能帮助我们更快更全面地研究柑橘黄酮的作用机制及其作用靶点,并更深入地探究其谱-构-量-效关系。相信在不久的将来,柑橘黄酮将在奶牛养殖领域发挥出巨大的潜力。
[1]
YANG W L, CHEN S Y, HO C Y, et al. Citrus flavonoids suppress IL-5 and ROS through distinct pathways in PMA/ionomycin-induced EL-4 cells[J]. Food & Function, 2020, 11(1):824-833.

[2]
HUANG R, ZHANG Y, SHEN S Y, et al. Antioxidant and pancreatic lipase inhibitory effects of flavonoids from different citrus peel extracts:an in vitro study[J]. Food Chemistry, 2020, 326:126785.

[3]
MAKNI M, JEMAI R, KRIAA W, et al. Citrus limon from tunisia:phytochemical and physicochemical properties and biological activities[J]. BioMed Research International, 2018, 2018:6251546.

[4]
DIAB K A. In vitro studies on phytochemical content,antioxidant,anticancer,immunomodulatory,and antigenotoxic activities of lemon,grapefruit,and mandarin citrus peels[J]. Asian Pacific Journal of Cancer Prevention:APJCP, 2016, 17(7):3559-3567.

[5]
CASELLA M L, PARODY J P, CEBALLOS M P, et al. Quercetin prevents liver carcinogenesis by inducing cell cycle arrest,decreasing cell proliferation and enhancing apoptosis[J]. Molecular Nutrition & Food Research, 2014, 58(2):289-300.

[6]
余诗强, 赵玉超, 熊本海, 等. 柑橘黄酮的活性功能机制及柑橘提取物在动物生产中应用的研究进展[J]. 动物营养学报, 2022, 34(7):4155-4164.

DOI

YU S Q, ZHAO Y C, XIONG B H, et al. Research progress on active functional mechanism of citrus flavonoids and application of citrus extracts in animal production[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4155-4164. (in Chinese)

DOI

[7]
ZENG X, SU W W, ZHENG Y Y, et al. Pharmacokinetics,tissue distribution,metabolism,and excretion of naringin in aged rats[J]. Frontiers in Pharmacology, 2019, 10:34.

[8]
ZHANG M X, NAN H J, WANG Y J, et al. Comparison of flavonoid compounds in the flavedo and juice of two pummelo cultivars (Citrus grandis L. Osbeck) from different cultivation regions in China[J]. Molecules, 2014, 19(11):17314-17328.

[9]
ZHANG M, ZHU S Y, YANG W J, et al. The biological fate and bioefficacy of citrus flavonoids:bioavailability,biotransformation,and delivery systems[J]. Food & Function, 2021, 12(8):3307-3323.

[10]
ZHAO C Y, WANG F, LIAN Y H, et al. Biosynthesis of citrus flavonoids and their health effects[J]. Critical Reviews in Food Science and Nutrition, 2020, 60(4):566-583.

DOI PMID

[11]
NAGY T, RÓTH G, KUKI Á, et al. Mass spectral filtering by mass-remainder analysis (MARA) at high resolution and its application to metabolite profiling of flavonoids[J]. International Journal of Molecular Sciences, 2021, 22(2):864.

[12]
WANG Y, LIU X J, CHEN J B, et al. Citrus flavonoids and their antioxidant evaluation[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(14):3833-3854.

[13]
AHMED O M, ABOUZID S F, AHMED N A, et al. An up-to-date review on citrus flavonoids:chemistry and benefits in health and diseases[J]. Current Pharmaceutical Design, 2021, 27(4):513-530.

[14]
KIM S, CHEN J, CHENG T J, et al. PubChem 2023 update[J]. Nucleic Acids Research,2023, 51(D1):D1373-D1380.

[15]
CHUNG T W, LI S M, LIN C C, et al. Antinociceptive and anti-inflammatory effects of the citrus flavanone naringenin[J]. Tzu Chi Medical Journal, 2019, 31(2):81-85.

[16]
FENG X J, WENG D, ZHOU F F, et al. Activation of PPARγ by a natural flavonoid modulator,apigenin ameliorates obesity-related inflammation via regulation of macrophage polarization[J]. EBioMedicine, 2016, 9:61-76.

[17]
PARK C H, MIN S Y, YU H W, et al. Effects of apigenin on RBL-2H3,RAW264.7,and HaCaT cells:anti-allergic,anti-inflammatory,and skin-protective activities[J]. International Journal of Molecular Sciences, 2020, 21(13):4620.

[18]
TSAI C F, CHEN G W, CHEN Y C, et al. Regulatory effects of quercetin on M1/M2 macrophage polarization and oxidative/antioxidative balance[J]. Nutrients, 2021, 14(1):67.

[19]
TUÑÓN M J, GARCÍA-MEDIAVILLA M V, SÁNCHEZ-CAMPOS S, et al. Potential of flavonoids as anti-inflammatory agents:modulation of pro-inflammatory gene expression and signal transduction pathways[J]. Current Drug Metabolism, 2009, 10(3):256-271.

[20]
KHAN A, IKRAM M, HAHM J R, et al. Antioxidant and anti-inflammatory effects of citrus flavonoid hesperetin:special focus on neurological disorders[J]. antioxidants, 2020, 9(7):609.

[21]
LU Y H, SU M Y, HUANG H Y, et al. Protective effects of the citrus flavanones to PC12 cells against cytotoxicity induced by hydrogen peroxide[J]. Neuroscience Letters, 2010, 484(1):6-11.

[22]
AALIKHANI M, SAFDARI Y, JAHANSHAHI M, et al. Comparison between hesperidin,coumarin,and deferoxamine iron chelation and antioxidant activity against excessive iron in the iron overloaded mice[J]. Frontiers in Neuroscience, 2022, 15:811080.

[23]
KIM S, WOO E R, LEE D G. Apigenin promotes antibacterial activity via regulation of nitric oxide and superoxide anion production[J]. Journal of Basic Microbiology, 2020, 60(10):862-872.

[24]
AB RASHID S, ROSLI N S M, HWAY T S, et al. Naringenin-grafted polyvinyl alcohol (Na/PVA) nanoparticles:synthesis,characterisation and in vitro evaluation of its antimicrobial efficiency on fresh beef[J]. Tropical Life Sciences Research, 2022, 33(1):143-161.

[25]
ZHAO X L, CUI X Y, YANG Y P, et al. Synergistic effect of quercetin on antibacterial activity of florfenicol against Aeromonas hydrophila in vitro and in vivo[J]. Antibiotics-Basel, 2022, 11(7):929.

[26]
GUO C, SHAN Y X, YANG Z Q, et al. Chemical composition,antioxidant,antibacterial,and tyrosinase inhibition activity of extracts from Newhall navel orange (Citrus sinensis Osbeck cv.Newhall) peel[J]. Journal of the Science of Food and Agriculture, 2020, 100(6):2664-2674.

[27]
LIU W T, ZHENG W K, CHENG L P, et al. Citrus fruits are rich in flavonoids for immunoregulation and potential targeting ACE2[J]. Natural Products and Bioprospecting, 2022, 12(1):4.

DOI PMID

[28]
CAMPS-BOSSACOMA M, FRANCH À, PÉREZ-CANO F J, et al. Influence of hesperidin on the systemic and intestinal rat immune response[J]. Nutrients, 2017, 9(6):580.

[29]
MITANI M, MINATOGAWA Y, NAKAMOTO A, et al. Sudachitin,polymethoxyflavone from Citrus sudachi,enhances antigen-specific cellular and humoral immune responses in BALB/c mice[J]. Journal of Clinical Biochemistry and Nutrition, 2019, 64(2):158-163.

[30]
DÜKEL M, TAVSAN Z, KAYALI H A. Flavonoids regulate cell death-related cellular signaling via ROS in human colon cancer cells[J]. Process Biochemistry, 2021, 101:11-25.

[31]
KIM E, KIM Y J, JI Z W, et al. ROR activation by Nobiletin enhances antitumor efficacy via suppression of IκB/NF-κB signaling in triple-negative breast cancer[J]. Cell Death & Disease, 2022, 13(4):374.

[32]
LUO X G, WANG J, CHEN H Q, et al. Identification of flavoanoids from finger citron and evaluation on their antioxidative and antiaging activities[J]. Frontiers in Nutrition, 2020, 7:584900.

[33]
TAN C S, LOH Y C, CH'NG Y S, et al. Vasorelaxant and chemical fingerprint studies of Citrus reticulatae pericarpium extracts[J]. Journal of Ethnopharmacology, 2019, 232:135-144.

[34]
SUN X M, DENG H D, SHAN B J, et al. Flavonoids contribute most to discriminating aged Guang Chenpi (Citrus reticulata ‘Chachi') by spectrum-effect relationship analysis between LC-Q-Orbitrap/MS fingerprint and ameliorating spleen deficiency activity[J]. Food Science & Nutrition, 2023, 11(11):7039-7060.

[35]
ZHANG Q Q, FENG F. The effects of different varieties of Aurantii Fructus Immaturus on the potential toxicity of Zhi-Zi-Hou-Po decoction based on spectrum-toxicity correlation analysis[J]. Molecules (Basel,Switzerland), 2019, 24(23):4254.

[36]
MAJO D D, GIAMMANCO M, GUARDIA M L, et al. Flavanones in citrus fruit:structure-antioxidant activity relationships[J]. Food Research International, 2005, 38(10):1161-1166.

[37]
GUAN T Z, BIAN C F, MA Z. In vitro and in silico perspectives on the activation of antioxidant responsive element by citrus-derived flavonoids[J]. Frontiers in Nutrition, 2023, 10:1257172.

[38]
MA Q G, TANG Y, SANG Z P, et al. Structurally diverse biflavonoids from the fruits of Citrus medica L.var.sarcodactylis Swingle and their hypolipidemic and immunosuppressive activities[J]. Bioorganic Chemistry, 2021, 117:105450.

[39]
GAO Z, GAO W, ZENG S L, et al. Chemical structures,bioactivities and molecular mechanisms of citrus polymethoxyflavones[J]. Journal of Functional Foods, 2018, 40:498-509.

[40]
ARANGANATHAN S, SELVAM J P, NALINI N. Effect of hesperetin,a citrus flavonoid,on bacterial enzymes and carcinogen-induced aberrant crypt foci in colon cancer rats:a dose-dependent study[J]. Journal of Pharmacy and Pharmacology, 2008, 60(10):1385-1392.

[41]
LIU J L, KONG Y C, MIAO J Y, et al. Spectroscopy and molecular docking analysis reveal structural specificity of flavonoids in the inhibition of α-glucosidase activity[J]. International Journal of Biological Macromolecules, 2020, 152:981-989.

[42]
LI W F, TIAN H, GUO F T, et al. Inhibition characteristics and mechanism of tyrosinase using five citrus flavonoids:a spectroscopic and molecular dynamics simulation study[J]. Journal of Food Biochemistry, 2022, 46(12):e14484.

[43]
WANG Y, QIAN J, CAO J P, et al. Antioxidant capacity,anticancer ability and flavonoids composition of 35 citrus (citrus reticulata blanco) varieties[J]. Molecules(Basel,Switzerland), 2017, 22(7):1114.

[44]
LONG X Y, ZENG X G, YAN H T, et al. Flavonoids composition and antioxidant potential assessment of extracts from Gannanzao navel orange (Citrus sinensis Osbeck Cv. Gannanzao) peel[J]. Natural Product Research, 2021, 35(4):702-706.

[45]
CHEN Y T, XU Y J, WEN J, et al. Analysis of flavonoid metabolites in citrus reticulata ‘chachi' at different collection stages using UPLC-ESI-MS/MS[J]. Foods, 2023, 12(21):3945.

[46]
MU Q X, ZHANG Y P, CUI Y, et al. Study on closely related citrus CMMs based on chemometrics and prediction of components-targets-diseases network by ingenuity pathway analysis[J]. Evidence-Based Complementary and Alternative Medicine:eCAM, 2022, 2022:1106353.

[47]
NAEEM A, MING Y, PENGYI H, et al. The fate of flavonoids after oral administration:a comprehensive overview of its bioavailability[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(22):6169-6186.

[48]
BUDEL R G, DA SILVA D A, MOREIRA M P, et al. Toxicological evaluation of naringin-loaded nanocapsules in vitro and in vivo[J]. Colloids and Surfaces.B,Biointerfaces, 2020, 188:110754.

[49]
JAGANATH I B, MULLEN W, EDWARDS C A, et al. The relative contribution of the small and large intestine to the absorption and metabolism of rutin in man[J]. Free Radical Research, 2006, 40(10):1035-1046.

DOI PMID

[50]
CHEN L, LIN X J, FAN X Y, et al. A self-emulsifying formulation of Sonchus oleraceus Linn for an improved anti-diabetic effect in vivo[J]. Food & Function, 2020, 11(2):1225-1229.

[51]
DAY A J, CAÑADA F J, DÍAZ J C, et al. Dietary flavonoid and isoflavone glycosides are hydrolysed by the lactase site of lactase phlorizin hydrolase[J]. FEBS Letters, 2000, 468(2/3):166-170.

[52]
HOLLMAN P C, BIJSMAN M N, VAN GAMEREN Y, et al. The sugar moiety is a major determinant of the absorption of dietary flavonoid glycosides in man[J]. Free Radical Research, 1999, 31(6):569-573.

DOI PMID

[53]
CHEN L, CAO H, HUANG Q, et al. Absorption,metabolism and bioavailability of flavonoids:a review[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(28):7730-7742.

[54]
YUE Z X, GU Y X, YAN T C, et al. Phase Ⅰ and phase Ⅱ metabolic studies of Citrus flavonoids based on electrochemical simulation and in vitro methods by EC-Q-TOF/MS and HPLC-Q-TOF/MS[J]. Food Chemistry, 2022, 380:132202.

[55]
PLA-PAGÀ L, COMPANYS J, CALDERÓN-PÉREZ L, et al. Effects of hesperidin consumption on cardiovascular risk biomarkers:a systematic review of animal studies and human randomized clinical trials[J]. Nutrition Reviews, 2019, 77(12):845-864.

[56]
PASSAMONTI S, VRHOVSEK U, VANZO A, et al. The stomach as a site for anthocyanins absorption from food[J]. FEBS Letters, 2003, 544(1/2/3):210-213.

[57]
TALAVÉRA S, FELGINES C, TEXIER O, et al. Anthocyanins are efficiently absorbed from the small intestine in rats[J]. The Journal of Nutrition, 2004, 134(9):2275-2279.

[58]
ZENG X, YAO H L, ZHENG Y Y, et al. Metabolite profiling of naringin in rat urine and feces using stable isotope-labeling-based liquid chromatography-mass spectrometry[J]. Journal of Agricultural and Food Chemistry, 2020, 68(1):409-417.

DOI PMID

[59]
YU S Q, LI L X, ZHAO H Y, et al. Dietary citrus flavonoid extract improves lactational performance through modulating rumen microbiome and metabolites in dairy cows[J]. Food & Function, 2023, 14(1):94-111.

[60]
ZHAO Y C, YU S Q, ZHAO H Y, et al. Lipidomic profiling using GC and LC-MS/MS revealed the improved milk quality and lipid composition in dairy cows supplemented with citrus peel extract[J]. Food Research International, 2022, 161:111767.

[61]
ÍTAVO L C V, KOZERSKI N D, ÍTAVO C C B F, et al. Orange juice industry by-product silage can increase fat and protein in Holstein cow's milk[J]. Journal of Dairy Research, 2020, 87(4):400-405.

DOI PMID

[62]
YU S Q, LI L X, ZHAO H Y, et al. Citrus flavonoid extracts alter the profiling of rumen antibiotic resistance genes and virulence factors of dairy cows[J]. Frontiers in Microbiology, 2023, 14:1201262.

[63]
BALCELLS J, ARIS A, SERRANO A, et al. Effects of an extract of plant flavonoids (Bioflavex) on rumen fermentation and performance in heifers fed high-concentrate diets[J]. Journal of Animal Science, 2012, 90(13):4975-4984.

DOI PMID

[64]
ZHAO Y C, YU S Q, LI L X, et al. Feeding citrus flavonoid extracts decreases bacterial endotoxin and systemic inflammation and improves immunometabolic status by modulating hindgut microbiome and metabolome in lactating dairy cows[J]. Animal Nutrition, 2023, 13:386-400.

DOI PMID

[65]
ZHAO Y C, YU S Q, ZHAO H Y, et al. Integrated multi-omics analysis reveals the positive leverage of citrus flavonoids on hindgut microbiota and host homeostasis by modulating sphingolipid metabolism in mid-lactation dairy cows consuming a high-starch diet[J]. Microbiome, 2023, 11(1):236.

DOI PMID

[66]
ZHAO Y C, YU S Q, ZHANG S Y, et al. Microbiome-metabolomics insights into the milk of lactating dairy cows to reveal the health-promoting effects of dietary citrus peel extracts on the mammary metabolism[J]. Foods, 2022, 11(24):4119.

Outlines

/