RESEARCH PAPER

Effects of Alginate Oligosaccharide on Antioxidant Capacity, Immune Function and Intestinal Epithelial Barrier of Low Birth Weight Weaned Piglets

  • DENG Xiong , 1 ,
  • XIONG Yanfei 2 ,
  • WU Shusong 2 ,
  • XIA Bing 1 ,
  • LIU Ming , 1, *
Expand
  • 1 College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
  • 2 College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China

Received date: 2024-01-25

  Online published: 2024-07-09

Abstract

This experiment was conducted to investigate the effects of alginate oligosaccharide (AOS) on the antioxidant capacity, immune function and intestinal epithelial barrier of low birth weight (LBW) weaned piglets. One hundred and eight 28-day-old weaned piglets were selected for the experiment, of which 36 piglets with normal birth weight (NBW) were selected as the NBW group, and 72 LBW piglets were randomly divided into LBW group and AOS group. Each group has 6 replicates, with 6 pigs per replicate. Pigs in the NBW and the LBW groups were fed a basal diet, and 500 mg/kg AOS was added to the basal diet fed to the AOS group for 28 days. The results showed as follows: 1) the average daily gain and average daily feed intake in the LBW and AOS groups were significantly lower than those of the NBW group (P<0.05). 2) Serum low density lipoprotein cholesterol (LDL-C) content was significantly lower in the AOS group compared with the LBW group (P<0.05). 3) The activities of serum catalase (CAT), superoxide dismutase (SOD), and total antioxidant capacity (T-AOC) were significantly elevated in the AOS group compared with the LBW group (P<0.05). 4) The contents of interleukin-6 (IL-6) and tumor necrosis factor-α (TNF-α) in the serum of piglets in the LBW group were significantly higher than those in the NBW and AOS groups (P<0.05); and the content of immunoglobulin M (IgM) in the serum of piglets in the AOS group was significantly higher than that in the LBW and NBW groups (P<0.05). 5) Compared with the LBW group, the villus height and the ratio of villus height/crypt depth in the jejunum and ileum of piglets in the AOS group were significantly higher than those in the LBW group (P<0.05), and the mRNA relative expression levels of tight junction-related genes zonula occluden-1 (ZO-1), Claudin-1 and Occludin in the ileal mucosa were significantly increased (P<0.05). The results indicate that AOS can improve the health of LBW piglets by regulating their antioxidant capacity, immune function and intestinal epithelial barrier integrity.

Cite this article

DENG Xiong , XIONG Yanfei , WU Shusong , XIA Bing , LIU Ming . Effects of Alginate Oligosaccharide on Antioxidant Capacity, Immune Function and Intestinal Epithelial Barrier of Low Birth Weight Weaned Piglets[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4271 -4280 . DOI: 10.12418/CJAN2024.368

现代繁育技术的进步不仅使母猪窝产仔数增加,低出生重(LBW)仔猪的数量也不断增多。初生重低于1 kg的仔猪被称为LBW仔猪,在新生仔猪中的比例已达到15%~20%[1-2]。相对于正常初生重(NBW)仔猪,LBW仔猪发病率和死亡率更高,这增加了规模化猪场在饲养管理、疾病预防等方面的成本,给养猪企业造成了巨大的经济损失[3]。目前针对LBW仔猪的研究表明:1)LBW会降低仔猪平均日采食量和平均日增重,破坏其机体氧化还原平衡,导致机体产生氧化损伤[4];2)与NBW仔猪相比,LBW仔猪脾脏细胞因子基因表达量、脾脏和胸腺免疫相关基因表达量降低,免疫功能下降[5];3)LBW仔猪肠道发育迟缓,肠道紧密连接蛋白闭合蛋白(Occludin)、封闭蛋白-1(Claudin-1)基因表达量降低,肠道黏膜屏障功能受损[6-7]
褐藻寡糖(AOS)是一种由褐藻胶降解产生的功能性低聚糖,具有多种生物活性,包括抗氧化、抗炎、抗肿瘤、免疫调节和调节肠道菌群等[8]。Wan等[9]研究表明,补充AOS能减少线粒体依赖性细胞凋亡,促进肠上皮细胞增殖,改善肠道黏膜屏障功能。此外,Wang等[10]研究发现,在高脂饲粮中添加AOS可降低C57BL/6J小鼠血清中低密度脂蛋白胆固醇(LDL-C)含量。Wan等[11]研究表明,AOS能够维护NBW仔猪肠道健康,改善其生长性能。但关于AOS在LBW仔猪饲粮中应用的研究较少。因此,本试验探究饲粮中添加AOS对LBW仔猪生长性能、抗氧化能力、免疫功能和肠道上皮屏障的影响,以期为AOS在LBW仔猪上的应用提供科学依据。

1 材料与方法

1.1 试验设计

试验仔猪由安徽蒙城罗桥九牧养殖场第一分场提供,共选取108头28日龄的长白断奶仔猪,将其分为3个组:36头NBW仔猪(初生重为1.5~1.8 kg)作为NBW组,其初始体重为(7.90±0.31) kg;36头LBW仔猪(初生重为0.7~1.0 kg)作为LBW组,其初始体重为(5.67±0.54) kg;36头LBW仔猪(初生重为0.7~1.0 kg)作为AOS组,其初始体重为(5.66±0.55) kg。LBW仔猪从体况接近、胎次相近和产期一致的72头母猪所产的新生仔猪中选取,各组内仔猪公母比例一致。NBW组和LBW组饲喂基础饲粮,AOS组在基础饲粮中添加500 mg/kg AOS。每组设6个重复,每个重复6头猪。试验期28 d。试验猪只自由采食与饮水,按养殖场标准免疫程序进行免疫接种。参照NRC(2012)中生长猪5~7 kg阶段营养标准设计能够满足试验猪只营养需要的基础饲粮,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 53.37
膨化大豆 Extruded soybean 10.00
豆粕 Soybean meal 16.00
乳清粉 Whey powder 12.00
鱼粉 Fish meal 5.00
食盐 NaCl 0.30
豆油 Soybean oil 0.72
磷酸氢钙 CaHPO4 0.78
石粉 Limestone 1.00
L-赖氨酸盐酸盐 L-lysine·HCl 0.39
DL-蛋氨酸 DL-methionine 0.16
L-色氨酸 L-tryptophan 0.03
L-苏氨酸 L-threonine 0.15
预混料 Premix1) 0.10
合计 Total 100.00
营养水平 Nutrient levels2)
消化能 DE/(MJ/kg) 14.47
粗蛋白质 CP 18.47
总磷 TP 0.54
钙 Ca 0.71
全消化道标准可消化磷 STTD P 0.48
标准回肠可消化赖氨酸 SID Lys 1.53
标准回肠可消化蛋氨酸 SID Met 0.49
标准回肠可消化色氨酸 SID Trp 0.27
标准回肠可消化苏氨酸 SID Thr 0.92

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 10 500 IU,VD 3 300 IU,VE 22.5 IU,VK 3 mg,VB2 7.5 mg,VB1 0.03 mg,K (as potassium iodide) 19 mg,Fe (as ferrous sulfate) 333 mg,Se (as sodium selenite) 6 mg,Cu (as cupric chloride) 10 mg,Mn (as manganese sulfate) 129 mg,Zn (as zincoxide) 400 mg,氯化胆碱 choline chloride 500 mg,生物素 biotin 0.12 mg,叶酸 folic acid 1.5 mg,烟酸 niacin 30 mg,泛酸钙 calcium pantothenate 30 mg。

2)粗蛋白质、钙和总磷为实测值,其余为计算值。CP, Ca and TP were measured values, while the rest were calculated values.

1.2 样品采集

试验第28天仔猪禁食8 h后称重,从每组的每个重复中选取1头接近平均体重的仔猪,共18头,前腔静脉采血,室温静置30 min后1 500×g离心10 min,将收集到的血清分装于1.5 mL离心管中,-20 ℃保存。采血后将仔猪屠宰,取约1 cm长的十二指肠、空肠、回肠组织固定于4%多聚甲醛中;取约10 cm的回肠中段组织刮取肠黏膜,-80 ℃保存。

1.3 指标测定

1.3.1 饲粮营养成分

参照GB/T 6432—2018方法测定饲粮中粗蛋白质含量,参照GB/T 6437—2018方法测定饲粮中总磷含量,参照GB/T 13885—2017方法测定饲粮中钙含量。根据饲料原料中养分含量计算消化能以及全消化道标准可消化磷、标准回肠可消化赖氨酸、标准回肠可消化蛋氨酸、标准回肠可消化色氨酸[12]

1.3.2 生长性能

分别在试验开始当天和试验第28天07:00称取每头仔猪的重量,分别记录为初重和末重,计算平均日增重(ADG);每天记录采食量、余料量以及腹泻情况,计算平均日采食量(ADFI)、料重比(F/G)和腹泻率。腹泻评定标准与腹泻率的计算参照Tan等[13]的方法。

1.3.3 血清生化、抗氧化和免疫指标

严格按照试剂盒(南京建成生物工程研究所产品)说明书检测血清中葡萄糖(GLU)、总胆固醇(TC)、高密度脂蛋白胆固醇(HDL-C)、LDL-C、甘油三酯(TG)、免疫球蛋白A(IgA)、免疫球蛋白M(IgM)、免疫球蛋白 G(IgG)、丙二醛(MDA)含量与超氧化物歧化酶(SOD)活性、总抗氧化能力(T-AOC)。严格按照酶联免疫吸附测定(ELISA)试剂盒(湖南科航生物有限公司产品)测定血清中肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)、白细胞介素-10(IL-10)含量。

1.3.4 肠道组织形态

取固定好的十二指肠、空肠、回肠肠段,用石蜡包埋后制成切片,使用苏木精-伊红染色,在显微镜下观察绒毛形态,测定绒毛高度、隐窝深度及绒毛高度/隐窝深度比值。

1.3.5 回肠黏膜中紧密连接相关基因表达

采用实时荧光定量PCR方法测定回肠黏膜中紧密连接相关基因闭锁小带蛋白-1(ZO-1)、封闭蛋白-1(Claudin-1)、闭合蛋白(Occludin)的mRNA相对表达量。取-80 ℃冻存的回肠黏膜组织,每15~25 mg加入0.5 mL Trizol,在超净台内进行总RNA的提取。使用Evo M-MLV反转录试剂盒(湖南艾科瑞生物工程有限公司)合成cDNA。PCR所用引物由上海生工生物工程有限公司合成,引物序列见表2。使用SYBR Green Pro Taq HS 预混型qPCR试剂盒(湖南艾科瑞生物工程有限公司)进行实时荧光定量PCR检测。反应体系为10 μL:5 μL SYBR Green Pro Taq HS Premix、1 μL cDNA、0.2 μL上游引物、0.2 μL下游引物和3.6 μL无RNA酶水。以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,目基因mRNA相对表达量的计算使用2-△△Ct方法。
表2 引物序列信息

Table 2 Primer sequence information

基因
Genes
GenBank登录号
GenBank accession number
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
闭锁小带蛋白-1
ZO-1
XM-021098896.1 F:GAGGATGGTCACACCGTGGT
R:GGAGGATGCTGTTGTCTCGC
97
封闭蛋白-1
Claudin-1
XM-001244539.1 F:TCAATACAGGAGGGAAGCCAT
R:ATATTTAAGGACCGCCCTCTCC
144
闭合蛋白
Occludin
XM-005672525.3 F:ATGCTTTCTCAGCCAGCGTA
R:AAGGTTCCATAGCCTCGGTC
113
甘油醛-3-磷酸脱氢酶
GAPDH
XM-021091114.1 F:GAAGGTCGGAGTGAACGGAT
R:CATGGGTAGAATCATACTGGAACA
132

1.4 数据统计与分析

所有试验数据由Excel 2021整理后用SPSS 25.0软件进行单因素方差分析(one-way ANOVA),选用Duncan氏法进行多重比较,结果以平均值±标准差表示,P<0.05表示差异显著,0.05≤P<0.10表示差异有显著趋势。

2 结果

2.1 AOS对LBW断奶仔猪生长性能的影响

表3可知,LBW组仔猪的初重、末重、平均日增重、平均日采食量均显著低于NBW组(P<0.05),但与AOS组相比差异不显著(P>0.05);仔猪料重比各组之间无显著差异(P>0.05);AOS组仔猪腹泻率较LBW组有降低趋势(P=0.089)。
表3 AOS对LBW断奶仔猪生长性能的影响

Table 3 Effects of AOS on growth performance of LBW weaned piglets

项目
Items
组别 Groups P
P-value
NBW LBW AOS
初重 Initial weight/kg 7.90±0.31a 5.67±0.54b 5.66±0.55b <0.001
末重 Final weight/kg 13.55±2.02a 9.39±1.84b 9.36±1.59b <0.001
平均日增重 ADG/(g/d) 209.79±33.70a 137.65±54.71b 135.84±54.86b <0.001
平均日采食量 ADFI/(g/d) 374.11±9.69a 239.13±31.50b 254.96±11.78b <0.001
料重比 F/G 1.81±0.20 1.79±0.31 1.90±0.17 0.847
腹泻率 Diarrhea rate/% 6.28±1.52 8.74±1.52 6.07±0.85 0.089

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 AOS对LBW断奶仔猪血清生化指标的影响

表4可知,AOS组仔猪血清中LDL-C含量显著低于LBW组(P<0.05),与NBW组无显著差异(P>0.05);AOS组、NBW组仔猪血清中HDL-C含量较LBW组有下降趋势(P=0.099);仔猪血清中GLU、TC、HDL-C、TG含量各组之间无显著差异(P>0.05)。
表4 AOS对LBW断奶仔猪血清生化指标的影响

Table 4 Effects of AOS on serum biochemical indexes of LBW weaned pigletsmmol/L

项目
Items
组别 Groups P
P-value
NBW LBW AOS
葡萄糖 GLU 4.65±0.28 5.10±0.37 5.23±0.53 0.060
总胆固醇 TC 2.40±0.54 2.41±0.59 2.26±0.38 0.768
高密度脂蛋白胆固醇 HDL-C 1.32±0.27 1.58±0.19 1.30±0.22 0.099
低密度脂蛋白胆固醇 LDL-C 1.29±0.37ab 1.61±0.33a 0.93±0.30b 0.010
甘油三酯 TG 0.15±0.05 0.12±0.07 0.11±0.04 0.398

2.3 AOS对LBW断奶仔猪血清抗氧化指标的影响

表5可知,AOS组仔猪血清中CAT活性和T-AOC较LBW组显著增加(P<0.05),与NBW组相比无显著差异(P>0.05);AOS组仔猪血清中SOD活性显著高于LBW组和NBW组(P<0.05);仔猪血清中MDA含量在各组之间无显著差异(P>0.05)。
表5 AOS对LBW断奶仔猪血清抗氧化指标的影响

Table 5 Effects of AOS on serum antioxidant indexes of LBW weaned piglets

项目
Items
组别 Groups P
P-value
NBW LBW AOS
过氧化氢酶 CAT/(U/mL) 48.50±1.67ab 46.70±4.06b 51.99±2.75a 0.024
超氧化物歧化酶 SOD/(U/mL) 31.86±1.39b 32.07±2.60b 41.59±0.73a 0.001
丙二醛 MDA/(nmol/mL) 4.28±1.17 4.48±0.79 3.79±0.82 0.449
总抗氧化能力 T-AOC/(U/mL) 1.75±0.36ab 1.62±0.12b 1.98±0.10a 0.043

2.4 AOS对LBW断奶仔猪血清免疫指标的影响

表6可知,AOS组仔猪血清中IL-6、TNF-α含量显著低于LBW组(P<0.05),与NBW组相比无显著差异(P>0.05);AOS组仔猪血清中IgM含量显著高于LBW组和NBW组(P<0.05);仔猪血清中IL-10、IgA、IgG含量各组之间无显著差异(P>0.05)。
表6 AOS对LBW断奶仔猪血清免疫指标的影响

Table 6 Effects of AOS on serum immune indexes of LBW weaned piglets

项目
Items
组别 Groups P
P-value
NBW LBW AOS
白细胞介素-6 IL-6/(pg/mL) 858.15±23.37b 927.39±22.06a 839.51±21.25b 0.001
白细胞介素-10 IL-10/(pg/mL) 113.95±16.87 97.45±19.17 114.94±6.21 0.114
肿瘤坏死因子-α TNF-α/(pg/mL) 384.10±21.15b 416.41±23.33a 380.42±24.26b 0.030
免疫球蛋白A IgA(mg/mL) 1.29±0.17 1.26±0.23 1.30±0.26 0.949
免疫球蛋白G IgG/(mg/mL) 17.36±1.22 17.46±1.55 17.54±0.97 0.972
免疫球蛋白M IgM/(mg/mL) 18.51±0.53b 18.13±0.16b 19.35±0.66a 0.002

2.5 AOS对LBW断奶仔猪肠道上皮屏障的影响

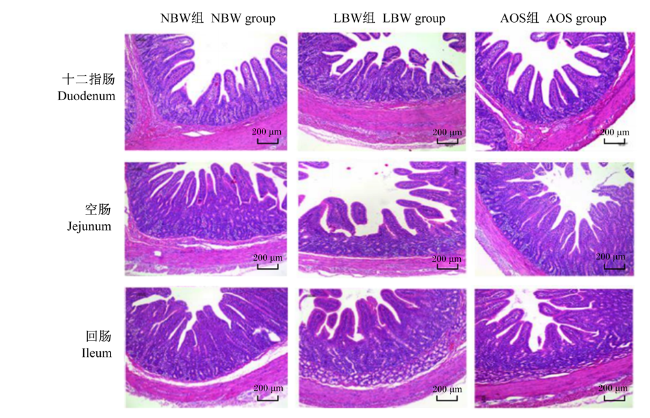
图1所示为各组断奶仔猪十二指肠、空肠、回肠组织切片,通过组织切片统计各肠段的绒毛高度、隐窝深度,计算绒毛高度/隐窝深度比值。由表7可知,AOS组仔猪十二指肠绒毛高度与LBW组相比有增加趋势(P=0.063);AOS组仔猪空肠和回肠绒毛高度和绒毛高度/隐窝深度比值较LBW组显著增加(P<0.05),与NBW组差异不显著(P>0.05)。
图1 各组断奶仔猪十二指肠、空肠、回肠组织切片

Fig.1 Tissue slices of duodenum, jejunum and ileum of weaned piglets in each group

表7 AOS对LBW断奶仔猪肠道组织形态的影响

Table 7 Effects of AOS on intestinal morphology of LBW weaned piglets

项目
Items
组别 Groups P
P-value
NBW LBW AOS
十二指肠 Duodenum
绒毛高度 VH/μm 459.24±13.06 445.25±18.79 460.77±18.70 0.063
隐窝深度 CD/μm 243.40±8.38 245.44±9.78 236.22±18.01 0.194
绒毛高度/隐窝深度比值 VH/CD ratio 1.89±0.09 1.85±0.09 1.96±0.18 0.131
空肠 Jejunum
绒毛高度 VH/μm 446.11±15.66ab 431.22±19.71b 452.49±25.38a 0.036
隐窝深度 CD/μm 238.58±11.20 239.20±18.87 229.14±14.48 0.207
绒毛高度/隐窝深度比值 VH/CD ratio 1.87±0.13ab 1.81±0.14b 1.98±0.14a 0.015
回肠 Ileum
绒毛高度 VH/μm 451.57±12.51a 431.99±15.69b 458.92±19.55a 0.001
隐窝深度 CD/μm 254.07±8.97 258.07±8.96 249.54±11.91 0.092
绒毛高度/隐窝深度比值 VH/CD ratio 1.78±0.06ab 1.67±0.11b 1.84±0.13a 0.009
表8可知,与LBW组相比,AOS组仔猪回肠黏膜中ZO-1和Occludin mRNA相对表达量显著增加(P<0.05);AOS组仔猪回肠黏膜中Claudin-1mRNA相对表达量显著高于LBW组和NBW组(P<0.05);LBW组仔猪回肠黏膜中ZO-1和Occludin mRNA相对表达量较NBW组显著降低(P<0.05)。
表8 AOS对LBW断奶仔猪回肠黏膜中紧密连接相关基因表达的影响

Table 8 Effects of AOS on expression of tight junction-related genes in ileal mucosa of LBW weaned piglets

项目
Items
组别 Groups P
P-value
NBW LBW AOS
闭锁小带蛋白-1 ZO-1 1.00±0.95a 0.61±0.17b 1.00±0.35a 0.026
封闭蛋白-1 Claudin-1 1.00±0.19b 0.85±0.27b 1.42±0.36a 0.020
闭合蛋白 Occludin 1.00±0.19a 0.65±0.22b 1.12±0.15a 0.005

3 讨论

AOS具有抗炎、抗氧化、抗菌、改善肠道健康等多种生物活性。本试验研究了AOS对LBW断奶仔猪生长性能、抗氧化能力、免疫功能以及肠道上皮屏障的影响,研究发现在LBW断奶仔猪饲粮中添加500 mg/kg AOS对其平均日采食量和平均日增重无显著改善作用,但可使其的腹泻率有所降低(未达显著水平);AOS能显著降低LBW断奶仔猪血清中LDL-C含量以及促炎细胞因子IL-6、TNF-α含量,增加血清中IgM含量,增强机体免疫功能;AOS能显著提高LBW断奶仔猪血清中CAT、SOD活性与T-AOC,提高抗氧化能力;AOS能改善LBW断奶仔猪肠道组织形态和促进肠道紧密连接蛋白基因的表达,维持肠道健康。从本研究结果看,尽管AOS未显著提升LBW断奶仔猪的生长性能,但在一定程度改善了其健康状态,我们推测延长试验周期可能会对LBW断奶仔猪的生长性能有提高作用,但这需要进一步证实。
本研究发现饲粮中添加AOS对LBW断奶仔猪的生长性能没有显著影响,但其在抗氧化能力、免疫功能、肠道上皮屏障功能上具有一定改善作用。其原因可能是,LBW仔猪较NBW仔猪机体器官发育迟缓,对营养物质吸收利用能力和健康状态较弱,短时间内AOS对其血液和肠道指标的改善无法进一步对其生长性能产生显著影响。也有研究表明,LBW仔猪断奶应激导致的线粒体自噬障碍、抗氧化功能下降、炎症损伤与NBW仔猪相比更加显著[14],导致AOS对LBW仔猪生长性能的改善效果不如在NBW仔猪上显著。
氧化应激产生的主要原因是自由基的产生过多或清除不足[15]。MDA是氧化应激的标志产物,SOD和CAT是可以清除体内过多自由基的内源性抗氧化酶[16]。T-AOC是指各种抗氧化物质和抗氧化酶构成的总抗氧化水平。Zhang等[17]研究发现,LBW仔猪的抗氧化能力显著低于NBW仔猪。Feng等[18]研究表明,AOS能有效抑制氧化应激,帮助机体抵抗氧化应激引起的疾病。Wan等[19]在NBW仔猪上的研究发现,饲粮中添加AOS能显著增加断奶仔猪血清中CAT活性和T-AOC,增强其抗氧化能力。本研究探究了AOS对LBW断奶仔猪抗氧化能力的影响,结果显示LBW仔猪血清中MDA含量较NBW仔猪有增加趋势,表明LBW仔猪的氧化应激在一定程度上高于NBW仔猪。在饲粮中添加AOS的LBW仔猪血清中CAT、SOD活性和T-AOC显著增加,这表明AOS能增强LBW断奶仔猪的抗氧化能力,改善机体健康。
炎症是一种保护性免疫反应,通过消除受损细胞、刺激物、病原体等有害刺激物来维持组织内稳态[20]。研究表明,机体免疫反应失调会促进LDL-C的积累,AOS可通过调节低密度脂蛋白受体(LDLR)的表达降低血清中LDL-C含量[21-22]。HDL-C在免疫反应中发挥抗炎作用,炎症发生时会改变自身结构结合促炎物质[23]。本研究发现,饲粮中添加AOS能够显著降低LBW断奶仔猪血清中LDL-C含量,饲喂基础饲粮的NBW仔猪和饲喂添加AOS饲粮的LBW仔猪血清中HDL-C含量有低于饲喂基础饲粮的LBW仔猪的趋势,表明AOS可能通过调节LBW仔猪血清中LDL-C、HDL-C的含量来减轻炎症损伤。机体炎症反应情况与体内促炎细胞因子与抗炎细胞因子的相对水平有关,促炎细胞因子过多有助于自身免疫性炎症的发生和传播[24]。Wan等[25]研究表明,AOS能抑制脂多糖诱导的促炎细胞因子的产生。本研究中,LBW仔猪血清中IL-6、TNF-α含量较NBW仔猪显著增加,但AOS显著降低了LBW仔猪血清中IL-6、TNF-α含量,达到与NBW组无显著差异。该结果表明AOS通过降低血清中促炎细胞因子含量来缓解LBW仔猪的炎症,改善机体健康。免疫球蛋白由B淋巴细胞分泌,能够识别与抵御细菌、病毒等外来物质。IgM是机体免疫系统中最早产生的抗体类型之一,能够激活免疫细胞,参与免疫应答的启动[26]。本研究发现,AOS组仔猪血清中IgM含量显著增加,表明AOS能增强B淋巴细胞的免疫反应。以上结果表明,AOS能通过增强LBW断奶仔猪的免疫功能来改善机体健康。
肠道上皮屏障主要由肠上皮细胞和及细胞间的紧密连接组成,在阻止病原菌和抗原入侵的同时调节水、离子和营养物质的吸收[27]。肠道绒毛是肠道黏膜上的微小纤毛状结构,能够增加肠道表面积,提高营养物质的吸收效率。肠道隐窝结构能够保护干细胞免受微生物及其衍生物的侵害[28]。良好的肠道形态结构有助于提高机体营养物质吸收能力,维持肠道黏膜屏障作用,从而维护机体的健康状态和正常生产性能[29]。有研究表明,AOS对产肠毒素性大肠杆菌(ETEC)诱导的断奶猪肠黏膜损伤有保护作用[25]。本研究发现,饲粮中添加500 mg/kg AOS能显著增加LBW仔猪空肠和回肠黏膜绒毛高度、绒毛高度/隐窝深度比值,这表明AOS能改善LBW断奶仔猪的肠道组织形态,增强肠道对营养物质的消化吸收能力,有利于LBW断奶仔猪的健康生长发育。紧密连接、黏附连接和桥粒等结构将肠上皮细胞紧密连接排列,有效阻挡细菌、病毒侵入[30]。在本研究中,NBW仔猪回肠黏膜中紧密连接相关基因ZO-1、Occlidin mRNA相对表达量显著高于LBW仔猪,但与饲喂添加AOS饲粮的LBW仔猪差异不显著,这说明AOS能够加强肠上皮细胞间的紧密连接,维持LBW仔猪肠道上皮屏障的完整性。以上结果表明,AOS能改善LBW断奶仔猪肠道组织形态和肠上皮细胞间的紧密连接,通过维持其肠上皮屏障完整性来促进肠道健康。

4 结论

① AOS能降低LBW断奶仔猪血清中LDL和促炎细胞因子IL-6、TNF-α含量,增加血清中IgM含量,进而增强机体的免疫功能。
② AOS能提高LBW断奶仔猪血清中CAT、SOD活性与T-AOC,进而增强机体的抗氧化能力。
③ AOS能通过改善肠道组织形态和促进肠道紧密连接相关基因的表达来维持LBW断奶仔猪肠道上皮屏障完整性。
④ 综上所述,AOS可增强LBW断奶仔猪的抗氧化能力、免疫功能和肠道上皮屏障完整性,进而改善机体健康。
[1]
ZHENG P, SONG Y, TIAN Y H, et al. Dietary arginine supplementation affects intestinal function by enhancing antioxidant capacity of a nitric oxide-independent pathway in low-birth-weight piglets[J]. The Journal of Nutrition, 2018, 148(11):1751-1759.

[2]
WU G, BAZER F W, WALLACE J M, et al. Board-invited review:intrauterine growth retardation:implications for the animal sciences[J]. Journal of Animal Science, 2006, 84(9):2316-2337.

[3]
WANG J J, FENG C P, LIU T, et al. Physiological alterations associated with intrauterine growth restriction in fetal pigs:causes and insights for nutritional optimization[J]. Molecular Reproduction and Development, 2017, 84(9):897-904.

[4]
张浩, 陈代文, 余冰, 等. 饲粮补充精氨酸对低出生重哺乳仔猪肝脏氧化还原状态和线粒体功能的影响[J]. 动物营养学报, 2020, 32(2):654-663.

DOI

ZHANG H, CHEN D W, YU B, et al. Effects of dietary L-arginine on liver redox status and mitochondrial function of suckling piglets with low birth weight[J]. Chinese Journal of Animal Nutrition, 2020, 32(2):654-663. (in Chinese)

[5]
田一航, 陈代文, 余冰, 等. 低出生重对仔猪免疫功能的影响及精氨酸的营养效应[J]. 动物营养学报, 2018, 30(12):4886-4897.

TIAN Y H, CHEN D W, YU B, et al. Effects of low birth weight on immune function of piglets and the nutritional effects of arginine[J]. Chinese Journal of Animal Nutrition, 2018, 30(12):4886-4897. (in Chinese)

[6]
HUANG S M, WU Z H, LI T T, et al. Perturbation of the lipid metabolism and intestinal inflammation in growing pigs with low birth weight is associated with the alterations of gut microbiota[J]. Science of the Total Environment, 2020, 719:137382.

[7]
AYUSO M, IRWIN R, WALSH C, et al. Low birth weight female piglets show altered intestinal development,gene expression,and epigenetic changes at key developmental loci[J]. The FASEB Journal, 2021, 35(4):e21522.

[8]
XING M C, CAO Q, WANG Y, et al. Advances in research on the bioactivity of alginate oligosaccharides[J]. Marine Drugs, 2020, 18(3):144.

[9]
WAN J, ZHANG J, CHEN D W, et al. Alginate oligosaccharide-induced intestinal morphology, barrier function and epithelium apoptosis modifications have beneficial effects on the growth performance of weaned pigs[J]. Journal of Animal Science and Biotechnology, 2018, 9:58.

DOI PMID

[10]
WANG Y T, LI L L, YE C Q, et al. Alginate oligosaccharide improves lipid metabolism and inflammation by modulating gut microbiota in high-fat diet fed mice[J]. Applied Microbiology and Biotechnology, 2020, 104(8):3541-3554.

DOI PMID

[11]
WAN J, ZHANG J, CHEN D W, et al. Effects of alginate oligosaccharide on the growth performance,antioxidant capacity and intestinal digestion-absorption function in weaned pigs[J]. Animal Feed Science and Technology, 2017, 234:118-127.

[12]
王成章, 王恬. 饲料学[M]. 北京: 中国农业出版社, 2003:359-361.

WANG C Z, WANG T. Feed science[M]. Beijing: China Agriculture Press, 2003:359-361. (in Chinese)

[13]
TAN B F, LIM T, BOONTIAM W. Effect of dietary supplementation with essential oils and a Bacillus probiotic on growth performance,diarrhoea and blood metabolites in weaned pigs[J]. Animal Production Science, 2021, 61(1):64-71.

[14]
NOVAIS A K, DESCHÊNE K, MARTEL-KENNES Y, et al. Weaning differentially affects mitochondrial function,oxidative stress,inflammation and apoptosis in normal and low birth weight piglets[J]. PLoS One, 2021, 16(2):e0247188.

[15]
DAENEN K, ANDRIES A, MEKAHLI D, et al. Oxidative stress in chronic kidney disease[J]. Pediatric Nephrology, 2019, 34(6):975-991.

DOI PMID

[16]
ZHOU Y X, WEI J, DENG G, et al. Delivery of low-density lipoprotein from endocytic carriers to mitochondria supports steroidogenesis[J]. Nature Cell Biology, 2023, 25(7):937-949.

[17]
ZHANG H, LI Y, WANG T. Antioxidant capacity and concentration of redox-active trace mineral in fully weaned intra-uterine growth retardation piglets[J]. Journal of Animal Science and Biotechnology, 2015, 6:48.

DOI PMID

[18]
FENG W J, YANG X J, FENG M P, et al. Alginate oligosaccharide prevents against D-galactose-mediated cataract in C57BL/6J mice via regulating oxidative stress and antioxidant system[J]. Current Eye Research, 2021, 46(6):802-810.

[19]
WAN J, ZHANG J, CHEN D W, et al. Alginate oligosaccharide enhances intestinal integrity of weaned pigs through altering intestinal inflammatory responses and antioxidant status[J]. RSC Advances, 2018, 8(24):13482-13492.

[20]
MEDZHITOV R. The spectrum of inflammatory responses[J]. Science, 2021, 374(6571):1070-1075.

DOI PMID

[21]
YANG J H, BANG M A, JANG C H, et al. Alginate oligosaccharide enhances LDL uptake via regulation of LDLR and PCSK9 expression[J]. The Journal of Nutritional Biochemistry, 2015, 26(11):1393-1400.

[22]
VERMA S, MAZER C D, CONNELLY K A. Inflammation and cholesterol at the crossroads of vascular risk[J]. Cell Metabolism, 2023, 35(7):1095-1098.

DOI PMID

[23]
GRAO-CRUCES E, LOPEZ-ENRIQUEZ S, MARTIN M E, et al. High-density lipoproteins and immune response:a review[J]. International Journal of Biological Macromolecules, 2022, 195:117-123.

[24]
ZHAO H K, WU L, YAN G F, et al. Inflammation and tumor progression:signaling pathways and targeted intervention[J]. Signal Transduction and Targeted Therapy, 2021, 6(1):263.

[25]
WAN J, ZHANG J, XU Q S, et al. Alginate oligosaccharide protects against enterotoxigenic Escherichia coli-induced porcine intestinal barrier injury[J]. Carbohydrate Polymers, 2021, 270:118316.

[26]
KEYT B A, BALIGA R, SINCLAIR A M, et al.Structure,function, and therapeutic use of IgM antibodies[J]. Antibodies, 2020, 9(4):53.

[27]
MANAGLIA E, YAN X C, DE PLAEN I G.Intestinal epithelial barrier function and necrotizing enterocolitis[J]. Newborn, 2022, 1(1):32-43.

[28]
KAIKO G E, RYU S H, KOUES O I, et al. The colonic crypt protects stem cells from microbiota-derived metabolites[J]. Cell, 2016, 167(4):1137.

DOI PMID

[29]
ODENWALD M A, TURNER J R. The intestinal epithelial barrier:a therapeutic target?[J]. Nature Reviews Gastroenterology & Hepatology, 2017, 14(1):9-21.

[30]
HOROWITZ A, CHANEZ-PAREDES S D, HAEST X, et al. Paracellular permeability and tight junction regulation in gut health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2023, 20(7):417-432.

Outlines

/