RESEARCH PAPER

Effects of Dietary 2-Hydroxy-4-Methionine Isopropyl and N-Carbamylglutamate During Perinatal Period on Milk Production Performance and Plasma Metabolome of Dairy Cows

  • LIU Le , 1 ,
  • HE Lili 1 ,
  • MA Nan 1 ,
  • FAN Xiya 1 ,
  • LIU Shuai 1 ,
  • WANG Kun 2 ,
  • WANG Ling , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Ningxia Hui Autonomous Region Animal Husbandry Workstation, Yinchuan 750002, China

Received date: 2024-01-09

  Online published: 2024-07-09

Abstract

This experiment was conducted to investigate the effects of dietary 2-hydroxy-4-methionine isopropyl (HMBi) and N-carbamylglutamate (NCG) during perinatal period on milk production performance, plasma differential metabolites and metabolic pathways of dairy cows. One hundred perinatal cows with similar age, parity, body condition, milk yield in previous parity and expected date of birth were randomly divided into 2 groups with 50 cows in each group. The control group fed a basal diet, and the test group fed the basal diet+30 g/d·HMBi+20 g/d·NCG. The experiment lasted for 42 days, including 21 days in the early perinatal period and 21 days in the late perinatal period. The results showed that compared with the control group, the milk yield of test group at postpartum day 21 was significantly increased (P<0.05), the milk fat production was trend to increase (P=0.09), the milk urea nitrogen content was trend to decrease (P=0.07), and there were no significant differences in milk fat percentage, milk protein percentage, milk protein production and milk somatic cell count (P>0.05); there were 17 metabolites up-regulated and 15 metabolites down-regulated in plasma metabolites of cows of test group, mainly enriched in metabolic pathways such as linoleic acid metabolism, vitamin digestion and absorption metabolism, pyruvate metabolism, vitamin B6 metabolism and unsaturated fatty acid biosynthesis. It is concluded that dietary HMBi and NCG during perinatal period can increase the milk yield and milk fat production, reduce the milk urea nitrogen content, enhance the antioxidant and immune capacities, improve lipid metabolism and alleviate negative energy balance of dairy cows.

Cite this article

LIU Le , HE Lili , MA Nan , FAN Xiya , LIU Shuai , WANG Kun , WANG Ling . Effects of Dietary 2-Hydroxy-4-Methionine Isopropyl and N-Carbamylglutamate During Perinatal Period on Milk Production Performance and Plasma Metabolome of Dairy Cows[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4375 -4387 . DOI: 10.12418/CJAN2024.377

奶牛围产期一般是指奶牛分娩前21 d至分娩后21 d这段时期,奶牛要经历怀孕、分娩、泌乳等一系列的生理过程,受分娩应激、转群、饲粮转换等因素的影响,易导致机体的免疫力下降,这一阶段是奶牛营养代谢疾病如酮病、产后瘫痪、胎衣不下、真胃移位等高发时期。患病奶牛通常会出现快速消瘦、奶产量降低、受胎率下降等问题[1],尤其是高产奶牛。有些奶牛被迫淘汰,不仅增加了治疗成本,也会使奶牛的生产性能下降,给养殖业造成很大的影响。
蛋氨酸(Met)是奶牛体内的必需氨基酸,在蛋白质的合成过程中起着关键作用,在反刍动物泌乳时,可以作为调控因子和底物,通过信号通路促进乳腺蛋白质的合成[2]。Met通过参与一碳单位代谢以及甲基、硫基循环,可合成胆碱、胱氨酸、谷胱甘肽和极低密度脂蛋白等多种产物,在机体内具有重要的生理作用,如脂质代谢、抗氧化反应等[3]。杨保奎[4]研究发现,围产前期补饲20 g/d的蛋氨酸羟基类似物异丙酯(HMBi)和产后补饲30 g/d的HMBi,可使奶牛泌乳量增加6.83 kg/d,且乳蛋白率显著提高,体细胞数量显著降低。
精氨酸(Arg)是动物体内的条件性氨基酸,是合成多胺、脯氨酸、鸟氨酸和肌酸等的前体物质,具有促进机体免疫、生长和生殖等功能,并可改善心血管功能,促进伤口愈合[5]。N-氨甲酰谷氨酸(NCG)能激活氨甲酰磷酸合成酶-I和二氢吡咯-5-羧酸合成酶,使鸟氨酸转化为瓜氨酸,并将其催化为内源性Arg[6]。NCG具有成本低、瘤胃降解率较低、在体内代谢稳定等特点[7]。NCG可以让机体维持较高的Arg水平,还能避免与赖氨酸(Lys)等碱性氨基酸发生拮抗反应,促进氨基酸平衡[8]。研究表明,NCG能提高反刍动物尿素循环,加速氮代谢,降低氮损失[9]。Chacher[10]研究表明,奶牛采食添加20 g/d的NCG饲粮,能够显著减少乳中、尿中和血液中尿素氮含量。李远杰[11]试验发现,在奶牛围产期饲粮中添加20 g/d的NCG,能够提高饲粮中蛋白质的吸收和利用,并可以在一定程度上保护产后奶牛的肝脏功能,还可以提高围产前期奶牛的能量代谢水平。因此,本试验旨在探讨围产期饲粮中添加HMBi和NCG对奶牛产后产奶性能、血浆代谢物和代谢通路的影响,为缓解围产期奶牛的应激及改善其营养状况提供科学依据。

1 材料与方法

1.1 试验地点

试验在宁夏银川市西夏区宁夏农垦乳业有限公司平一牧场进行,牛场规模2 750头。

1.2 试验材料

NCG含量≥90%,水分含量≤9%,载体为麦饭石;HMBi含量≥57%,水分含量≤4%,载体为二氧化硅。

1.3 试验设计和饲养管理

选择100头健康荷斯坦围产期奶牛,根据年龄、胎次、体况评分、上一胎次产奶量及预产期等相近的原则,按照配对试验设计,随机分为对照组和试验组,每组各50头牛,试验奶牛基本情况见表1。对照组饲喂基础饲粮,试验组饲喂基础饲粮+30 g/d的HMBi+20 g/d的NCG。基础饲粮组成及营养水平见表2。试验期42 d。试验牛散栏式饲养,围产前期有运动场,围产后期无运动场,每日饲喂全混合日粮(TMR)2~3次,自由饮水,产后每日06:00、14:00、22:00挤奶。
表1 试验奶牛基本情况

Table 1 Basic information of experimental cows

项目 Items 对照组 Control group 试验组 Test group PP-value
年龄 Age 2.76±1.08 2.78±1.09 0.94
胎次 Parity/胎 0.84±0.91 0.84±0.91 1.00
体况评分 Body condition score/分 3.39±0.18 3.39±0.14 0.88
上一胎次产奶量 Milk yield in previous parity/(kg/d) 39.02±3.60 39.65±3.41 0.52
上一胎次乳脂率 Milk fat percentage in previous parity/% 3.93±0.51 3.93±0.74 0.98
上一胎次乳蛋白率 Milk protein percentage in previous parity/% 2.87±0.20 2.88±0.22 0.82

同行数据肩标不同小写字母表示差异显著(P<0.05),无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with no letter superscripts mean no significant difference (P>0.05). The same as below.

表2 基础饲粮组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of basal diets (DM basis)%

项目
Items
围产前期
Early perinatal period
围产后期
Late perinatal period
原料 Ingredients
玉米 Corn 6.82 10.07
豆粕 Soybean meal 14.67 10.67
棉籽粕 Cottonseed meal 2.73 1.13
玉米蛋白粉 Corn gluten meal 1.71 1.21
玉米干酒糟及其可溶物 Corn DDGS 1.21
棉籽蛋白 Cotton protein 1.21
膨化大豆 Expanded soybean 1.21
小麦麸皮 Wheat bran 3.96
预混料 Premix1) 3.75 2.65
其他 Others2) 1.63 4.19
蒸汽压片玉米 Steam-flaked corn 9.74
全棉籽 Whole cottonseed 2.02
甜菜颗粒粕 Beet pellet meal 2.94
苜蓿干草 Alfalfa hay 12.57
燕麦干草 Oat hay 27.30
玉米青贮 Corn silage 37.43 32.05
湿啤酒糟 Wet brewers grains 6.49
糖蜜 Molasses 0.64
合计 Total 100.00 100.00
营养水平 Nutrient levels3)
泌乳净能 NEL/(MJ/kg) 6.44 7.49
粗蛋白质 CP 16.07 17.74
中性洗涤纤维 NDF 34.09 27.93
酸性洗涤纤维 ADF 18.96 16.81
淀粉 Starch 19.99 25.41
钙 Ca 0.66 0.96
磷 P 0.32 0.53

1)预混料为每千克饲粮提供 Premix provided the following per kilogram of diets:围产前期 early perinatal period,VA 400 000 IU,VD 105 000 IU,VE 4 100 mg,I 75 mg,Se 25 mg,Co 65 mg,Cu 950 mg,Zn 6 000 mg,Mn 3 600 mg;围产后期 late perinatal period,VA 220 000 IU,VD 105 000 IU,VE 2 200 mg,I 70 mg,Se 20 mg,Co 45 mg,Cu 710 mg,Zn 4 100 mg,Mn 2 300 mg。

2)其他主要包含 Others mainly contained the following:围产前期 early perinatal period,石粉 limestone 1.14%,磷酸氢钙 CaHPO4 0.19%,瘤胃帮 rumen aid 0.20%,加力百灵-z Calibrex-z 0.10%;围产后期 late perinatal period,AminoPlus 1.75%,石粉 limestone 0.24%,小苏打 NaHCO3 0.76%,氧化镁 MgO 0.19%,F100 0.97%,瘤胃帮 rumen aid 0.19%,脱霉剂 deodorant 0.08%。

3)泌乳净能为计算值,其余均为实测值。NEL was a calculated value, while the others were measured values.

1.4 样品采集及指标检测

1.4.1 饲粮营养成分

饲粮中粗蛋白质含量依据GB/T 6432—2018[12]进行测定,中性洗涤纤维和酸性洗涤纤维含量参照Van Soest等[13]方法进行测定,淀粉含量依据GB/T 20194—2018[14]进行测定,钙含量依据GB/T 6436—2018[15]进行测定,磷含量依据GB/T 6437—2018[16]进行测定,泌乳净能(NEL)根据NRC(2001)[17]计算获得。

1.4.2 产奶量及乳成分

在奶牛分娩后第7天、第14天、第21天测定产奶量。在试验结束的当天采集奶样,按早、中、晚=4∶3∶3收集奶样50 mL,储存于加有重铬酸钾防腐剂的奶样管中,摇匀后置于4 ℃保存,送至宁夏回族自治区奶牛DHI测定中心,使用乳成分综合指标分析仪(MilkoScan FT1,瑞典)测定乳脂率、乳脂产量、乳蛋白率、乳蛋白产量、乳尿素氮含量、体细胞数。

1.4.3 血浆代谢组

1.4.3.1 血浆样品的采集与处理

每组随机选择6头奶牛,在分娩后第14天的清晨饲喂前,采集尾根静脉血液10 mL,置肝素钠抗凝管中,离心后收集血浆至冻存管中,-80 ℃冰箱中保存待测。

1.4.3.2 血浆代谢物提取及分析

血浆样品在4 ℃条件下解冻后涡旋搅拌1 min,吸取适量样本到2 mL离心管内,添加400 μL的甲醇溶液,涡旋搅拌1 min,离心,取上清液浓缩干燥。用150 μL 80%甲醇水配制的2-氯-L-苯丙氨酸(4 mg/kg)溶液复溶样品,滤膜过滤,滤出液用于液相色谱-质谱(LC-MS)测定。
采用ACQUITYUPLC® HSS T3色谱仪(Waters,美国),层析柱(2.1 mm×100 mm,1.8 μm),柱温40 ℃,进样量2 μL,流速0.3 mL/min。以0.1%甲酸乙腈(B2)和0.1%甲酸水(A2)为正离子模式流动相;以5 mmol/L乙腈(B3)和5 mmol/L甲酸铵水(A3)为负离子模式流动相。采用Thermo Q Exactive Focus质谱仪(Thermo Fisher Scientific,美国),电喷雾离子源(ESI)。正、负离子模式喷雾电压分别为3.50、-2.50 kV,一级全扫描分辨率为70 000,二级裂解分辨率为17 500。

1.5 数据统计分析

产奶量和乳成分数据经Excel 2019初步处理后,采用SAS 8.2软件进行t检验。结果采用平均值±标准差表示,0.05<P<0.10为有显著趋势,P<0.05为差异显著。
采用R软件包对血浆代谢组数据进行主成分分析(PCA)分析。基于正交偏最小二乘法判别分析(OPLS-DA)模型,通过变量投影重要度(VIP)>1、P<0.05,筛选出差异代谢物,并通过利用京都基因与基因组百科全书(KEGG)对差异代谢物富集通路进行分析。

2 结果

2.1 围产期饲粮中添加HMBi和NCG对奶牛产奶性能的影响

2.1.1 围产期饲粮中添加HMBi和NCG对奶牛产奶量的影响

表3可知,与对照组相比,试验组奶牛产后第7天、第14天产奶量分别提高了1.49、2.35 kg/d,但差异不显著(P>0.05);试验组奶牛产后第21天产奶量提高了3.04 kg/d,差异显著(P<0.05)。
表3 围产期饲粮中添加HMBi和NCG对奶牛产奶量的影响

Table 3 Effects of dietary HMBi and NCG during perinatal period on milk yield of dairy cowskg/d

项目 Items 对照组 Control group 试验组 Test group PP-value
第7天 Day 7 35.95±5.74 37.44±6.77 0.28
第14天 Day 14 36.54±6.07 38.89±7.14 0.10
第21天 Day 21 39.69±5.36a 42.73±7.57b 0.03
平均值 Mean 37.39±2.01 39.73±2.80 0.31

2.1.2 围产期饲粮中添加HMBi和NCG对奶牛乳成分的影响

表4可知,与对照组相比,试验组乳脂产量增加了9.31%,有显著趋势(P=0.09);试验组乳尿素氮含量降低了10.67%,有显著趋势(P=0.07)。各组之间乳脂率、乳蛋白率、乳蛋白产量和体细胞数差异均不显著(P>0.05)。
表4 围产期饲粮中添加HMBi和NCG对奶牛乳成分的影响

Table 4 Effects of dietary HMBi and NCG during perinatal period on milk component of dairy cows

项目 Items 对照组 Control group 试验组 Test group PP-value
乳脂率 Milk fat percentage/% 3.95±0.55 4.10±0.63 0.33
乳脂产量 Milk fat production/kg 158.24±32.93 172.97±32.92 0.09
乳蛋白率 Milk protein percentage/% 2.89±0.19 2.91±0.19 0.77
乳蛋白产量 Milk protein production/kg 115.67±18.43 122.69±21.96 0.14
体细胞数 Somatic cell count/(×104个/mL) 10.55±7.32 9.35±4.86 0.54
乳尿素氮含量 Milk urea nitrogen content/(mg/dL) 12.18±3.29 10.88±3.38 0.07

2.2 围产期饲粮中添加HMBi和NCG对奶牛血浆差异代谢物及代谢通路的影响

2.2.1 质量控制
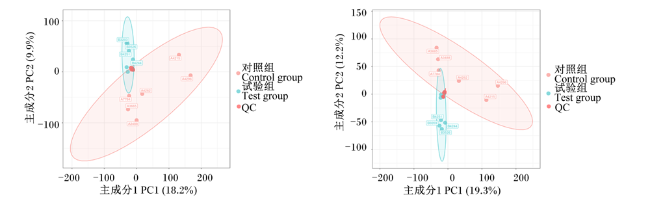
为了得到稳定的、准确的代谢组学研究结果,必须进行质量控制。由图1图2可知,红点表示质量控制样本,其余颜色点表示样本。质量控制样本具有聚集趋势,在95%置信区间内,说明重复性良好,仪器稳定性良好,且所得数据质量良好。
图1 正(左)、负离子模式(右)质量控制样本-PCA得分图

QC:质量控制

Fig.1 Positive (left) and negative ion mode (right) quality control sample-PCA score plot

quality control。

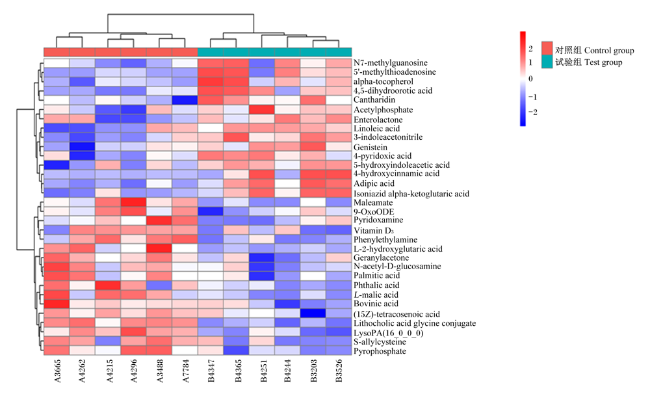
图2 血浆差异代谢物聚类热图

N7-methylguanosine:N7-甲基鸟苷;5'-methylthioadenosine:5'-甲硫基腺;alpha-tocopherol:α-生育酚;4,5-dihydroorotic acid:4,5-二氢乳清酸;Cantharidin:斑蝥素;Acetylphosphate:乙酰磷酸;Enterolactone:肠内酯;Linoleic acid:亚油酸;3-indoleacetonitrile:3-吲哚乙腈;Genistein:染料木素;4-pyridoxic acid:4-吡哆酸;5-hydroxyindoleacetic acid:5-羟基吲哚乙酸;4-hydroxycinnamic acid:4-羟基肉桂酸;Adipic acid:己二酸;Isoniazid alpha-ketoglutaric acid:异烟肼α-酮戊二酸;Maleamate:马来酰胺;9-OxoODE:9-氧代十八碳二烯酸;Pyridoxamine:吡哆胺;Vitamin D3:维生素D3;Phenylethylamine:苯乙胺;Palmitic acid:棕榈酸;Phthalic acid:邻苯二甲酸;L-malic acid:L-苹果酸;Bovinic acid:牛磺酸;(15Z)-tetracosenoic acid:顺-15-二十四碳烯酸;Lithocholic acid glycine conjugate:石胆酸甘氨酸结合物;LysoPA(16_0_0_0):溶菌酶PA(16_0_0_0);S-allylcysteine:S-烯丙基半胱氨酸;Pyrophosphate:焦磷酸。
列代表样本,行代表代谢物,左侧的聚类树为差异代谢物聚类树,顶部为样本聚类树。

Fig.2 Heat map of plasma differential metabolites

Columns represent samples, rows represent metabolites, the cluster tree on the left is the differential metabolites clustering tree, and the top is the sample clustering tree.

2.2.2 血浆差异代谢物筛选

图2所示,各组样品之间存在明显的聚集现象,具有代谢变化相近的代谢产物集中在同一聚类中,表明组间代谢产物的相对定量值层次聚类区分明显。由表5可知,试验组和对照组奶牛血浆中共筛选出32个差异代谢物,其中L-苹果酸、维生素D3、石胆酸甘氨酸结合物、溶菌酶PA、苯乙胺等17个代谢物显著上调(P<0.05),而4-吡哆酸、α-生育酚、己二酸、3-吲哚乙腈等15个代谢物显著下调(P<0.05)。
表5 对照组和试验组血浆差异代谢物

Table 5 Plasma differential metabolites in control group and test group

项目
Items
质荷比
M/Z
保留时间
RT/min
差异倍数
FC
变量投影
重要度
VIP
P
P-value
趋势
Trend
左旋苹果酸 L-malic acid 133.01 46.10 3.17 1.95 0.007 2 上调
棕榈酸 Palmitic acid 256.24 618.80 2.67 1.65 0.037 4 上调
S-烯丙基半胱氨 S-allylcysteine 160.04 210.50 2.49 1.65 0.038 9 上调
维生素D3 Vitamin D3 384.35 624.10 2.39 1.59 0.039 8 上调
N-乙酰-D-氨基葡萄糖 N-acetyl-D-glucosamine 221.15 496.20 2.27 1.73 0.027 9 上调
石胆酸甘氨酸结合物 Lithocholic acid glycine conjugate 434.33 466.00 1.98 2.48 <0.000 1 上调
顺-15-二十四碳烯酸 (15Z)-tetracosenoic acid 365.34 584.50 1.85 1.67 0.046 6 上调
马来酰胺 Maleamate 115.00 196.80 1.79 1.84 0.007 8 上调
焦磷酸 Pyrophosphate 176.93 47.60 1.51 1.96 0.007 4 上调
邻苯二甲酸 Phthalic acid 165.04 610.90 1.46 1.53 0.045 7 上调
吡哆胺 Pyridoxamine 169.10 97.80 1.41 1.60 0.038 3 上调
牛磺酸 Bovinic acid 279.23 671.10 1.38 1.72 0.029 4 上调
L-2-羟基戊二酸 L-2-hydroxyglutaric acid 148.98 33.60 1.32 1.99 0.020 4 上调
香叶基丙酮 Geranylacetone 313.29 421.00 1.23 1.83 0.020 5 上调
溶菌酶 PA(16_0_0_0) Lysozyme PA(16_0_0_0) 409.24 448.10 1.22 2.13 0.000 6 上调
苯乙胺 Phenylethylamine 121.03 685.70 1.19 1.92 0.002 4 上调
9-氧代十八碳二烯酸 9-OxoODE 293.21 457.70 1.14 1.40 0.039 3 上调
斑蝥素 Cantharidin 179.06 278.90 0.87 1.77 0.014 9 下调
5-羟基吲哚乙酸 5-hydroxyindoleacetic acid 190.05 185.80 0.73 1.70 0.022 7 下调
染料木素 Genistein 271.23 494.90 0.69 1.71 0.027 5 下调
肠内酯 Enterolactone 299.13 293.20 0.65 1.54 0.049 2 下调
乙酰磷酸 Acetylphosphate 139.99 198.40 0.59 1.56 0.045 2 下调
3-吲哚乙腈 3-indoleacetonitrile 156.07 84.70 0.58 2.02 0.001 7 下调
4-吡哆酸 4-pyridoxic acid 182.04 188.80 0.56 1.63 0.013 4 下调
己二酸 Adipic acid 146.06 210.70 0.51 2.20 0.001 3 下调
5'-甲硫基腺苷 5'-methylthioadenosine 298.10 173.10 0.48 1.80 0.025 3 下调
亚油酸 Linoleic acid 281.25 500.30 0.46 1.77 0.029 8 下调
4-羟基肉桂酸 4-hydroxycinnamic acid 165.05 74.70 0.33 1.75 0.049 2 下调
α-生育酚α-tocopherol 430.25 268.40 0.29 1.81 0.010 2 下调
N7-甲基鸟苷 N7-methylguanosine 298.11 77.50 0.24 1.56 0.037 2 下调
异烟肼α-酮戊二酸 Isoniazid α-ketoglutaric acid 266.10 255.00 0.20 2.18 0.002 5 下调
4,5-二氢乳清酸 4,5-dihydroorotic acid 158.96 206.10 0.20 1.95 0.005 2 下调

2.2.3 KEGG通路富集分析

表6可知,采用MetaboAnalyst进行KEGG通路富集分析,其中差异代谢物主要富集在亚油酸代谢、维生素的消化和吸收代谢、维生素B6代谢、丙酮酸代谢、不饱和脂肪酸的生物合成等代谢途径(P<0.05)。
表6 代谢途径及相关差异代谢物

Table 6 Metabolic pathways and associated differential metabolites

项目
Items
相关差异代谢物
Associated differential metabolites
P
P-value
亚油酸代谢
Linoleic acid metabolism
亚油酸 Linoleic acid
牛磺酸 Bovinic acid
9-氧代十八碳二烯酸 9-OxoODE
0.002 3
维生素的消化和吸收
Vitamin digestion and absorption
吡哆胺 Pyridoxamine
α-生育酚α-tocopherol
维生素D3 Vitamin D3
0.005 9
维生素B6代谢
Vitamin B6 metabolism
吡哆胺 Pyridoxamine
4-吡哆酸 4-pyridoxic acid
0.031 2
不饱和脂肪酸的生物合成
Biosynthesis of unsaturated fatty acids
棕榈酸 Palmitic acid
亚油酸 Linoleic acid
顺-15-二十四碳烯酸 (15Z)-tetracosenoic acid
0.033 3
丙酮酸代谢
Pyruvate metabolism
左旋苹果酸 L-malic acid
M-乙酰基磷酸 M-acetylphosphate
0.035 3

3 讨论

3.1 围产期饲粮中添加HMBi和NCG对奶牛产奶性能的影响

动物通过Met和Arg代谢途径合成多胺。多胺促进细胞和组织的快速生长,参与蛋白质的合成,促进机体的成长发育[18]。同时Met和Arg也是合成肌酸的必需前体物质。肌酸在磷酸激酶的作用下生成磷酸肌酸,提供高能磷酸键促进二磷酸腺苷(ADP)生成ATP,为机体提供能量[19]。晁雅琳[20]试验发现,去势滩羔羊饲粮中添加0.06%过瘤胃Met和0.10% NCG可显著增高滩羊平均日增重,促进羔羊生长发育。NCG进入动物体内后,在体内可被代谢成Arg。Arg还是一氧化氮(NO)的前体物,能促进NO的产生,NO能扩张血管,增加血液流量,进而增加乳腺的养分供应,提高奶牛的产奶量[21]。Arg在乳腺上皮细胞增殖方面起调控作用,在一定浓度范围(69.50~1 112.00 mg/L)内,Arg能有效促进乳腺上皮细胞增殖[22],通过提高乳腺组织对营养物质的摄取和利用,进而增加奶产量。吴晓峰[23]研究表明,奶牛饲粮中分别添加15、20、25 g/d的NCG后,试验组产奶量较对照组分别提高了5.91%、4.86%、4.43%,试验组产奶量显著高于对照组。Chacher[10]试验发现,在奶牛饲粮中添加20 g/d的NCG,试验组产奶量与对照组相比有上升趋势。
氨基酸作为乳蛋白的主要组成成分,在饲料代谢蛋白质配方中,当Met与Lys水平分别为2.60%和7.00%时,乳蛋白产量达到峰值,乳清蛋白作为一类可溶蛋白质,其产量的增加会增强渗透压,有助于提升产奶量[24]。Met通过与异二聚氨基酸味觉受体相互作用,激活哺乳动物的雷帕霉素靶蛋白复合体1(mTORC1)信号传导途径,进而增强β-酪蛋白基因的表达,提高乳腺泌乳性能[25]。饲粮中添加Met可提高氮素的利用率,还可通过提高奶牛的免疫力,促进奶牛的健康和生产性能的提高。Awawdeh[26]试验发现,在奶牛饲粮中添加30 g/d过瘤胃Met,奶产量从29.1 kg/d增加至30.5 kg/d。裴明财等[27]研究表明,在奶牛围产前期饲粮中添加25 g/d的HMBi,产后1~30 d奶产量显著提高了0.77 kg/d,产后31~60 d奶产量极显著提高了0.92 kg/d,产后1~60 d奶产量极显著提高了0.84kg/d。本研究表明,在围产期饲粮中添加30 g/d的HMBi和20 g/d的NCG,在奶牛产后第7天、第14天试验组奶产量较对照组提高了4.14%和6.43%,但差异不显著,而产后第21天产奶量较对照组提高了7.96%,差异显著,表明围产期奶牛饲粮中添加30 g/d的HMBi和20 g/d的NCG可提高产奶量。
乳脂率、乳蛋白率等是衡量牛奶质量的重要指标,乳尿素氮含量反映了奶牛饲粮的蛋白质水平、氮利用率和能氮平衡,而牛奶中体细胞数则反映了奶牛乳腺的健康状况。NCG能在机体内以内源形式提供Arg,Arg酶催化Arg生成鸟氨酸,并将其转运至线粒体,促进尿素循环,加速尿素从谷氨酰胺中释放出来,合成更多的含氮化合物,有利于乳蛋白及微生物蛋白质的合成[28]。敬盈嘉[29]研究表明,奶牛泌乳早期饲粮中添加20 g/d的NCG能显著提高乳脂率,并且降低乳尿素氮含量。Met能为核酸、胆碱等甲基化合物的生物合成提供活跃的甲基基团,而胆碱又是脂肪生物合成的限制因子,因此,饲粮中添加Met能增加乳脂率[30]。杨保奎[4]研究发现,奶牛围产前期饲粮中添加20 g/d的HMBi,围产后期饲粮中添加30 g/d的HMBi,乳脂率提高了0.11%,乳蛋白率提高了0.14%,体细胞数明显降低。本研究表明,在围产期奶牛饲粮中添加30 g/d的HMBi和20 g/d的NCG,乳脂产量增加了9.31%,乳尿素氮含量降低10.67%,有增加乳脂产量和降低乳尿素氮含量的趋势,但对乳脂率、乳蛋白率、乳蛋白产量及体细胞数均没有显著影响。

3.2 围产期饲粮中添加HMBi和NCG对奶牛血浆差异代谢物及代谢通路的影响

3.2.1 亚油酸代谢

亚油酸代谢途径上调能提升机体脂质代谢,改善脂多糖诱导的急性炎症并且缓解器官损伤[31]。亚油酸是不饱和脂肪酸,可诱导产生的大量活性氧,引起机体急性红细胞损伤[32]。亚油酸氧化生成9-羟基十八碳二烯酸(9-HODE),9-HODE的氧化代谢产物为9-氧代十八碳二烯酸(9-OxoODE),9-OxoODE表达量增加,表明亚油酸的氧化作用加强。奶牛体内的Met可被转化为牛磺酸,牛磺酸能增强肌肉组织对必需氨基酸及葡萄糖的吸收和利用,提高糖异生作用[33]。胆固醇7α-羟化酶(CYP7A1)限速酶是胆酸生物合成的关键限速酶,牛磺酸能增强其表达活性,并增强其对胆汁酸及胆固醇的降解作用[34]。Bonfleur等[35]研究表明,补充牛磺酸可以上调由谷氨酸盐诱导的肥胖新生雄性大鼠肝脏微粒体甘油三酯转移蛋白(MTP)基因的表达,促使肝脏脂质外流,肉毒碱棕榈酰转移酶1α(CPT1α)和过氧化物酶体增殖物激活受体α(PPARα)基因的表达均同时上调,增强线粒体和过氧化物酶体的脂质处理,改善肝脏甘油三酯蓄积。本研究中,亚油酸代谢途径中亚油酸显著下调,而9-氧代十八碳二烯酸和牛磺酸显著上调,表明在围产期饲粮中添加NCG和HMBi能够调节奶牛脂质代谢,缓解能量负平衡。

3.2.2 维生素的消化和吸收代谢

本研究中,维生素的消化和吸收代谢途径中吡哆胺和维生素D3显著上调,α-生育酚显著下调。维生素D3在调节机体钙、磷代谢中起着关键调控作用,参与钙、磷沉积和骨矿化,维持动物血钙、血磷的正常水平,防止钙磷缺乏症[36]。此外,维生素D3参与机体免疫调节功能。α-生育酚是维生素E存在形式中生物活性最强的。脂质过氧自由基(LOO-)可诱导脂质过氧化并导致细胞无法执行正常的生理功能,α-生育酚可通过清除LOO-中断脂质过氧化而保护细胞膜结构的完整性,增强机体抗氧化能力[37]。本研究中,血浆维生素D3显著上调,α-生育酚显著下调,表明在围产期饲粮添加NCG和HMBi可能会增强机体的免疫能力和抗氧化能力。

3.2.3 维生素B6代谢

本研究中,维生素B6代谢途径中吡哆胺显著上调,4-吡哆酸显著下调。有试验证明,吡哆胺是脂质过氧化形成脂过氧化终产物(ALEs)的抑制剂,ALEs包括丙二醛、各种吡咯类化合物以及和非酶糖基化所形成的相同产物,如羧甲基赖氨酸、羧乙基赖氨酸等,在花生四烯酸和核糖核酸酶的反应以及在铜促低密度脂蛋白氧化变性反应中,吡哆胺抑制ALEs的形成和赖氨酸残基的修饰[38]。吡哆胺能有效地清除机体内的氧自由基,降低氧化损伤,其独特的金属离子螯合作用加强了其抗氧化剂的作用[39]。4-吡哆酸是维生素B6的代谢产物,维生素B6是一种抗氧化物质,试验组4-吡哆酸低于对照组,推测可能是维生素B6与过氧化物发生反应,从而提高试验组的抗氧化能力。

3.2.4 丙酮酸代谢

本研究中,丙酮酸代谢途径中L-苹果酸显著上调,乙酰磷酸显著下调。L-苹果酸是三羧酸循环(TCA)的重要中间产物,促进烟酰胺腺嘌呤二核苷酸(NADH)从细胞质转运到线粒体,增加老龄大鼠体内抗氧化酶活力及非酶类抗氧化物的含量,改善肝脏酶的代谢活力,减少自由基对机体的损害,增强其抗氧化能力,降低了脂质过氧化反应的发生[40]。研究表明,L-苹果酸能提高线粒体的苹果酸脱氢酶活性和增加苹果酸天冬氨酸穿梭相关蛋白的基因表达,从而提高苹果酸-天冬氨酸的穿梭效率,对ATP的持续供给起到关键性作用,提高机体的能量代谢[41]L-苹果酸作为TCA的中间产物,其产生能量的途径比形成葡萄糖短,在动物处于应激状态下时,可以快速合成ATP直接利用,从而达到迅速恢复体能的作用,增强机体自身的抗应激能力[42]。乙酰辅酶A(CoA)可在磷酸转乙酰酶的作用下生成乙酰磷酸,而乙酰CoA是TCA关键的中间产物,也是生物合成能量物质如脂肪酸和酮体等的前体物质[43]。本研究中,乙酰磷酸下调,可能乙酰CoA更多用于合成更多能源物质如脂肪酸和酮体等,提高机体的能量代谢,表明在围产期饲粮中添加NCG和HMBi能够提高机体抗氧化、抗应激能力,提高机体的能量代谢,缓解能量负平衡。

3.2.5 不饱和脂肪酸的生物合成

本研究中不饱和脂肪酸的生物合成途径中棕榈酸和顺-15-二十四碳烯酸显著上调,亚油酸显著下调。研究表明,亚油酸抑制奶牛乳腺上皮细胞的生长并且促进乳腺上皮细胞液中脂质小滴的合成[44]。亚油酸通过抑制糖代谢的相关基因转录和肝脏中的编码脂肪酸合成酶,从而抑制脂类的合成[45]。因此,亚油酸下调可以促进脂质的合成。棕榈酸是一种长链脂肪酸,能激活PPARα和腺苷酸活化蛋白激酶(AMPK)磷酸化,从而增加了PPARα的表达和转录活性,脂质氧化基因CPT1α被上调,在线粒体中被转运的长链乙酰CoA发生脂肪酸β氧化,增加牛细胞的脂质氧化[46]。研究发现,新产泌乳牛饲粮中添加棕榈酸能提高胰岛素活性,对奶牛能量代谢起着重要调节作用,促进葡萄糖被细胞高效利用,促进脂肪合成,降低体脂动员[47]。研究发现,饮食中添加神经酸可以促进小鼠淋巴细胞生长、血清溶血素增加和抗体的生成,自然杀伤(NK)细胞也明显增加,说明神经酸可以提高机体免疫力[48]。神经酸通过促进必需脂肪酸ω-3和ω-6代谢,在二者协同作用下,能增加血清中高密度脂蛋白胆固醇含量,减少低密度脂蛋白胆固醇和总胆固醇含量,清除血管中多余脂肪,抑制血小板的聚集,促进胰岛β细胞分泌胰岛[49]。这表明在围产期饲粮中添加NCG和HMBi能够促进脂质合成,调节脂质代谢,降低体脂动员。

4 结论

围产期饲粮中添加HMBi和NCG可提高产奶量,改善乳品质,有增加乳脂产量和降低乳尿素氮含量的趋势。血浆代谢组共筛选出32个差异代谢物,主要富集在亚油酸代谢、维生素的消化和吸收代谢、丙酮酸代谢、维生素B6代谢及不饱和脂肪酸的生物合成等代谢途径。
[1]
CHAMBERLIN W G, MIDDLETON J R, SPAIN J N, et al. Subclinical hypocalcemia,plasma biochemical parameters,lipid metabolism,postpartum disease,and fertility in postparturient dairy cows[J]. Journal of Dairy Science, 2013, 96(11):7001-7013.

[2]
QI H, MENG C Y, JIN X, et al. Methionine promotes milk protein and fat synthesis and cell proliferation via the SNAT2-PI3K signaling pathway in bovine mammary epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2018, 66(42):11027-11033.

DOI PMID

[3]
ZHOU Z, GARROW T A, DONG X W, et al. Hepatic activity and transcription of betaine-homocysteine methyltransferase,methionine synthase,and cystathionine synthase in periparturient dairy cows are altered to different extents by supply of methionine and choline[J]. The Journal of Nutrition, 2017, 147(1):11-19.

[4]
杨保奎. 蛋氨酸羟基类似物异丙酯和包被氯化胆碱对奶牛产奶性能及血清生化指标的影响[D]. 硕士学位论文. 南京:南京农业大学, 2016. YANG B K.Effects of 2-hydroxy-4-(methylthio)butanoic acid isopropyl ester and rumen-protected chlorine chloride on production performance and serum parameters in dairy cows[D]. Master's Thesis. Nanjing: Nanjing Agricultural University,2016. (in Chinese)

[5]
李帅, 王丽, 梁兴伟, 等. 精氨酸代谢途径及其在畜牧生产中的应用研究[J]. 动物营养学报, 2022, 34(4):2156-2166.

DOI

LI S, WANG L, LIANG X W, et al. Metabolic pathways and application research of arginine in animal husbandry production[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2156-2166. (in Chinese)

[6]
AH MEW N, MCCARTER R, DAIKHIN Y, et al. Augmenting ureagenesis in patients with partial carbamyl phosphate synthetase 1 deficiency with N-carbamyl-L-glutamate[J]. The Journal of Pediatrics, 2014, 165(2):401-403.e3.

DOI PMID

[7]
柳序, 田科雄, 彭灿阳, 等. N-氨基甲酰谷氨酸在仔猪生产中的应用[J]. 广东饲料, 2016, 25(5):28-30.

LIU X, TIAN K X, PENG C Y, et al. N-carbamoylglutamic in piglet production[J]. Guangdong Feed, 2016, 25(5):28-30. (in Chinese)

[8]
李新花, 赖玉娇, 王春平. N-氨甲酰谷氨酸在反刍动物生产中应用研究进展[J]. 中国奶牛, 2016(2):8-11.

LI X H, LAI Y J, WANG C P. The development and application of N-carbamylgluatmate in ruminant production[J]. China Dairy Cattle, 2016(2):8-11. (in Chinese)

[9]
孙雪丽, 李秋凤, 曹玉凤, 等. N-氨甲酰谷氨酸对荷斯坦奶公牛生长性能、瘤胃发酵及微生物区系和甲烷排放量的影响[J]. 畜牧兽医学报, 2020, 51(8):1903-1912.

DOI

SUN X L, LI Q F, CAO Y F, et al. Effects of dietary addition of N-carbamylglutamate on growth performance,rumen fermentation,rumen microflora and methane emission of Holstein bulls[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(8):1903-1912. (in Chinese)

[10]
CHACHER B. N-甲酰谷氨酸作为精氨酸增强剂的评定及其对高产奶牛瘤胃发酵、泌乳性能和氮利用的影响[D]. 博士学位论文. 杭州: 浙江大学, 2013.

CHACHER B. Evaluation of N-carbamoylglutamate as argininineenhancer and its effect on rumen fermentation,lactation performance and nitrogen utilization in high yielding lactating dairy cows[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2013. (in Chinese)

[11]
李远杰. 围产期奶牛补饲N-氨甲酰谷氨酸对产奶性能、免疫及血液代谢物的影响[D]. 硕士学位论文. 泰安: 山东农业大学, 2017.

LI Y J. Effect of N-carbamylglutamate supplementation on milk performance blood metabolites and immunity in transition cows[D]. Master's Thesis. Tai'an: Shandong Agricultural University, 2017. (in Chinese)

[12]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[13]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[14]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.动物饲料中淀粉含量的测定旋光法:GB/T 20194—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of starch in feeds-Polarimetry:GB/T 20194—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[15]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中钙的测定:GB/T 6436—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of calcium in feeds:GB/T 6436—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[16]
中华人民共和国国家市场监督管理总局, 中国国家标准化管理委员会.饲料中总磷的测定分光光度法:GB/T 6437—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People's Republic of China.Determination of phosphorus in feeds-Spectrophotometry:GB/T 6437—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[17]
NRC. Nutrient requirements of dairy cattle[S]. 7th ed.Washington,D.C.:The National Academies Press, 2001.

[18]
董海军, 刘宏伟. 多胺在动物体内的作用[J]. 粮食与饲料工业, 2010(4):49-51.

DONG H J, LIU H W. The role of polyamines in animals[J]. Cereal & Feed Industry, 2010(4):49-51. (in Chinese)

[19]
MARQUES E P, WYSE A T S. Creatine as a neuroprotector:an actor that can play many parts[J]. Neurotoxicity Research, 2019, 36(2):411-423.

[20]
晁雅琳. RP-Met与NCG对舍饲滩羊胴体性状、消化性能、肉品质及抗氧化性的影响[D]. 硕士学位论文. 银川: 宁夏大学, 2019.

CHAO Y L. Effects of RP-Met and NCG on carcass traits, digestibility,meat quality and antioxidant activity of Tan sheep[D]. Master's Thesis. Yinchuan: Ningxia University, 2019. (in Chinese)

[21]
GU F F, LIANG S L, WEI Z H, et al. Short communication:effects of dietary addition of N-carbamoylglutamate on milk composition in mid-lactating dairy cows[J]. Journal of Dairy Science, 2018, 101(12):10985-10990.

[22]
徐柏林, 王梦芝, 张兴夫, 等. 精氨酸水平对奶牛乳腺上皮细胞体外生长及κ-酪蛋白基因表达的影响[J]. 动物营养学报, 2012, 24(5):852-858.

DOI

XU B L, WANG M Z, ZHANG X F, et al. Arginine levels affect growth and CSN3 gene expression of dairy cows mammary epithelial cells in vitro[J]. Chinese Journal of Animal Nutrition, 2012, 24(5):852-858. (in Chinese)

[23]
吴晓峰. N-氨甲酰谷氨酸对奶牛生产性能、乳品质、瘤胃发酵参数及抗氧功能的影响[J]. 中国畜牧杂志, 2021, 57(8):197-201.

WU X F. Effect of N-carbamoylglutamic acid on performance,milk quality,rumen fermentation parameters and antioxidant function in dairy cows[J]. Chinese Journal of Animal Science, 2021, 57(8):197-201. (in Chinese)

[24]
VAN AMBURGH M E, COLLAO-SAENZ E A, HIGGS R J, et al. The Cornell net carbohydrate and protein system:updates to the model and evaluation of version 6.5[J]. Journal of Dairy Science, 2015, 98(9):6361-6380.

[25]
ZHOU Y, ZHOU Z, PENG J, et al. Methionine and valine activate the mammalian target of rapamycin complex 1 pathway through heterodimeric amino acid taste receptor (TAS1R1/TAS1R3) and intracellular Ca2+ in bovine mammary epithelial cells[J]. Journal of Dairy Science, 2018, 101(12):11354-11363.

[26]
AWAWDEH M S. Rumen-protected methionine and lysine:effects on milk production and plasma amino acids of dairy cows with reference to metabolisable protein status[J]. Journal of Dairy Research, 2016, 83(2):151-155.

[27]
裴明财, 曾涵芳, 林红, 等. 蛋氨酸羟基类似物异丙酯(HMBi)对奶牛产奶性能、繁殖性能及血清生化指标的影响[J]. 中国兽医学报, 2023, 43(2):396-404.

PEI M C, ZENG H F, LIN H, et al. Effect of methionine hydroxy analogue isopropyl ester (HMBi) supplementation on lactation,reproduction performance and serum parameters in Holstein cows[J]. Chinese Journal of Veterinary Science, 2023, 43(2):396-404. (in Chinese)

[28]
CHACHER B, ZHU W, YE J A, et al. Effect of dietary N-carbamoylglutamate on milk production and nitrogen utilization in high-yielding dairy cows[J]. Journal of Dairy Science, 2014, 97(4):2338-2345.

DOI PMID

[29]
敬盈嘉. 添加N-氨甲酰谷氨酸对奶牛产奶性能、免疫机能及血液代谢组的影响[D]. 硕士学位论文. 银川: 宁夏大学, 2020.

JING Y J. Effects of adding N-carbamoylglutamate on milk performance immune function and blood metabolomics in dairy cows[D]. Master's Thesis. Yinchuan: Ningxia University, 2020. (in Chinese)

[30]
NOFTSGER S M, ST-PIERRE N R, KARNATI S K R, et al. Effects of 2-hydroxy-4-(methylthio) butanoic acid (HMB) on microbial growth in continuous culture[J]. Journal of Dairy Science, 2003, 86(8):2629-2636.

PMID

[31]
巩楠, 赵琳, 常会敏. 细胞自噬在迷迭香酸促进鼻咽癌细胞凋亡中的作用研究[J]. 成都医学院学报, 2021, 16(4):431-436.

GONG N, ZHAO L, CHANG H M. Role of autophagy in rosmarinic acid induced apoptosis of nasopharyngeal carcinoma cells[J]. Journal of Chengdu Medical College, 2021, 16(4):431-436. (in Chinese)

[32]
纪鹏. 生当归及其不同炮制品干预小鼠血虚模型的代谢组学研究[D]. 博士学位论文. 兰州: 甘肃农业大学, 2015.

JI P. Metabonomics studies on blood deficiency mice model intervened with Angelica sinensis and its different processed products[D]. Ph.D.Thesis. Lanzhou: Gansu Agricultural University, 2015. (in Chinese)

[33]
ITO T, YOSHIKAWA N, INUI T, et al. Tissue depletion of taurine accelerates skeletal muscle senescence and leads to early death in mice[J]. PLoS One, 2014, 9(9):e107409.

[34]
TAGAWA R, KOBAYASHI M, SAKURAI M, et al. Long-term dietary taurine lowers plasma levels of cholesterol and bile acids[J]. International Journal of Molecular Sciences, 2022, 23(3):1793.

[35]
BONFLEUR M L, BORCK P C, RIBEIRO R A, et al. Improvement in the expression of hepatic genes involved in fatty acid metabolism in obese rats supplemented with taurine[J]. Life Sciences, 2015, 135:15-21.

DOI PMID

[36]
CIANFEROTTI L, MARCOCCI C. Subclinical vitamin D deficiency[J]. Best Practice & Research Clinical Endocrinology & Metabolism, 2012, 26(4):523-537.

[37]
FEKI M, SOUISSI M, MEBAZAA A. Vitamin E:structure,metabolism,and functions[J]. Annales de Medecine Interne, 2001, 152(6):384-391.

[38]
ONORATO J M, JENKINS A J, THORPE S R, et al. Pyridoxamine,an inhibitor of advanced glycation reactions,also inhibits advanced lipoxidation reactions.Mechanism of action of pyridoxamine[J]. Journal of Biological Chemistry, 2000, 275(28):21177-21184.

[39]
ADROVER M, VILANOVA B, FRAU J, et al. The pyridoxamine action on Amadori compounds:a reexamination of its scavenging capacity and chelating effect[J]. Bioorganic & Medicinal Chemistry, 2008, 16(10):5557-5569.

[40]
WU J L, WU Q P, YANG X F, et al. L-malate reverses oxidative stress and antioxidative defenses in liver and heart of aged rats[J]. Physiological Research, 2008, 57(2):261-268.

DOI PMID

[41]
BENDAHAN D, MATTEI J P, GHATTAS B, et al. Citrulline/malate promotes aerobic energy production in human exercising muscle[J]. British Journal of Sports Medicine, 2002, 36(4):282-289.

DOI PMID

[42]
李赞. L-苹果酸对吉富罗非鱼胃肠道结构功能及肝脏TCA循环效率的影响[D]. 硕士学位论文. 成都: 西南民族大学, 2014.

LI Z. Effects of L-malic acid on gastrointestinal histology and function,TCA cycle efficiency of the liver of gift tilapia (Oreochromis niloticus)[D]. Master's Thesis. Chengdu: Southwest Minzu University, 2014. (in Chinese)

[43]
MÖLLER J, BHAT K, GUHL L, et al. Regulation of pyruvate dehydrogenase complex related to lactate switch in CHO cells[J]. Engineering in Life Sciences, 2020, 21(3/4):100-114.

[44]
王治国. 奶牛乳腺上皮细胞的体外培养及应用[D]. 硕士学位论文. 北京: 中国农业科学院, 2007.

WANG Z G. In vitro culture and application of bovine mammary epithelial cells[D]. Master's Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2007. (in Chinese)

[45]
李荣刚. 日粮亚油酸水平对生长肉兔生长性能、组织脂肪酸构成及脂质代谢的影响[D]. 硕士学位论文. 泰安: 山东农业大学, 2011.

LI R G. Effect of dietary linoleic acid supplementation on growth performance,fatty acids composition of tissues and lipid metabolism of meat rabbits[D]. Master's Thesis. Tai'an: Shandong Agricultural University, 2011. (in Chinese)

[46]
LI X W, CHEN H, GUAN Y, et al. Acetic acid activates the AMP-activated protein kinase signaling pathway to regulate lipid metabolism in bovine hepatocytes[J]. PLoS One, 2013, 8(7):e67880.

[47]
张海波. 日粮添加不同脂肪酸对泌乳早期奶牛糖和脂肪代谢的影响[J]. 中国畜牧杂志, 2018, 54(1):85-88.

ZHANG H B. Effect of dietary supplementation with different fatty acids on sugar and fat metabolism in early lactation dairy cows[J]. Chinese Journal of Animal Science, 2018, 54(1):85-88. (in Chinese)

[48]
王熙才, 左曙光, 邱宗海, 等. 艾舍尔软胶囊增强小鼠免疫力的实验研究[J]. 昆明医学院学报, 2008, 29(6):71-75,89.

WANG X C, ZUO S G, QIU Z H, et al. Investigation of the immunity-enhancement capability of the Acer capsule in mice[J]. Journal of Kunming Medical College, 2008, 29(6):71-75,89. (in Chinese)

[49]
袁华, 王清华, 王韵阳, 等. 二十二碳六烯酸和神经酸对1-溴丙烷染毒大鼠学习记忆的影响[J]. 中华劳动卫生职业病杂志, 2013, 31(11):806-810.

YUAN H, WANG Q H, WANG Y Y, et al. Effect of docosahexaenoic acid and nervonic acid on the damage of learning and memory abilities in rats induced by 1-bromopropane[J]. Chinese Journal of Industrial Hygiene and Occupational Diseases, 2013, 31(11):806-810. (in Chinese)

Outlines

/