RESEARCH PAPER

Effects of Grape Seed Proanthocyanidins on Liver Inflammation and Antioxidant Function of Fattening Sheep Fed a High-Concentrate Diet and Metabolomic Analysis

  • MU Chuntang ,
  • XIE Yunzhe ,
  • SHEN Yuping ,
  • ZHANG Jianxin ,
  • HAO Xiaoyan , *
Expand
  • College of Animal Science and Veterinary Medicine, Shanxi Agricultural University, Jinzhong 030801, China

Received date: 2024-01-29

  Online published: 2024-07-09

Abstract

The aim of this study was to investigate the effects of grape seed proanthocyanidins (GSPs) on liver morphological structure, liver function, antioxidant capacity and inflammatory response of sheep fed a high-concentrate diet, and analyze liver metabolic changes using non-targeted metabolomics. A total of forty-eight 4-month-old Dorper×thin-tailed Han ram lambs with similar body weight [(22.75±1.20) kg] were fed a 70∶30 concentrate: forage basal diet and randomly assigned to one of four groups of 12 lambs each. The basal diet supplemented with 0 (control group), 10 (10GSPs group), 20 (20GSPs group), or 40 mg/kg BW GSPs (40GSPs group) per day. The experimental sheep were raised in a single pen and fed freely with diets and water. The experiment lasted for 60 days, including 15 days of pre-test. The results showed as follows: 1) the hepatocytes swelling and vacuolation were severe in the control group, while the damage of liver tissue in each GSPs supplementation group was alleviated to different degrees. 2) The contents of serum total protein and albumin were linearly increased (P<0.05), while the activities of serum aspartate aminotransferase and glutaminotransferase were linearly decreased (P<0.05). The total antioxidant capacity (T-AOC) of liver showed a quadratic curve, the activity of glutathione peroxidase (GSH-Px) increased linearly, and the content of malondialdehyde (MDA) decreased linearly (P<0.05). The activity of myeloperoxidase (MPO) in liver was linearly decreased, and the contents of inflammatory factors interleukin-1β (IL-1β), interleukin-6 (IL-6) and tumor necrosis factor-α (TNF-α) were linearly decreased (P<0.05). Compared with control group, serum lipopolysaccharide (LPS) and lipopolysaccharids-binding protein (LBP) contents in MGSPs and HGSPs groups were significantly decreased (P<0.05). 3) With the increase of GSPs supplemental level, the contents of triglyceride, total cholesterol and low density lipoprotein cholesterol in liver were linearly decreased (P<0.05). 4) The non-targeted metabolomics results showed that there were a total of 99 different metabolites between the MGSPs group and the control group, including 67 lipid substances. Among the 99 kinds of metabolites, 71 were significantly up-regulated and 28 were significantly down-regulated. Differential metabolites were enriched in choline metabolism in cancer, glycerophospholipid metabolism, retrograde endocannabinoid signaling, autophagy-other/animal and other potential target pathways. In conclusion, GSPs can improve the antioxidant capacity of liver of sheep fed a high-concentrate diet, reduce the contents of inflammatory factors. It may alleviate inflammatory damage through regulating liver lipid metabolism, choline metabolism, and liver cell autophagy to jointly respond to liver inflammatory response and oxidative stress.

Cite this article

MU Chuntang , XIE Yunzhe , SHEN Yuping , ZHANG Jianxin , HAO Xiaoyan . Effects of Grape Seed Proanthocyanidins on Liver Inflammation and Antioxidant Function of Fattening Sheep Fed a High-Concentrate Diet and Metabolomic Analysis[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4447 -4461 . DOI: 10.12418/CJAN2024.382

在动物高营养需求和优质粗饲料匮乏双重诱因下,高产奶牛、强度育肥牛羊集约化养殖中长期采用高精料饲粮,以致动物营养代谢性疾病频发,造成严重经济损失[1]。长期饲喂高精料饲粮往往导致动物亚急性瘤胃酸中毒(SARA),并伴随着后肠功能紊乱、肝脏功能受损和代谢功能变化[2-3]。肝脏是肠营养物质、细菌产物及代谢产物的受体和过滤器,易受肠道微生物及其产物的攻击。机体正常状态下,胃肠道屏障功能可以保护肝脏免/少受肠道微生物及其产物的侵害[4],肝脏自身的解毒和毒素排泄功能和巨噬细胞等免疫细胞产生的抗炎因子,可以抑制肠源性细菌或毒素诱导的氧化损伤和炎症反应[5]。但当外界因素造成反刍动物胃肠道屏障功能障碍时,消化道膜通透性改变以致细菌及其代谢产物通过门静脉移位入肝脏。随着肠源性细菌及产物的暴露[尤其是脂多糖(LPS)],肝脏免疫细胞表面的Toll样受体(TLRs)被激活,继而触发肝脏炎症信号通路和炎症反应[6]。研究表明,长期饲喂高精料饲粮导致肝脏中白细胞介素-6(IL-6)和肿瘤坏死因子-β(TNF-β)基因表达上调,造成反刍动物消化道源性LPS移位入肝脏,引发肝脏氧化应激和炎症反应[5,7]
植物提取物原花青素是一类多酚类物质,具有强抗氧化和抗炎活性,其缓解动物氧化应激和炎症方面的作用备受人们关注。研究表明,原花青素具有保肝护肝的作用,可以改善铅诱导的大鼠肝脏损伤,增加肝细胞活力并降低乳酸脱氢酶释放和活性氧水平[8],可以提高四氯化碳诱导的肝脏损伤小鼠血清、肝脏抗氧化能力,缓解肝脏氧化损伤[9]。饲粮中添加葡萄籽原花青素(GSPs)可以改善高脂饲粮饲养大鼠的肠道屏障功能[10],可以增加断奶仔猪肠道微生物的多样性,上调上皮屏障蛋白表达[11],可以提高高精料饲粮条件下羔羊生长性能[12],提高结肠抗氧化酶活性,促进紧密连接蛋白表达,降低炎症因子水平[2]。增强肠道上皮屏障功能可以减少LPS等代谢物的移位,对减轻动物肝脏和全身性炎症反应有重要意义。目前,鲜见原花青素在调节反刍动物肝脏功能方面的研究。因此,本试验拟进一步深入研究高精料饲粮中添加GSPs对绵羊肝脏炎症反应、抗氧化功能及肝脏代谢组学的影响,为高精料饲粮下绵羊肝脏功能障碍的调控提供科学依据。

1 材料与方法

1.1 试验设计与动物管理

试验用GSPs纯度≥96.4%,其他主要成分有儿茶素、表儿茶素、表没食子儿茶素没食子酸酯和表儿茶素没食子酸酯,其含量分别为0.533%、0.239%、0.225%、0.171%。
所采用的试验方案经山西农业大学动物伦理委员会批准(批准号:SXAU-EAW-2019S.AA06010180)。试验设计与饲养管理在郝小燕等[12]前期研究中报道过。试验选取48只日龄、体重[(22.75±1.20) kg]相近的杜寒杂交F1代公羔羊,随机分为4组,每组12只。对照组饲喂基础饲粮,各试验组在饲喂基础饲粮的同时分别再每天补饲10(LGSPs组)、20(MGSPs组)、40 mg/kg BW GSPs(HGSPs组)。GSPs饲喂量每周根据羊只体重调整1次。基础饲粮参照NRC(2007)中体重20 kg、日增重300 g/d的羔羊营养需要进行配制,精粗比为70∶30,基础饲粮组成及营养水平见表1。每日晨饲前清空料槽,将准确称量的GSPs与100 g基础饲粮混合后饲喂,待完全采食后正常投料饲喂。单栏(3.0 m×0.8 m)饲养绵羊,每日早、晚(07:00和19:00)各投料1次,羊只自由采食、饮水。试验预试期15 d,正试期45 d,共计60 d。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)%

项目 Items 含量 Content
原料 Ingredients
玉米秸秆 Corn straw 20.0
谷秸 Millet straw 10.0
玉米 Corn 46.0
豆粕 Soybean meal 7.0
棉籽粕 Cottonseed meal 5.0
麦麸 Wheat bran 5.0
石粉 Limestone 0.3
碳酸氢钠 NaHCO3 1.0
氯化钠 NaCl 0.7
预混料 Premix1) 5.0
合计 Total 100.0
营养水平 Nutrient levels2)
粗蛋白质 CP 16.1
粗脂肪 EE 3.5
中性洗涤纤维 NDF 32.7
酸性洗涤纤维 ADF 16.9
粗灰分 Ash 10.2
代谢能 ME/(MJ/kg) 9.8

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Cu 15 mg,Fe 55 mg,Zn 25 mg,Mn 40 mg,Se 0.3 mg,I 0.5 mg,Co 0.2 mg,VA 20 000 IU,VD 4 000 IU,VE 40 IU。

2)代谢能为计算值[13],其余营养成分为实测值. ME was a calculated value[13], while the others were measured values.

1.2 样品采集

正试期开始当天晨饲前所有试验羊空腹称重,记为初始体重,每间隔15 d称1次体重。记录试验期内羊只日采食量,饲养试验完毕后算出平均日增重(ADG)、平均日采食量(AFDI)和料重比(F/G)。正试期第45天清晨绵羊颈静脉采血,分离血清后-20 ℃保存,用于测定总蛋白(TP)、白蛋白(ALB)含量及天冬氨酸转氨酶(AST)和谷丙转氨酶(ALT)活性等肝脏功能指标和血清LPS、脂多糖结合蛋白(LBP)含量等指标。当天19:00,每组随机选择6只绵羊禁食12 h,禁水2 h,次日07:00进行屠宰。屠宰后剥离肝脏,相同部位剪取5 mm×5 mm×3 mm大小组织放入4%多聚甲醛溶液中,用于肝脏组织形态学分析。分别剪取1.5 cm×1.5 cm×1.0 cm大小肝脏组织2块,液氮速冻后超低温冰箱冷冻保存,用于肝脏抗氧化功能指标、炎症因子含量、代谢组学检测。根据前期试验结果分析,选择对照组和MGSPs组肝脏组织进行非靶向代谢组学分析。

1.3 测定指标与方法

1.3.1 饲粮营养成分含量测定

饲粮中营养成分含量测定方法参照AOAC(2000)[14],其中粗蛋白质(CP)含量参照No.2001.11,粗脂肪(EE)含量参照No.954.02、粗灰分(Ash)含量参照No.942.05的方法。中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量测定参照Van Soest等[15]的方法。

1.3.2 血清和肝脏中相关指标测定

血清中TP、ALB含量和AST和ALT活性测定试剂盒购自南京建成生物工程研究所;肝脏组织中总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)、髓过氧化物酶(MPO)活性及丙二醛(MDA)、白细胞介素-1β(IL-1β)、IL-6、白细胞介素-2 (IL-2)、肿瘤坏死因子-α(TNF-α)、甘油三酯(TG)、总胆固醇(TC)、高密度脂蛋白胆固醇(HDL-C)和低密度脂蛋白胆固醇(LDL-C)含量测定试剂盒购自南京建成生物工程研究所。血清中的LPS含量测定使用的显色基质鲎试剂盒购自于厦门鲎试剂实验厂有限公司。血清中LBP含量测定试剂盒购自武汉艾迪抗生物科技有限公司。

1.3.3 肝脏组织形态学分析

将在4%多聚甲醛中固定好的肝脏组织样本经梯度酒精(75%、85%、95%、100%)脱水、透明、浸蜡包埋后,连续切成4 μm薄片再依次进行苏木精-伊红(HE)染色。将HE染色后的切片置于显微镜(NIKON Eclipse Ci, 日本)下观察,选取多个清晰视野拍照。

1.3.4 液相色谱-质谱(LC-MS)分析

先称取30 mg肝脏组织,加入内标(0.3 mg/mL L-2-氯苯丙氨酸;0.01 mg/mL Lyso PC17∶0,均为甲醇配制)各20 μL,加入400 μL甲醇水溶液,-20 ℃条件下研磨;样品冰水浴中超声提取10 min,-20 ℃静置20 min;4 ℃离心机3 300×g运行10 min,移取300 μL上清液挥发干,再用400 μL甲醇水溶液溶解,涡旋30 s,超声处理2 min;随后4 ℃离心机3 300×g运行10 min,注射器移取150 μL上清液,用针孔过滤器过滤后装入进样小瓶,超低温冰箱保存以备LC-MS分析。
色谱分析主要用于分离肝脏组织样品中的成分,本次试验采用AB ExionLC超高效液相串联AB TripleTOF 6600高分辨质谱仪组成的液质联用系统,并采用ESI离子源和正负离子扫描模式采集样品质谱信号。

1.4 数据统计与分析

肝脏功能指标、抗氧化功能指标及炎症因子含量检测结果等数据采用SAS 9.2软件中one-way ANOVA进行分析,采用Duncan氏法进行多重比较,通过正交多项式分析处理线性和二次效应,P<0.05表示差异显著,0.05<P<0.10表示有差异显著的趋势。
代谢组学数据预处理在进行模式识别之前,原始数据采用Progenesis QI v2.3软件进行基线过滤、峰识别、积分、保留时间校正、峰对齐和归一化处理;采用主成分(PCA)、偏最小二乘-判别(PLS-DA)、正交偏最小二乘方-判别(OPLS-DA)分析组间代谢轮廓的总体差异,区分组间差异代谢物。所得数据结果要运行t检验和变异倍数分析,差异代谢物经R软件处理形成火山图;组间差异代谢物的筛选采用单、多维分析相结合,变量权重值(VIP)大于1,P<0.05为显著差异代谢物。利用Metabo Analyst与KEGG对差异代谢物进行聚类分析和代谢通路分析,最终代谢物经Cytoscape软件编制处理绘成代谢反应网络图。

2 结果

2.1 GSPs对高精料育肥绵羊肝脏组织形态结构的影响

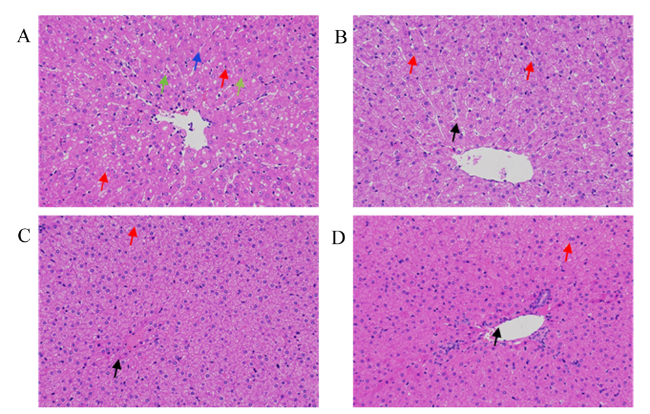
HE染色结果显示,对照组绵羊肝细胞肿胀,细胞颗粒变性、水泡变性,空泡化严重,部分细胞崩解消失。各GSPs添加组肝脏组织损伤均有不同程度缓解,其中MGSPs组、HGSPs组肝脏组织切片中部分肝细胞体积肿大、轻微空泡化,肝窦变窄,但仍可见肝索呈放射状,改善效果显著(图1)。
图1 GSPs对高精料育肥绵羊肝脏形态结构的影响

A:对照组;B:LGSPs组;C:MGSPs组;D:HGSPs组;红色箭头:空泡变性;绿色箭头:颗粒变性;蓝色箭头:细胞坏死,出现核崩解、溶解现象;黑色箭头:肝窦变窄。

Fig.1 Effects of GSPs on liver morphological structure of fattening sheep fed a high-concentrate diet (200×)

A: CON group; B: LGSPs group; C: MGSPs group; D: HGSPs group; red arrow: vacuolar degeneration; green arrow: grain degeneration; blue arrow: cell necrosis, nuclear disintegration and lysis; black arrow: narrowing of hepatic sinusoids.

2.2 GSPs对高精料育肥绵羊血清中肝脏功能指标及LPS含量的影响

表2可见,随着GSPs添加水平的提高,绵羊血清TP和ALB含量线性升高(P<0.05),AST和ALT活性线性降低(P<0.05),其中MGSPs组和HGSPs组与对照组和LGSPs组差异显著(P<0.05)。随着GSPs添加水平的提高,血清LPS和LBP含量线性降低(P<0.05),MGSPs组和HGSPs组显著低于对照组和LGSPs组(P<0.05)。
表2 GSPs对高精料育肥绵羊血清肝脏功能指标和LPS含量的影响

Table 2 Effects of GSPs on serum liver function indicators and LPS content of fattening sheep fed a high-concentrate diet (n=12)

项目
Items
组别 Groups SEM PP-value
CON LGSPs MGSPs HGSPs 处理
Treatment
线性
Linear
二次
Quadratic
总蛋白 TP/(g/L) 54.30bc 52.97c 59.58ab 61.64a 1.90 0.012 0.003 0.382
白蛋白 ALB/(g/L) 21.99b 21.53b 24.81a 25.83a 0.64 <0.001 <0.001 0.269
天冬氨酸转氨酶 AST/(U/L) 68.21a 70.03a 55.14b 57.33b 2.71 0.001 0.001 0.946
谷丙转氨酶 ALT/(U/L) 14.26a 13.19a 9.04b 9.64b 0.71 <0.001 <0.001 0.252
脂多糖 LPS/(EU/mL) 0.31a 0.29a 0.16b 0.17b 0.02 0.003 0.001 0.221
脂多糖结合蛋白 LBP/(mg/L) 8.75a 8.70a 6.05b 5.09b 0.84 0.010 0.002 0.522

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.3 GSPs对高精料育肥绵羊肝脏抗氧化功能指标、炎症因子和脂肪含量的影响

表3可见,随着GSPs添加水平的提高,肝脏组织T-AOC和GSH-Px活性线性升高(P<0.05),其中HGSPs组显著高于对照组和LGSPs组(P<0.05),MDA含量线性降低(P<0.05)。GSPs的添加对肝脏CAT和SOD活性没有显著影响(P>0.05)。与对照组相比,MGSPs组和HGSPs组肝脏中炎症因子IL-1β、IL-6、TNF-α含量和MPO活性显著降低(P<0.05)。随着GSPs添加水平的提高,肝脏中TG、TC和LDL-C含量线性降低(P<0.05),其中MGSPs组和HGSPs组显著低于对照组(P<0.05)。随着GSPs添加水平的提高,GSPs添加组肝脏HDL-C含量有升高的趋势(P=0.089),但组间差异不显著(P>0.05)。
表3 GSPs对高精料育肥绵羊肝脏抗氧化功能指标、炎症因子及脂肪含量的影响

Table 3 Effects of GSPs on antioxidant capacity indicators, inflammatory factors and lipids contents in liver of fattening sheep fed a high-concentrate diet (n=6)

项目
Items
组别 Groups SEM PP-value
CON LGSPs MGSPs HGSPs 处理
Treatment
线性
Linear
二次
Quadratic
总抗氧化能力
T-AOC/(U/mg prot)
1.02b 1.17ab 1.29a 1.10ab 0.06 0.036 0.198 0.011
过氧化氢酶 CAT/(U/mg prot) 5.26 5.54 5.64 5.50 0.10 0.085 0.008 0.052
超氧化物歧化酶
SOD/(U/mg prot)
6.10 6.26 6.53 6.36 0.12 0.098 0.059 0.185
谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
80.21b 91.80ab 98.71a 95.34a 4.18 0.033 0.015 0.074
丙二醛
MDA/(nmol/mg prot)
0.69a 0.68a 0.56b 0.54b 0.03 0.007 0.001 0.974
髓过氧化物酶 MPO/(U/g prot) 6.91a 4.61b 3.74b 3.56b 0.58 0.002 0.001 0.0809
白细胞介素-1β
IL-1β/(ng/g prot)
43.88a 33.49b 28.34b 27.95b 2.91 0.003 0.001 0.102
白细胞介素-2
IL-2/(ng/g prot)
19.10 17.34 14.50 15.21 1.33 0.059 0.044 0.298
白细胞介素-6
IL-6/(ng/g prot)
28.91a 29.41a 22.43b 20.33b 0.93 <0.001 <0.001 0.178
肿瘤坏死因子-α
TNF-α/(ng/g prot)
8.08a 8.03a 6.27b 5.85b 0.45 0.003 0.001 0.690
甘油三酯
TG/(mmol/mg prot)
303.90a 320.80a 262.60b 265.20b 13.25 0.012 0.008 0.594
总胆固醇
TC/(mmol/mg prot)
98.13a 90.87ab 74.17b 77.20b 5.75 0.024 0.010 0.372
高密度脂蛋白胆固醇
HDL-C/(mmol/mg prot)
15.35 17.22 18.93 18.46 1.38 0.291 0.089 0.707
低密度脂蛋白胆固醇
LDL-C/(mmol/mg prot)
15.98a 15.22a 12.53b 10.09b 0.98 0.007 0.001 0.354

2.4 GSPs对高精料育肥绵羊肝脏组织代谢组学变化的影响

2.4.1 肝脏LC-MS色谱图分析
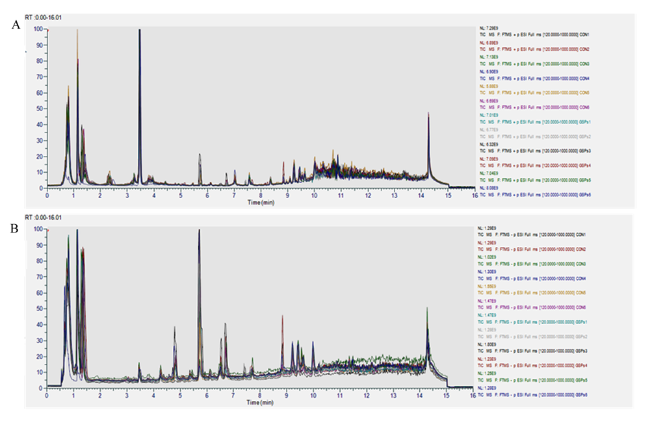
图2可以看到,各LC-MS色谱峰的响应强度、保留时间重叠性好,预示整个分析试验过程由仪器误差引起的结果变异小。2组肝脏中每种小分子物质的信号强、峰容量大、保留时间重现性好,这预示肝脏中小分子物质被有效分开,并显现出代谢物的种类和含量差异。
图2 样本总离子流图谱

A:正离子模式;B:负离子模式。

Fig.2 Total ion current chromatograms of sample

A: positive ion mode; B: negative ion mode.

2.4.2 多元统计分析

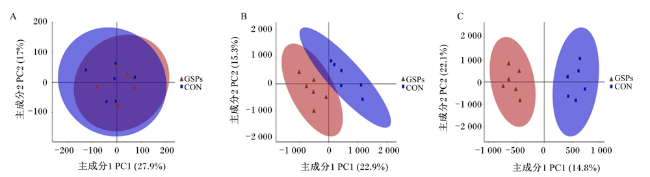
通过循环交互验证和响应排序检验得到肝脏组织代谢物PCA、PLS-DA、OPLS-DA的分析模型图(图3)。PCA可了解对照组、MGSPs组间及2个组内的变异度。从图3-A可知,2组肝脏组织样本均处于95%置信区间,表明此试验稳定性和重复性较好,可以进行样本的代谢差异分析;PLS-DA能够对样品类别进行预测,可进一步弥补PCA方法的不足。从图3-B可知,对照组与MGSPs组间明显分离,表明添加GSPs后绵羊机体代谢发生显著改变;OPLS-DA能够提高模型的解析能力和有效性。从图3-C可知,OPLS-DA模型能明显区分2组样本,且未发生过拟合,表明可以有效找到2组间的差异代谢物。
图3 样本间多元统计分析

A:主成分分析 PCA;B:偏最小二乘-判别分析 PLS-DA;C:正交偏最小二乘方-判别分析OPLS-DA;CON: 对照组 control group; GSPs: 20 mg/kg BW GSPs组 20 mg/kg BW GSPs group.

Fig.3 Multivariate statistical analysis among samples

2.4.3 单变量统计分析与差异代谢物筛选

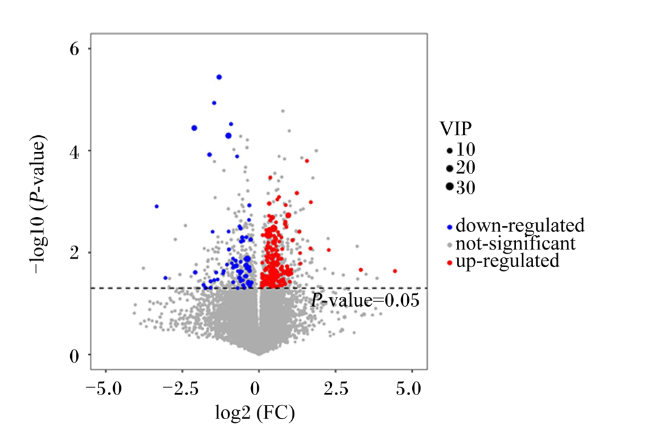
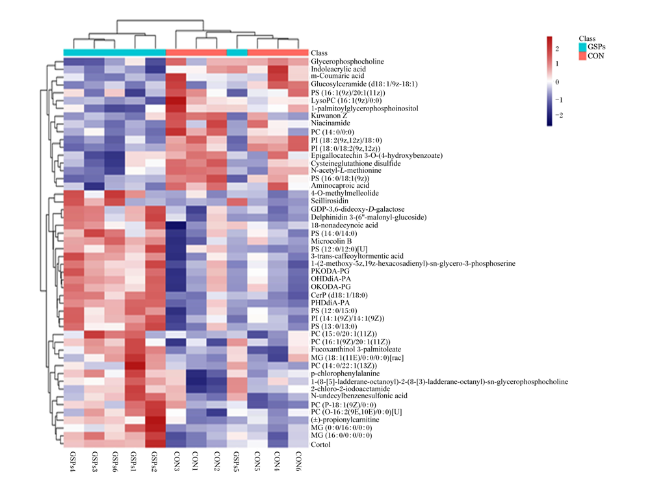
单变量分析可以描述样本数据中的集中或离散趋势,采用t检验和变异倍数分析来比较2组之间的差异代谢产物。火山图可将P值和变异倍数值可视化,有助于差异代谢产物的筛选。本试验共计筛选到99种差异代谢物,其中67种脂类物质,4种有机酸及其衍生物,4种有机杂环化合物,2种芳香族化合物,5种酮类、核苷类化合物,17种其他有机化合物。与对照组相比,MGSPs组99种差异代谢产物存在71种显著上调,28种显著下调(图4)。差异代谢物进行层次聚类分析结果如图5所示,2组肝脏组织样本较好的聚集,可见对照组和MGSPs组组内个体间无显著差异。
图4 差异代谢物火山图

down-regulated(蓝色原点):显著下调的差异代谢产物; not-significant(灰色原点):不显著的差异代谢产物; up-regulated(红色原点):显著上调的差异代谢产物;VIP:变量重要性指标。

Fig.4 Volcanic map of differential metabolites

down-regulated: significantly down-regulated differential metabolites (blue origin); not-significant: non-significant differential metabolites (grey origin); up-regulated: significantly upregulated differential metabolites (red origin); VIP: variable importance in projection.

图5 差异代谢物的聚类分析

Class:分类; CON: 对照组 control group; GSPs: 20 mg/kg BW GSPs组 20 mg/kg BW GSPs group; PC(16∶1(9Z)/20∶1(11Z)):1-(9Z-hexadecenyl)-2-(11Z-eicosenyl)- glycerol-3-phosphoacylcholine 1-(9Z-十六碳烯酰基)-2-(11Z-二十碳烯酰基)-甘油-3-磷酰胆碱; PC(14∶0/22∶1(13Z)): 1-tetradecanoacyl-2 -(13z-docosenoyl) -Sn-glycerol-3-phosphoacylcholine 1-十四烷酰基-2-(13Z-二十二碳烯酰基)-sn-甘油-3-磷酰胆碱; Glycerophosphocholine:甘油磷酰胆碱; PI(18∶2(9Z,12Z)/18∶0):1-(9Z, 12Z-octadecanodienoyl) -2-octadecanoacyl-glycerol-3-phosphoyl -(1' -myo-inositol) 1-(9Z,12Z-十八碳二烯酰基)-2-十八碳酰基-甘油-3-磷酰-(1'-myo-肌醇); 1-(2-methoxy-5Z,19Z-hexacosadienyl)-sn- glycero-3-phosphoserine:1-(2-甲氧基-5Z,19Z-二十六二烯基)-sn-甘油-3-磷酰丝氨酸; Fucoxanthinol 3-palmitoleate:岩藻黄质醇3-十六碳烯酸脂; 4-O-methylmelleolide:4-O-甲基蜂蜜勒内酯; PI(18∶0/18∶2(9Z,12Z)):1-octadecanoacyl-2 -(9Z, 12Z-octadecanodienoyl) -glycerol-3-phosphoyl -(1'-myo-inositol) 1-十八碳酰基-2-(9Z,12Z-十八碳二烯酰基)-甘油-3-磷酰-(1'-myo-肌醇); Cysteineglutathione disulfide: 半胱氨酸谷胱甘肽二硫醚; 1-(8-[5]-ladderane-octanoyl)-2-(8-[3]-ladderane-octanyl)-sn-glycerophosphocholine: 1- (8-[5]-梯a NE-辛酰)-2-(8-[3]-梯aNE-辛烷基)-sn-甘油磷酰胆碱; LysoPC(16∶1(9Z)/0∶0): (9Z-hexadecenyl) -lysozyme phosphatidyl ethanolamine (9Z-十六碳烯酰基)-溶菌酶磷脂酰乙醇胺; m-coumaric acid: m-羟基肉桂酸; OHDdiA-PA: 1-9(z-18 carbene acyl)-2-(9-hydroxy-11-carboxyl-10 e-undecylenic acyl)-sn-glycerol-3-phosphate 1-(9Z-十八碳烯酰基)-2-(9-羟基-11-羧基-10E-十一碳烯酰基)-sn-甘油-3-磷酸酯; PS(16∶0/18∶1(9Z)):1-palmitoyl-2 -(9Z-octadecenoyl) -SN-glycerol-3-phosphoylserine 1-棕榈酰-2-(9Z-十八碳烯酰基)-sn-甘油-3-磷酰丝氨酸; PI(14∶1(9Z)/14∶1(9Z)):1, 2-di-(9Z-tetradecenyl)-SN-glycerol-3-phosphoyl -(1'-myo-inositol) 1,2-二-(9Z-十四碳烯酰基)-sn-甘油-3-磷酰-(1'-myo-肌醇); CerP(d18∶1/8∶0): N-(octyl) -S isomerase nG-4-ene ine-1-phosphate N-(辛酰)-s异构酶ng-4-烯iNE-1-磷酸酯; 3-trans-caffeoyltormentic acid: 3-反式-咖啡酰委陵菜酸; Glucosylceramide (d18∶1/9Z-18∶1):葡糖神经酰胺(d18∶1/9Z-18∶1); Niacinamide:烟酰胺; Aminocaproic acid:氨基己酸; PC(O-16∶2(9E,10E)/0∶0): lysophosphatidylcholine (O-16∶2(9E,10E)/0∶0) 血溶性磷脂胆碱(O-16∶2(9E,10E)/0∶0); PS(12∶0/12∶0): 1, 2-dilauryl-SN-glycerol-3-phosphoylserine 1,2-二月桂酰-sn-甘油-3-磷酰丝氨酸; Indoleacrylic acid: 吲哚丙烯酸; (±)-propionylcarnitine:(±)-丙酰基肉碱; p-chlorophenylalanine: p-氯苯丙氨酸; GDP-3,6-dideoxy-D-galactose: GDP-3,6-二脱氧-D-半乳糖; MG(18∶1(11E)/0∶0/0∶0):1-(11e-octadecenoyl) -racemic glycerol 1-(11E-十八碳烯酰基)-外消旋-甘油; MG(16∶0/0∶0/0∶0): 1-palmitoyl-sn-glycerol 1-棕榈酰-sn-甘油; PC(14∶0/0∶0): 1-tetradecanoacyl-sn-glycerol-3-phosphoacylcholine 1-十四烷酰基-sn-甘油-3-磷酰胆碱; PC(15∶0/20∶1(11Z)): 1-pentadecanoyl-2-(11z-eicosenoyl) -glycerol-3-phosphoacylcholine 1-十五碳酰-2-(11Z-二十碳烯酰基)-甘油-3-磷酰胆碱; Epigallocatechin 3-O-(4-hydroxybenzoate): Epigallocatechin 3-O-(4-hydroxybenzoate) 表没食子儿茶素3-O-(4-羟基苯甲酸酯); PHDdiA- PA: 1-palmitoyl-2 -(9-hydroxy-11-carboxyl-10e-undecylenyl) -Sn-glycerol-3-phosphate 1-棕榈酰-2-(9-羟基-11-羧基-10E-十一碳烯酰基)-sn-甘油-3-磷酸酯; OKODA-PG: 1-9 (z-18 carbene acyl)-2-(9, 12-oxygen generation-10 e-do decyl acyl)-sn-glycerol-3-phosphoryl-(1'- sn-glycerin) 1-(9Z-十八碳烯酰基)-2-(9,12-二氧代-10E-do癸烯酰基)-sn-甘油-3-磷酰-(1'-sn-甘油); PS(14∶0/14∶0): 1, 2-tetracosanoacyl-SN-glycerol-3-phosphoacylserine 1,2-二十四烷酰基-sn-甘油-3-磷酰丝氨酸; Microcolin B:微斜长石B; Kuwanon Z:桑黄酮; N-undecylbenzenesulfonic acid:桑黄酮; PS(12∶0/15∶0): 1-lauryl-2-pentadecanoyl-glycerol-3-phosphoylserine 1-月桂酰-2-十五碳酰-甘油-3-磷酰丝氨酸; PKODA-PG: 1-palmitoyl-2-(9, 12-the two oxygen generation-10 e- do decyl acyl) -sn-glycerol-3-phosphoryl-(1'-sn-glycerin) 1-棕榈酰-2-(9,12-二氧代-10E-do癸烯酰基)-sn-甘油-3-磷酰-(1'-sn-甘油); 1-palmitoylglycerophosphoinositol: 1-palmitoyl inositol phospholipid 1-棕榈酰甘油肌醇磷脂; N-acetyl-L-methionine:N-乙酰基-L-蛋氨酸; MG(0∶0/16∶0/0∶0): 2-palmitoyl-Sn-glycerol 2-棕榈酰-sn-甘油; Delphinidin 3-(6″-malonyl- glucoside): 花翠素3-(6″-丙二酰-葡糖苷); PS(13∶0/13∶0): 1, 2-tricosanoacyl-sn-glycerol -3-phosphoylserine 1,2-二十三烷酰基-sn-甘油-3-磷酰丝氨酸; Cortol:皮甾五醇; PS(16∶1(9Z)/20∶1(11Z)): 1-(9Z-hexadecenyl)-2-(11Z-eicosenyl)-glycerol-3-phosphoylserine 1-(9 Z-十六碳烯酰基)-2-(11Z-二十碳烯酰基)-甘油-3-磷酰丝氨酸; 18-nonadecynoic acid: 18-十九碳炔酸; Scillirosidin:红海葱苷元; 2-chloro-2-iodoacetamide: 2-氯-2-碘乙酰胺; PC(P-18∶1(9Z)/0∶0): 1 -(1Z, 9Z-octadecadienyl) -sn-glycerol-3-phosphoacylcholine 1 -(1Z,9Z-十八碳二烯基)-sn-甘油-3-磷酰胆碱。

Fig.5 Cluster analysis of differential metabolites

2.4.4 差异代谢物KEGG通路分析

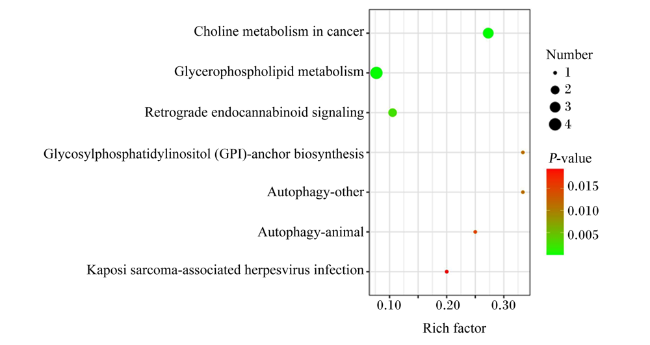
差异代谢产物KEGG通路富集分析结果显示,2组肝脏组织中共有差异代谢物共参与了20条不同代谢通路,其中有7条通路为潜在的靶向通路,包括癌症中的胆碱代谢、甘油磷脂代谢、逆行内源性大麻素信号、糖基磷脂酰肌醇(GPI)锚定生物合成、自噬-其他、自噬-动物、卡波西肉瘤相关疱疹病毒感染等通路(图6)。由此可见,GSPs对高精料致绵羊肝脏损伤的调控作用可能与肝脏脂代谢改变、肝细胞自噬等关系密切。
图6 显著差异代谢物富集通路气泡图

Number:数量; P-value: P值; Rich factor: 富集因子; Choline metabolism in cancer:癌症中的胆碱代谢; Glycerophospholipid metabolism:甘油磷脂代谢; Retrograde endocannabinoid signaling:逆行内源性大麻素信号; Glycosylphosphatidylinositol (GPI)-anchor biosynthesis: 糖基磷脂酰肌醇(GPI)锚定生物合成;Autophagy-other:自噬-其他; Autophagy-animal:自噬-动物; Kaposi sarcoma-associated herpesvirus infection:卡波西肉瘤相关疱疹病毒感染。

Fig.6 Bubble diagram of significantly different metabolite enrichment pathways

3 讨论

高精料饲粮是现代肉牛、肉羊生产中常用的饲粮结构,尽管可以提高短期内的生长速度,加快出栏进度,但物理有效纤维的缺乏和过量的可发酵碳水化合物导致动物反刍次数减少,瘤胃内环境紊乱,增加亚急性瘤胃酸中毒的风险[16]。瘤胃短链脂肪酸积累、瘤胃pH降低、瘤胃微生物群失调也导致瘤胃和小肠淀粉逃逸率更高,后肠道(结肠和盲肠)可发酵碳水化合物增加,发生代谢紊乱以致后肠道酸中毒。因此,长期饲喂高精料饲粮反刍动物瘤胃和后肠有害代谢产物如LPS含量增加,上皮屏障功能损伤会导致瘤胃和后肠中的有害代谢物被转运到下游器官,包括肝脏[6]和乳腺[17],甚至引起机体全身性炎症反应。Trabi等[18]研究表明,高精料颗粒饲料导致湖羊瘤胃pH降低,乳酸浓度升高,微生物区系改变,瘤胃上皮角质层被破坏,TNF-αIL-6表达上调,瘤胃上皮发生炎症损伤。Liu等[19]研究表明,高精料饲粮改变了山羊盲肠菌群组成和发酵,导致盲肠黏膜损伤。Ahamed[20]给泌乳中期奶牛饲喂高精料饲粮导致门静脉、肝静脉血浆LPS含量升高,血清和肝脏MDA含量升高,T-AOC和CAT活性降低,表明消化道源性的LPS转位抑制了细胞抗氧化防御能力。胡永林等[21]发现,高精料饲粮会导致奶山羊肝脏组织中促炎因子IL-6和TNF-β以及TLR4与NF-κB基因表达显著升高,造成肝脏炎性损伤。
原花青素具有强的抗氧化能力和抗炎活性,但其在单胃动物的小肠内吸收效率很低,经后肠微生物代谢后生成生物活性更强的苯甲酸、苯乙酸等物质发挥作用[22]。原花青素及其代谢物通过增加微生物多样性、调节肠道稳态和提高抗氧化能力来增强肠道屏障功能[23]。本研究中,GSPs可能在瘤胃中经瘤胃微生物代谢成活性更强的酚酸类物质调节机体健康。前期研究结果表明,GSPs可以提高绵羊平均日增重,改善生长性能[12];可以提高高精料饲粮条件下绵羊瘤胃和结肠上皮抗氧化能力,上调结肠上皮紧密连接蛋白表达,降低结肠炎症反应[2]。本试验中,添加中、高剂量GSPs可以明显改善绵羊肝细胞肿胀、空泡化等损伤表现,降低血清中AST、ALT活性及肝脏中炎症因子的含量,缓解高精料所致的肝脏炎性损伤。这可能与GSPs保护绵羊胃肠道屏障功能、减少LPS等消化道源性有害物质移位对肝脏的损害有一定的关系,这与本试验中GSPs添加组血清LPS和LBP含量降低的结果一致。ALB由肝脏合成,血清TP和ALB含量可以直接反映动物体蛋白合成代谢的强弱[24],TP含量越高则体蛋白合成效率越高。本研究中,添加GSPs后绵羊血清TP和ALB含量升高,这可能是绵羊生长性能提高的直接因素之一。此外,GSPs瘤胃微生物代谢产物可能经胃肠道吸收进入血液,在肝脏中发挥抗氧化功能,抵御炎症反应。前人研究发现,原花青素通过激活核因子NF-E2相关因子(Nrf2)/血红素氧合酶-1(OH-1)信号通路和抑制NF-κB信号通路保护铅诱导的大鼠肝脏损伤[8]。许多研究也证明,原花青素通过抗氧化机制抵御外界不利因素造成的动物肝脏损伤[25-26]。本研究中,GSPs组肝脏抗氧化酶活性升高,提示GSPs可能通过提高肝脏抗氧化能力,改善高精料饲粮所致的绵羊肝脏损伤。肖瀛等[27]研究发现,原花青素B2灌胃小鼠后,肝脏是原花青素B2单体和结合型代谢产物的主要分布组织,是结合代谢产物形成的主要器官,这也提示肝脏可能是原花青素调节机体代谢、增强机体抗氧化应激能力的主要靶器官。目前关于原花青素对反刍动物肝脏功能影响的研究较少。但研究证明与原花青素结构和功能相似的黄酮类化合物可以缓解围产期奶牛肝脏损伤,提高肝脏抗氧化能力[28];添加33 mg/kg沙葱黄酮可以提高肉羊血清和肝脏抗氧化酶活性,降低MDA含量[29],这均与本试验结果一致。
肝脏是三大营养物质代谢的主要场所,决定着脂肪酸代谢的去向。瘤胃发酵生成的挥发性脂肪酸(VFA)、来源于饲料的长链脂肪酸和脂肪分解产生的游离脂肪酸最终都进入肝脏参与代谢。当动物摄入的能量水平过高,肝脏脂肪合成量高于脂肪转运及氧化消耗的量时,将造成脂肪在肝脏中的大量沉积和代谢紊乱[30]。因此,反刍动物短期饲喂高精料或高能量饲粮,肝脏中脂肪合成代谢旺盛,脂肪沉积显著增加。脂肪在肝脏中积累会造成一定的脂毒性,加重高谷物饲粮下肠源性有害物质引起的肝脏损伤。当长期摄入高谷物饲粮诱发亚急性瘤胃酸中毒时,其应激轴下丘脑-垂体-肾上腺皮质被激活,机体处于应激状态,肝脏和瘤胃上皮物质代谢改变[31]。为抵御免疫应激反应,肝脏脂肪酸分解代谢加强,更多的脂肪酸参与机体氧化反应过程。因此,在高精料诱导的亚急性瘤胃酸中毒发生后,山羊血清游离脂肪酸含量升高,肝脏TG和TC含量降低,脂代谢关键酶乙酰辅酶A转乙酰基酶和3-羟脂酰辅酶A脱氢酶基因表达升高,提示肝脏脂肪酸的分解代谢被激活[32]。李和平等[33]研究也表明,LPS诱导山羊肝脏损伤时,脂肪合成酶基因表达被抑制,肝脏脂肪合成和转运能力降低。李琼[34]研究发现,高精料饲喂的山羊肝脏转录组变化主要富集到免疫应答和脂质代谢通路上,包括免疫因子产生、脂肪酸和胆固醇代谢、低密度脂蛋白合成,高精料组肝脏脂肪酸合成限速酶基因表达显著下调,脂肪酸合成减少。高精料条件下,进入细胞的短链脂肪酸含量增加,激活过氧化物酶体增殖物激活受体(PPAR)信号通路并上调载脂蛋白表达,加速肝脏脂肪代谢[35]。Steele等[36]研究表明,短期饲喂高精料饲粮肝脏胆固醇合成增强,而随着饲喂时间延长,胆固醇合成被抑制。本研究中,随着GSPs的添加水平的提高,肝脏中TG、TC和LDL-C含量降低,说明在肝脏自身调节和适应高精料的基础上,原花青素进一步调控了肝脏脂代谢,抑制脂肪在肝脏的积累,缓解脂质代谢紊乱,这可能也是GSPs改善绵羊生长性能的原因之一。
本研究中,非靶向代谢组学结果显示,原花青素改变了高精料条件下绵羊肝脏代谢。筛选出的99种差异代谢物中,有67种属于脂质和类脂物质,结合差异代谢物代谢通路富集结果,发现原花青素主要影响高精料条件下绵羊肝脏胆碱代谢、甘油磷脂代谢和肝细胞自噬等。研究证实,原花青素等植物多酚、黄酮类物质对动物脂代谢具有重要的调节作用,可以通过影响动物肠道微生物组成、激活能量感受器、调节线粒体生物合成、减少脂质的氧化应激反应等调节机体脂质代谢,从而达到提高动物生长性能、改善健康状况的目的[37]。赵艳婷[38]研究表明,荔枝壳原花青素能调节载脂蛋白E基因敲除小鼠肝脏脂代谢,降低血脂水平,缓解脂肪沉积对肝脏的损伤。张艳华等[39]研究表明,葡萄籽原花青素能够降低高脂高糖饮食诱导代谢综合征大鼠的体脂量,改善大鼠脂代谢紊乱并减轻炎症反应。白藜芦醇通过上调过氧化物酶体增殖子激活-受体因子γ辅激活因子-1α(PGC-1α)表达调节肝脏糖异生、线粒体生物合成,抑制脂质的积累[40]。宿孝奇[41]研究发现,原花青素可以提高酮病奶牛血清抗氧化酶活性,降低血清游离脂肪酸和酮体含量。本研究中,原花青素上调或下调了肝脏中多种磷脂酰胆碱、磷脂酰丝氨酸、磷脂酰甘油、磷脂酰乙醇胺、磷脂酰肌醇等物质含量,可能进一步通过影响细胞膜的完整性、细胞膜对蛋白质的识别、信号传导、胆固醇代谢、脂肪酸合成和分解等代谢过程调节高精料饲粮条件下肝脏的物质代谢和免疫应激。
本试验发现,GSPs影响高精料舍饲绵羊肝脏逆行内源性大麻素信号、糖基磷脂酰肌醇锚定生物合成、细胞自噬等信号通路。动物机体内源性大麻素有花生四烯酸氨基乙醇和2-花生四烯酸甘油[42]。内源性大麻素系统与脂类代谢障碍、神经功能紊乱等疾病有重要关系,且内源性大麻素有重要的抗氧化、抗炎及抑制TNF-α等释放的作用[43]。TNF-α是调控炎症反应的重要因子,通过刺激肝脏产生急性期蛋白参与急性期反应,适量的TNF-α能介导保护反应,但过量则会造成细胞损伤[44]。本研究中,GSPs可能通过介导逆行内源性大麻素信号抑制TNF-α释放,缓解肝脏损伤,维持肝脏正常代谢功能,促进动物健康生长。据报道,GPI锚定化修饰是真核生物细胞膜表面蛋白翻译后修饰的常见方式,修饰形成的GPI锚定蛋白与细胞信号传导、细胞生长、免疫反应有密切关系[45]。自噬是细胞的一个重要的生物学功能,属于Ⅱ型程序性细胞死亡。自噬在蛋白质代谢、组织发育、细胞更新中发挥重要作用,也与肿瘤、炎症、免疫、心脑血管等相关疾病的发生、发展关系密切[46]。已研究证实,炎症发生和发展过程中会激活自噬,同时自噬可以负反馈调节炎症反应,影响炎症的发展进程[47]。炎症因子TNF-αIL-1β、干扰素-γ(IFN-γ)等的表达可以促进细胞自噬,自噬亦可调控TLR信号和炎症小体活化控制炎症因子的分泌[48]。NOD样受体热蛋白结构域相关蛋白3(NLRP3)炎症小体激活介导炎症信号通路可以诱发肝脏炎症损伤和纤维化的发生[49],而胆碱代谢与炎症小体NLRP3活化有密切关系。据报道,胆碱通过磷酸胆碱合成线粒体膜卵磷脂,并维持ATP浓度抑制腺苷酸激活蛋白激酶(AMPK)信号通路介导的线粒体自噬,从而促进炎症小体活化[50]。原花青素可以抑制LPS/ATP诱导的小鼠小胶质细胞炎症因子分泌及NLRP3炎症小体激活[51],对四氯化碳诱导的小鼠急性氧化性肝脏损伤有显著的保护效应,其作用机制是原花青素促进小鼠肝细胞增殖,抑制肝细胞自噬和凋亡[52]。本试验中,原花青素可能通过调节肝细胞自噬和抑制炎症小体激活发挥护肝脏作用。
前期研究表明,GSPs提高高精料条件下绵羊生长性能与其调控瘤胃发酵、后肠发酵、提高营养物质消化率、改善绵羊肠道屏障功能和免疫功能等有关[2,12,53]。在本研究中进一步发现,原花青素降低绵羊肝脏炎症反应和机体氧化应激反应,减少氧化应激状态下肝脏脂质合成,缓解肝脏脂质代谢紊乱,这可能有效地减少了机体在应激状态下所消耗的能量,并保护肝脏结构和功能的完整性,从而有利于绵羊健康生长。

4 结论

高精料饲粮条件下,每天饲喂20 mg/kg BW GSPs可以提高绵羊肝脏抗抗氧化能力,降低炎症因子含量,缓解肝脏炎性损伤。肝脏代谢组学分析结果表明,GSPs可能通过调节肝脏脂质代谢、胆碱代谢及肝细胞自噬共同应答高精料造成的绵羊肝脏炎性反应,干预炎症发展进程,缓解炎性损伤。
[1]
MU Y Y, QI W P, ZHANG T, et al. Multi-omics analysis revealed coordinated responses of rumen microbiome and epithelium to high-grain-induced subacute rumen acidosis in lactating dairy cows[J]. mSystems, 2022, 7(1):e0149021.

[2]
MU C T, HAO X Y, ZHANG X Z, et al. Effects of high-concentrate diet supplemented with grape seed procyanidins on the colonic fermentation,colonic morphology,and inflammatory response in lambs[J]. Animal Feed Science and Technology, 2021, 281:115118.

[3]
GUO J F, CHANG G J, ZHANG K, et al. Rumen-derived lipopolysaccharide provoked inflammatory injury in the liver of dairy cows fed a high-concentrate diet[J]. Oncotarget, 2017, 8(29):46769-46780.

DOI PMID

[4]
MEENA A S, SHUKLA P K, SHETH P, et al. EGF receptor plays a role in the mechanism of glutamine-mediated prevention of alcohol-induced gut barrier dysfunction and liver injury[J]. Journal of Nutritional Biochemistry, 2019, 64:128-143.

DOI PMID

[5]
THOMAS H T, EDWARDS L A, SCHNABL B, et al. Targeting the gut-liver-immune axis to treat cirrhosis[J]. Gut, 2021, 70(5):982-994.

DOI PMID

[6]
CHANG G J, ZHUANG S, SEYFERT H M, et al. Hepatic TLR4 signaling is activated by LPS from digestive tract during SARA, and epigenetic mechanisms contribute to enforced TLR4 expression[J]. Oncotarget, 2015, 6(36):38578-38590.

[7]
LI S, KHAFIPOUR E, KRAUSE D O, et al. Effects of subacute ruminal acidosis challenges on fermentation and endotoxins in the rumen and hindgut of dairy cows[J]. Journal of Dairy Science, 2012, 95(1):294-303.

DOI PMID

[8]
LIU B Y, JIANG H J, LU J J, et al. Grape seed procyanidin extract ameliorates lead-induced liver injury via miRNA153 and AKT/GSK-3β/Fyn-mediated Nrf2 activation[J]. Journal of Nutritional Biochemistry, 2018, 52:115-123.

DOI PMID

[9]
徐潇吟, 田争福, 张惠玲. 欧李原花青素体外抗氧化性及对小鼠肝损伤保护的研究[J]. 食品与发酵工业, 2023, 49(2):181-186.

DOI

XU X Y, TIAN Z F, ZHANG H L. Study on the in vitro antioxidant activity of proanthocyanidins from Cerasus humilis and its protective effect onliver injury in mice[J]. Food and Fermentation Industries, 2023, 49(2):181-186. (in Chinese)

[10]
GAO Z P, WU H, ZHANG K Q, et al. Protective effects of grape seed procyanidin extract on intestinal barrier dysfunction induced by a long-term high-fat diet[J]. Journal of Functional Foods, 2020, 64:103663.

[11]
HAN M, SONG P X, HUANG C, et al. Dietary grape seed proanthocyanidins (GSPs) improve weaned intestinal microbiota and mucosal barrier using a piglet model[J]. Oncotarget, 2016, 7(49):80313-80326.

DOI PMID

[12]
郝小燕, 牟春堂, 乔栋, 等. 葡萄籽原花青素对羔羊瘤胃发酵、血清炎症及抗氧化指标的影响[J]. 中国农业科学, 2021, 54(10):2239-2248.

DOI

HAO X Y, MU C T, QIAO D, et al. Effects of high-concentrate diet supplemented with grape seed proanthocyanidins on rumen fermentation, inflammatory and antioxidant indicators of rumen and serum in lambs[J]. Scientia Agricultura Sinica, 2021, 54(10):2239-2248. (in Chinese)

DOI

[13]
刁其玉. 中国肉用绵羊营养需要[M]. 北京: 中国农业出版社, 2019:167-178.

DIAO Q Y. Nutritional requirements of meat sheep in China[M]. Beijing: China Agriculture Press, 2019:167-178. (in Chinese)

[14]
HORWITZ W. Official methods of analysis of AOAC international[M]. 17th ed. Gaithersburg, MD: AOAC International, 2000.

[15]
VAN SOEST P J. ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[16]
ZHANG K, CHANG G J, XU T L, et al. Lipopolysaccharide derived from the digestive tract activates inflammatory gene expression and inhibits casein synthesis in the mammary glands of lactating dairy cows[J]. Oncotarget, 2016, 7(9):9652-9665.

DOI PMID

[17]
COLMAN E, FOKKINK W B, CRANINX M, et al. Effect of induction of subacute ruminal acidosis on milk fat profile and rumen parameters[J]. Journal of Dairy Science, 2010, 93(10):4759-4773.

DOI PMID

[18]
TRABI E B, SEDDIK H E, XIE F, et al. Effect of pelleted high-grain total mixed ration on rumen morphology,epithelium-associated microbiota and gene expression of proinflammatory cytokines and tight junction proteins in Hu sheep[J]. Animal Feed Science and Technology, 2020, 263:114453.

[19]
LIU J H, XU T T, ZHU W Y, et al. High-grain feeding alters caecal bacterial microbiota composition and fermentation and results in caecal mucosal injury in goats[J]. British Journal of Nutrition, 2014, 112(3):416-427.

[20]
AHAMED J A A. The mechanism of subacute ruminal acidosis induced oxidative stress in ruminants[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2017.

[21]
胡永林, 张祥胤, 毋程飞, 等. 高精料日粮对奶山羊肝、脾炎性因子表达的影响[J]. 畜牧兽医学报, 2020, 51(7):1646-1655.

DOI

HU Y L, ZHANG X Y, WU C F, et al. Effects of high concentrate diet on expression of inflammatory factors of liver and spleen in dairy goats[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(7):1646-1655. (in Chinese)

DOI

[22]
杨光美, 李桐云, 张玉莹, 等. 原花青素A2肠道菌群代谢物及其抗氧化活性[J]. 食品科学, 2018, 39(21):155-159.

DOI

YANG G M, LI T Y, ZHANG Y Y, et al. Analysis of in vitro intestinal microbial metabolites of procyanidin A2 and evaluation of their antioxidant activity[J]. Food Science, 2018, 39(21):155-159. (in Chinese)

[23]
宋雪琳, 李雅梅, 肖俊松, 等. 葡萄籽原花青素对营养肥胖模型大鼠肠道菌群的影响[J]. 食品科学技术学报, 2015, 33(5):39-46.

SONG X L, LI Y M, XIAO J S, et al. Effect of grape seed proanthocyanidins on gut microbiota of diet-induced-obesity rats[J]. Journal of Food Science and Technology, 2015, 33(5):39-46. (in Chinese)

[24]
SUN X F, YAMASAKI M, KATSUBE T, et al. Effects of quercetin derivatives from mulberry leaves: improved gene expression related hepatic lipid and glucose metabolism in short-term high-fat fed mice[J]. Nutrition Research and Practice, 2015, 9(2):137-143.

DOI PMID

[25]
赵娇. 葡萄籽原花青素缓解氧化应激仔猪肝脏损伤及可能机制研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2013.

ZHAO J. Effects and possible mechanism of grape seed procyanidins on alleviating hepatic oxidative damage in weaned piglets[D]. Master's Thesis. Ya'an: Sichuan Agricultural University, 2013. (in Chinese)

[26]
李嫦婧, 李述刚, 牛强, 等. 葡萄籽原花青素对砷致小鼠肝脏毒性预防保护作用的研究[J]. 毒理学杂志, 2016, 30(1):14-17.

LI C J, LI S G, NIU Q, et al. Procyanidin protects against arsenic-induced liver injury in mice[J]. Journal of Toxicology, 2016, 30(1):14-17. (in Chinese)

[27]
肖瀛, 尹志婷, 胡中志, 等. 原花青素B2代谢产物在小鼠体内组织的分布[J]. 食品科学, 2017, 38(9):168-172.

DOI

XIAO Y, YIN Z T, HU Z Z, et al. Distribution of procyanidin B2 metabolites in mice[J]. Food Science, 2017, 38(9):168-172. (in Chinese)

DOI

[28]
杨明茂, 田艳, 高畅鸿, 等. 植物甾醇、大豆异黄酮、杨梅素混合保健颗粒对围产期奶牛能量代谢病防控效果的评价[J]. 中国兽医学报, 2022, 42(7):1457-1463, 1516.

YANG M M, TIAN Y, GAO C H, et al. Evaluation of effect of phytosterols,soybean isoflavones and myricetin mixed health granules on prevention and control of energy metabolism diseases in dairy cows during the perinatal period[J]. Chinese Journal of Veterinary Science, 2022, 42(7):1457-1463,1516. (in Chinese)

[29]
木其尔. 沙葱黄酮对肉羊机体抗氧化和免疫功能的影响及其机理研究[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2016.

MU Q E. The effects of flavonoids from Allium mongolicum regel on antioxidant capacity, immune function and its mechanism in meat sheep[D]. Ph.D. Thesis. Hohhot: Inner Mongolia Agricultural University, 2016. (in Chinese)

[30]
曹洋, 李林, 谢正露, 等. 高精料日粮饲喂诱导泌乳奶牛发生乳脂抑制的机制[J]. 农业生物技术学报, 2016, 24(11):1718-1725.

CAO Y, LI L, XIE Z L, et al. The mechanism of high concentrate diet fed induced milk fat depression in lactating dairy cows (Bos taurus)[J]. Journal of Agricultural Biotechnology, 2016, 24(11):1718-1725. (in Chinese)

[31]
贾媛媛. 亚急性瘤胃酸中毒对山羊血液皮质醇浓度和肝脏脂代谢的影响及其机制研究[D]. 硕士学位论文. 南京: 南京农业大学, 2013.

JIA Y Y. Effects of subacute ruminal acidosis on cortisol concentration and hepatie lipid metabolism and its mechanism in dairy goats[D]. Master's Thesis. Nanjing: Nanjing Agricultural University, 2013. (in Chinese)

[32]
姜雪元, 张树坤, 张源淑. 不同精粗比日粮对泌乳山羊肝脏蛋白表达谱及乳脂肪合成的影响[J]. 南京农业大学学报, 2012(6):97-103.

JIANG X Y, ZHANG S K, ZHANG Y S. The influence of different concentrate to forage diets on hepatic protein expression profiles and milk fat synthesis of lactating goats[J]. Journal of Nanjing Agricultural University, 2012(6):97-103. (in Chinese)

[33]
李和平, 王月影, 刘凤娟, 等. 脂多糖对奶山羊肝脏脂代谢关键基因表达的影响[J]. 中国兽医学报, 2013, 33(7):1055-1058, 1063.

LI H P, WANG Y Y, LIU F J, et al. Effects of LPS on the expression of lipid metabolism key genes in liver of dairy goats[J]. Chinese Journal of Veterinary Science, 2013, 33(7):1055-1058, 1063. (in Chinese)

[34]
李琼. 高精料日粮对山羊瘤胃发酵、血液指标及肝脏转录组的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2021.

LI Q. Effects of high concentrate diet on rumen fermentation,blood parameters and liver transcriptome of goats[D]. Master's Thesis. Ya'an: Sichuan Agricultural University, 2021. (in Chinese)

[35]
ERNIA S, CAVANAGH KYROS J, GARCIA HAROL L, et al. The PPARα-FGF 21 hormone axis contributes to metabolic regulation by the hepatic JNK signaling pathway[J]. Cell Metabolism, 2014, 20(3):512-525.

[36]
STEELE M A, VANDERVOORT G, ALZAHAL O, et al. Rumen epithelial adaptation to high-grain diets involves the coordinated regulation of genes involved in cholesterol homeostasis[J]. Physiological Genomics, 2011, 43(6):308-316.

DOI PMID

[37]
钟港, 陈东. 黄酮类化合物在脂肪代谢中的作用机制研究进展[J]. 动物营养学报, 2022, 34(6):3483-3494.

DOI

ZHONG G, CHEN D. Research progress on mechanism of flavonoids in fat metabolism[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3483-3494. (in Chinese)

DOI

[38]
赵艳婷. 荔枝壳原花青素对apoE基因敲除小鼠肝脏脂质代谢紊乱的调节作用及其机制研究[D]. 硕士学位论文. 武汉: 华中科技大学, 2011.

ZHAO Y T. Effect and mechanism of procyanidins extracted from the litchi pericarp on liver lipid metabolism disorderin apoE-deficient mice[D]. Master's Thesis. Wuhan: Huazhong University of Science and Technology, 2011. (in Chinese)

[39]
张艳华, 汪雄, 王文利, 等. 葡萄籽原花青素对高脂高糖饮食诱导代谢综合征大鼠干预作用[J]. 食品科学, 2020, 41(1):112-120.

DOI

ZHANG Y H, WANG X, WANG W L, et al. Effects of grape seed proanthocyanins on high-fat and high-sugar diet-induced metabolic syndrome in rats[J]. Food Science, 2020, 41(1):112-120. (in Chinese)

DOI

[40]
MEYDANI M, HASAN S T. Dietary polyphenols and obesity[J]. Nutrients, 2010, 2(7):737-751.

DOI PMID

[41]
宿孝奇. 酮病奶牛氧化应激特征及原花青素对奶牛氧化应激的影响[D]. 博士学位论文. 南宁: 广西大学, 2015.

SU X Q. Characetristics of oxidative stress in cows with ketosis and the effect of adding procyanidins on oxidative stress in cows[D]. Ph.D.Thesis. Nanning: Guangxi University, 2015. (in Chinese)

[42]
唐双奇, 陆阳. 内源性大麻素-生物合成、信号转导及生物降解[J]. 中国药理学通报, 2013, 29(8):1037-1041.

TANG S Q, LU Y. Endocannabinoids-biosynthesis, signal transduction and biodegradation[J]. Chinese Pharmacological Bulletin, 2013, 29(8):1037-1041. (in Chinese)

[43]
MATTHEWS A T, ROSS M K. Oxyradical stress, endocannabinoids,and atherosclerosis[J]. Toxics, 2015, 3(4):481-498.

[44]
黄慧, 夏鑫, 周应军, 等. 不同提取方法的桑叶提取物对小鼠生长性能、抗氧化和免疫功能的作用研究[J]. 动物营养学报, 2022, 34(4):2702-2711.

DOI

HUANG H, XIA X, ZHOU Y J, et al. Effects of mulberry leaf extracts with different extraction methods on growth performance,antioxidant and immune function in mice[J]. Chinese Journal of Animal Nutrition, 2022, 34(4):2702-2711. (in Chinese)

[45]
GAO J, GUO Z W. Recent progress in the synthesis of GPIs and GPI-anchored proteins[J]. Scientia Sinica Chimica, 2013, 8:964-983.

[46]
秦正红, 乐卫东. 自噬:生物学与疾病[M]. 北京: 科学出版社, 2011.

QIN Z H, YUE W D. Autophagy:biology and disease[M]. Beijing: Science Press, 2011. (in Chinese)

[47]
MARTINS J D, LIBERAL J, SILVA A, et al. Autophagy and inflammasome interplay[J]. DNA and Cell Biology, 2015, 34(4):274-281.

DOI PMID

[48]
DERETIC V, LEVINE B. Autophagy balances inflammation in innate immunity[J]. Autophagy, 2018, 14(2):243-251.

DOI PMID

[49]
WREE A, EGUCHI A, MCGEOUGH M D, et al. NLRP 3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice[J]. Hepatology, 2014, 59(3):898-910.

DOI PMID

[50]
SANCHEZ-LOPEZ E, ZHONG Z Y, STUBELIUS A, et al. Choline uptake and metabolism modulate macrophage IL-1β and IL-18 production[J]. Cell Metabolism, 2019, 29(6):1350-1362.e7.

[51]
卢晓星, 张小强, 苗歆雨, 等. 原花青素对LPS/ATP诱导的NLRP3炎症小体激活及NF-κBp65磷酸化的抑制作用[J]. 南京医科大学学报, 2020, 40(8):1111-1118.

LU X X, ZHANG X Q, MIAO X Y, et al. Inhibitory effects of proanthocyanidin on LPS/ATP induced activation of NLRP3 inflammasome and phosphorylation of NF-κBp65[J]. Journal of Nanjing Medicial University, 2020, 40(8):1111-1118. (in Chinese)

[52]
李小丽, 王楷扬, 胡建辉, 等. 葡萄籽原花青素对CCl-4诱导小鼠氧化性肝损伤的保护作用及其机制研究[J]. 中国药房, 2016, 27(13):1752-1755.

LI X L, WANG K Y, HU J H, et al. Study on protective effect of grape seed proanthocyanidins against acute liver injury induced by CCl-4 in mice and its mechanism[J]. China Pharmacy, 2016, 27(13):1752-1755. (in Chinese)

[53]
杨文军, 牟春堂, 刘笑梅, 等. 饲粮中添加葡萄籽原花青素对羔羊生长性能和营养物质消化代谢的影响[J]. 动物营养学报, 2021, 33(6):3410-3420.

DOI

YANG W J, MU C T, LIU X M, et al. Effects of dietary supplementation of grape seed proanthocyanidins on growth performance and nutrient digestion and metabolism of lambs[J]. Chinese Journal of Animal Nutrition, 2021, 33(6):3410-3420. (in Chinese)

Outlines

/