RESEARCH PAPER

Effects of Diets with Different Lipid Sources on Growth Performance, Muscle Fatty Acid Composition, Serum Biochemical Indices, Intestinal Digestive Enzyme Activities, Intestinal Flora Composition and Lipid Metabolism of Koi Carp (Cyprinus carpio L.)

  • FANG Zhenzhen ,
  • REN Shun ,
  • SUN Xueliang , ** ,
  • SHI Hongyue ,
  • ZHAO Honghao ,
  • YANG Yuanyuan ,
  • CHEN Chengxun , **
Expand
  • Tianjin Key Laboratory of Aqua-Ecology and Aquaculture, College of Fisheries, Tianjin Agriculture University, Tianjin 300384, China
**SUN Xueliang, senior experimentalist, E-mail: ;
CHEN Chengxun, professor, E-mail:

* Contributed equally

Received date: 2024-01-30

  Online published: 2024-07-09

Abstract

This experiment was conducted to study the effects of diets with different lipid sources on growth performance, muscle fatty acid composition, serum biochemical indices, intestinal digestive enzyme activities, intestinal flora composition and lipid metabolism of koi carp (Cyprinus carpio L.). A total of 450 health koi carp with average body weight of (27.65±0.37) g were randomly divided into 5 groups with 3 replicates per group and 30 fish per replicate. Fish in 5 groups were fed isonitrogenous and isolipid experimental diets which prepare with fish oil (FO group), soybean oil (SO group), black soldier larvae oil (BO group), Tenebrio molitor oil (TO group) and maggot oil (MO group) as a single fat source in the basal diet, respectively. The experiment lasted for 8 weeks. The results showed as follows: 1) there were no significant differences in survival rate, weight gain rate, feed conversion ratio, condition factor, hepatosomatic index and viscerosomatic index among all groups (P>0.05). 2) The contents of saturated fatty acids and monounsaturated fatty acids in muscle of MO group were significantly higher than those of other groups (P<0.05), and the contents of polyunsaturated fatty acids, eicosapentaenoic acid and docosahexaenoic acid in muscle of FO group were significantly higher than those of other groups (P<0.05). 3) The foregut protease activity of FO and BO groups was significantly higher than that of SO and TO groups (P<0.05), and the midgut activity of FO group was significantly higher than that of SO, TO and MO groups (P<0.05). The foregut lipase activity of BO group was significantly higher than that of other groups (P<0.05), the midgut lipase activity of FO group was significantly higher than that of TO and MO groups (P<0.05), and the hindgut lipase activity of MO group was significantly higher than that of FO, SO and TO groups (P<0.05). The foregut amylase activity of BO group was significantly higher than that of other groups (P<0.05), and the midgut amylase activity of BO group was significantly higher than that of SO and FO groups (P<0.05). 4) The serum albumin content of TO group was significantly higher than that of FO and BO groups (P<0.05), the serum triglyceride content of FO, SO and MO groups was significantly higher than that of BO and TO groups (P<0.05), the serum total cholesterol and low-density lipoprotein contents of TO group were significantly higher than those of other groups (P<0.05), and the serum lysozyme content of TO and MO groups was significantly higher than that of other groups (P<0.05). 5) The Shannon index, Chao1 index and Ace index of SO and BO groups were significantly higher than those of other groups (P<0.05), and the Simpson index was significantly lower than that of other groups (P<0.05). The intestinal flora composition and richness of FO, BO and MO groups were similar. 6) The liver fat synthase (FAS) and lipoprotein esterase (LPL) activities of FO group were significantly higher than those of other groups (P<0.05). The liver FAS mRNA relative expression level of FO and MO groups was significantly higher than that of other groups (P<0.05), and the liver LPL mRNA relative expression level of MO group was significantly higher than that of other groups (P<0.05). In conclusion, diets adding insect oil (black soldier fly oil, Tenebrio molitor oil and maggot oil) has no significant effect on the fish growth, and adding black soldier fly oil and maggot oil can improve the intestinal digestive enzyme activity to a certain extent, and the intestinal flora composition and richness in fish oil are similar, can ensure normal lipid levels in fish and improve the body lipid metabolism enzyme activity.

Cite this article

FANG Zhenzhen , REN Shun , SUN Xueliang , SHI Hongyue , ZHAO Honghao , YANG Yuanyuan , CHEN Chengxun . Effects of Diets with Different Lipid Sources on Growth Performance, Muscle Fatty Acid Composition, Serum Biochemical Indices, Intestinal Digestive Enzyme Activities, Intestinal Flora Composition and Lipid Metabolism of Koi Carp (Cyprinus carpio L.)[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4562 -4575 . DOI: 10.12418/CJAN2024.392

鱼油是水产动物饲料的重要脂肪来源,富含n-3多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs),特别是二十碳五烯酸(C20∶5n-3,EPA)和二十二碳六烯酸(C22∶6n-3,DHA)等长链多不饱和脂肪酸。随着全球水产养殖的飞速发展,鱼油价格攀升,导致饲料成本上升。昆虫种类丰富,摄食简单,繁殖速度快,生长周期短,昆虫资源是一种可持续利用、有待开发的巨大生物资源。昆虫中脂肪含量丰富,富含淡水鱼类的必需脂肪酸,不饱和脂肪酸(unsaturated fatty acids,UFAs)(亚油酸和亚麻酸)含量也很高[1-2]。因此,昆虫脂肪是一种水产饲料新型脂肪源,可作为替代鱼油的潜在替代品,寻找新型的昆虫油替代鱼油已经成为当前研究的热点。
黑水虻(Hermetia illucens L.)也被称之为亮斑扁角水虻,为昆虫纲生物。黑水虻幼虫含有十分丰富的蛋白质,粗蛋白质含量可达45%~64%,粗脂肪含量在31%~40%,粗灰分含量在5%~16%[3]。黑水虻幼虫中由月桂酸成分领头的饱和脂肪酸(saturated fatty acids,SFAs)含量极高;虽然多不饱和脂肪酸含量比较低,但其中亚麻酸和亚油酸含量相对较高[4]。黄粉虫(Tenebrio molitor)为鞘翅目(Tenebrionidae)生物,在欧盟授权批准的2017/893号法规中,黄粉虫是具有可持续性价值的7种昆虫物种之一。黄粉虫的幼虫富含蛋白质和脂肪,粗蛋白质和粗脂肪含量分别为47%~60%和31%~43%(以干重为基础)。黄粉虫油含有十分丰富的不饱和脂肪酸,其在脂肪酸总量中的占比超过80%,并且其总脂肪酸中有超过1/3是必需脂肪酸。同时,黄粉虫富含维生素E和维生素C,是水产动物的优质油脂[5]。蝇蛆(Musca domestica)中粗蛋白质含量约为48%,粗脂肪含量为10%~23%。粗脂肪中不饱和脂肪酸含量高,在60%~80%,且以油酸和亚油酸为主[6]。同时,蝇蛆中富含矿物质、微量元素、抗菌肽、溶菌酶等免疫活性物质,将其添加在复合饲料中可以有效提高鱼类的抗病性能[7]
目前,关于黑水虻油、黄粉虫油、蝇蛆油在水产饲料和养殖业中的报道较少。因此,本试验旨在研究不同脂肪源对锦鲤生长性能、肌肉脂肪酸组成、血清生化指标、肠道消化酶活性、肠道菌群组成及脂质代谢影响,以期通过改善饲料营养,达到促进锦鲤生长、提高脂质代谢和抗病能力的目的,并期望在今后的水产饲料和养殖业中广泛应用昆虫资源,达到降低饲料成本的目的。此外,也为研发观赏鱼类功能性饲料提供重要参考。

1 材料与方法

1.1 试验设计和试验饲料

采用单因素设计,选取平均体重为(27.65±0.37) g的锦鲤450尾,随机分成5组,每组3个重复,每个重复30尾。基础饲料以鱼粉和豆粕为主要蛋白质源,以面粉为主要糖源,在基础饲料中分别添加鱼油(FO组)、豆油(SO组)、黑水虻油(BO组)、黄粉虫油(TO组)、蝇蛆油(MO组),配制5种不同类型的等氮等脂试验饲料。使用强力粉碎机对原料进行粉碎,过40目筛,用台式制粒机将混合均匀的饲料加工制成条状,成型后制作沉性颗粒饲料,于烘箱中40~50 ℃烘干,最后冷却风干密封,室温保存。试验期8周。试验饲料组成及营养水平见表1,试验饲料油脂的脂肪酸组成见表2
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis)%

项目
Items
组别 Groups
FO SO BO TO MO
原料Ingredients
褐鱼粉 Brown fish meal 18.00 18.00 18.00 18.00 18.00
虾粉 Shrimp meal 5.00 5.00 5.00 5.00 5.00
螺旋藻粉 Spirulina powder 5.00 5.00 5.00 5.00 5.00
小麦麸 Wheat bran 6.90 6.90 6.90 6.90 6.90
豆粕 Soybean meal 17.00 17.00 17.00 17.00 17.00
面粉 Flour 10.00 10.00 10.00 10.00 10.00
谷朊粉 Gluten meal 10.00 10.00 10.00 10.00 10.00
菜籽粕 Rapeseed meal 8.00 8.00 8.00 8.00 8.00
玉米 Corn 8.00 8.00 8.00 8.00 8.00
玉米淀粉 Corn starch 2.00 2.00 2.00 2.00 2.00
预混料 Premix1) 1.00 1.00 1.00 1.00 1.00
胆碱 Choline 0.27 0.27 0.27 0.27 0.27
磷酸二氢钙 CaH2PO4 0.80 0.80 0.80 0.80 0.80
乙氧基喹啉 Ethoxyquinoline 0.03 0.03 0.03 0.03 0.03
鱼油 Fish oil 8.00
豆油 Soybean oil 8.00
黑水虻油 Black soldier fly oil 8.00
黄粉虫油 Tenebrio molitor oil 8.00
蝇蛆油 Maggot oil 8.00
合计 Total 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels2)
粗蛋白质 CP 41.24 41.53 41.61 41.17 41.84
粗脂肪 EE 12.70 12.47 12.53 12.92 12.68
粗灰分 Ash 7.38 7.39 7.42 7.2 7.35
水分 Moisture 6.33 5.86 6.50 5.85 5.49

1)预混料为每千克饲料提供 The premix provided the following per kg of diets:Fe 150 mg,Zn 30 mg,Mn 13 mg,Cu 3 mg,Co 0.1 mg,I 0.6 mg,Se 0.15 mg,VC 100 mg,VB1 3 mg,VB2 10 mg,VB6 12 mg,泛酸钙 calcium pantothenate 30 mg,烟酸 nicotinic acid 30 mg,生物素 biotin 0.1 mg,叶酸 folic acid 2 mg,VB12 0.01 mg,肌醇 inositol 400 mg,氯化胆碱 choline chloride 1 000 mg,VA 2 000 IU,VD3 1 000 IU,VE 60 mg,VK 6 mg。

2)营养水平为实测值。Nutrient levels were measured values.

表2 试验饲料油脂的脂肪酸组成

Table 2 Fatty acid composition of oil of experimental diets%

项目
Items
组别 Groups
FO SO BO TO MO
C10∶0 0.74
C12∶0 0.12 22.80 0.75 0.12
C13∶0 0.73
C14∶0 6.15 3.62 2.92 1.93
C15∶0 0.94 0.32 0.27
C16∶0 19.60 10.80 17.40 17.80 22.80
C17∶0 1.76 0.24
C18∶0 4.86 3.66 2.02 2.84 3.86
C20∶0 0.19
C21∶0 2.38
C24∶0 9.22 0.59
SFAs 45.29 14.46 47.14 24.31 29.57
C14∶1 0.17 0.35 0.29
C16∶1 6.74 4.00 2.04 12.40
C17∶1 1.32 0.29
C18∶1 15.90 25.00 26.80 40.40 29.40
C20∶1 1.62 6.90 1.22 2.94
C24∶1n-9 0.81
MUFAs 26.56 31.90 31.44 43.66 45.03
C18∶2 6.23 53.40 18.40 32.00 24.60
C20∶2 0.39
C18∶3n-3 3.20 2.66
C20∶3n-3 0.93 0.66
C22∶6n-3 13.40
n-3 PUFAs 17.53 2.66 0.66
C18∶3n-6 0.58
C20∶3n-6 0.39 0.36
C20∶4n-6 3.48
n-6 PUFAs 4.06 0.39 0.36
PUFAs 28.21 53.79 21.42 32.00 25.26
n-3/n-6 PUFAs 4.32 7.41

SFAs:饱和脂肪防酸 saturated fatty acids;MUFAs:单不饱和脂肪酸 monounsaturated fatty acids;PUFAs:多不饱和脂肪酸 polyunsaturated fatty acids。

1.2 养殖管理

试验鱼驯化7 d后,选取体重(27.65±0.37) g、体长(9.79±0.09) cm,规格相近、健康无伤的红白锦鲤幼鱼450尾,随机分为5组,共计15个养殖缸(70 cm×40 cm×60 cm),循环水养殖。饲养8周,每日饱食投喂3次(09:00、13:00和17:00)。饲养过程中水温为(25.0±1.1) ℃,pH为7.8±0.2,氨氮浓度为(0.1±0.1) mg/L,亚硝酸盐浓度为(0.15±0.05) mg/L,溶氧浓度为(4±1) mg/L。

1.3 样本采集

饲养试验结束后,鱼饥饿24 h后,麻醉(MS-222,200 mg/L)后,测量所有试验鱼的体长、体重和全长等指标,并计算生长和形体指标;每缸取10尾鱼,用1 mL无菌注射器尾静脉抽血,将抽取的血液4 ℃静置24 h后,4 000 r/min离心10 min,取血清,用于血清生化指标的测定;将取血后的鱼解剖,分离出肌肉、肠道(前肠、中肠、后肠)和肝脏,在-80 ℃条件下冷藏,用于肌肉脂肪酸组成、肠道消化酶活性和肝脏脂质代谢酶活性的测定;每缸取6尾鱼,无菌环境下解剖,通过无菌手术刀适量刮取锦鲤肠道内容物(大概200 mg),置于2 mL的无菌冻存管里并混合均匀,之后将锦鲤肝脏通过无菌剪刀取出(约2 g),置于2 mL的无菌冻存管,液氮速冻后于-80 ℃保存,分别用于肠道菌群的测定和肝脏中脂肪合成和分解相关基因RNA的提取。

1.4 指标测定

1.4.1 饲料营养水平

粗蛋白质含量采用凯氏定氮法(GB/T 6432—1994)进行测定,粗脂肪含量采用乙醚抽提法(GB/T 6433—1994)进行测定,粗灰分含量采用550 ℃灼烧法(GB/T 6438—1992)进行测定,水分含量采用105 ℃烘箱干燥法(GB/T 6435—1986)进行测定。

1.4.2 生长性能

生长和形体指标计算公式如下:
存活率(survival rate,SR,%)=100×Ct/C0;
增重率(weight gain rate,WGR,%)=100×(St-S0)/S0;
饲料系数(feed conversion ratio,FCR)=Sf/(St-S0);
肥满度(condition factor,CF,g/cm3)=100×S/L3;
肝体比(hepatosomatic index,HSI,%)=100×Sh/S;
脏体比(viscerosomatic index,VSI,%)=100×Sv/S
式中:Ct为终末尾数;C0为初始尾数;St为终末体质量(g);S0为初始体质量(g);Sf为摄入饲料量(g);Sh为鱼肝脏重(g);Sv为鱼内脏重(g);S为鱼体质量(g);L为鱼体长(cm)。

1.4.3 油脂和肌肉脂肪酸组成

将油脂和肌肉冷冻干燥48 h,在氯仿-甲醇溶液中抽提脂肪进行前处理后,送到天津质谱医学检测实验室有限公司,使用气相-质谱仪(GCMS-QP2010Plus,日本SHIMADZU公司)进行脂肪酸的甲酯化,用面积归一法求得各类脂肪酸的相对百分含量。

1.4.4 肠道消化酶活性、肝脏脂质代谢酶活性和血清生化指标

肠道蛋白酶、脂肪酶、淀粉酶活性,肝脏脂肪合成酶(FAS)、脂蛋白酯酶(LPL)、苹果酸脱氢酶(MDH)活性,血清白蛋白(ALB)、甘油三酯(TG)、总胆固醇(TC)、高密度脂蛋白(HDL)、低密度脂蛋白(LDL)、溶菌酶(LZM)含量采用酶联免疫吸附测定(ELISA)试剂盒(南京建成生物工程研究所有限公司)测定,测定方法均参照说明书进行。

1.4.5 肠道菌群组成

委托上海美吉生物医药科技有限公司利用Illumina MiSeq测序平台,对肠道内容物样品进行DNA提取和PCR扩增,通过16S RNA高通量测序,对肠道菌群进行分类鉴定。

1.4.6 肝脏脂肪合成和分解相关基因表达

根据GenBank中鲤的全基因组设计目的基因FASLPL和内参基因β-肌动蛋白(β-actin)的引物后,送至上海生工生物工程有限公司合成,引物序列见表3。利用Trizol试剂法提取肝脏总RNA,参照反转录试剂盒(Prime Script RT Master Mix,TaKaRa,日本)说明将RNA反转录为cDNA。在荧光定量PCR仪(QuantStudioTM 1 plus,赛默飞世尔科技公司,美国)上进行实时荧光定量PCR测定,反应总体系为10μL,包括TB Green Premix Ex Taq(TaKaRa,日本)5 μL,正反引物(10 μmol/L)各0.2 μL,无核酶焦碳酸二乙酯(DEPC)水4.1 μL和cDNA 0.5 μL。PCR反应程序如下:95 ℃、10 min,95 ℃、15 s,56 ℃、60 s,40个循环;70 ℃、20 s。目的基因mRNA相对表达量采用2-△△Ct法计算。
表3 引物序列

Table 3 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
引物长度
Primer length/bp
脂肪合成酶
FAS
F:GAGTTTTCAGGGCGAGAC
R:CCTCCACTTGGTTTCTCTC
719
脂蛋白酯酶
LPL
F:CATCTGTTGGGTTACAGT
R:CTTGTTGCATCGTTTCTT
491
β-肌动蛋白
β-actin
F:CGTGATGGACTCTGGTGA
R:ACAGTGTTGGCATACAGGT
478

1.5 数据分析

通过Statistica 17.0软件对试验数据进行分析处理,所得结果先进行单因素方差分析(one-way ANOVA),然后通过LSD和Duncan氏检验法进行组间差异分析。试验数据均以平均值±标准误表示,P<0.05表示差异显著。

2 结果与分析

2.1 不同脂肪源饲料对锦鲤生长性能的影响

表4可知,各组之间存活率、增重率、饲料系数、肥满度、肝体比及脏体比均无显著差异(P>0.05)。
表4 不同脂肪源饲料对锦鲤生长性能的影响

Table 4 Effects of diets with different lipid sources on growth performance of koi carp

项目
Items
组别 Groups
FO SO BO TO MO
存活率 SR/% 97.77 98.88 100 98.88 98.88
增重率 WGR/% 160.98±12.01 181.19±19.64 145.12±11.07 144.59±9.46 147.87±14.06
饲料系数 FCR 2.18±0.08 2.24±0.09 2.48±0.13 2.58±0.10 2.77±0.15
肥满度 CF/(g/cm3) 3.24±0.27 2.99±0.23 3.49±0.41 3.39±0.15 3.11±0.30
肝体比 HIS/% 2.10±0.21 2.20±0.16 1.98±0.15 2.10±0.19 2.05±0.13
脏体比 VSI/% 8.30±0.53 8.75±0.48 7.82±0.58 8.50±0.70 8.87±0.54

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 不同脂肪源饲料对锦鲤肌肉脂肪酸组成的影响

表5可知,MO组的肌肉饱和脂肪酸含量显著高于其他各组(P<0.05),且BO组的肌肉饱和脂肪酸含量显著高于FO、SO和TO组(P<0.05)。MO组的肌肉单不饱和脂肪酸含量显著高于其他各组(P<0.05)。FO组的肌肉多不饱和脂肪酸含量显著高于其他各组(P<0.05),且SO和MO组的肌肉多不饱和脂肪酸含量显著高于BO和TO组(P<0.05)。FO组的肌肉EPA和DHA含量显著高于其他各组(P<0.05),且BO和MO组的肌肉EPA和DHA含量显著高于SO和TO组(P<0.05)。
表5 不同脂肪源饲料对锦鲤肌肉脂肪酸组成的影响

Table 5 Effects of diets with different lipid sources on muscle fatty acid composition of koi carp%

项目
Items
组别 Groups
FO SO BO TO MO
C12∶0 0.040±0.002a 0.002±0.000b 0.002±0.000b
C14∶0 0.023±0.003a 0.012±0.002b 0.022±0.003a 0.010±0.001b 0.022±0.004a
C15∶0 0.003±0.000a 0.001±0.000b 0.002±0.001ab 0.002±0.000ab 0.003±0.000a
C16∶0 0.13±0.01c 0.17±0.01b 0.18±0.00b 0.16±0.01b 0.27±0.02a
C18∶0 0.04±0.00d 0.06±0.00b 0.05±0.00c 0.05±0.00c 0.07±0.00a
SFAs 0.23±0.02c 0.24±0.02c 0.29±0.01b 0.23±0.01c 0.38±0.02a
C16∶1 0.03±0.00b 0.02±0.00c 0.03±0.00b 0.02±0.00c 0.07±0.00a
C18∶1 0.11±0.01d 0.24±0.01b 0.20±0.01c 0.22±0.02bc 0.29±0.01a
C20∶1 0.09±0.01a 0.01±0.00b 0.01±0.00b 0.01±0.00b 0.01±0.00b
MUFAs 0.24±0.00b 0.26±0.03b 0.24±0.02b 0.25±0.01b 0.38±0.01a
C18∶2 0.78±0.01a 0.33±0.01b 0.16±0.01d 0.17±0.00d 0.25±0.00c
C20∶2 0.010±0.001a 0.010±0.001a 0.010±0.001a 0.003±0.000b
C22∶2 0.003±0.000a 0.003±0.000a 0.002±0.000b
C20∶5n-3(EPA) 0.05±0.00a 0.02±0.00d 0.03±0.00c 0.02±0.00d 0.04±0.00b
C22∶6n-3(DHA) 0.15±0.01a 0.07±0.00c 0.11±0.01b 0.08±0.00c 0.11±0.01b
C20∶3n-3 0.002±0.000 0.001±0.000
C18∶3n-3 0.01±0.00c 0.03±0.00a 0.01±0.00c 0.01±0.00c 0.02±0.00b
n-3 PUFAs 0.20±0.01a 0.13±0.00d 0.14±0.00c 0.11±0.00e 0.18±0.00b
C20∶3n-6 0.01±0.00b 0.01±0.00b 0.02±0.00a 0.01±0.00b 0.02±0.00a
C18∶3n-6 0.002±0.000d 0.040±0.001a 0.004±0.000c 0.003±0.000c 0.010±0.000b
C20∶4n-6 0.01±0.00b 0.01±0.00b 0.02±0.00a 0.01±0.00b 0.02±0.00a
n-6 PUFAs 0.02±0.00d 0.07±0.00a 0.04±0.00b 0.03±0.00c 0.04±0.00b
PUFAs 1.02±0.00a 0.56±0.00b 0.35±0.00c 0.32±0.00c 0.48±0.00b
n-3/n-6 PUFAs 10.01±0.01a 1.99±0.01e 3.22±0.01d 3.78±0.32c 4.51±0.01b

SFAs:饱和脂肪酸 saturated fatty acids;MUFAs:单不饱和脂肪酸 monounsaturated fatty acids;PUFAs:多不饱和脂肪酸总量total polyunsaturated fatty acids;EPA:二十碳五烯酸 eicosapentaenoic acid;DHA:二十二碳六烯酸 docosahexaenoic acid。

2.3 不同脂肪源饲料对锦鲤肠道消化酶活性的影响

表6可知,FO和BO组的前肠蛋白酶活性显著高于SO和TO组(P<0.05);FO组的中肠蛋白酶活性最高,与BO组差异不显著(P>0.05),显著高于SO、TO和MO组(P<0.05);各组之间后肠蛋白酶活性差异不显著(P>0.05)。
表6 不同脂肪源饲料对锦鲤肠道消化酶活性的影响

Table 6 Effects of diets with different lipid sources on intestinal digestive enzyme activities of koi carpU/g prot

项目
Items
组别 Groups
FO SO BO TO MO


蛋白酶
Protease
前肠 Foregut 485.93±98.26a 232.20±14.87b 482.01±20.53a 249.76±18.05b 392.17±24.98ab
中肠 Midgut 2 266.7±188.6a 1 206.7±117.9cd 1 955.7±110.5ab 623.9±152.9d 1 461.0±354.9bc
后肠 Hindgut 701.64±168.50 249.22±54.81 696.86±138.20 458.59±193.60 603.53±206.30


脂肪酶
Lipase
前肠 Foregut 2.92±0.62b 2.77±0.10b 5.57±1.13a 1.83±0.90b 2.75±0.75b
中肠 Midgut 32.73±5.75a 18.91±2.55ab 25.02±5.52ab 12.60±4.56b 13.67±0.78b
后肠 Hindgut 2.66±0.77b 2.92±1.15b 3.66±0.74ab 2.01±0.47b 6.46±1.71a


淀粉酶
Amylase
前肠 Foregut 0.12±0.01b 0.12±0.00b 0.24±0.00a 0.14±0.00b 0.15±0.01b
中肠 Midgut 0.74±0.10b 0.71±0.02b 1.18±0.08a 0.91±0.12ab 0.91±0.09ab
后肠 Hindgut 0.29±0.03 0.61±0.25 0.79±0.05 0.30±0.19 0.64±0.21
BO组的前肠脂肪酶活性显著高于其他各组(P<0.05);FO组的中肠脂肪酶活性最高,与SO和BO组差异不显著(P>0.05),显著高于TO和MO组(P<0.05);MO组的后肠脂肪酶活性最高,与BO组差异不显著(P>0.05),显著高于FO、SO和TO组(P<0.05)。
BO组的前肠淀粉酶活性显著高于其他各组(P<0.05);BO组的中肠淀粉酶活性最高,与TO和MO组差异不显著(P>0.05),显著高于SO和FO组(P<0.05);各组之间后肠淀粉酶活性差异不显著(P>0.05)。

2.4 不同脂肪源饲料对锦鲤血清生化指标的影响

表7可知,TO组的血清ALB含量最高,与SO和MO组差异不显著(P>0.05),显著高于FO和BO组(P<0.05);FO、SO和MO组的血清TG含量显著高于BO和TO组(P<0.05);TO组的血清TC和LDL含量显著高于其他各组(P<0.05);TO和MO组的血清LZM含量显著高于其他各组(P<0.05);各组之间血清HDL含量无显著差异(P>0.05)。
表7 不同脂肪源饲料对锦鲤血清生化指标的影响

Table 7 Effects of diets with different lipid sources on serum biochemical indices of koi carpmmol/L

项目
Items
组别 Groups
FO SO BO TO MO
白蛋白 ALB 2.50±0.11b 2.79±0.16ab 2.57±0.10b 3.18±0.28a 2.80±0.08ab
甘油三酯 TG 0.21±0.06a 0.25±0.02a 0.04±0.04b 0.03±0.03b 0.21±0.02a
总胆固醇 TC 0.94±0.06b 0.88±0.04b 1.28±0.36b 4.55±1.54a 0.79±0.05b
高密度脂蛋白 HDL 1.29±0.32 0.92±0.23 1.19±0.35 0.92±0.27 0.97±0.20
低密度脂蛋白 LDL 0.48±0.03b 0.37±0.05b 0.54±0.06b 1.77±0.50a 0.90±0.29b
溶菌酶 LZM 14.04±5.95b 8.19±3.05b 8.89±3.59b 34.18±1.97a 34.41±4.25a

2.5 不同脂肪源饲料对锦鲤肠道菌群组成的影响

2.5.1 样本信息测序结果统计
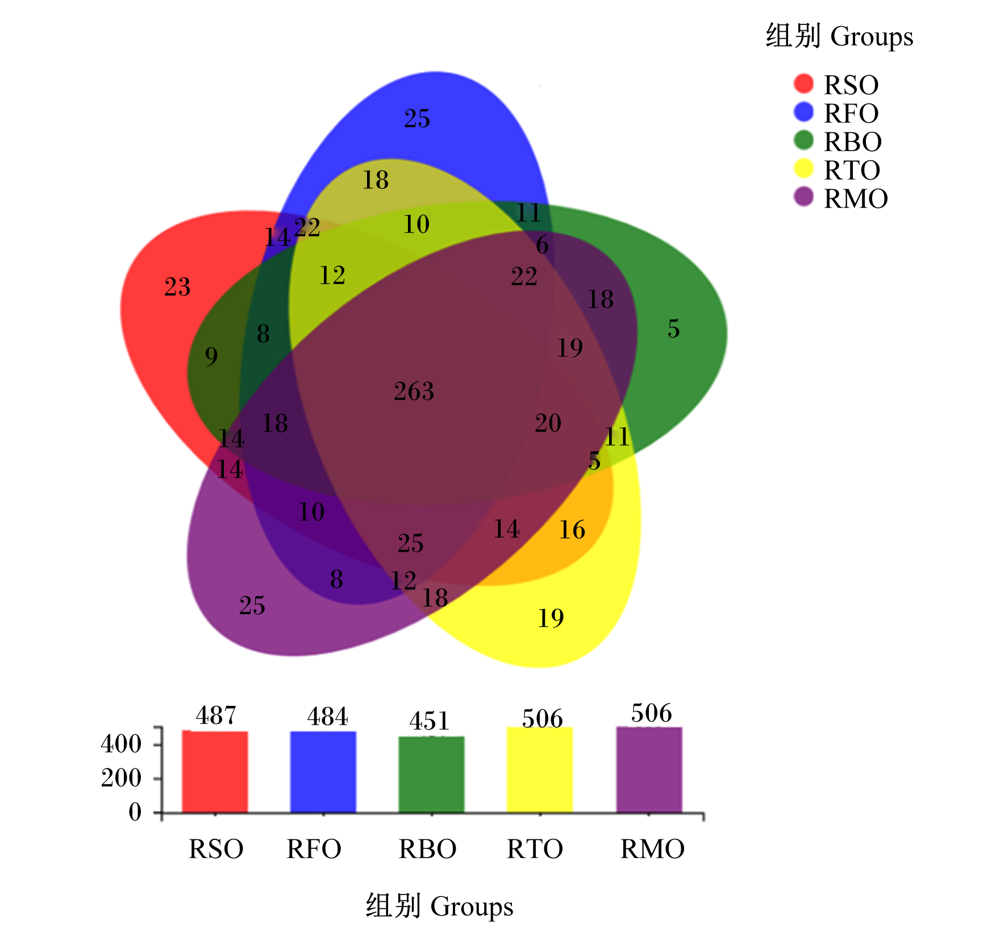
图1所示,FO、SO、BO、TO和MO组的肠道菌群可操作分类单元(OTU)分别为487、484、451、506和506个。FO、SO、BO、TO和MO组共有263个OTU,其中FO组独有25个OTU,SO组独有23个OTU,BO组独有5个OTU,TO组独有19个OTU,MO组独有25个OTU。通过对比可以看出,TO和MO组的微生物数量最多,FO和SO组次之,BO组最少。
图1 OTU分布Venn图

Fig.1 Venn diagram of OTU distribution

2.5.2 肠道菌群多样性

表8可知,各组的覆盖率均为99%,具有较高真实性。SO组的Sobs指数显著高于其他各组(P<0.05);SO和BO组的Shannon指数、Chao1指数和Ace指数显著高于其他各组(P<0.05),Simpson指数显著低于其他各组(P<0.05)。由此可见,SO和BO组的肠道菌群多样性增加。
表8 不同脂肪源饲料对锦鲤肠道菌群多样性的影响

Table 8 Effects of diets with different lipid sources on intestinal flora diversity of koi carp

项目
Items
组别 Groups
FO SO BO TO MO
物种多样性 Species diversity
Sobs指数 Sobs index 423.33±7.02b 441.33±5.13a 382.00±7.00cd 372.00±8.89d 387.00±5.57c
Shannon指数
Shannon index
3.11±0.05c 3.73±0.27a 3.45±0.07b 1.68±0.07e 2.24±0.07d
Simpson指数
Simpson index
0.15±0.04c 0.06±0.01d 0.08±0.01d 0.53±0.06a 0.41±0.04b
覆盖率 Coverage rate 0.99 0.99 0.99 0.99 0.99
物种丰富度 Species richness
Chao1指数 Chao1 index 491.59±21.62b 514.52±14.11a 533.37±17.06a 458.46±20.85c 474.78±23.11b
Ace指数 Ace index 492.25±7.11b 518.34±20.22a 512.94±17.56a 465.21±4.71d 484.65±4.97cd

2.5.3 肠道菌群组成

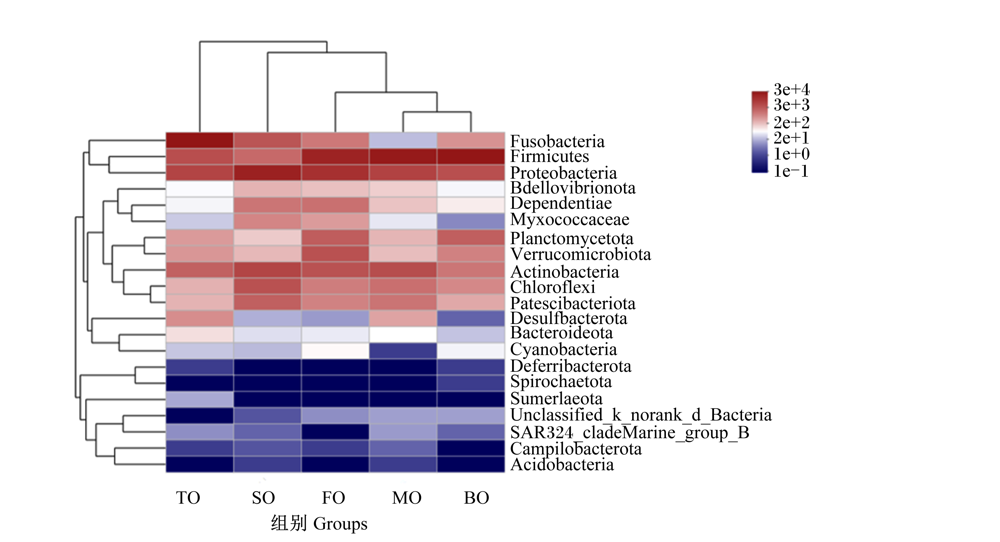
通过热图统计各组之间肠道菌群的生物丰富度,通过柱图、热图等一系列可视化方法进行直观研究试验各组的肠道菌群组成,并且通过各组之间的聚类树和物种聚类树,可以看出亲缘性。如图2所示,FO、SO、BO、TO和MO组群落组成主要由梭杆菌门(Fusobacteria)、厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)、浮霉菌门(Planctomyces)、疣微菌门(Verrucomicrobiota)、放线菌门(Actinobacteria)、绿弯菌门(Chloroflexi)、巴士菌门(Patescibacteriota)构成,并且厚壁菌门、放线菌门、变形菌门和梭杆菌门属于优势菌门。FO、BO和MO组肠道菌群组成和丰富度最为相似。
图2 肠道菌群组成热图

Fusobacteria:梭杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Bdellovibrionota:蛭弧菌门;Myxococcaceae:黏液球菌门;Planctomycetota:浮霉菌门;Verrucomicrobiota:疣微菌门;Actinobacteria:放线菌门;Chloroflexi:绿弯菌门;Patescibacteriota:巴士菌门;Desulfbacterota:脱硫杆菌门;Bacteroideota:拟杆菌门;Cyanobacteria:蓝细菌门;Deferribacterota:脱铁杆菌门;Spirochaetota:螺旋体门;Campilobacterota:弯曲菌属;Acidobacteria:酸性细菌门。

Fig.2 Heatmap of intestinal flora composition

2.6 不同脂肪源饲料对锦鲤肝脏脂质代谢酶活性的影响

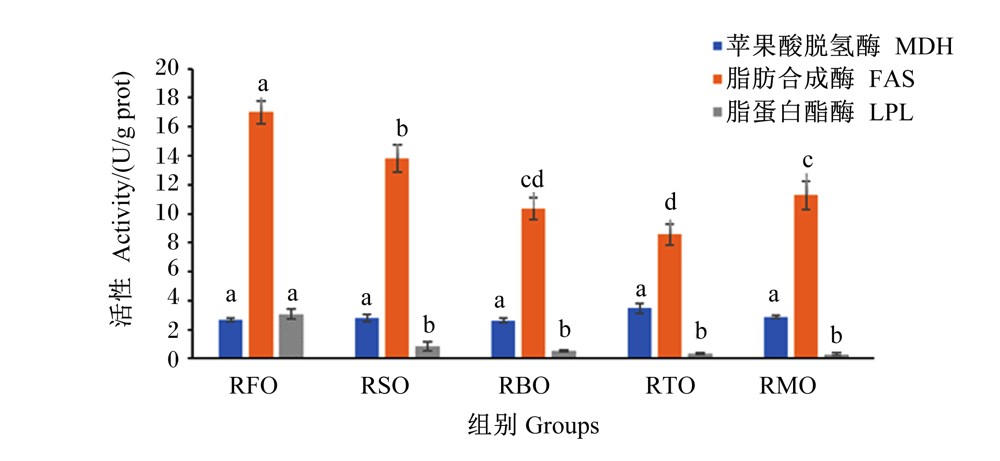
图3所示,FO组的肝脏FAS和LPL活性均为最高,显著高于其他各组(P<0.05);SO组的肝脏FAS活性显著高于BO、TO和MO组(P<0.05)。各组之间肝脏MDH活性无显著差异(P>0.05)。
图3 不同脂肪源饲料对锦鲤肝脏脂质代谢酶活性的影响

Fig.3 Effects of diets with different lipid sources on liver lipid metabolism enzyme activity of koi carp

2.7 不同脂肪源饲料对锦鲤肝脏脂肪合成和分解相关基因表达的影响

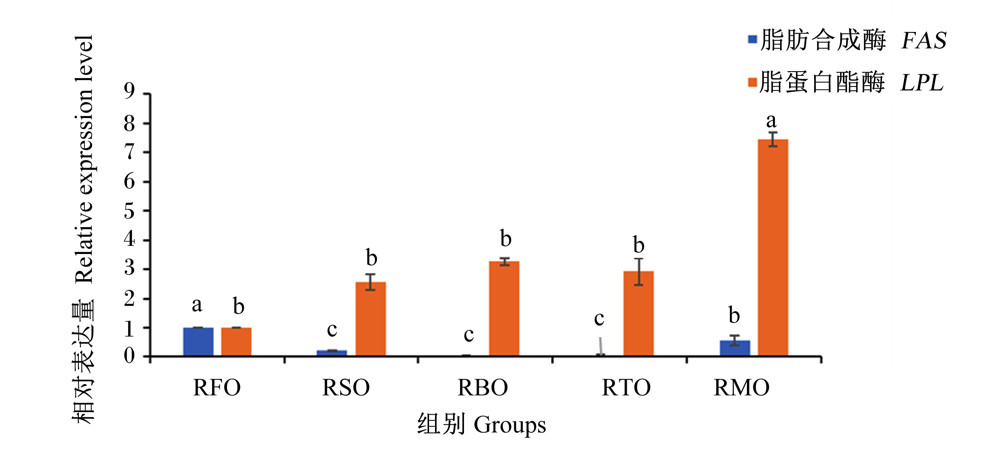
图4所示,FO组的肝脏FAS mRNA相对表达量显著高于其他各组(P<0.05),MO组的肝脏FAS mRNA相对表达量显著高于SO、BO和TO组(P<0.05);MO组的肝脏LPL mRNA相对表达量显著高于其他各组(P<0.05)。
图4 不同脂肪源饲料对锦鲤肝脏脂肪合成和分解相关基因表达的影响

Fig.4 Effects of diets with different lipid sources on expression of gene related to liver fat synthesis and decomposition in liver of koi carp

3 讨论

3.1 不同脂肪源饲料对锦鲤生长性能的影响

饲料中的脂肪能够提供鱼类生长及繁殖的主要能量。谢醒达[8]研究显示,不同脂肪源(鱼油、黑水虻油、蚕蛹油、豆油、藻油)完全替代鱼油对泰国斗鱼的生长性能未产生显著影响。水产动物的营养和健康状况可以由肥满度、脏体比和肝体比等形体指标反映。花鲈生长性能和肠道健康研究中发现,脂肪源对鱼体的饲料效率、摄食率、存活率、肝体比、腹脂率以及全鱼体组成等均无显著影响[9]。本试验也得到了类似结果,各组之间存活率、增重率、饲料系数、肥满度、肝体比及脏体比均无显著差异,说明黑水虻油、黄粉虫油、蝇蛆油和豆油可以100%替代锦鲤配合饲料中的鱼油。

3.2 不同脂肪源饲料对锦鲤肌肉脂肪酸组成的影响

水产动物对脂肪的需求实际上就是对脂肪酸的需求。由于不同脂肪源的脂肪酸组成有所不同,因此提高水产动物的生长速率、抗病力,从而减少养殖的成本,就要选对脂肪源。肌肉在水产动物生命活动中发挥关键作用,其脂肪酸含量会因为饲料中脂肪酸组成变化而出现一定改变。研究证实,饲料中脂肪酸的组成能够反映鱼类脂肪酸的组成[10]。本试验发现,各组锦鲤肌肉中C16∶0和C18∶0含量丰富,是鱼类主要的能量来源。n-3和n-6系列脂肪酸在淡水鱼类生长发育中作用显著,一些鱼类可以把C18∶2n-6和C18∶3n-3等转化为长链的n-6、n-3系列脂肪酸[11]。本试验发现,比较肌肉中C18∶3n-6的含量,SO组含量最高,其次为MO、BO和TO组,FO组最低。因此能够证明鱼体肌肉中沉积C18∶3n-6的情况会受到饲料中脂肪酸组成不同的影响。本试验还发现,不同脂肪源饲料组的DHA含量高于EPA含量,原因可能是锦鲤对DHA选择性保留能力要大于EPA。这与Sargent等[12]研究的鱼类对DHA的利用能力比EPA更强的结果一致。

3.3 不同脂肪源饲料对锦鲤肠道消化酶活性的影响

很多研究表明,不同脂肪源作为水产动物饲料的营养物质会对鱼体消化酶活性产生影响,其活性是衡量鱼类消化吸收饲料中营养成分能力的指标[13]。从本试验肠道淀粉酶活性结果可知,BO组的锦鲤前肠、中肠淀粉酶活性最高,且其他各组无显著差异。这可能是因为这4组(SO、BO、TO和MO组)饲料中的n-3多不饱和脂肪酸总量含量比较低。本试验发现,FO组的锦鲤中肠脂肪酶活性最高,且与SO和BO组差异不显著,显著高于TO和MO组。脂肪酶活性低是由于锦鲤分解脂肪的能力下降,脂肪过多在肠道积累,原因可能是TO和MO组饲料中C16∶0和C18∶0含量较高。本试验还发现,FO和BO组锦鲤前肠、中肠蛋白酶活性显著高于SO和TO组,说明这2组对蛋白质的吸收较好,能够防止肠黏膜萎缩和维持肠黏膜的正常结构和功能。

3.4 不同脂肪源饲料对锦鲤肠道菌群组成的影响

肠道内栖息着有利于机体健康生长、消化吸收、抵抗疾病的微生物[14-15]。Alpha多样性是一个可以反映物种多样性(Sobs指数、Shannon指数和Simpson指数)和物种丰富度(Chao1指数、Ace指数和OTU数目)的综合指标。饲料中的脂肪源能够对肠道微生物组成情况以及多样性产生影响,而且肠道微生物在脂质代谢过程中也发挥一定作用。本研究发现,TO和MO组的微生物数量最多,FO和SO组次之,BO组最少;而SO和BO组的肠道菌群多样性增加。
本试验中,厚壁菌门、放线菌门、变形菌门和梭杆菌门属于优势菌门。这与兰鲲鹏等[16]研究结果一致。同时有研究指出,厚壁菌门有助于膳食纤维的降解,也是肠道炎症的主要表现之一[17]。本研究中,鱼油、蝇蛆油和黑水虻油有益于厚壁菌门的生长,豆油有益于变形菌门的生长,黄粉虫油有益于梭杆菌门的生长。这说明脂肪源种类是决定优势菌群的主要因素,而BO和MO组与FO组微生物组成最为相似。本试验中,SO和BO组的肠道菌群多样性增加,BO和MO组的肠道菌群组成与FO组相似。原因可能是SO、BO和MO组饲料中富含EPA和DHA等多不饱和脂肪酸,有助于肠道微生物的生存,且变形菌门作为优势菌门,可以帮助n-3多不饱和脂肪酸分解并利用,且在鱼类生长、消化吸收和脂质代谢等方面起了重要的作用。

3.5 不同脂肪源饲料对锦鲤血清生化指标的影响

脂肪除了为水产动物提供必需脂肪酸、脂溶性维生素、胆固醇等营养物质,也对水产动物的生长和发育的稳定性起着重要作用。水产动物血脂水平能够用于判断全身脂质代谢情况。本试验中,TO组的血清TC含量显著高于其他各组,且其他各组之间无显著差异。这说明添加鱼油、豆油和虫油(黑水虻油和蝇蛆油)对水产动物的心血管疾病有一定防治作用。血清TG含量的增加和鱼类脂肪肝之间具有密切关系。本试验中,FO、SO和MO组的血清TG含量显著高于BO和TO组,可能是因为BO和TO组饲料中含有n-3多不饱和脂肪酸,阻碍TG分泌到机体脂蛋白和血液中,从而降低血清TG含量。这也说明与其他脂肪源相比,虫油(黑水虻油)能够防止脂肪肝的形成。HDL负责将机体中的胆固醇运输到肝脏中,以此使血液中过量胆固醇被代谢,抑制血管炎症,阻碍血管内斑块形成,降低心血管疾病发生的危险[18]。本试验中,各组之间血清HDL含量无显著差异。根据上述结果,说明锦鲤的脂肪代谢不会受到脂肪源不同的影响。脂类在体内分解转运和肝脏脂肪代谢情况能够通过LDL含量进行判断。本试验发现,TO组的血清LDL含量显著高于其他各组,且其他各组之间无显著差异。这表明长时间以黄粉虫油为脂肪源对锦鲤肝脏可能有一定程度的损伤,鱼油、豆油和虫油(黑水虻油和蝇蛆油)对鱼类肝脏有一定的保护作用,能促使无氧代谢水平减小,为有氧代谢的正常展开提供保障。

3.6 不同脂肪源饲料对锦鲤脂质代谢的影响

水产动物进行脂质代谢的主要场所是肝脏。MDH、FAS和LPL在动物机体脂质代谢过程中发挥着非常重要的作用。本试验发现,各组之间肝脏MDH活性无显著差异。这可能是与虫油(黑水虻油、黄粉虫油和蝇蛆油)替代造成锦鲤肝脏中脂肪堆积,抑制FAS活性。很多研究证实,不饱和脂肪酸亚油酸对FAS活性的抑制作用很强[19]。此外,也有试验表明多不饱和脂肪酸FAS活性也有抑制作用,且n-3多不饱和脂肪酸比n-6多不饱和脂肪酸抑制作用强[20]。本试验结果表明,FO组的肝脏FAS活性最高,显著高于其余他各组。原因可能是由于SO、BO、TO和MO组饲料中不饱和脂肪酸亚油酸含量较高,FO组饲料中亚油酸含量较低,所以添加豆油和虫油(黑水虻油、黄粉虫油和蝇蛆油)的试验组中肝脏FAS活性受到抑制,而添加鱼油的试验组中肝脏FAS活性则较高。LPL是水产动物脂肪酸分解关键的酶类,可水解脂蛋白并释放游离脂肪酸以供机体贮存和氧化[21]。目前许多报道表明,由于养殖动物品种有所差异,从而导致水产动物肝脏LPL活性受到的影响也不同[22]。本试验中,FO组的肝脏LPL活性最高,BO组次之,其他各组之间无显著差异。这说明添加虫油(黑水虻油)可降低患脂肪肝的风险,有助于鱼类机体健康。
FAS和LPL是水产动物脂肪代谢过程中的关键酶。FAS活性的高低直接影响着水产动物脂质生成和沉积,是脂肪酸合成过程中的重要酶类。本试验结果显示,FO组的肝脏FAS mRNA相对表达量显著高于其他各组,MO组次之,SO、BO和TO组之间无显著差异。刘燕等[23]采用不同脂肪源饲料对津新鲤进行饲养,结果显示其对肝胰脏LPL表达具有抑制作用以及对FAS表达具有调节作用,这与本试验结果基本一致。本试验表明,MO组的肝脏LPL mRNA相对表达量显著高于其他各组组,且其他各组间无显著差异。这可能是因为随着脂肪酸不饱和度的提高,蝇蛆油对LPL mRNA表达的促进作用更好,从而使得肝胰脏LPL合成量提高。SO、BO和TO组的肝脏LPL mRNA相对表达量均与FO组无显著差异,说明虫油(黑水虻油和黄粉虫油)抑制了肝脏脂质合成,能够保证肝脏正常的脂质水平。

4 结论

不同脂肪源饲料对锦鲤生长性能、血清生化指标及肠道脂肪酸组成、肠道菌群、脂质代谢相关指标均有一定的影响。综合考虑本试验结果,黑水虻油为适宜替代鱼油的脂肪源,蝇蛆油次之。
[1]
吉红, 李森林, 徐歆歆. 昆虫资源在水产饲料中的应用研究进展[J]. 饲料工业, 2016, 37(22):1-9.

JI H, LI S L, XU X X. Research progress on the application of insects as feed resources in aquaculture feed[J]. Feed Industry, 2016, 37(22):1-9. (in Chinese)

[2]
吴时敏, 裘爱泳. 昆虫功能性脂质与油脂的开发[J]. 天然产物研究与开发, 2001, 13(1):52-55,34.

WU S M, QIU A Y. Developnents of functional insect lipids and oils[J]. Natural Product Research and Development, 2001, 13(1):52-55,34. (in Chinese)

[3]
SPRANGHERS T, OTTOBONI M, KLOOTWIJK C, et al. Nutritional composition of black soldier fly (Hermetia illucens) prepupae reared on different organic waste substrates[J]. Journal of the Science of Food and Agriculture, 2017, 97(8):2594-2600.

DOI PMID

[4]
GIANNETTO A, OLIVA S, CECCON LANES C F, et al. Hermetia illucens (Diptera:Stratiomydae) larvae and prepupae:biomass production,fatty acid profile and expression of key genes involved in lipid metabolism[J]. Journal of Biotechnology, 2020, 307:44-54.

[5]
王晓娟, 陶楚男, 吴光荣, 等. 黄粉虫在动物生产中的应用研究进展[J]. 湖南畜牧兽医, 2020(2):51-53.

WANG X J, TAO C N, WU G R, et al. Research progress of application of Tenebrio molitor in animal production[J]. Hunan Journal of Animal Science & Veterinary Medicine, 2020(2):51-53. (in Chinese)

[6]
严晶. 家蝇蛆粉替代鱼粉在凡纳滨对虾饲料中的应用[D]. 硕士学位论文. 武汉: 华中农业大学, 2012.

YAN J. Application of housefly maggot meal replacement of fish meal in the diet of Litopenaeus vannamei[D]. Master's Thesis. Wuhan: Huazhong Agricultural University, 2012. (in Chinese)

[7]
蒋亮, 何俊. 蝇蛆及其提取物在动物生产中的应用[J]. 家畜生态学报, 2020, 41(5):71-77.

JIANG L, HE J. Application of fly maggot and its extractions in animal production[J]. Acta Ecologae Animalis Domastici, 2020, 41(5):71-77. (in Chinese)

[8]
谢醒达. 饲料中油脂源对泰国斗鱼生长性能、繁殖力及观赏特性的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2019.

XIE X D. Effects of dietary oil sources on the growth performance,fecundity,and ornamental characteristic of fighting fish (Betta splendens)[D]. Master's Thesis. Yangling: Northwest A&F University, 2019. (in Chinese)

[9]
林声雄, 李潇, 鲁康乐, 等. 脱脂黄粉虫粉替代鱼粉对花鲈生长性能和肠道健康的影响[J]. 渔业科学进展, 2023, 44(5):56-68.

LIN S X, LI X, LU K L, et al. Effects of substituting fish meal with defatted yellow mealworm (Tenebrio molitor) on the growth and gut health of spotted seabass[J]. Progress in Fishery Sciences, 2023, 44(5):56-68. (in Chinese)

[10]
姜建湖, 胡大雁, 范慧慧, 等. 饲料脂肪源对光唇鱼亲鱼生长及繁殖性能的影响[J]. 饲料工业, 2023, 44(20):28-34.

JIANG J H, HU D Y, FAN H H, et al. Effects of distinct lipid sources on growth and reproductive performance of parent Acrossocheilus fasciatus[J]. Feed Industry, 2023, 44(20):28-34. (in Chinese)

[11]
TORSHIN I Y, GROMOVA O A, ZAYCHIK B T, et al. Comprehensive study of the composition of fish fat extracts and quantitative criteria for distinguishing standardized omega-3 polyunsaturated fatty acids extracts[J]. Kardiologiia, 2020, 60(5):1053.

[12]
SARGENT J R, TOCHER D R, BELL J G. 4-The lipids[M]// HALVERJ E, HARDYR W. Fish nutrition. 3rd ed. San Diego: Academic Press, 2002:181-257.

[13]
YAO C W, HUANG W X, LIU Y T, et al. Effects of different marine-based lipid sources on growth performance,activities of digestive enzyme,antioxidant responses,and lipid metabolism of large yellow croaker (Larimichthys crocea) larvae[J]. Aquaculture Nutrition, 2022, 2022:6314978.

[14]
LIU C, ZHAO L P, SHEN Y Q. A systematic review of advances in intestinal microflora of fish[J]. Fish Physiology and Biochemistry, 2021, 47(6):2041-2053.

DOI PMID

[15]
刘婷, 靳烨, 要铎, 等. 植物乳杆菌对苏尼特羊肠道菌群、血浆代谢物及肉品质的影响[J]. 农业工程学报, 2022, 38(3):286-294.

LIU T, JIN Y, YAO D, et al. Effects of Lactobacillus plantarum on intestinal flora,plasma metabolites and meat quality of Sunit sheep[J]. Transactions of the Chinese Society of Agricultural Engineering, 2022, 38(3):286-294. (in Chinese)

[16]
兰鲲鹏, 吴光德, 王珺, 等. 饲料中添加菊粉对卵形鲳鲹幼鱼存活、生长和肠道菌群的影响[J]. 南方水产科学, 2022, 18(5):55-65.

LAN K P, WU G D, WANG J, et al. Effects of dietary supplementation of inulin on survival,growth and intestinal microbiota of juvenile golden pompano (Trachinotus ovatus)[J]. South China Fisheries Science, 2022, 18(5):55-65. (in Chinese)

[17]
SUN Y G, ZHANG S S, NIE Q X, et al. Gut firmicutes:relationship with dietary fiber and role in host homeostasis[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(33):12073-12088.

[18]
WU F, TIAN J, YU L J, et al. Effects of dietary rapeseed meal levels on growth performance,biochemical indices and flesh quality of juvenile genetically improved farmed tilapia[J]. Aquaculture Reports, 2021, 20:100679.

[19]
WANG X X, BAI F K, NIU X J, et al. The lipid-lowering effect of dietary taurine in orange-spotted groupers (Epinephelus coioides) involves both bile acids and lipid metabolism[J]. Frontiers in Marine Science, 2022, 9:859428.

[20]
SMITH D R, KNABE D A, SMITH S B. Depression of lipogenesis in swine adipose tissue by specific dietary fatty acids[J]. Journal of Animal Science, 1996, 74(5):975-983.

PMID

[21]
AUWERX J, LEROY P, SCHOONJANS K. Lipoprotein lipase:recent contributions from molecular biology[J]. Critical Reviews in Clinical Laboratory Sciences, 1992, 29(3/4):243-268.

[22]
RICHARD N, MOURENTE G, KAUSHIK S, et al. Replacement of a large portion of fish oil by vegetable oils does not affect lipogenesis,lipid transport and tissue lipid uptake in European seabass (Dicentrarchus labrax L.)[J]. Aquaculture, 2006, 261(3):1077-1087.

[23]
刘燕, 程镇燕, 曲木, 等. 不同脂肪源饲料对津新鲤生长、消化及生理生化指标的影响[J]. 饲料研究, 2016(11):38-46,51.

LIU Y, CHENG Z Y, QU M, et al. Effects of different lipid diets on the growth、degestive and physiological of Cyprinus carpio var. Jian[J]. Feed Research, 2016(11):38-46,51. (in Chinese)

Outlines

/