RESEARCH PAPER

Mechanism of Bamboo Leaf Flavonoids Regulating Antioxidant Pathway and Autophagy to Alleviate Oxidative Stress in Dairy Cow Mammary Epithelial Cells

  • NIU Haoyu ,
  • ZHAN Jingwei ,
  • TAN Jian ,
  • ZHAO Yuchao , * ,
  • JIANG Linshu , *
Expand
  • Key Laboratory of Dairy Cow Nutrition, College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
*ZHAO Yuchao, lecturer, E-mail: ;
JIANG Linshu, professor, E-mail:

Received date: 2024-01-30

  Online published: 2024-07-09

Abstract

The purpose of this experiment was to explore the effect of bamboo leaf flavonoids (BLF) on the autophagy and antioxidant pathway of dairy cow mammary epithelial cells under oxidative stress, and to explore the correlation between autophagy and Kelch-like ECH-associated protein 1 (Keap1)-nuclear factor erythroid-2-related factor 2 (Nrf2) signaling pathway by adding autophagy inhibitor Mdivi-1. The MAC-T cell line of dairy cow mammary epithelial cells was used as the research object. The MAC-T treated in the maintenance medium was set as the control group. The MAC-T treated with the maintenance medium containing (80 μg/mL) BLF was set as the BLF group. The MAC-T treated with the maintenance medium containing (800 μmol/L) hydrogen peroxide (H2O2) was set as the H2O2 group (induced oxidative stress). The MAC-T treated with the maintenance medium containing (80 μg/mL) BLF and the maintenance medium containing (800 μmol/L) H2O2 were set as the BLF+H2O2 group. The MAC-T treated with the maintenance medium containing (80 μg/mL) BLF, (1 μmol/L) Mdivi-1 and (800 μmol/L) H2O2 was set as BLF+H2O2+Midiv group. The MAC-T treated with the maintenance medium containing (1 μmol/L) Mdivi-1 was set as Midiv group. After the culturing, real-time fluorescence quantitative PCR was used to detect the expression of autophagy and Keap1-Nrf2 signaling pathway-related genes, Western blot was used to detect the expression of autophagy-related proteins, Keap1-Nrf2 and extracellular signal-regulated kinase (MAPK) signaling pathway-related proteins, and immunofluorescence technique was used to detect transcription factor EB (TFEB) protein expression, Nrf2 protein expression and nuclear translocation. The results showed as follows: 1) BLF pretreatment could significantly increase the expression levels of autophagy markers Beclin1 and Parkin proteins in oxidative damaged cells (P<0.05), significantly increase the expression levels of lysosomal function-related proteins cathepsin D (CTSD) and lysosomal associated membrane protein 1 (LAMP1) (P<0.05), significantly increase the phosphorylation degree of adenosine monophosphate activated protein kinase (AMPK) protein and the expression level of TFEB protein (P<0.05), promote TFEB nuclear translocation, and significantly increase the relative expression levels of lysosomal-related genes such as ATPase H+ transporting V1 subunit H (ATP6V1H), cathepsin B (CTSB) and tripeptidyl peptidase 1 (TPP1) and autophagy-related gene microtubule-associated protein 1 light chain 3 (LC3) (P<0.05). 2) BLF pretreatment significantly reduced the expression level of Keap1 protein in oxidative damaged cells (P<0.05), resulting in the stabilization of Nrf2 protein in the cytoplasm and the transfer of Nrf2 protein to the nucleus, which activated the transcription and translation of downstream Nrf2 target genes heme oxygenase-1 (HO-1) and NAD(P)H:quinone oxidoreductase 1 (NQO1). However, inhibition of autophagy by Mdivi-1 inhibited the promotion of BLF on the Keap1-Nrf2 signaling pathway. In summary, this study found that BLF alleviates the oxidative stress of dairy cow mammary epithelial cells by promoting autophagy and lysosomal function and activating Keap1-Nrf2 signaling pathway, and there is a crosstalk between autophagy and antioxidant signaling pathways.

Cite this article

NIU Haoyu , ZHAN Jingwei , TAN Jian , ZHAO Yuchao , JIANG Linshu . Mechanism of Bamboo Leaf Flavonoids Regulating Antioxidant Pathway and Autophagy to Alleviate Oxidative Stress in Dairy Cow Mammary Epithelial Cells[J]. Chinese Journal of Animal Nutrition, 2024 , 36(7) : 4677 -4692 . DOI: 10.12418/CJAN2024.401

需氧生物体在氧化代谢过程中会产生活性氧(reactive oxygen species,ROS),正常情况下,ROS的产生和消除处于相对平衡的状态。然而,在内部或外部环境压力下,如高葡萄糖水平或紫外线辐射,生物体产生的ROS显著增加,导致氧化应激[1]。在围产期,奶牛乳腺上皮细胞代谢旺盛,产生大量ROS,导致氧化应激[2]。此外,奶牛产热大于散热能力时会发生热应激,尤其是处于高温高湿条件下时,严重的热应激可引起泌乳奶牛氧化应激[3]。而氧化应激是导致奶牛酮症、脂肪肝、乳腺炎等多种产后疾病或失调的因素之一,在奶牛生产中造成巨大的经济损失[4]
竹叶黄酮(bamboo leaf flavonoids,BLF)作为一种天然抗氧化剂,具有抗菌、抗炎、降脂、抗辐射、抗衰老等多种生物学作用[5]。曹洪志等[6]在肉牛饲粮中添加黄酮含量为41.2%的竹叶提取物,发现80 g/d的添加量可以显著提高肉牛的干物质采食量和日增重。栗明月等[7]在奶牛饲粮中分别添加30、60和90 g/d黄酮含量为40%的竹叶提取物,发现可以提高乳蛋白率和乳糖率,降低体细胞数以及血清中超氧化物歧化酶和谷胱甘肽过氧化物酶的活性。李义等[8]报道,热应激奶牛饲粮中添加1.3 g/kg DM黄酮含量为41.2%的竹叶提取物,发现在提高热应激奶牛的产奶量和乳脂率的同时还可以提高热应激奶牛血清超氧化物歧化酶和谷胱甘肽过氧化氢酶活性,降低血清丙二醛含量,并能提高热应激奶牛血清免疫球蛋白A、免疫球蛋G和白细胞介素-2含量。侯昆等[9]研究表明,在乳房炎奶牛饲粮中添加30 g/d的BLF能够提高奶牛产奶性能和血清中超氧化物歧化酶活性,降低血清中丙二醛含量和乳中体细胞数。由以上研究可见,BLF具有改善奶牛泌乳性能、机体免疫功能和抗氧化的作用。此外,有研究发现,在体外培养条件下,添加BLF可以抑制过氧化氢(hydrogen peroxide,H2O2)诱导的MAC-T凋亡和ROS生成,缓解线粒体损伤[10]。但BLF缓解奶牛乳腺上皮细胞氧化应激的作用机制还不清楚。
Kelch样环氧氯丙烷相关蛋白1(Keap1)-核因子E2相关因子2(Nrf2)信号通路是至今研究发现的生物体内最重要的抗氧化通路,当细胞自由基浓度过高时,机体会发动防御机制来抵抗过量ROS和氧化损伤,这些协调反应行为大部分受该通路调节[11]。研究表明黄酮类化合物可以通过激活细胞内Keap1-Nrf2信号通路发挥抗氧化作用。李建凤等[12]在体外培养条件下发现BLF可通过Nrf2信号通路的调节有效减轻热应激诱导的奶牛乳腺上皮细胞氧化损伤。Yu等[13]建立了油酸诱导的HepG2细胞氧化应激模型,发现BLF可通过上调Nrf2、血红素加氧酶-1(HO-1)和NAD(P)H:醌氧化还原酶1(NQO1)的表达量,缓解氧化应激。Yang等[14]证明4,4'-二甲氧基查尔酮通过泛素-蛋白酶体系统诱导Keap1降解,导致Nrf2核转位,上调Nrf2靶基因Homx1(HO-1的编码基因)的表达量来诱导铁下垂,从而抑制癌细胞生长。
自噬是细胞对胞质大分子和受损细胞器的降解和循环回收过程[15-16],以应对不同的应激条件,如营养不足、病毒感染和基因毒性应激。氧化应激是多种刺激的汇聚点,ROS是维持细胞自噬的关键胞内信号转导分子[17]。当细胞自噬功能受损时更易发生氧化应激[18]。BLF在缓解奶牛乳腺上皮细胞氧化应激中,抗氧化通路和自噬可能发挥着重要作用,因此,本研究采用BLF和自噬抑制剂Mdivi-1对H2O2诱导的奶牛乳腺上皮细胞的氧化应激模型进行处理,旨在揭示BLF对氧化损伤细胞Keap1-Nrf2抗氧化通路和自噬的作用,为BLF在缓解奶牛乳腺氧化应激中的应用提供理论支撑。

1 材料与方法

1.1 试验材料

奶牛乳腺上皮细胞MAC-T细胞系由东北农业大学动物生物化学与分子生物学实验室馈赠;BLF由浙江大学张英教授馈赠,总黄酮含量为98%,主要成分包括荭草苷、异荭草苷、牡荆苷和异牡荆苷,剩余的2%为粗灰分、粗蛋白质以及水溶性多糖;DMEM/F12培养基、澳洲胎牛血清(FBS)、0.25%胰蛋白酶-乙二胺四乙酸购自美国Gibco公司;氯仿、异丙醇、无水乙醇、甲醇购自北京化学工业集团有限责任公司;Tris、甘氨酸、5×TBST、牛血清白蛋白(BSA)、4%多聚甲醛、4',6-二脒基-2苯基吲哚(DAPI)溶液购自Solarbio公司;RIPA裂解液(强)、苯甲基磺酰氟(PMSF)、十二烷基硫酸钠(SDS)-聚丙烯酰胺凝胶电泳(PAGE)凝胶配制试剂盒、脱脂奶粉、ECL化学发光试剂盒、抗荧光淬灭封片液购自碧云天生物技术有限公司;Trizol、细胞爬片购自北京博尔优生物技术有限公司;焦碳酸二乙酯(DEPC)处理水购自天根生化科技(北京)有限公司;核酸酶清除剂购自北京百奥莱博科技有限公司;TaKaRa cDNA反转录试剂盒购自宝生物工程(大连)有限公司公司;SDS购自上海麦克林生化科技股份有限公司。

1.2 试验设计

利用H2O2诱导奶牛乳腺上皮细胞氧化应激模型的方法参考本实验室前期研究结果[10]。将MAC-T接种于培养皿中,放置于37 ℃、5% CO2培养箱中培养,待细胞融合度为80%左右时分为6组,分别为CON组、BLF组、H2O2组、BLF+H2O2组、BLF+H2O2+Midiv组、Midiv组,细胞重悬后接种于6孔板中培养。其中,CON组细胞接种于维持培养基培养31 h;BLF组细胞接种于含BLF的维持培养基中培养24 h后,更换为维持培养基继续培养7 h;H2O2组细胞接种于维持培养基中培养25 h后,更换为含H2O2的维持培养基继续培养6 h;BLF+H2O2组细胞接种于含BLF的维持培养基中培养24 h后,更换为维持培养基继续培养1 h,再更换为含H2O2的维持培养基中继续培养6 h。BLF+H2O2+Midiv组细胞接种于含BLF的维持培养基中培养24 h后,更换为含Mdivi-1的维持培养基继续培养1 h,再更换为含H2O2的维持培养基继续培养6 h。Midiv组细胞接种于维持培养基中培养24 h后,更换为含Mdivi-1的维持培养基继续培养1 h,再更换为维持培养基继续培养6 h。含BLF的维持培养基中含80 μg/mL BLF,含H2O2的维持培养基中含800 μmol/L H2O2,含Mdivi-1的维持培养基中含1 μmol/L Mdivi-1。

1.3 试验方法

1.3.1 细胞培养

将MAC-T放入含有DMEM/F12培养基和1%的青霉素/链霉素溶液以及10%胎牛血清的完全营养液中,于37 ℃、5% CO2的培养箱内培养。待细胞融合度达到80%时,进行细胞传代操作,连续传代3次之后,进行后续试验。

1.3.2 实时荧光定量PCR检测自噬和Keap1-Nrf2信号通路相关基因以及Nrf2靶基因的相对表达量

按1.2步骤将MAC-T进行培养和处理后,利用总RNA提取试剂盒提取细胞总RNA,之后采用cDNA合成试剂盒反转录为cDNA,反应条件为:37 ℃,15 min;85 ℃,5 s。将反转录成功的ATP酶H+转运V1亚基H(ATP6V1H)、组织蛋白酶B(CTSB)、三肽基肽酶1(TPP1)和微管相关蛋白1轻链3(LC3)、HO-1和NQO1的cDNA样品分别配制PCR反应系统。实时荧光定量PCR反应条件:95 ℃预变性30 s,1个循环;60 ℃退火30 s,60 ℃延伸5 s,60个循环。引物序列见表1。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参,采用2-ΔΔCt法计算目的基因的相对表达量。
表1 引物序列

Table 1 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
ATP酶H+转运V1亚基H
ATP6V1H
F:GGAAGTGTCAGATGATCCCCA
R:CCGTTTGCCTCGTGGATAAT
组织蛋白酶B
CTSB
F:AGTGGAGAATGGCACACCCTA
R:AAGAGCCATTGTCACCCCA
三肽基肽酶1
TPP1
F:GATCCCAGCTCTCCTCAATAC
R:GCCATTTTTGCACCGTGTG
微管相关蛋白1轻链3
LC3
F:CAGCATGGTGAGTGTGTCCA
R:GCAGCTCAGTTCAGGAACCA
甘油醛-3-磷酸脱氢酶
GAPDH
F:GCCTCCTGCACCACCAACT
R:TCTTCTGGGTGGCAGTGATG
血红素氧合酶-1
HO-1
F:GGCAGCAAGGTGCAAGA
R:GAAGGAAGCCAGCCAAGAG
NAD(P)H:醌氧化还原酶1
NQO1
F:GGTGCTCATAGGGGAGTTCG
R:GGGAGTGTGCCCAATGCTAT

1.3.3 免疫印迹法检测自噬及Keap1-Nrf2、胞外信号调节激酶(MAPK)信号通路相关蛋白的表达量

1)制备细胞总蛋白样品:将RIPA裂解液(强)、PMSF和磷酸酶抑制剂按照100∶1∶2的比例混合,然后将其置于4 ℃的环境中进行预冷,以备后续使用。取出细胞,磷酸盐缓冲溶液(PBS)清洗2次后每皿加入1 mL裂解液,具体方法参考本实验室前期研究[19],将最终得到的蛋白样本放入沸水浴10 min后用流水快速冷却,置于-80 ℃下储存。
2)电泳:按照表2配制分离胶(12%)和浓缩胶(5%);各孔添加10 μL样品,每板加入5 μL Marker;电泳时浓缩胶电压80 V(30 min),分离胶电压120 V,根据目的蛋白大小控制时间。
表2 分离胶和浓缩胶的配方

Table 2 Formula of separating glue and concentrated gluemL

项目
Items
12%分离胶
12% separating glue
5%浓缩胶
5% concentrated glue
蒸馏水 Distilled water 5.3 2.7
30%丙烯酰胺溶液 30% acrylamide solution 6.7 0.67
1 mol/L Tris-HCl (pH 6.8) 0.5
1 mol/L Tris-HCl (pH 8.8) 7.6
10%十二烷基硫酸钠溶液 10% SDS solution 0.2 0.04
10%过硫酸铵溶液 10% ammonium persulfate solution 0.2 0.04
四甲基乙二胺 TEMED 0.008 0.004
3)转膜:切去浓缩胶,根据Marker标准保留需要检测的蛋白,将胶切至合适大小;打开夹子,制作转膜“三明治”,将黑色的一面置于底部,从下到上依次为海绵垫、厚滤纸(或3层薄滤纸)、电泳完成的分离胶、PVDF膜(使用前在甲醇中浸泡30 s)、厚滤纸和海绵垫,全程注意不要产生气泡;闭合夹子放入转膜设备中;倒入转膜液没过厚滤纸最上层;采用标准湿式转膜法(350 mA,70 min)转膜,转膜过程防止水温过高。
4)封闭:转膜结束后,避免PVDF膜干燥,立刻放入1×TBST洗涤液漂洗2~3 min,弃去洗涤液,转移PVDF膜到5%封闭液,37 ℃封闭1 h。
5)一抗孵育:将PVDF膜放入稀释后的一抗中,4 ℃过夜。
6)二抗孵育:将PVDF膜放入稀释后的二抗中,37 ℃孵育1 h。
7)显影:从二抗中取出PVDF膜用1×TBST漂洗3次,每次5 min;按照说明书调配Beyo ECL Plus超敏发光液(A液∶B液=1∶1);将洗涤完成的PVDF膜置于天能化学发光成像仪中,在表面均匀滴加发光液,随后进行曝光检测。

1.3.4 免疫荧光技术检测转录因子EB(TFEB)、Nrf2蛋白表达及核移位情况

1)收集及固定细胞:弃各培养孔上清,将细胞用PBS漂洗3次,每次5 min,4%多聚甲醛浸泡细胞20 min。
2)通透及封闭:弃去培养孔内的多聚甲醛,将细胞用PBS漂洗3次,每次5 min,之后用0.3% Triton X-100作用于细胞5 min,穿透细胞膜;弃去培养孔内的Triton X-100,将细胞用PBS漂洗3次,每次5 min;加入5% BSA在37 ℃孵育30 min。
3)一抗孵育:向培养孔内滴加提前用2% BSA稀释好的一抗,利用封口膜缠绕4孔板边缘防止液体挥发,在37 ℃孵育2 h(或4 ℃过夜)。
4)二抗孵育:回收孔板内一抗;将细胞用PBS漂洗5次,每次3 min,滴加用PBS稀释的异硫氰酸荧光素(FITC)标记山羊抗鼠(兔)免疫球蛋白G(IgG)(二抗),在37 ℃避光孵育1 h。
5)染核并封片:弃去培养孔内的二抗,将细胞用PBS漂洗5次,每次3 min,滴加DAPI作用5 min染核;滴加20 μL封片液于载玻片上,从孔板取出细胞爬片,并将有细胞的那面贴于载玻片上(注意封片时避免产生气泡或滑动),于荧光显微镜下观察并采集图像。

1.4 数据分析

试验数据利用SPSS 21.0软件的ANOVA程序进行单因素方差分析,并采用Duncan氏法进行多重比较。以P<0.05表示差异显著,P>0.05表示差异不显著。将试验结果通过Origin 2023进行绘图展示。

2 结果与分析

2.1 BLF对氧化应激奶牛乳腺上皮细胞自噬的影响

2.1.1 BLF对氧化应激奶牛乳腺上皮细胞自噬通量和溶酶体功能的影响
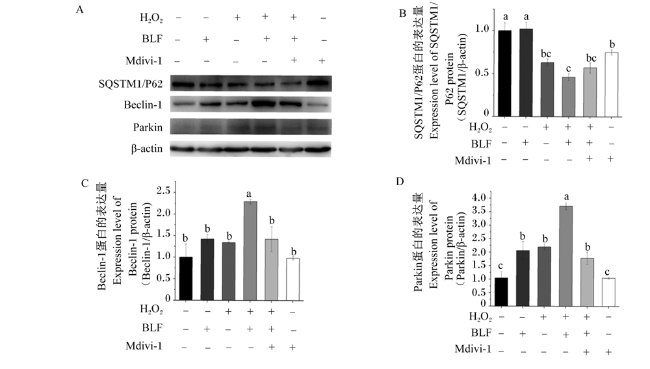
图1-A图1-B可知,与CON组相比,H2O2处理显著降低了SQSTM1/P62蛋白的表达量(P<0.05),BLF+H2O2处理后进一步降低了SQSTM1/P62蛋白的表达量(P<0.05)。由图1-A图1-C图1-D可知,与CON组相比,H2O2组Beclin1蛋白的表达量差异不显著(P>0.05),Parkin蛋白的表达量显著增加(P<0.05),而BLF+H2O2组Beclin1和Parkin蛋白的表达量均显著增强(P<0.05),同时BLF+H2O2+Midiv组Beclin1和Parkin蛋白的表达量显著低于BLF+H2O2组。上述结果说明BLF能显著增强H2O2处理后MAC-T中自噬标记物的合成,Mdivi-1则抑制这一作用。
图1 BLF对H2O2诱导的氧化应激MAC-T自噬通量的影响

H2O2:过氧化氢 hydrogen peroxide;BLF:竹叶黄酮bamboo leaf flavonoids;β-actin:β-肌动蛋白。下图同 the same as below。
数据柱标注不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of BLF on autophagic flux in oxidative stressed MAC-T induced by H2O2

Date columns with different lowercase letters showed significant difference (P<0.05). The same as below.

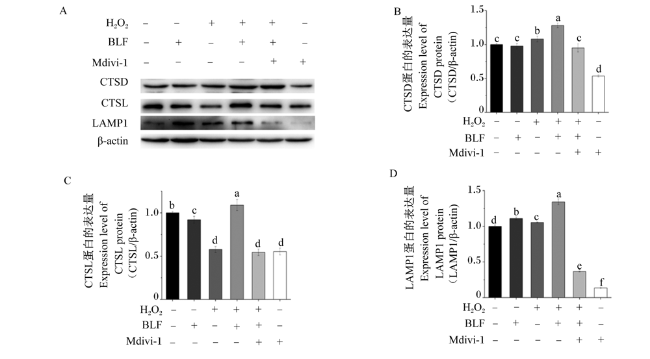
图2-A图2-B图2-C可知,与CON组相比,H2O2处理显著增加了组织蛋白酶D(CTSD)和溶酶体关联膜蛋白1(LAMP1)蛋白的表达量(P<0.05),显著降低了组织蛋白酶L(CTSL)蛋白的表达量(P<0.05);与H2O2组相比,BLF+H2O2处理显著增加CTSD、CTSL和LAMP1蛋白的表达量(P<0.05),而加入Mdivi-1则会显著抑制这一作用(P<0.05)。
图2 BLF对H2O2诱导的氧化应激MAC-T溶酶体功能的影响

CTSD:组织蛋白酶D cathepsin D;CTSL:组织蛋白酶L cathepsin L;LAMP1:溶酶体关联膜蛋白1 lysosomal associated membrane protein 1。

Fig.2 Effects of BLF on lysosome formation in oxidative stressed MAC-T induced by H2O2

上述结果证明,H2O2处理可以激活细胞自噬,但一定程度上损伤溶酶体功能;BLF预处理可以增强细胞的自噬通量,并缓解溶酶体的损伤;Mdivi-1能抑制BLF预处理对细胞氧化损伤的缓解作用。

2.1.2 BLF对氧化应激奶牛乳腺上皮细胞中TFEB核移位及靶基因表达的影响
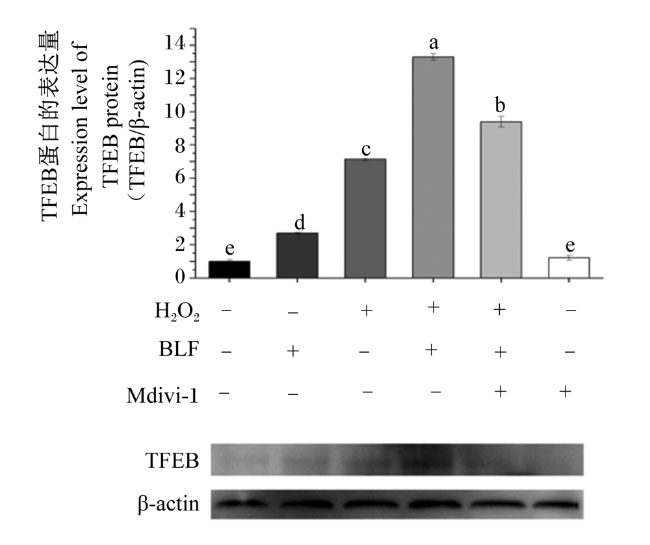
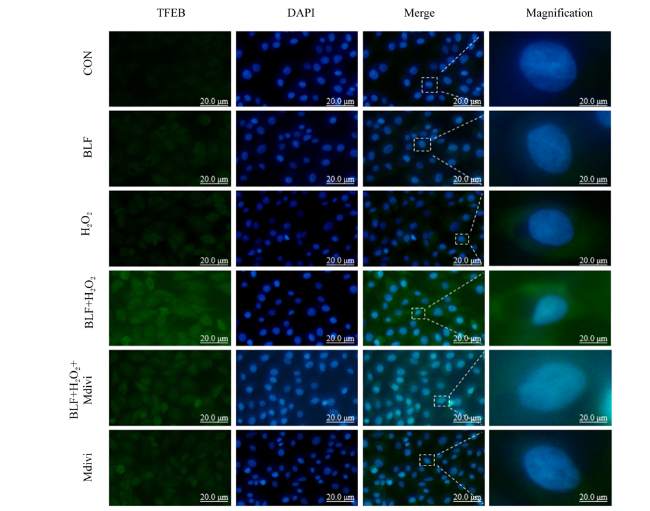
图3所示,与CON组相比,H2O2处理显著提高了TFEB蛋白的表达量(P<0.05),BLF+H2O2处理使TFEB蛋白的表达量进一步提高(P<0.05),加入Mdivi-1则抑制了这一作用(P<0.05)。相对于CON组,H2O2处理使TFEB蛋白的荧光强度升高,BLF+H2O2处理进一步提升了TFEB蛋白的荧光强度,且使TFEB蛋白向细胞核内转移,加入Mdivi-1则会抑制TFEB蛋白免疫荧光的表达及核移位(图4)。
图3 BLF对H2O2诱导的氧化应激MAC-T中TFEB蛋白表达的影响

TFEB:转录因子EB

Fig.3 Effects of BLF on protein expression of TFEB in oxidative stressed MAC-T induced by H2O2

transcription factor EB。

图4 BLF对H2O2诱导的氧化应激MAC-T中TFEB蛋白免疫荧光表达的影响

TFEB:转录因子EB transcription factor EB;DAPI: 4',6-二脒基-2苯基吲哚 4',6-diamidino-2-phenylindole dihydrochloride;Merge:合并;Magnification:放大。

Fig.4 Effects of BLF on immunofluorescence expression of TFEB protein in oxidative stressed MAC-T induced by H2O2

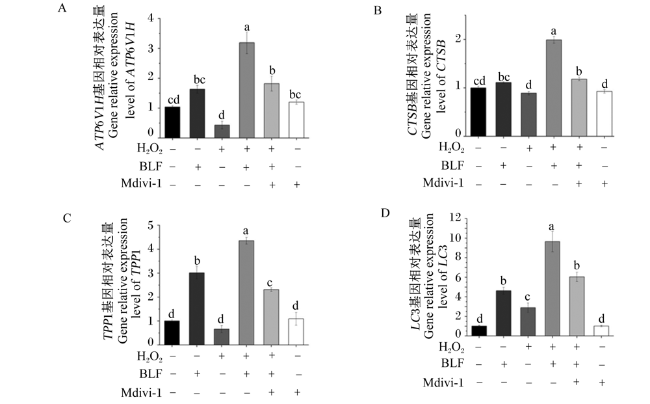
qPCR结果(图5)显示,与CON组相比,H2O2处理对ATP6V1HCTSBTPP1基因的相对表达量的影响不显著(P>0.05),可使LC3基因的相对表达量显著升高(P<0.05);与H2O2组相比,BLF+H2O2处理显著升高了溶酶体相关基因ATP6V1HCTSBTPP1和自噬相关基因LC3的相对表达量(P<0.05),而加入Mdivi-1则显著抑制了BLF预处理的作用(P<0.05)。
图5 BLF对H2O2诱导的氧化应激MAC-T中TFEB靶基因表达的影响

ATP6V1H:ATP酶H亚基 ATPase H+ transporting V1 subunit H;CTSB:组织蛋白酶B cathepsin B;TPP1:三肽基肽酶1 tripeptidyl peptidase 1;LC3:微管相关蛋白1轻链3 microtubule-associated protein 1 light chain 3。

Fig.5 Effects of BLF on expression of TFEB target genes in oxidative stressed MAC-T induced by H2O2

2.1.3 BLF对氧化应激奶牛乳腺上皮细胞中腺苷酸活化蛋白激酶(AMPK)-TFEB信号通路的影响
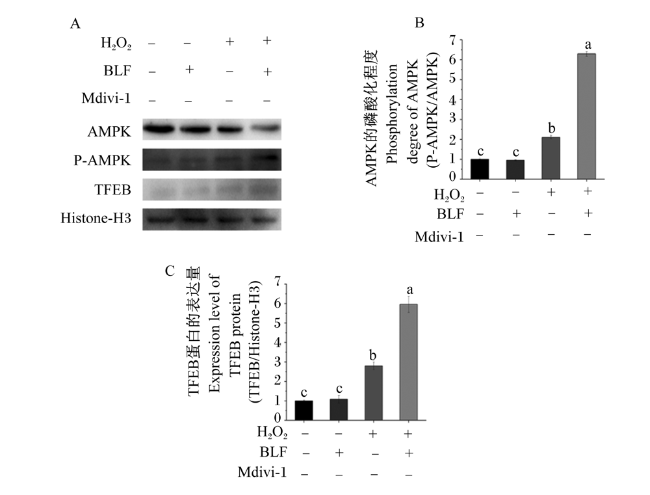
为进一步探讨BLF调控细胞氧化损伤后自噬的机制,本试验对AMPK-TFEB信号通路进行了研究。由图6-A图6-B图6-C可知,与CON组相比,H2O2处理显著增加了细胞核内AMPK蛋白的磷酸化程度和TFEB蛋白的表达量(P<0.05);与H2O2组相比,BLF+H2O2处理进一步增加AMPK蛋白的磷酸化程度和TFEB蛋白的表达量(P<0.05)。上述结果说明BLF预处理增加了AMPK-TFEB信号通路相关的细胞自噬的发生。
图6 BLF对H2O2诱导的氧化应激MAC-T中AMPK-TFEB信号通路的影响

AMPK:腺苷酸活化蛋白激酶 adenosine monophosphate activated protein kinase;P-AMPK:磷酸化腺苷酸活化蛋白激酶 phosphorylated adenosine monophosphate activated protein kinase;TFEB:转录因子EB transcription factor EB;Histone-H3:组蛋白H3。

Fig.6 Effects of BLF on AMPK-TFEB signaling pathway in oxidative stressed MAC-T induced by H2O2

2.2 BLF对氧化应激奶牛乳腺上皮细胞中抗氧化信号通路的影响

2.2.1 BLF对氧化应激奶牛乳腺上皮细胞中Nrf2靶基因及蛋白表达的影响
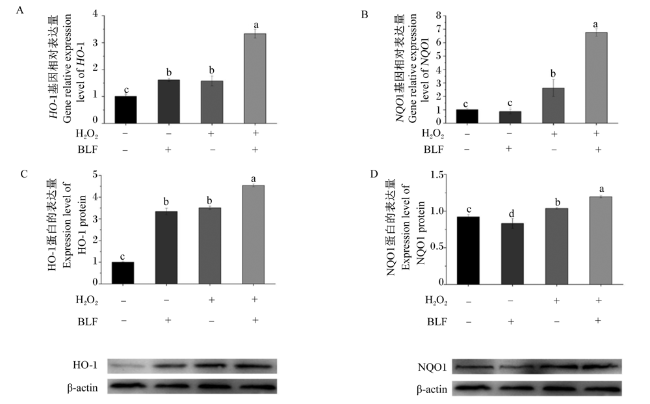
图7可知,与CON组相比,H2O2处理能显著增加HO-1和NQO1基因的相对表达量(P<0.05),并能显著增加HO-1和NQO1蛋白的表达量(P<0.05);与H2O2组相比,BLF+H2O2处理能显著增加氧化损伤细胞中HO-1和NQO1的基因相对表达量和蛋白的表达量(P<0.05)。上述结果说明BLF能通过激活Nrf2下游抗氧化基因的表达来抵御细胞氧化损伤。
图7 BLF对H2O2诱导的氧化应激MAC-T中Nrf2靶基因及蛋白表达的影响

HO-1:血红素加氧酶-1 heme oxygenase-1;NQO1:NAD(P)H:醌氧化还原酶1 NAD(P)H:quinone oxidoreductase 1。

Fig.7 Effects of BLF on expression of Nrf2 target genes and proteins in oxidative stressed MAC-T induced by H2O2

2.2.2 BLF对氧化应激奶牛乳腺上皮细胞中MAPK信号通路相关蛋白表达的影响
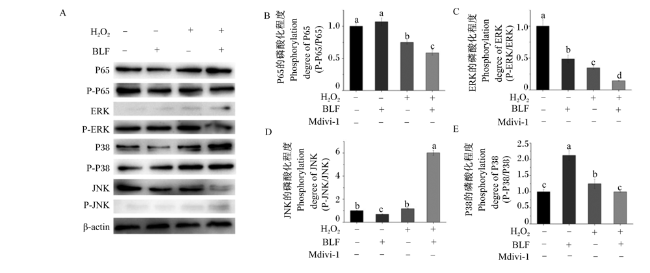
与CON组相比,H2O2处理显著促进了细胞中P38蛋白的磷酸化(P<0.05)(图8-A图8-E),显著抑制了细胞外调节蛋白激酶(ERK)蛋白的磷酸化(P<0.05)(图8-A图8-C),对c-Jun氨基端激酶(JNK)蛋白的磷酸化程度没有显著影响(P>0.05)(图8-A图8-D);与H2O2组相比,BLF+H2O2处理显著抑制了氧化损伤细胞中ERK、P38和P65蛋白的磷酸化(P<0.05)(图8-A图8-C图8-E图8-B),但是显著促进了JNK蛋白的磷酸化(P<0.05)(图8-A图8-D)。
图8 BLF对H2O2诱导的氧化应激MAC-T中MAPK信号通路相关蛋白表达的影响

P65:P65蛋白 protein P65;P-P65:磷酸化P65蛋白 phosphorylated protein P65;ERK:细胞外调节蛋白激酶 extracelluar regulated protein kinase;P-ERK:磷酸化细胞外调节蛋白激酶 phosphorylated extracelluar regulated protein kinase;P38:P38蛋白 protein P38;P-P38:磷酸化P38蛋白 phosphorylated protein P38;JNK:c-Jun氨基端激酶 c-Jun N-terminal kinase;P-JNK:磷酸化c-Jun氨基端激酶 phosphorylated c-Jun N-terminal kinase。

Fig.8 Effects of BLF on expression of proteins related MAPK signaling pathway in oxidative stressed MAC-T induced by H2O2

2.2.3 BLF对氧化应激奶牛乳腺上皮细胞中Keap1-Nrf2信号通路相关蛋白表达的影响
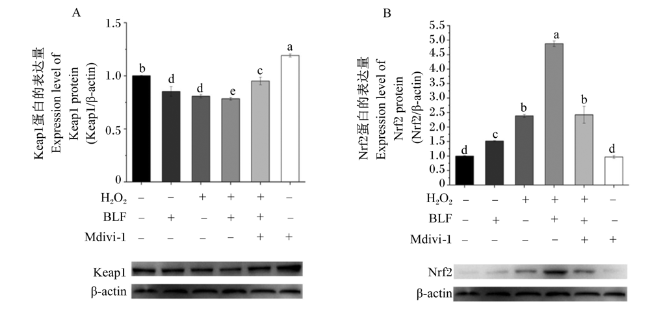
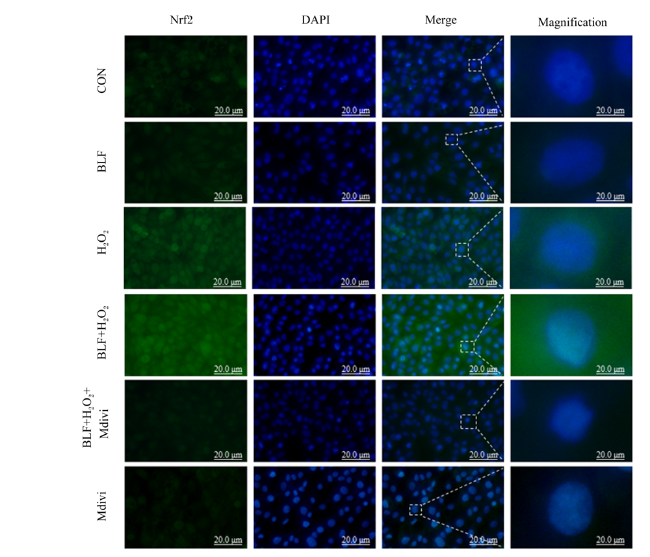
与CON组相比,H2O2处理显著降低细胞中Keap1蛋白的表达量(P<0.05)(图9-A),显著增加了Nrf2蛋白的表达量(P<0.05)(图9-B),Nrf2蛋白的荧光强度增加,但未见明显的核移位发生(图10)。与H2O2组相比,BLF+H2O2处理显著降低Keap1蛋白的表达量(图9-A)(P<0.05),显著增加了Nrf2蛋白的表达量(P<0.05)(图9-B),Nrf2蛋白的荧光强度明显增加,并且能清晰地看见Nrf2蛋白转移进入细胞核内(图10),说明BLF+H2O2处理激活了氧化损伤细胞的Keap1-Nrf2信号通路。与BLF+H2O2组相比,加入Mdivi-1显著增加了Keap1蛋白的表达量(P<0.05)(图9-A),显著降低Nrf2蛋白的表达量(P<0.05)(图9-B),并且抑制了Nrf2蛋白的免疫荧光表达及核移位(图10),说明抑制细胞自噬会抑制BLF诱导的氧化损伤细胞中Nrf2-Keap1信号通路的激活。
图9 BLF对H2O2诱导的氧化应激MAC-T中Keap1-Nrf2信号通路相关蛋白表达的影响

Keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch-like ECH-associated protein 1;Nrf2:核因子E2相关因子2 nuclear factor erythroid-2-related factor 2。

Fig.9 Effects of BLF on expression of proteins related Keap1-Nrf2 signaling pathway in oxidative stressed MAC-T induced by H2O2

图10 BLF对H2O2诱导的氧化应激MAC-T中Nrf2蛋白免疫荧光表达的影响

Nrf2:核因子E2相关因子2 nuclear factor erythroid-2-related factor 2;DAPI: 4',6-二脒基-2苯基吲哚 4',6-diamidino-2-phenylindole dihydrochloride;Merge:合并;Magnification:放大。

Fig.10 Effects of BLF on immunofluorescence expression of Nrf2 protein in oxidative stressed MAC-T induced by H2O2

3 讨论

3.1 BLF对氧化应激奶牛乳腺上皮细胞自噬通量和溶酶体功能的影响

SQSTM1/P62作为一种相对蛋白质,介导其识别底物的降解,但SQSTM1/P62的过量积聚可以隔离Keap1[20]。而Keap1是Nrf2的E3-泛素连接酶复合体的适配器[21]。且SQSTM1/P62蛋白通过与LC3-Ⅱ的直接结合选择性地结合到自噬小体中,在自溶酶体中被有效地降解。因此,总的SQSTM1/P62蛋白的表达量与自噬呈负相关[22]。在本研究中,H2O2处理显著降低SQSTM1/P62蛋白的表达量,且BLF预处理后进一步降低SQSTM1/P62蛋白的表达量。Beclin-1蛋白是自噬标记物蛋白,在自噬小体形成中起关键作用,通过形成隔离膜在自噬的起始阶段起作用[23]。Cao等[24]的研究结果表明,姜黄素预处理能提高氧化损伤后Beclin-1和LC3-Ⅱ的水平,降低SQSTM1/P62的水平,这意味着经姜黄素预处理的细胞具有更高的自噬水平。在本试验中,BLF预处理也显著增加Beclin-1蛋白的表达量。SQSTM1/P62和Beclin-1蛋白表达量被显著改变,均说明BLF预处理能增强氧化损伤后细胞自噬的发生。Narendra等[25]研究发现,Parkin被选择性地招募到哺乳动物细胞中具有低膜电位的功能障碍的线粒体中后,Parkin介导自噬小体吞噬线粒体,并选择性地消除受损的线粒体。有相关研究以Parkin作为一种细胞溶质E3泛素连接酶作为切入点,探究其在去极化线粒体中泛素化线粒体外膜蛋白的作用,该研究在IPEC-J2细胞中转染GFP-Parkin ΔUBL[GFP-Parkin ΔUBL是一种遗传工程改造的蛋白质,它是结合了绿色荧光蛋白(GFP)和Parkin蛋白的一种特定变体,这种形式的Parkin蛋白缺少了其N端的泛素样蛋白(UBL)结构域,因此,GFP-Parkin ΔUBL失去了正常的泛素E3连接酶活性],在转染组与对照组细胞诱导氧化应激后用姜黄素处理,发现转染组细胞失去诱导细胞自噬和恢复活力的功能,说明Parkin的E3泛素连接酶是姜黄素抵御氧化应激不可缺少的[24]。本试验发现BLF或H2O2单独处理奶牛乳腺上皮细胞都引起Parkin蛋白表达量增多,说明氧化损伤后,细胞仍然有募集Parkin,通过自噬清除受损线粒体的能力;经BLF预处理后能进一步提升细胞中Parkin蛋白表达量,证明BLF通过增强自噬以保护细胞过程中Parkin的作用,然而,Parkin中的哪种结构参与BLF的保护功能有待进一步探索。溶酶体需要各种蛋白酶来完成它们的功能,组织蛋白是参与自噬降解的主要溶酶体蛋白,其中CTSD和CTSL是2种含量丰富的溶酶体酶。CTSD可以参与溶酶体隔间的细胞内分解代谢[26]。细胞通过激活CTSL分解蛋白质和激素,还被证明通过降解溶酶体内容物来促进自噬[27]。在Thirusangu等[28]的研究中,将细胞的CDSL基因敲除后用奎纳克林(QC)处理,发现敲除CDSL基因后的细胞中SQSTM1/P62的水平显著高于对照组,而LC3-B水平低于对照组,表明CTSL基因敲除阻止QC诱导的自噬通量,而CTSL基因表达上调或QC处理也增加了早期自噬小体的发育,证明CTSL是细胞发生自噬所必需的。LAMP1和溶酶体膜相关蛋白2(LAMP2)约占溶酶体膜蛋白的50%,保护溶酶体膜免受水解酶的作用。LAMP1是晚期核内体和溶酶体的标记蛋白,在Li等[29]的试验中,利用萝卜硫素处理Hela细胞0~9 h后,LAMP1蛋白的表达量和荧光嗜酸探针的染色逐渐升高,说明萝卜硫素促进了细胞溶酶体的功能。本试验中,H2O2处理减少了CTSL蛋白的表达量,说明对溶酶体产生了负面的影响,而BLF预处理恢复了CTSL蛋白的表达量,并且显著提升了CTSD和LAMP1蛋白的表达量,从而减少溶酶体受到的氧化损伤。

3.2 BLF对氧化应激奶牛乳腺上皮细胞中TFEB核移位及靶基因表达的影响

转录因子EB(TFEB)是一种螺旋-环-螺旋结构转录因子,在许多细胞类型中调节溶酶体的生物发生和自噬功能[30],并且TFEB还可以通过增加HO-1和超氧化物歧化酶-2(SOD-2)等抗氧化基因的丰度来减轻细胞内ROS的产生[31]
AMPK是在氧化应激条件下激活自噬的关键调节因子,在该系统中细胞能量的变化可以导致ATP/ADP比值降低和AMPK激活[32]。AMPK可能通过直接磷酸化Raptor或通过激活结节性硬化症2(TSC2)间接参与哺乳动物雷帕霉素靶蛋白(mTOR)的抑制[33]。当mTOR的激活被抑制时,激活TFEB导致其去磷酸化转移到细胞核后[34]。TFEB识别溶酶体和自噬基因如LC3、Beclin-1、ATG3、CTSDLAMP2等,以及具有一个或多个10碱基对基序列(GTCACGTGAC)的CLEAR原件[31],进而促进基因转录,因此TFEB的核移位导致自噬水平上调[35]。本试验中,H2O2刺激细胞后引起细胞质中TFEB蛋白的表达量升高,促进LC3基因的转录,但未促进溶酶体相关基因ATP6V1HCTSBTPP1的转录;而经BLF预处理后,显著提升了TFEB的核移位及其靶基因的转录,说明细胞氧化损伤后有一定的自噬能力,但溶酶体合成受损,无法快速清除受损线粒体,BLF通过增强TFEB的激活及核转位促进细胞自噬与溶酶体生物合成。

3.3 BLF对氧化应激奶牛乳腺上皮细胞中AMPK-TFEB信号通路的影响

研究表明AMPK在减轻氧化损伤和调节线粒体功能方面发挥重要保护作用[36-37]。AMPK通过磷酸化一些转录因子(包括溶酶体基因的主要转录调节因子TFEB)参与氧化应激的调节。Wu等[38]在二甲双胍治疗皮瓣缺血的试验中证明二甲双胍通过激活AMPK-mTOR-TFEB信号通路促进血管生成,抑制细胞凋亡,减轻氧化应激,但利用shRNA腺相关病毒(AAV)载体抑制AMPK,会下调AMPK-mTOR-TFEB信号通路,降低自噬水平。本试验结果与此一致,BLF预处理可以促进氧化损伤的MAC-T中AMPK的磷酸化,提升细胞核内TFEB蛋白水平,说明BLF缓解细胞氧化损伤是由激活AMPK-TFEB信号通路介导的自噬增加所致。

3.4 BLF对氧化应激奶牛乳腺上皮细胞中MAPK信号通路的影响

研究发现MAPK信号通路与Nrf2的激活息息相关,ERK、JNK或P38的激活或抑制直接影响Nrf2的活性水平,进而诱导细胞发生相关反应[39]。Xu等[40]在探究利福平(RFP)与氧化应激对HepG2细胞影响的研究中发现,RFP和H2O2都能显著增加蛋白激酶C(PKC)α、PKCδ、PKCε蛋白的表达量,显著提高JNK、P38和ERK蛋白的磷酸化程度,显著降低磷脂酰肌醇3-激酶(PI3K)蛋白的磷酸化程度;添加缓解氧化应激的试剂还原型谷胱甘肽乙酯(GSH-MEE)能抑制JNK、P38和ERK的激活,并抑制PI3K磷酸化的减少,说明RFP通过氧化应激激活PKC-ERK/JNK/P38信号通路。然而,有些研究结果表明,发挥抗氧化作用需要抑制ERK1/2、JNK或P38信号通路[41-43]。此外,在自噬诱导中,MAPK已被证明是ROS的下游效应因子,ROS可以通过激活细胞中ERK和JNK来诱导自噬[44]

3.5 BLF对氧化应激奶牛乳腺上皮细胞中Keap1-Nrf2信号通路的影响

Keap1-Nrf2系统是机体对抗环境伤害的主要防御机制,它是一个典型的双组分系统:Keap1是一种富含半胱氨酸硫醇的氧化还原损伤传感器,Nrf2为发挥保护作用的协同效应器。细胞质中,Keap1、泛素化连接酶E3蛋白(Clu3)和多泛素化Nrf2组成泛素E3连接酶复合物,这意味着Nrf2会通过蛋白酶体系统快速降解,因此,在非应激状态下,Nrf2翻译后便被不断泛素化降解。然而,当细胞内ROS大量产生时或有大量亲电物质时,直接修饰Keap1的活性半胱氨酸残基,降低E3连接酶复合物的活性,导致Nrf2不再被泛素化降解,生成的Nrf2可以直接转移到细胞核中,与一种小肌肉腱膜纤维蛋白(Smaf)异源二聚体结合到抗氧化反应元件/亲电响应元件(ARE/EpRE)并迅速激活一组Ⅱ期基因,因此Nrf2是一个主要的调控转录因子[45]。本试验中,检测Keap1-Nrf2信号通路最下游靶基因及蛋白的表达情况后发现,BLF显著增加了氧化损伤细胞中HO-1及NQO1基因及蛋白的表达量,说明ARE原件被大量激活。对通路上游进行检测,发现BLF显著激活了氧化损伤细胞的Keap1-Nrf2信号通路,表现为Keap1蛋白表达量显著减少,Nrf2蛋白表达量显著升高,并且免疫荧光检测结果显示大量Nrf2蛋白转移进入细胞核。H2O2刺激细胞虽然也能激活Nrf2,清除ROS,但这种代偿机制无法满足缓解氧化损伤的需要,因此需要使用药物进一步加强Nrf2对MAC-T的保护作用[46]

3.6 BLF通过自噬影响奶牛乳腺上皮细胞的抗氧化通路

本试验结果表明,BLF预处理可以减少氧化损伤细胞中Keap1蛋白的表达量,并增加Nrf2蛋白的表达量及核转位,激活Nrf2靶基因的转录,证明BLF通过激活Keap1-Nrf2信号通路发挥抗氧化作用。但是,加入Mdivi-1后,Keap1蛋白的表达量恢复,Nrf2蛋白的表达量也显著降低,说明加入Mdivi-1后BLF激活氧化损伤细胞中Keap1-Nrf2信号通路的效果被抑制。结合上一部分的结果,加入Mdivi-1后细胞自噬标记物的表达量显著改变,标志自噬通量的减少,由此推测,BLF在促进氧化损伤细胞自噬和激活抗氧化通路之间有较强的关联性,当BLF促进细胞自噬被抑制后,会在一定程度上抑制抗氧化通路。

4 结论

在体外培养条件下,BLF通过激活奶牛乳腺上皮细胞中AMPK-TFEB信号通路,促进TFEB核移位,激活其靶基因的转录,增强细胞的自噬发生和溶酶体功能,保护细胞抵御氧化损伤,且抑制细胞自噬会抑制Keap1-Nrf2信号通路的激活。此外,BLF通过增加JNK蛋白的磷酸化促进Keap1-Nrf2信号通路的激活,减少氧化应激的奶牛乳腺上皮细胞中Keap1蛋白的表达量,激活Nrf2并促进其核转位,激活下游靶基因及蛋白的表达,从而缓解氧化应激。
[1]
ZHU Y Y, WANG K, JIA X Y, et al. Antioxidant peptides,the guardian of life from oxidative stress[J]. Medicinal Research Reviews, 2024, 44(1):275-364.

[2]
LYU C C, YUAN B, MENG Y, et al. Puerarin alleviates H2O2-induced oxidative stress and blood-milk barrier impairment in dairy cows[J]. International Journal of Molecular Sciences, 2023, 24(9):7742.

[3]
LI H, ZHANG Y F, LI R, et al. Effect of seasonal thermal stress on oxidative status,immune response and stress hormones of lactating dairy cows[J]. Animal Nutrition, 2021, 7(1):216-223.

[4]
ABUELO A, HERNÁNDEZ J, BENEDITO J L, et al. The importance of the oxidative status of dairy cattle in the periparturient period:revisiting antioxidant supplementation[J]. Journal of Animal Physiology and Animal Nutrition, 2015, 99(6):1003-1016.

[5]
GU Y P, XUE F, XIAO H R, et al. Bamboo leaf flavonoids suppress oxidative stress-induced senescence of HaCaT cells and UVB-induced photoaging of mice through p38 MAPK and autophagy signaling[J]. Nutrients, 2022, 14(4):793.

[6]
曹洪志, 李成贤, 李雪梅, 等. 竹叶提取物对肉牛生产性能、瘤胃发酵特征及微生物数量的影响[J]. 饲料研究, 2022, 45(1):15-19.

CAO H Z, LI C X, LI X M, et al. Effects of bamboo leaf extract on production performance,rumen fermentation characteristics and rumen microbial populations of beef cattle[J]. Feed Research, 2022, 45(1):15-19. (in Chinese)

[7]
栗明月, 方洛云, 苏汉书, 等. 竹叶提取物对奶牛泌乳性能、血液常规指标、免疫和抗氧化性能的影响[J]. 动物营养学报, 2019, 31(7):3302-3309.

LI M Y, FANG L Y, SU H S, et al. Effects of bamboo leaf extracts on lactation performance,blood routine indexes and immune and antioxidant ability of dairy cows[J]. Chinese Journal of Animal Nutrition, 2019, 31(7):3302-3309. (in Chinese)

[8]
李义, 童津津, 栗明月, 等. 竹叶提取物对热应激奶牛泌乳性能及血清生化、抗氧化和免疫指标的影响[J]. 动物营养学报, 2021, 33(2):900-912.

DOI

LI Y, TONG J J, LI M Y, et al. Effects of bamboo leaf extract on lactation performance and indexes of biochemical,antioxidant and immune in serum of dairy cows during heat stress[J]. Chinese Journal of Animal Nutrition, 2021, 33(2):900-912. (in Chinese)

[9]
侯昆, 童津津, 楚康康, 等. 竹叶黄酮与青蒿提取物对患隐性乳房炎奶牛产奶性能、乳中体细胞数及血清免疫和抗氧化相关指标的影响[J]. 动物营养学报, 2019, 31(9):4286-4295.

DOI

HOU K, TONG J J, CHU K K, et al. Effects of bamboo leaf flavonoids and Artemisia annua extract on milk performance,milk somatic cell count and serum immune and antioxidant related indexes of dairy cows with subclinical mastitis[J]. Chinese Journal of Animal Nutrition, 2019, 31(9):4286-4295. (in Chinese)

[10]
詹经纬, 李欣, 关淑文, 等. 竹叶黄酮对过氧化氢诱导的奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2023, 35(4):2616-2628.

DOI

ZHAN J W, LI X, GUAN S W, et al. Protective effect of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by hydrogen peroxide[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2616-2628. (in Chinese)

DOI

[11]
MAGESH S, CHEN Y, HU L Q. Small molecule modulators of Keap1-Nrf2-ARE pathway as potential preventive and therapeutic agents[J]. Medicinal Research Reviews, 2012, 32(4):687-726.

DOI PMID

[12]
李建凤, 赵佳桢, 沈义媛, 等. 竹叶黄酮对热应激诱导奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2022, 34(1):626-639.

DOI

LI J F, ZHAO J Z, SHEN Y Y, et al. Protective effects of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by heat stress[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):626-639. (in Chinese)

[13]
YU Y, LI Z M, CAO G T, et al. Bamboo leaf flavonoids extracts alleviate oxidative stress in HepG2 cells via naturally modulating reactive oxygen species production and Nrf2-mediated antioxidant defense responses[J]. Journal of Food Science, 2019, 84(6):1609-1620.

DOI PMID

[14]
YANG C M, WANG T X, ZHAO Y J, et al. Flavonoid 4,4'-dimethoxychalcone induced ferroptosis in cancer cells by synergistically activating Keap1/Nrf2/HMOX1 pathway and inhibiting FECH[J]. Free Radical Biology & Medicine, 2022, 188:14-23.

[15]
KLIONSKY D J, EMR S D. Autophagy as a regulated pathway of cellular degradation[J]. Science, 2000, 290(5497):1717-1721.

DOI PMID

[16]
MIZUSHIMA N, KOMATSU M. Autophagy:renovation of cells and tissues[J]. Cell, 2011, 147(4):728-741.

[17]
FILOMENI G, DE ZIO D, CECCONI F. Oxidative stress and autophagy:the clash between damage and metabolic needs[J]. Cell Death and Differentiation, 2015, 22(3):377-388.

[18]
高婷, 王子旭, 陈祝茗, 等. ROS介导的氧化应激与自噬[J]. 中国畜牧兽医, 2018, 45(3):656-662.

DOI

GAO T, WANG Z X, CHEN Z M, et al. Oxidative stress and autophagy mediated by reactive oxygen species[J]. China Animal Husbandry & Veterinary Medicine, 2018, 45(3):656-662. (in Chinese)

[19]
牛慧. 苦参碱对无乳链球菌诱导的奶牛乳腺上皮细胞炎症反应的保护机制研究[D]. 硕士学位论文. 北京: 北京农学院, 2022.

NIU H. Study on the protective mechanism of matrine against bovine mammary epithelial cells inflammation induced by Streptococcus agalactiae[D]. Master's Thesis. Beijing: Beijing University of Agriculture, 2022. (in Chinese)

[20]
GOODE A, BUTLER K, LONG J, et al. Defective recognition of LC3B by mutant SQSTM1/p62 implicates impairment of autophagy as a pathogenic mechanism in ALS-FTLD[J]. Autophagy, 2016, 12(7):1094-1104.

DOI PMID

[21]
TAN C T, CHANG H C, ZHOU Q L, et al. MOAP-1-mediated dissociation of p62/SQSTM1 bodies releases Keap1 and suppresses Nrf2 signaling[J]. EMBO Reports, 2021, 22(1):e50854.

[22]
MIZUSHIMA N, YOSHIMORI T, LEVINE B. Methods in mammalian autophagy research[J]. Cell, 2010, 140(3):313-326.

DOI PMID

[23]
CHANG C C, HUANG T Y, CHEN H Y, et al. Protective effect of melatonin against oxidative stress-induced apoptosis and enhanced autophagy in human retinal pigment epithelium cells[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:9015765.

[24]
CAO S T, WANG C C, YAN J T, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting Parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology & Medicine, 2020, 147:8-22.

[25]
NARENDRA D, TANAKA A, SUEN D F, et al. Parkin is recruited selectively to impaired mitochondria and promotes their autophagy[J]. The Journal of Cell Biology, 2008, 183(5):795-803.

[26]
HAIDAR B, KISS R S, SAROV-BLAT L, et al. Cathepsin D,a lysosomal protease,regulates ABCA1-mediated lipid efflux[J]. The Journal of Biological Chemistry, 2006, 281(52):39971-39981.

[27]
DENNEMÄRKER J, LOHMÜLLER T, MÜLLER S, et al. Impaired turnover of autophagolysosomes in cathepsin L deficiency[J]. Biological Chemistry, 2010, 391(8):913-922.

DOI PMID

[28]
THIRUSANGU P, PATHOULAS C L, RAY U, et al. Quinacrine-induced autophagy in ovarian cancer triggers cathepsin-L mediated lysosomal/mitochondrial membrane permeabilization and cell death[J]. Cancers, 2021, 13(9):2004.

[29]
LI D, SHAO R, WANG N, et al. Sulforaphane activates a lysosome-dependent transcriptional program to mitigate oxidative stress[J]. Autophagy, 2021, 17(4):872-887.

[30]
SETTEMBRE C, DI MALTA C, POLITO V A, et al. TFEB links autophagy to lysosomal biogenesis[J]. Science, 2011, 332(6036):1429-1433.

DOI PMID

[31]
LU H C, FAN Y B, QIAO C Z, et al. TFEB inhibits endothelial cell inflammation and reduces atherosclerosis[J]. Science Signaling, 2017, 10(464):eaah4214.

[32]
KIM J, KUNDU M, VIOLLET B, et al. AMPK and mTOR regulate autophagy through direct phosphorylation of Ulk1[J]. Nature Cell Biology, 2011, 13(2):132-141.

DOI PMID

[33]
TRIPATHI D N, CHOWDHURY R, TRUDEL L J, et al. Reactive nitrogen species regulate autophagy through ATM-AMPK-TSC2-mediated suppression of mTORC1[J]. Proceedings of the National Academy of Sciences of the United States of America, 2013, 110(32):E2950-E2957.

[34]
YOUNG N P, KAMIREDDY A, VAN NOSTRAND J L, et al. AMPK governs lineage specification through Tfeb-dependent regulation of lysosomes[J]. Genes & Development, 2016, 30(5):535-552.

[35]
POPP L, GOMEZ E, ORJI W, et al. TFEB-mediated activation of the lysosome-autophagy system affects the transduction efficiency of adeno-associated virus 2[J]. Virology, 2017, 510:1-8.

DOI PMID

[36]
JEON S M, CHANDEL N S, HAY N. AMPK regulates NADPH homeostasis to promote tumour cell survival during energy stress[J]. Nature, 2012, 485(7400):661-665.

[37]
WU S B, WU Y T, WU T P, et al. Role of AMPK-mediated adaptive responses in human cells with mitochondrial dysfunction to oxidative stress[J]. Biochimica et Biophysica Acta, 2014, 1840(4):1331-1344.

[38]
WU H Q, DING J, LI S H, et al. Metformin promotes the survival of random-pattern skin flaps by inducing autophagy via the AMPK-mTOR-TFEB signaling pathway[J]. International Journal of Biological Sciences, 2019, 15(2):325-340.

DOI PMID

[39]
BUELNA-CHONTAL M, ZAZUETA C. Redox activation of Nrf2 & NF-κB:a double end sword?[J]. Cellular Signalling, 2013, 25(12):2548-2557.

[40]
XU B Y, TANG X D, CHEN J, et al. Rifampicin induces clathrin-dependent endocytosis and ubiquitin-proteasome degradation of MRP2 via oxidative stress-activated PKC-ERK/JNK/p38 and PI3K signaling pathways in HepG2 cells[J]. Acta Pharmacologica Sinica, 2020, 41(1):56-64.

[41]
金晓露. 白藜芦醇抵御奶牛乳腺上皮细胞氧化应激的作用机制研究[D]. 博士学位论文. 杭州: 浙江大学, 2016.

JIN X L. Mechanisms underlying the cytoprotective effects of resveratrol against oxidative stress in bovine mammary epithelial cells[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2016. (in Chinese)

[42]
HSU W H, HSIEH Y S, KUO H C, et al. Berberine induces apoptosis in SW620 human colonic carcinoma cells through generation of reactive oxygen species and activation of JNK/p38 MAPK and FasL[J]. Archives of Toxicology, 2007, 81(10):719-728.

[43]
HUANG Z Q, WANG C Q, WEI L, et al. Resveratrol inhibits EMMPRIN expression via P38 and ERK1/2 pathways in PMA-induced THP-1 cells[J]. Biochemical and Biophysical Research Communications, 2008, 374(3):517-521.

DOI PMID

[44]
SÁNCHEZ-ÁLVAREZ M, STRIPPOLI R, DONADELLI M, et al. Sestrins as a therapeutic bridge between ROS and autophagy in cancer[J]. Cancers, 2019, 11(10):1415.

[45]
YAMAMOTO M, KENSLER T W, MOTOHASHI H. The KEAP1-NRF2 system:a thiol-based sensor-effector apparatus for maintaining redox homeostasis[J]. Physiological Reviews, 2018, 98(3):1169-1203.

[46]
李文娟. Nfr2激动剂通过促进自噬对泛素化蛋白聚合物的清除保护氧化应激诱导的胰岛β细胞损伤的作用及机制[D]. 博士学位论文. 济南:山东大学, 2014. LI W J.NRF2 activator enhances autophagic clearance and viability of beta-cells in a setting of oxidative stress[D].Ph.D.Thesis. Jin'an: Shandong University,2014. (in Chinese)

Outlines

/