RESEARCH PAPER

Alleviating Effect of Bamboo Leaf Flavonoids on Oxidative Damage in Bovine Mammary Epithelial Cells and Its Effect on Milk Fat Synthesis

  • ZHANG Ao , 1 ,
  • LI Xin 1 ,
  • ZHAO Yuchao 1 ,
  • BAI Sarvvl , 2, * ,
  • JIANG Linshu , 1, *
Expand
  • 1 Key Laboratory of Dairy Nutrition in Beijing, College of Animal Science and Technology, Beijing University of Agriculture, Beijing 102206, China
  • 2 Beijing Shounong Animal Husbandry Development Co., Ltd., Beijing 100076, China
*BAI Sarvvl, E-mail: ;
JIANG Linshu, professor, E-mail:

Received date: 2024-02-23

  Online published: 2024-08-12

Abstract

The purpose of this study was to explore the alleviating effect of bamboo leaf flavonoids (BLF) on oxidative damage in bovine mammary epithelial cells (BMECs) and its effect on milk fat synthesis. With BMECs as study subjects, the following operations were carried out: cells were seeded in maintenance medium without any substance for 24 h to set the control group 1; cells were seeded in maintenance medium containing 800 μmol/L hydrogen peroxide (H2O2) for 8 h to set the injury group; cells were seeded in maintenance medium containing 80 μg/mL BLF for 24 h to set the control group 2; cells were seeded in maintenance medium containing 80 μg/mL BLF for 24 h, then replaced in maintenance medium containing 800 μmol/L H2O2 for 8 h to set the protection group. The antioxidant indexes in cells were examined using the kit method, the mRNA relative expression levels of antioxidative, apoptosis and milk fat-related genes were measured by real-time fluorescence quantification PCR, and the expression levels of milk fat-related proteins were measured by Western blotting. The results showed as follows: 1) compared with the injury group, the activities of superoxide dismutase (SOD), catalase (CAT) and glutathione peroxidase (GSH-Px) in cells of the protection group were significantly increased (P<0.05), and the malondialdehyde (MDA) content was significantly decreased (P<0.05). 2) Compared with the control group 1, the content of reactive oxygen species (ROS) in cells of the injured group was significantly increased (P<0.05), and BLF pretreatment could significantly inhibit ROS production in oxidative damaged cells (P<0.05). 3) Compared with the injured group, the mRNA relative expression levels of apoptotic genes B cell lymphoma/leukemia-2-related X protein (Bax) and cysteine aspartate protease 3 (Caspase3) in cells of the protection group were significantly decreased (P<0.05), the mRNA relative expression levels of anti-apoptotic gene B lymphocytoma 2 (Bcl2) was significantly increased (P<0.05), and the mRNA relative expression levels of antioxidant genes heme oxygenase-1 (HO-1), quinone oxidoreductase 1 (NQO1) and nuclear transcription factor E2-associated factor 2 (Nrf2) were significantly increased (P<0.05). 4) Compared with the control group 1, the lipid droplets (LDs) content decreased in the injured group, the LDs content increased in the protection group, and the triglycerides (TGs) content did not return to normal level but was significantly different compared with the injured group (P<0.05). 5) Compared with the injured group, the mRNA relative expression levels of acetyl-CoA carboxylase α (ACACA), acetyl-CoA synthetase 2 (ACSS2), fatty acid-binding protein 3 (FABP3), fatty acid synthetase (FASN), peroxisome proliferator-activated receptor γ (PPARγ), cholesterol regulatory element binding protein 1 (SREBP1) and stearoyl-CoA desaturase (SCD) in cells of the protection group were significantly increased (P<0.05). The relative expression levels of milk fat synthesis related proteins ACSS2, FABP3, PPARγ and SCD in cells were all significantly increased of the protection group compared with the control group 1 (P<0.05). To sum up, BLF can not only by promoting the expression of Nrf2 and its downstream antioxidant genes, thus enhance the antioxidant capacity of BMECs, reduce the oxidative damage caused by oxidative stress, and BLF can also effectively improve the expression of milk fat related genes and proteins, thus promote the synthesis of milk fat, effectively reduce the effects of oxidative damage on the body milk fat synthesis.

Cite this article

ZHANG Ao , LI Xin , ZHAO Yuchao , BAI Sarvvl , JIANG Linshu . Alleviating Effect of Bamboo Leaf Flavonoids on Oxidative Damage in Bovine Mammary Epithelial Cells and Its Effect on Milk Fat Synthesis[J]. Chinese Journal of Animal Nutrition, 2024 , 36(8) : 5340 -5352 . DOI: 10.12418/CJAN2024.454

正常情况下,动物机体在进行生理活动过程中会不断产生自由基,此时有相应的抗氧化防御系统对其进行清除,从而使机体保持动态平衡[1]。然而,过多的自由基会使抗氧化酶的产生减少,引起内源性抗氧化物水平下降,导致体内氧化和抗氧化作用之间的失衡,发生内源性氧化应激,导致自由基重要分子损伤且修复损伤能力下降,影响自由基的正常生理功能,诱导氧化应激的发生[1-2]。奶牛发生氧化应激后,会导致机体发生功能障碍,加剧炎症反应,增加奶牛机体对疾病的易感性,易患子宫内膜炎[3]、乳腺炎[4]和酮病[5]等,严重影响生产性能。此外,全球对优质牛奶的需求逐年增加,牛奶质量已成为消费者共同关注的焦点[6]。乳脂作为奶牛养殖的主要目标性状,不仅影响牛奶的风味和营养价值,也是乳制品行业的核心竞争力标志之一[7]。研究表明,乳脂与乳蛋白比率能够评估奶牛代谢状态,识别患有能量负平衡、亚临床酸中毒和酮病风险较高的奶牛[8]。因此,缓解奶牛氧化损伤,并促进乳脂合成,对于奶牛健康养殖至关重要。
竹叶黄酮(BLF)作为天然植物化合物,具有抗菌[9]、抗炎[10]、抗氧化[11]、抗衰老[12]和降脂[13]等多种生物活性,并且具有无残留、无污染的优点,在提高动物生产性能等方面有着广阔的应用前景。本团队前期研究结果表明,BLF可提高奶牛乳腺上皮细胞(BMECs)活性,提高BMECs的抗氧化能力,减少活性氧(ROS)的生成,降低线粒体膜电位(MMP)水平和凋亡相关基因的表达,还能通过哺乳动物雷帕霉素靶蛋白(mTOR)信号通路转导影响乳蛋白合成[14]。李建凤等[15]试验表明,5 μg/mL BLF能够缓解热应激对BMECs的氧化损伤,这是通过调控核转录因子E2相关因子2(Nrf2)信号通路中的关键基因达到的。侯昆等[16]研究表明,BLF能够提高奶牛产奶量、4%乳脂校正乳和乳蛋白率,增强机体抗氧化力和免疫力,同时还能降低患隐性乳房炎奶牛牛乳中的体细胞数(SCC)。栗明月[17]的研究同样表明,在奶牛饲粮中添加30 g/d竹叶提取物能够显著提高乳糖率、4%乳脂校正乳产量和乳蛋白率,这是由于竹叶提取物能够提高血液中白细胞介素和干扰素含量,激活Janus激酶(JAK)-信号转导子和转录激活子(STAT)信号通路,提高血液中营养物质及免疫球蛋白含量,从而激活mTOR信号通路,影响乳蛋白合成。上述研究表明,BLF能够提高BMECs的抗氧化能力,影响乳脂合成,但其具体机制尚未得知。因此,本试验在利用过氧化氢(H2O2)诱导BMECs氧化应激模型的基础上,研究BLF缓解BMECs氧化损伤及影响乳脂合成和代谢通路的作用机制,以期为BLF在奶牛生产中的应用提供理论依据。

1 材料与方法

1.1 试验材料

本试验所用BLF由浙江大学张英教授馈赠,总黄酮含量为98%;BMECs由中国农业科学院畜牧所智慧畜牧业创新团队惠赠;DMEM/F12培养基、澳洲胎牛血清(FBS)和青霉素/链霉素溶液均购自美国Gibco公司;谷胱甘肽过氧化物酶(GSH-Px)测试盒、过氧化氢酶(CAT)测定试剂盒、超氧化物歧化酶(SOD)测试盒、丙二醛(MDA)测试盒、ROS测定试剂盒均购自南京建成生物工程研究所;油红O染液、Tris和5×TBST购自北京索莱宝科技有限公司;BCA蛋白浓度测定试剂盒、RIPA裂解液[带苯甲基磺酰氟(PMSF)]、十二烷基硫酸钠(SDS)-聚丙烯酰胺凝胶电泳(PAGE)凝胶配制试剂盒、QuickBlockTM Western一抗稀释液、彩色预染蛋白(6.5~270 ku)、聚偏二氟乙烯(PVDF)膜、QuickBlockTM Western封闭液和超敏ECL化学发光试剂盒均购自上海碧云天生物技术有限公司;甘油三酯(TGs)测定试剂盒购自北京普利莱基因技术有限公司;Trizol购自北京博尔优生物技术有限公司;DEPC水购自北京天根生化科技有限公司;cDNA反转录试剂盒和TB GreenTM Premix Ex Taq Ⅱ购自湖南艾科瑞生物;SDS购自上海麦克林生化科技有限公司;快速转膜液(20×)购自苏州新赛美生物科技有限公司;β-肌动蛋白(β-actin)抗体购自美国CST公司;乙酰辅酶A羧化酶α(ACACA)、乙酰辅酶A合成酶2(ACSS2)、脂肪酸合成酶(FASN)、过氧化物酶体增殖物激活受体γ(PPARγ)、胆固醇调节元件结合蛋白1(SREBP1)、硬脂酰辅酶A去饱和酶(SCD)抗体均购自美国Santa Cruz生物科技公司;脂肪酸结合蛋白3(FABP3)抗体购自上海泊湾生物科技公司;羊抗兔二抗和羊抗鼠二抗购自北京兰博利德商贸有限公司。

1.2 试剂配制

完全培养基:DMEM/F12培养基中加入10% FBS与1%青霉素/链霉素溶液即制成完全培养基,混匀后4 ℃保存备用。
维持培养基:DMEM/F12培养基中加入2% FBS与1%青霉素/链霉素溶液即制成维持培养基,混匀后4 ℃保存备用。

1.3 试验设计

本团队前期已经成功构建H2O2诱导的BMECs氧化应激的模型,并且确定了选择浓度为800 μmol/L H2O2处理BMECs 8 h作为构建氧化应激模型的最佳条件,BLF的最佳作用浓度为80 μg/mL[18]
对照组1:细胞接种于不添加任何物质的维持培养基中培养24 h;损伤组(单独H2O2诱导氧化应激):细胞接种于含800 μmol/L H2O2的维持培养基中处理8 h;对照组2(单独BLF预处理):细胞接种于含80 μg/mL BLF的维持培养基中培养24 h;保护组(先BLF预处理,然后H2O2诱导氧化应激):细胞接种于含80 μg/mL BLF的维持培养基中培养24 h,而后更换含800 μmol/L H2O2的维持培养基继续处理8 h。每组设置3个重复。

1.4 试验方法

1.4.1 细胞培养

细胞复苏:将冻存细胞从液氮中取出,立刻放入37 ℃水浴锅中不断摇动,使其迅速融化;回温后喷以70%酒精并擦拭,移入无菌操作台内;将冻存细胞移至已加入2 mL细胞培养液的离心管中,混匀,离心(95×g,3 min),弃上清液;加完全培养基重悬,重悬后接种于6 cm培养皿,放入CO2培养箱培养;过夜后更换培养液,继续培养。
细胞传代:当细胞生长密度达到80%以上时,进行传代。用磷酸盐缓冲液(PBS)洗涤细胞2次,再加入1 mL胰酶放入细胞培养箱孵育1 min;随后取出细胞,用2 mL完全培养基终止消化,收集细胞进行离心,离心后去上清,重悬,吹打混匀细胞,将细胞悬液移入新培养皿中,放入CO2培养箱培养。

1.4.2 抗氧化指标的检测

将BMECs接种于6孔板中,待6孔板中细胞密度达到80%~90%,吸出细胞完全培养液,PBS洗2遍,按照1.3试验设计分组进行处理。培养结束后,使用酶标仪按照CAT、SOD、GSH-Px和MDA试剂盒说明书检测BMECs内CAT、SOD、GSH-Px活性和MDA含量,在450 nm下测定MDA含量和SOD活性,在405 nm下测定CAT活性,在412 nm下测定GSH-Px活性,并根据说明书上公式计算SOD、CAT和GSH-Px活性和MDA含量。

1.4.3 ROS含量的检测

在6孔板的每个孔底部放置一片细胞爬片,分别接种2 mL浓度为1×10⁵个/mL的BMECs细胞悬浮液。将培养板放入37 ℃、5% CO2培养箱中进行细胞培养,直至细胞达到大约80%的融合度。按照1.3试验设计分组进行处理后,用PBS洗涤细胞2次,加入含有10 μmol/L二氯二氢荧光素-乙酸乙酯(DCFH-DA)的无血清培养基,并在避光条件下将培养板放入细胞培养箱中孵育30 min。而后去除含探针的培养液,并用PBS通过反复吹打使细胞从培养板上脱落,收集细胞至2 mL离心管中。细胞经过2次清洗后,离心(95×g,5 min),然后将细胞重悬于PBS中,制备为单细胞悬液。最后,使用倒置荧光显微镜对样本进行拍照观察,绿色荧光表达越多,说明ROS含量越高。

1.4.4 抗氧化和凋亡相关基因表达的检测

细胞总RNA的提取:BMECs按照1.3试验设计分组进行处理后,将培养皿中的细胞培养液吸出,洗涤细胞2次,每个培养皿加800 μL Trizol裂解细胞,将细胞全部刮下,转移到无RNA酶的EP管中,在EP管中加入160 μL氯仿混匀静置2 min,静置后放入离心机中保持温度4 ℃离心(12 000×g,15 min),得到上层水相,将水相再转移到新的无RNA酶EP管中,在管中加入等体积的异丙醇,混匀静置10 min,随后放入4 ℃离心机中12 000×g离心10 min;弃去废液,用1 mL 75%乙醇清洗EP管,重复清洗2次,离心,吸清上清,干燥,加入DEPC水溶解RNA,进行后续试验[15]
RNA纯度和浓度的检测:使用NanoDrop-2000分光光度计进行检测,打开仪器后需用DEPC水进行3次校准,校准后从EP管中取1 μL RNA溶液滴加在感应器上进行测量,测量结束后还需用DEPC水进行校准,随后再测量其他组的RNA浓度,重复操作,直至测完所有试验组,记录每组的RNA浓度。
引物设计:通过实时荧光定量PCR检测抗氧化和凋亡相关基因[核因子E2相关因子2(Nrf2)、血红氧合酶-1(HO-1)、醌氧化还原酶1(NQO1)、B淋巴细胞瘤2(Bcl2)、Bcl2相关X蛋白(Bax)、半胱氨酸天冬氨酸蛋白酶3(Caspase3)]的表达情况,cDNA合成和PCR反应体系参照牛慧[19]的方法。以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,利用2-ΔΔCt方法计算目的基因mRNA的相对表达量。抗氧化和凋亡相关基因实时荧光定量PCR相关引物见表1
表1 抗氧化和凋亡相关基因实时荧光定量PCR相关引物

Table 1 Primers associated to RT-qPCR for antioxidant and apoptosis-related genes

基因
Genes
引物序列
Primer sequences (5'—3')
产物大小
Product size/bp
核因子E2相关因子2
Nrf2
F:AGGACATGGATTTGATTGAC
R:TACCTGGGAGTAGTTGGCA
202
血红氧合酶-1
HO-1
F:GGCAGCAAGGTGCAAGA
R:GAAGGAAGCCAGCCAAGAG
225
醌氧化还原酶1
NQO1
F:GGTGCTCATAGGGGAGTTCG
R:GGGAGTGTGCCCAATGCTAT
154
B淋巴细胞瘤2
Bcl2
F:GGATGACCGAGTACCTGAACC
R:GCCCAGATAGGCACCCAG
139
Bcl2相关X蛋白
Bax
F:TGGACATTGGACTTCCTTCG
R:CCAGCCACAAAGATGGTCAC
133
半胱氨酸天冬氨酸蛋白酶3
Caspase3
F:AAGCCATGGTGAAGAAGGAA
R:GGCAGGCCTGAATAATGAAA
242
甘油醛-3-磷酸脱氢酶
GAPDH
F:TGGAAAGGCCATCACCATCT
R:CCCACTTGATGTTGGCAG
235

1.4.5 乳脂含量的检测

脂滴(LDs)含量的测定:采用油红O脂肪染色法进行检测。先将BMECs接种在6孔培养板中,培养12 h使细胞贴壁。而后对细胞进行洗涤,然后按照1.3试验设计分组进行处理。细胞培养完成后,去除培养液,用D’Hanks缓冲液洗涤细胞,使用2 mL 4%多聚甲醛固定细胞30~40 min后,弃去溶液,并用D’Hanks缓冲液再次洗涤细胞2次;加入1 mL油红O染液,孵育1 h,而后舍弃油红O染液,并对细胞进行洗涤;最后,在显微镜下观察细胞的染色情况以测定LDs含量。
TGs含量的测定:参照侯昆[20]的方法进行检测。BMECs按照1.3试验设计分组进行处理,在细胞培养完成后,去除上清液,并用PBS洗涤细胞;加入0.1 mL的TGs试剂盒提供的裂解液,处理细胞10 min,收集细胞用于蛋白浓度的测定。将收集到的样品置于70 ℃水浴锅中加热10 min,然后在室温下离心以获得上清液。按4∶1比例混合试剂R1和R2作为TGs工作液。将TGs标准品进行倍比稀释,制备成浓度范围在62.2~500 μmol/L的标准溶液。在96孔板中加入10 μL的样品,并用TG工作液补充至200 μL。使用10 μL的蒸馏水作为空白对照进行调零,在37 ℃反应15 min后测定各孔的吸光度(OD)值,根据标准曲线计算出样品中TGs的含量,通过每毫克蛋白浓度对其进行校正。

1.4.6 乳脂合成相关基因表达的检测

实时荧光定量PCR检测细胞内乳脂合成相关基因[乙酰辅酶A羧化酶α(ACACA)、乙酰辅酶A合成酶2(ACSS2)、脂肪酸结合蛋白3(FABP3)、脂肪酸合成酶(FASN)、过氧化物酶体增殖物激活受体γ(PPARγ)、胆固醇调节元件结合蛋白1(SREBP1)和硬脂酰辅酶A去饱和酶(SCD)]的表达情况,具体操作同1.4.4。乳脂合成相关基因实时荧光定量PCR相关引物见表2
表2 乳脂合成相关基因实时荧光定量PCR相关引物

Table 2 Primers associated to RT-qPCR for genes involved in milk fat synthesis

基因
Genes
引物序列
Primer sequences (5'—3')
产物大小
Product size/bp
乙酰辅酶A羧化酶α
ACACA
F:AGCTGAATTTTCGCAGCAAT
R:GGTTTTCTCCCCAGGAAAAG
116
乙酰辅酶A合成酶2
ACSS2
F:GGCGAATGCCTCTACTGCTT
R:GGCCAATCTTTTCTCTAATCTGCTT
156
脂肪酸结合蛋白3
FABP3
F:GAACTCGACTCCCAGCTTGAA
R:AAGCCTACCACAATCATCGAAG
182
脂肪酸合成酶
FASN
F:GCATCGCTGGCTACTCCTAC
R:GTGTAGGCCATCACGAAGGT
118
过氧化物酶体增殖物激活受体γ
PPARγ
F:GAGCCCAAGTTCGAGTT
R:GGCGGTCTCCACTGAGAATAAT
150
胆固醇调节元件结合蛋白1
SREBP1
F:CACTCGTCTTCCTCTGTCTC
R:GAGTGACTGGTTCTCCATAG
124
硬脂酰辅酶A去饱和酶
SCD
F:TTATTCCGTTATGCCCTTGG
R:GGTAGTTGTGGAAGCCCTCA
237
甘油醛-3-磷酸脱氢酶
GAPDH
F:TGGAAAGGCCATCACCATCT
R:CCCACTTGATGTTGGCAG
181

1.4.7 乳脂合成相关蛋白表达的检测

制备细胞总蛋白样品:将RIPA强裂解液与PMSF按1∶10混合制备成裂解液裂解细胞,放在冰上预冷备用。洗涤细胞2次后加入裂解液,待细胞裂解后,将细胞全部刮下转移至1.5 mL的离心管中,放入离心机,在4 ℃、12 000×g条件下离心10 min,吸取上清液,用BCA检测试剂盒检测总蛋白浓度,并调整所有组的总蛋白浓度为同一数值。细胞总蛋白样品在100 ℃水中煮10 min,放入-80 ℃冰箱中储存。按照说明书要求不同分子质量的蛋白配制不同浓度的分离胶进行电泳。
电泳:上样时在总蛋白样品中加入添加SDS Loading Buffer,将预染蛋白质分子量标准(Marker)与总蛋白样品依次加入到点样孔中;在电泳仪中先使用80 V跑胶30 min,再换成120 V跑至分离胶底部附近处关闭电源。
转膜:根据Marker保留需要检测的目的蛋白,将胶切至合适大小,使用甲醇浸泡PVDF膜,在厚滤纸一侧放上切下来的胶,将PVDF膜覆在胶上,随即再覆上一层厚滤纸,注意排空气泡,将夹子闭合,在400 mA条件下转膜25 min;紧接着用快速封闭液封闭15 min;一抗孵育4 ℃过夜,第2天用TBST洗涤膜3次,每次15 min,然后二抗孵育2 h,TBST洗涤膜3次;利用超敏发光液在化学发光成像仪上进行曝光成像。

1.5 数据统计与分析

试验结果用平均值±标准误(mean±SE)表示。使用Excel 2021进行数据的初步整理,应用SPSS 22.0分析软件进行单因素方差分析,并采用Duncan氏法进行多重比较,以P<0.05作为差异显著标准。将试验结果利用Origin 2023进行绘图展示。

2 结果

2.1 BLF对氧化损伤的BMECs抗氧化能力的影响

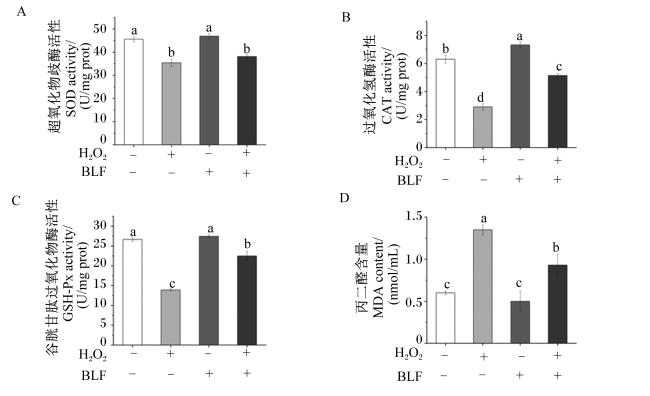
图1可知,损伤组的SOD活性与对照组1相比显著下降(P<0.05),单独添加BLF的对照组2的SOD活性与对照组1差异不显著(P>0.05),用BLF预处理的细胞氧化损伤后SOD活性无法完全恢复正常细胞水平,但与损伤组相比有所提升(P>0.05);CAT和GSH-Px活性与SOD活性结果保持一致,但保护组的CAT和GSH-Px活性与损伤组相比显著提升(P<0.05),单独添加BLF可显著提升CAT的活性(P<0.05);此外,与对照组1相比,损伤组和保护组MDA含量显著升高(P<0.05),用BLF预处理可显著降低氧化损伤的细胞内MDA含量(P<0.05)。上述结果说明,用BLF进行预处理能够提高BMECs的抗氧化能力,缓解氧化损伤。
图1 BLF对氧化损伤的BMECs内抗氧化指标的影响

H2O2:过氧化氢;BLF:竹叶黄酮。数据柱标注不同小写字母表示差异显著,相同小写字母表示差异不显著。下图同。

Fig.1 Effects of BLF on antioxidant indexes in oxidative damaged BMECs

H2O2: hydrogen peroxide; BLF: bamboo leaf flavonoid. Data columns with different small letters mean significant difference (P<0.05), while with the same small letters mean no significant difference (P>0.05). The same as below.

2.2 BLF对氧化损伤的BMECs内ROS含量的影响

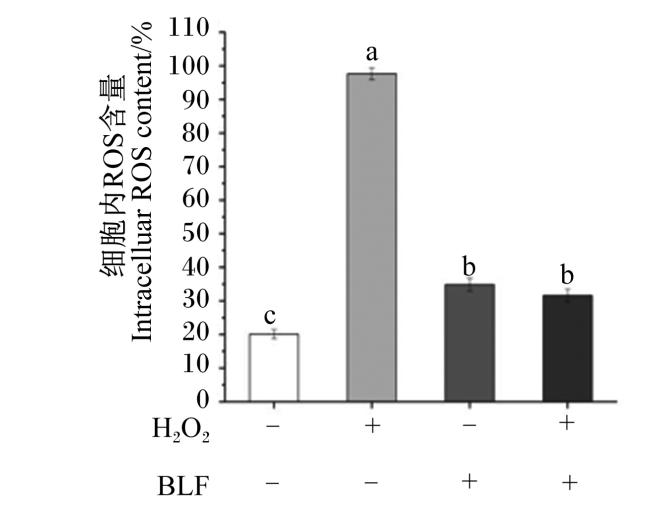
图2可知,与对照组1相比,H2O2刺激引起细胞内ROS含量显著提升(P<0.05),BLF预处理可以显著抑制H2O2刺激诱导的ROS产生(P<0.05)。
图2 BLF对氧化损伤的BMECs内ROS含量的影响

Fig.2 Effects of BLF on ROS content in oxidative damaged BMECs

2.3 BLF对氧化损伤的BMECs内抗氧化和凋亡相关基因表达的影响

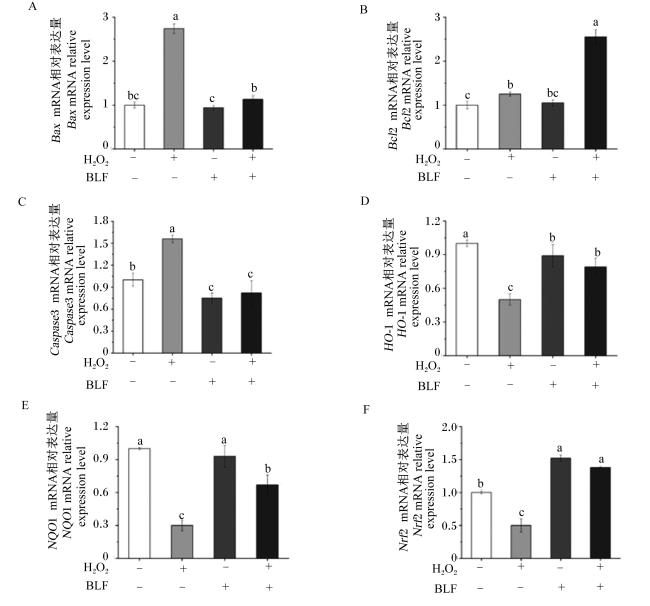
图3可知,与对照组1相比,H2O2诱导氧化损伤后BMECs内的凋亡基因BaxCaspase3,以及Bax的拮抗基因——抗凋亡基因Bcl2的mRNA相对表达量显著升高(P<0.05);使用BLF预处理后可显著降低氧化损伤BMECs内凋亡基因BaxCaspase3的mRNA相对表达量(P<0.05),同时显著升高抗凋亡基因Bcl2的mRNA相对表达量(P<0.05)。当H2O2刺激BMECs时,抗氧化基因(HO-1、NQO1和Nrf2)的mRNA相对表达量显著下降(P<0.05),其中NQO1的mRNA相对表达量下降最多;使用BLF预处理后,上述3种抗氧化基因的mRNA相对表达量显著升高(P<0.05)。
图3 BLF对氧化损伤的BMECs内抗氧化和凋亡相关基因表达的影响

Fig.3 Effects of BLF on expression of antioxidative and apoptosis-related genes in oxidative damaged BMECs

2.4 BLF对氧化损伤的BMECs内乳脂含量的影响

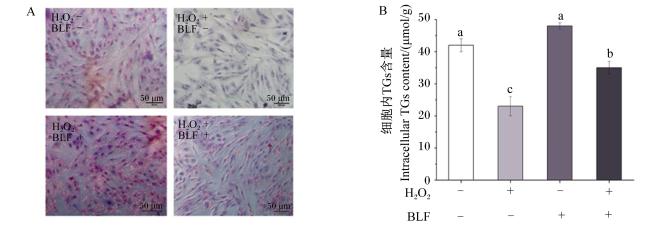
采用油红O染色法观察BMECs内LDs的含量,结果如图4-A所示,与对照组1相比,损伤组细胞内的LDs含量明显减少,但对照组2和保护组细胞内的LDs含量与对照组1相比有所增加。如图4B所示,TGs含量的变化验证了油红O染色中LDs含量变化的结果,在用BLF预处理BMECs后,与对照组1相比,保护组细胞内TGs的含量虽未完全恢复至正常水平,但与损伤组相比差异显著(P<0.05)。
图4 BLF对氧化损伤的BMECs内乳脂含量的影响

Fig.4 Effects of BLF on milk fat content in oxidative damaged BMECs

2.5 BLF对氧化损伤的BMECs内乳脂合成相关基因表达的影响

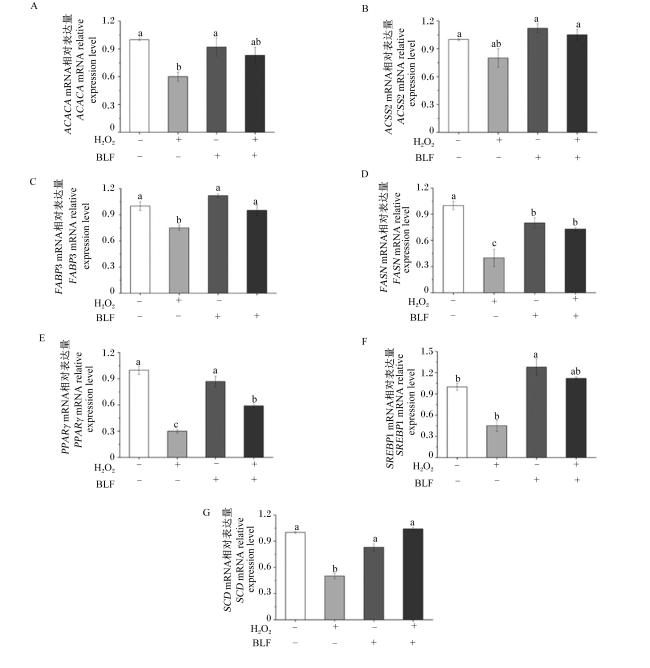
图5可知,与损伤组相比,经BLF预处理的保护组乳脂合成相关基因ACACAACSS2、FABP3、FASNPPARγSREBP1和SCD的mRNA相对表达量均显著升高(P<0.05);保护组内只有FASNPPARγ的mRNA相对表达量未恢复到正常水平,与对照组1相比显著降低(P<0.05),ACACAACSS2、FABP3、SREBP1和SCD的mRNA相对表达量与对照组1相比差异均不显著(P>0.05)。
图5 BLF对氧化损伤的BMECs内乳脂合成相关基因表达的影响

Fig.5 Effects of BLF on expression of milk fat synthesis-related genes in oxidative damaged BMECs

2.6 BLF对氧化损伤的BMECs内乳脂合成相关蛋白表达的影响

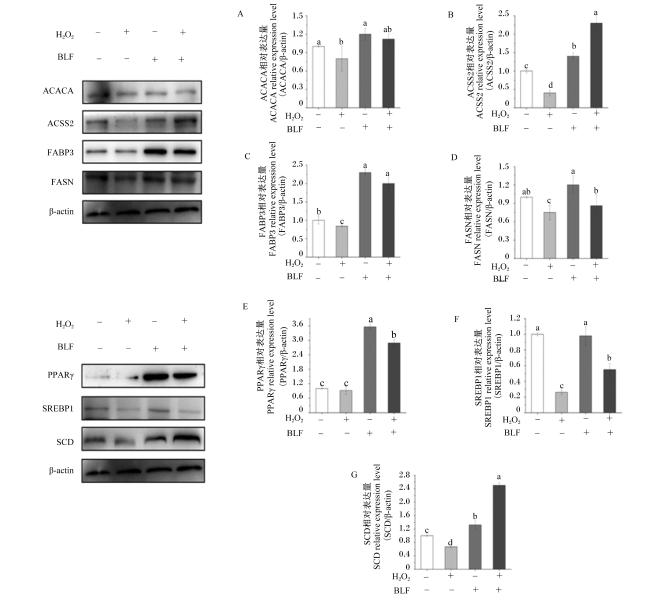
图6所示,氧化损伤的BMECs经BLF预处理后会激活与乳脂合成相关蛋白的表达,除SREBP1的相对表达量没有恢复到正常水平,仍显著低于对照组1(P<0.05)外,FASN、ACACA、ACSS2、FABP3、PPARγ和SCD的相对表达量均恢复到正常水平,ACSS2、FABP3、PPARγ和SCD的相对表达量甚至显著高于对照组1(P<0.05)。
图6 BLF对氧化损伤的BMECs内乳脂合成相关蛋白表达的影响

ACACA:乙酰辅酶A羧化酶α acetyl-CoA carboxylase α;ACSS2:乙酰辅酶A合成酶2 acetyl-CoA synthetase 2;FABP3:脂肪酸结合蛋白3 fatty acid-binding protein 3;FASN:脂肪酸合成酶 fatty acid synthetase; PPARγ:过氧化物酶体增殖物激活受体γ peroxisome proliferator-activated receptor γ;SREBP1:胆固醇调节元件结合蛋白1 cholesterol regulatory element binding protein 1;SCD:硬脂酰辅酶A去饱和酶stearoyl-CoA desaturase;β-actin:β-肌动蛋白。

Fig.6 Effects of BLF on expression of milk fat synthesis-related proteins in oxidative damaged BMECs

3 讨论

ROS在一定的含量范围内具有促进细胞正常功能的作用,但其含量一旦超过了机体抗氧化系统消除ROS的能力,会对细胞和组织造成功能障碍并产生实质性的伤害,从而启动抗氧化防御系统[21]。研究发现,机体内的初级抗氧化防御系统包括酶类抗氧化系统和非酶类抗氧化系统,其中酶类抗氧化系统由SOD、CAT和GSH-Px等体内内源的抗氧化酶所组成;而非酶类抗氧化防御系统由维生素E、维生素C和β-胡萝卜素组成[1,22-23]。ROS的产生会导致抗氧化防御系统失衡,从而导致氧化应激的发生。SOD作为抗氧化酶,是细胞进行抗氧化应激的第1道防线,GSH-Px能够清除细胞在呼吸代谢过程中产生的过量过氧化物和羟自由基[24]。MDA作为脂质过氧化的产物,过量会对细胞产生严重损伤。在本研究中,添加BLF能够显著提高氧化损伤后BMECs内SOD、CAT和GSH-Px等抗氧化酶的表达,同时降低细胞内MDA和ROS的含量。这与王宇彤等[14]的试验结果一致,说明BLF能够增强发生氧化损伤的BMECs的抗氧化能力,缓解氧化损伤。
Bcl2是一种重要的抗凋亡基因,Bax是一种重要的促凋亡基因,它们定位于线粒体膜表面,其比值可作为线粒体通透性损伤的重要指标,反映细胞的凋亡状态[25]Bcl2通过拮抗Bax维持线粒体膜通透性,阻止半胱氨酸天冬氨酸蛋白酶(Caspase)蛋白的激活,进而发挥抗凋亡作用[26]。在本研究中,BLF预处理能够显著降低氧化损伤的BMECs内BaxCaspase3的mRNA相对表达量,同时显著升高Bcl2的mRNA相对表达量,说明BLF能够有效缓解细胞凋亡和线粒体损伤。Nrf2是一种重要的抗氧化应激基因,可调控大约250个抗氧化基因,如HO-1、Nrf2和NQO1等[27]。其中HO-1是Nrf2下游的主要抗氧化基因,可有效介导抗氧化应激[28]。在本研究中,BLF预处理能够显著升高氧化损伤的BMECs内HO-1、NQO1和Nrf2的mRNA相对表达量,说明BLF对BMECs的氧化损伤具有保护作用,其是通过激活Nrf2/HO-1信号通路抑制ROS的形成,从而保护BMECs免受氧化应激损伤[15]
奶牛在围产期,循环中过多的血脂和低抗氧化状态与氧化应激有关,氧化应激与炎症增加有关[29]。哺乳早期奶牛ROS产量增加可能与游离脂肪酸浓度增加和过氧化脂质形成增加有关。血浆游离脂肪酸和β-羟丁酸浓度升高的奶牛可能会经历肝脏和脂肪组织的氧化应激,这是由于丝裂原活化蛋白激酶和核因子-κB(NF-κB)信号通路的过度激活[30]。例如,氧化应激可导致乳腺亚临床炎症,从而增加乳房炎的风险,同时降低产奶量和乳脂含量。此外,ROS调节乳腺上皮细胞的分化,这与奶牛乳腺产奶量和乳成分容量的降低直接相关[31]。大量研究表明,乳腺中的氧化应激和线粒体功能障碍与产奶量和乳脂含量密切相关[32]。本研究结果显示,BLF预处理不仅能够提升氧化损伤的BMECs的抗氧化能力,并能缓解线粒体功能障碍,还能促进乳脂合成。
Ma等[33]研究发现,SREBP1在BMECs中脂类合成关键酶的整合调节中起着重要作用。然而,SREBP1首先是作为非活性前体合成的。通过PPARγ的过表达和敲除试验证实了PPARγ能上调SREBP1的基因和蛋白表达[34]。Kast-Woelbern等[35]发现,PPARγ可以通过诱导白色脂肪组织中胰岛素诱导基因1编码蛋白的表达来间接调节SREBP1的活性。PPARγ可以促进与脂肪酸摄取、细胞内转运和激活相关的基因的表达,这些基因有助于为BMECs合成TGs提供脂肪酸。ACC和FASN是BMECs中负责从头合成脂肪酸的2个关键酶。SCD有助于在肉豆蔻基、棕榈酰基和硬脂酰辅酶A的Δ9位引入双键,以产生单不饱和脂肪酸[36]。有研究表明,PPARγ还影响了BMECs中ACACAFASNSCD的mRNA和蛋白的表达[37]。这些结果表明,ACACAFASNSCD是PPARγ的靶基因,PPARγ在脂肪酸的从头合成和去饱和过程中起积极作用,PPARγ通过调控奶牛乳腺中与脂肪酸摄取、脂肪酸激活、脂肪酸转运、从头脂肪酸合成、脂肪酸去饱和、标签合成和转录调节因子SREBP1相关的脂质基因的表达,在乳脂合成中发挥关键作用。本研究结果表明,BLF预处理可显著升高氧化损伤的BMECs内PPARγ的蛋白表达量,虽然其mRNA相对表达量不是最高的,但其激活的SREBP1的mRNA相对表达量升高最为明显,是升高幅度最大的乳脂合成相关基因,其他的相关基因ACACAFASNSCD等的mRNA相对表达量与损伤组相比也均有不同程度的升高。上述结果说明BLF可缓解氧化损伤带来的乳脂含量下降情况,这可能是通过调控SREBP1和PPARγ关键基因和蛋白的转录与翻译,从而对氧化应激BMECs内的乳脂合成下降起到保护作用。

4 结论

BLF能够降低氧化损伤的BMECs内ROS的含量,提高抗氧化酶CAT、SOD和GSH-Px的活性;同时,BLF通过提升Nrf2及其下游抗氧化基因的表达,提高BMECs的抗氧化能力,从而降低氧化应激带来的氧化损伤;此外,BLF能够有效提升乳脂合成相关基因和蛋白的表达,从而促进BMECs内乳脂的合成,有效减少氧化损伤对乳脂合成的影响。
[1]
李欣, 童津津, 赵佳桢, 等. 氧化应激、炎症和免疫失衡三方联动效应与奶牛常见健康问题的联系及使用植物提取物进行干预的研究进展[J]. 动物营养学报, 2021, 33(12):6666-6675.

DOI

LI X, TONG J J, ZHAO J Z, et al. Relationship between oxidative stress,inflammation and immune imbalance in tripartite linkage effect and common health problems of dairy cows and research progress of intervention with plant extracts[J]. Chinese Journal of Animal Nutrition, 2021, 33(12):6666-6675. (in Chinese)

[2]
宝华, 宋利文, 张春华, 等. 围产期奶牛氧化应激、抗氧化防御系统及其与机体炎症反应的关系[J]. 畜牧与饲料科学, 2019, 40(6):53-57.

BAO H, SONG L W, ZHANG C H, et al. Research progress on oxidative stress and antioxidant defense system and their relationship with inflammatory response in perinatal dairy cows[J]. Animal Husbandry and Feed Science, 2019, 40(6):53-57. (in Chinese)

[3]
MALLEDEVARAHALLI CHANDRAPPA S, PASCOTTINI O B, OPSOMER G, et al. Circulating and endometrial cell oxidative stress in dairy cows diagnosed with metritis[J]. Theriogenology, 2023,198:217-223.

[4]
MAVANGIRA V, SORDILLO L M. Role of lipid mediators in the regulation of oxidative stress and inflammatory responses in dairy cattle[J]. Research in Veterinary Science, 2018,116:4-14.

[5]
YUE K M, PU X D, LOOR J J, et al. Impaired autophagy aggravates oxidative stress in mammary gland of dairy cows with clinical ketosis[J]. Journal of Dairy Science, 2022, 105(7):6030-6040.

[6]
MU T, HU H H, MA Y F, et al. Regulation of key genes for milk fat synthesis in ruminants[J]. Frontiers in Nutrition, 2021,8:765147.

[7]
LI D, XIE X J, WANG J, et al. MiR-486 regulates lactation and targets the PTEN gene in cow mammary glands[J]. PLoS One, 2015, 10(3):e0118284.

[8]
ANTANAITIS R, DŽERMEIKAITĒ K, JANUŠKEVIČIUS V, et al. In-line registered milk fat-to-protein ratio for the assessment of metabolic status in dairy cows[J]. Animals, 2023, 13(20):3293.

[9]
周苗, 龙丹. 竹叶黄酮的生物活性及其在畜牧生产中的应用[J]. 广东饲料, 2019, 28(12):23-25.

ZHOU M, LONG D. Bioactivity of bamboo leaf flavone and its application in animal husbandry[J]. Guangdong Feed, 2019, 28(12):23-25. (in Chinese)

[10]
GAN T, ZHOU X Y, FAN G X, et al. Effect and mechanism of bamboo leaf flavonoids on depression in type 2 diabetic rats[J]. National Medical Journal of China, 2019, 99(16):1251-1255.

[11]
YE S H, PAN F P, YAO L N, et al. Isolation,characterization of bamboo leaf flavonoids by size exclusion chromatography and their antioxidant properties[J]. Chemistry & Biodiversity, 2022, 19(9):e202200506.

[12]
GU Y P, XUE F, XIAO H R, et al. Bamboo leaf flavonoids suppress oxidative stress-induced senescence of HaCaT cells and UVB-induced photoaging of mice through p38 MAPK and autophagy signaling[J]. Nutrients, 2022, 14(4):793.

[13]
YANG J H, CHOI M H, YANG S H, et al. Potent anti-inflammatory and antiadipogenic properties of bamboo (Sasa coreana Nakai) leaves extract and its major constituent flavonoids[J]. Journal of Agricultural and Food Chemistry, 2017, 65(31):6665-6673.

[14]
王宇彤, 沈义媛, 霍相羽, 等. 体外法研究竹叶黄酮对奶牛乳腺上皮细胞抗氧化及哺乳动物雷帕霉素靶蛋白信号通路中关键基因表达的影响[J]. 动物营养学报, 2022, 34(1):612-625.

DOI

WANG Y T, SHEN Y Y, HUO X Y, et al. In vitro study on effects of bamboo leaf flavonoids on antioxidation and expression of key genes in mammalian target of rapamycin signaling pathway in bovine mammary epithelial cells[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):612-625. (in Chinese)

[15]
李建凤, 赵佳桢, 沈义媛, 等. 竹叶黄酮对热应激诱导奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2022, 34(1):626-639.

DOI

LI J F, ZHAO J Z, SHEN Y Y, et al. Protective effects of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by heat stress[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):626-639. (in Chinese)

[16]
侯昆, 童津津, 楚康康, 等. 竹叶黄酮与青蒿提取物对患隐性乳房炎奶牛产奶性能、乳中体细胞数及血清免疫和抗氧化相关指标的影响[J]. 动物营养学报, 2019, 31(9):4286-4295.

DOI

HOU K, TONG J J, CHU K K, et al. Effects of bamboo leaf flavonoids and Artemisia annua extract on milk performance,milk somatic cell count and serum immune and antioxidant related indexes of dairy cows with subclinical mastitis[J]. Chinese Journal of Animal Nutrition, 2019, 31(9):4286-4295. (in Chinese)

[17]
栗明月. 竹叶提取物对奶牛瘤胃发酵、血液中抗氧化酶、免疫球蛋白及炎性因子的影响[D]. 硕士学位论文. 北京: 北京农学院, 2019.

LI M Y. Effects of bamboo leaf extract on rumen fermentation,antioxidant enzymes,immunoglobulins and inflammatory factors in the blood of dairy cows[D]. Master’s Thesis. Beijing: Beijing University of Agriculture, 2019. (in Chinese)

[18]
詹经纬, 李欣, 关淑文, 等. 竹叶黄酮对过氧化氢诱导的奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2023, 35(4):2616-2628.

DOI

ZHAN J W, LI X, GUAN S W, et al. Protective effect of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by hydrogen peroxide[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2616-2628. (in Chinese)

DOI

[19]
牛慧. 苦参碱对无乳链球菌诱导的奶牛乳腺上皮细胞炎症反应的保护机制研究[D]. 硕士学位论文. 北京: 北京农学院, 2022.

NIU H. Study on the protective mechanism of matrine against bovine mammary epithelial cells inflammation induced by Streptococcus agalactiae[D]. Master’s Thesis. Beijing: Beijing University of Agriculture, 2022. (in Chinese)

[20]
侯昆. 青蒿素对奶牛乳汁代谢物的影响及其调控机制的研究[D]. 硕士学位论文. 北京: 北京农学院, 2020.

HOU K. The effect and mechanism of artemisinin on milk metabolites in dairy cows[D]. Master’s Thesis. Beijing: Beijing University of Agriculture, 2020. (in Chinese)

[21]
唐功. 活性氧·抗氧化酶及抗氧化剂之间关系的探讨[J]. 安徽农业科学, 2010, 38(33):18619-18621.

TANG G. The discuss on the relationship among reactive oxygen species,antioxidant enzyme and antioxidant[J]. Journal of Anhui Agricultural Sciences, 2010, 38(33):18619-18621. (in Chinese)

[22]
BLOKHINA O, VIROLAINEN E, FAGERSTEDT K V. Antioxidants,oxidative damage and oxygen deprivation stress:a review[J]. Annals of Botany, 2003, 91(2):179-194.

[23]
梁程程, 杨红, 齐聪, 等. 氧化应激对卵巢储备功能下降的影响及中西医抗氧化治疗研究进展[J]. 中国中西医结合杂志, 2021, 41(7):885-889.

LIANG C C, YANG H, QI C, et al. The effect of oxidative stress on the decline of ovarian reserve function and the progress of antioxidant therapy with traditional Chinese and western medicine[J]. Chinese Journal of Integrated Traditional and Western Medicine, 2021, 41(7):885-889. (in Chinese)

[24]
HU H, ZHANG Y D, ZHENG N, et al. The effect of heat stress on gene expression and synthesis of heat-shock and milk proteins in bovine mammary epithelial cells[J]. Animal Science Journal, 2016, 87(1):84-91.

DOI PMID

[25]
SUN Y C, LIAN M Q, LIN Y, et al. Role of p-MKK7 in myricetin-induced protection against intestinal ischemia/reperfusion injury[J]. Pharmacological Research, 2018,129:432-442.

[26]
BIALA A K, KIRSHENBAUM L A. The interplay between cell death signaling pathways in the heart[J]. Trends in Cardiovascular Medicine, 2014, 24(8):325-331.

DOI PMID

[27]
FRIJHOFF J, WINYARD P G, ZARKOVIC N, et al. Clinical relevance of biomarkers of oxidative stress[J]. Antioxidants & Redox Signaling, 2015, 23(14):1144-1170.

[28]
LIU Q M, LV H M, WEN Z M, et al. Isoliquiritigenin activates nuclear factor erythroid-2 related factor 2 to suppress the NOD-like receptor protein 3 inflammasome and inhibits the NF-κB pathway in macrophages and in acute lung injury[J]. Frontiers in Immunology, 2017,8:1518.

[29]
BRADFORD B J, YUAN K, FARNEY J K, et al. Invited review:inflammation during the transition to lactation:new adventures with an old flame[J]. Journal of Dairy Science, 2015, 98(10):6631-6650.

[30]
SONG Y X, LI N, GU J M, et al. β-hydroxybutyrate induces bovine hepatocyte apoptosis via an ROS-p38 signaling pathway[J]. Journal of Dairy Science, 2016, 99(11):9184-9198.

DOI PMID

[31]
BARATTA M, MIRETTI S, MACCHI E, et al. Mammary stem cells in domestic animals:the role of ROS[J]. Antioxidants, 2018, 8(1):6.

[32]
RAZZAGHI A, GHAFFARI M H, RICO D E. The impact of environmental and nutritional stresses on milk fat synthesis in dairy cows[J]. Domestic Animal Endocrinology, 2023,83:106784.

[33]
MA L, CORL B A. Transcriptional regulation of lipid synthesis in bovine mammary epithelial cells by sterol regulatory element binding protein-1[J]. Journal of Dairy Science, 2012, 95(7):3743-3755.

DOI PMID

[34]
LIU L X, ZHANG L I, LIN Y E, et al. 14-3-3γ regulates cell viability and milk fat synthesis in lipopolysaccharide-induced dairy cow mammary epithelial cells[J]. Experimental and Therapeutic Medicine, 2016, 11(4):1279-1287.

PMID

[35]
KAST-WOELBERN H R, DANA S L, CESARIO R M, et al. Rosiglitazone induction of Insig-1 in white adipose tissue reveals a novel interplay of peroxisome proliferator-activated receptor gamma and sterol regulatory element-binding protein in the regulation of adipogenesis[J]. The Journal of Biological Chemistry, 2004, 279(23):23908-23915.

[36]
ALJOHANI A M, SYED D N, NTAMBI J M. Insights into stearoyl-CoA desaturase-1 regulation of systemic metabolism[J]. Trends in Endocrinology and Metabolism, 2017, 28(12):831-842.

DOI PMID

[37]
LIU L L, LIN Y, LIU L X, et al. Regulation of peroxisome proliferator-activated receptor gamma on milk fat synthesis in dairy cow mammary epithelial cells[J]. In Vitro Cellular & Developmental Biology-Animal, 2016, 52(10):1044-1059.

Outlines

/