RESEARCH PAPER

Effects of Sulforaphane on Intestinal Antioxidant Capacity and Intestinal Microbiota of High Fat Diet Induced Obese Mouse

  • GOU Qingbi ,
  • YIN Chunhui ,
  • CHEN Ya ,
  • ZHANG Zhenzhen ,
  • CHEN Huali ,
  • HU Mao
Expand
  • College of Life Science and Engineering, Southwest University of Science and Technology, Mianyang 621010, China
** associate professor, E-mail:
*Contributed equally

Received date: 2024-02-19

  Online published: 2024-08-12

Abstract

The aim of this study was to investigate the effects and mechanism of sulforaphane (SFN) on the intestinal antioxidant capacity and the regulation of intestinal microbiota in high fat diet fed obese mouse. Sixty 6-week-old male SPF-grade C57BL/6J mice were selected, after 2 weeks of acclimatization feeding with normal diet, were randomly divided into 6 groups with 10 mice in each group. The two groups of normal mice: the blank control group (NC group) and the normal+SFN group(NC+SFN group), which were both fed a basal diet and SFN was administered 5 times a week at 10 mg/(kg BW·d); the other 4 groups of mice were fed a high fat diet, the obese mouse model was constructed, and the groups were divided after 12 weeks of successful modeling: obesity control group (HFD group), obesity+SFN group (HFD+SFN group), obesity+antibiotics group (HFD+ABX group), obesity+SFN+antibiotics group (HFD+SFN+ABX group), which were fed a high fat diet, the intervention was performed with 10 mg/(kg BW·d) doses of SFN (injected 5 times a week) and antibiotics water.The experiment lasted for 28 days. The results showed as follows: 1) the body weight of mice in the HFD+SFN group was significantly lower compared with the HFD group (P>0.05). 2) SFN significantly increased the mRNA relative expression levels of nuclear factor E2 related factor 2 (Nrf2), superoxide dismutase 1 (SOD1) and glutathione peroxidase 4 (GPX4) in the intestinal tract of the normal and obese mice (P<0.05), and the mRNA relative expression levels of superoxide dismutase 2 (SOD2) and GPX4 in the HFD+SFN group was significantly higher than that in the HFD+ABX group and the HFD+SFAB group (P<0.05). Moreover, the mRNA relative expression levels of Nrf2, SOD1 and GPX4 in the HFD+SFAB group was significantly higher than that in the HFD+ABX group (P<0.05). 3) SFN had no significant effect on intestinal flora alpha diversity in normal and obese mice (P>0. 05), while ABX treatment significantly decreased the diversity of intestinal flora in obese mice (P<0.05).Compared with the HFD group, the ratio of Firmicutes/Bacteroidetes (F/B) in the intestines of mice in the HFD+SFN group was significantly lower (P<0.05) and to a level similar to that in the NC group (P>0.05), with a decrease in the relative abundance of Bacteroide, and an increase in the relative abundance of anti-obesity-related microorganisms, such as Akkermansia muciniphila and Allobaculum. And SFN intervention significantly increased the F/B value of obese mice given ABX (P>0.05), to a ratio close to that of the NC group (P>0.05). In summary, SFN may alleviate obesity-induced oxidative stress by participating in the activation of Nrf2 signaling pathway to increase intestinal antioxidant enzyme activities, and improve the disturbance of intestinal flora induced by obesity and antibiotic treatment by regulating anti-obesity flora, so as to achieve anti-obesity effects.

Cite this article

GOU Qingbi , YIN Chunhui , CHEN Ya , ZHANG Zhenzhen , CHEN Huali , HU Mao . Effects of Sulforaphane on Intestinal Antioxidant Capacity and Intestinal Microbiota of High Fat Diet Induced Obese Mouse[J]. Chinese Journal of Animal Nutrition, 2024 , 36(8) : 5364 -5375 . DOI: 10.12418/CJAN2024.456

饮食是影响宿主营养和代谢的主要因素[1],过量摄入高热量食物,如高脂肪饮食和高糖饮食能增加肥胖[2]、Ⅱ型糖尿病[3]、心血管疾病[4]和癌症[5]等的发病率,导致氧化应激和肠道菌群失调[6-7],引发胃肠道疾病和代谢紊乱,如炎症性肠病(IBD)和胰岛素抵抗(IR)[8-10]。在畜禽集约化、规模化养殖中,通常采用高脂肪、高热量的饲粮加快育肥,导致畜禽脂质代谢紊乱、脂肪沉积过剩等疾病,从而影响产品质量和繁殖性能,降低动物生产经济效益,并且威胁人类健康[11-12]。因此,随着生活水平和健康意识的提高,人们更倾向于选择更低脂、更安全、更健康的动物产品。
植物提取的生物活性化合物能够通过调节肠道微生物群来增强宿主抵抗或减轻疾病的能力,具有替代抗生素的巨大潜力[13]。萝卜硫素(4-甲基亚砜基异硫氰酸酯,sulforaphane,SFN)是一种存在于西蓝花等十字花科蔬菜中天然的异硫氰酸酯化合物,以硫代葡萄糖苷的形式储存在植物中[14]。SFN具有抗癌、抗氧化、抗炎、抗菌等功能,并以显著的抗癌作用而闻名[15]。同时SFN作为核因子E2相关因子2(Nrf2)的天然激活因子,不仅对减轻代谢性疾病有积极作用(如减轻糖尿病引起的氧化损伤和炎症、改善肥胖和胰岛素抵抗,以及调节脂质代谢等[16-18]),还对幽门螺旋杆菌和大肠杆菌等有害菌有明显抑制作用,从而改善肠道菌群失调,保护肠道健康[19]。因此,SFN对肥胖及其代谢紊乱有很大的治疗潜力,然而关于SFN是否通过调节肠道菌群而发挥抗肥胖作用的机制并不明确。同时在动物生产中,饲粮能量过剩会造成动物体内脂肪过多沉积,诱发肥胖和代谢疾病,从而影响动物的经济性状[20]。因此,如何缓解高脂饲粮诱导的肥胖动物脂质代谢紊乱等疾病十分重要。
为此,本研究以高脂饲粮诱导建立肥胖小鼠模型,以SFN干预,对比抗生素治疗效果,利用实时荧光定量PCR(RT-qPCR)和16S rRNA基因测序,探究SFN对肥胖小鼠肠道抗氧化能力和肠道微生物的作用,阐述肠道微生物在SFN治疗肥胖过程中的作用机制,为SFN通过调节肠道菌群而发挥抗肥胖作用、维护动物机体健康提供参考依据。

1 材料与方法

1.1 试验动物与试验材料

65只无特定病原体(SPF)级6周龄、体质量为18~20 g的雄性C57BL/6J小鼠;SFN购于美国MedChemExpress公司,纯度为99.75%,批次为HY-13755-41926。

1.2 主要试剂与器材

二甲基亚砜(DMSO)(美国MedChemExpress);RNAiso Plus(9109)、PrimeScriptTM RT reagent Kit with gDNA Eraser (Perfect Real Time)(RR047A)、TB Green® Premix Ex TaqTM Ⅱ (Tli RNaseH Plus)(RR820A)(大连宝生物工程有限公司);Q6000微量紫外可见光分光光度计(美国Quawell公司);CFX96荧光定量PCR仪(美国BIO-RAD公司)。

1.3 试验设计

小鼠适应1周后选取60只,随机分为6组,每组10只。2组为正常小鼠:空白对照组(NC组)、正常+SFN组(NC+SFN组),饲喂正常饲粮(购于成都达硕实验动物有限公司,批号1912040101;营养成分:9.4%水分、5.2%粗脂肪、18.5%粗蛋白质、3.5%粗纤维、6.6%粗灰分、1.13%钙、0.86%磷,检测方法参考GB/T 14924.9—2001);SFN溶于2% DMSO后,按10 mg/(kg BW·d)剂量[21]每周皮下注射5次,NC组注射等量DMSO。另外4组小鼠饲喂12周高脂饲粮[购于成都达硕实验动物有限公司,批号SCXK(川)2019-028;营养成分:9.3%水分、37.8%粗脂肪、13.4%粗蛋白质、2.7%粗纤维、4.4%粗灰分、0.83%钙、0.71%磷,检测方法参考GB/T 14924.9—2001]建立肥胖模型,体重超过正常小鼠20%,即建模成功。肥胖模型小鼠分为4组:肥胖对照组(HFD组)、肥胖+SFN组(HFD+SFN组)、肥胖+抗生素组(HFD+ABX组)、肥胖+SFN+抗生素组(HFD+SFN+ABX组), 饲喂高脂饲粮;SFN溶于2% DMSO后,按10 mg/(kg BW·d)的剂量[21]每周皮下注射5次,其余小鼠注射相应体积的DMSO;抗生素(甲硝唑100 μg/mL、万古霉素15 μg/mL、环丙沙星 25 μg/mL、新霉素100 μg/mL、链霉素50 μg/mL、青霉素100 U/mL)添加进饮水中。试验期为28 d,期间每周称重,记录小鼠的体重变化。
小鼠饲养在环境控制室,温度保持在(20±2) ℃,相对湿度为40%~60%,光暗周期为12 h,在特定的无病原体条件下饲养,整个试验期间均自由饮食饮水。试验动物的饲养经过西南科技大学实验动物伦理委员会批准,动物伦理编号为L2022017。

1.4 样品采集

试验结束禁食24 h后,采用颈椎脱颈法处死小鼠,打开腹腔取2 cm空肠,无菌生理盐水冲洗内容物后装入无菌2 mL冻存管,放入液氮速冻;用无菌棉绳截取盲肠装入无菌2 mL冻存管,放入液氮速冻,采样结束后立即将样品转入-80 ℃冰箱备用。

1.5 指标测定

1.5.1 肠道抗氧化相关基因mRNA表达

取空肠组织,利用RNAiso Plus提取空肠RNA[22],测定其纯度与浓度,统一RNA浓度后采用PrimeScriptTM RT reagent Kit with gDNA Eraser (Perfect Real Time)合成cDNA,然后采用TB Green® Premix Ex TaqTM Ⅱ (Tli RNaseH Plus)进行RT-qPCR扩增,所有操作均按照生产商的说明进行。反应总体系为20 μL:TB Green Premix Ex Taq Ⅱ 10 μL,上、下引物各0.8 μL,DNA模板1.6 μL,灭菌水6.8 μL。反应程序为:95 ℃预变性30 s(1个循环),95 ℃变性5 s,60 ℃退火30 s(40个循环)。扩增产物以甘油醛-3-磷酸脱氢酶(GAPDH)为内参,采用2-ΔΔCt法计算目的基因mRNA相对表达量。所有引物在NCBI网站设计,并验证特异性后,送至生工生物工程(上海)股份有限公司合成,引物序列见表1
表1 引物序列

Table 1 Primer sequence

基因
Genes
序列
Sequence (5'—3')
扩增长度
Product length/bp
基因编号
Gene number
甘油醛-3-磷酸脱氢酶
GAPDH
F:AGGGCATCTTGGGCTACAC
R:TGGTCCAGGGTTTCTTACTCC
211 NM_001411843.1
核因子E2相关因子2
Nrf2
F:ACCTCTGCTGCAAGTAGCCT
R:TGGGCAACCATCACTCTGCT
118 NM_001399226.1
超氧化物歧化酶1
SOD1
F:GGGAAGCATGGCGATGAAAG
R:GGTTCACCGCTTGCCTTCTG
93 NM_011434.2
超氧化物歧化酶2
SOD2
F:CTGGAGCCACACATTAACGC
R:AGTTGTAACATCTCCCTTGGC
129 NM_013671.3
谷胱甘肽过氧化酶1
GPX1
F:TCAGTTCGGACACCAGAATG
R:GTAAAGAGCGGGTGAGCCTT
141 NM_001329527.1
谷胱甘肽过氧化酶4
GPX4
F:GTACTGCAACAGCTCCGAGT
R:ATGCACACGAAACCCCTGTA
141 NM_001037741.4

1.5.2 肠道菌群16S rRNA基因测序

小鼠盲肠内容物送至北京诺禾致源科技股份有限公司进行16S rRNA基因测序。取小鼠盲肠内容物于冰上解冻,采用十六烷基三甲基溴化铵(CTAB)法[23]提取总DNA,之后利用琼脂糖凝胶电泳检测DNA的纯度和浓度。使引物338F(5'-ACTCCTACGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对细菌16S rRNA基因V3~V4区域进行PCR扩增[24]。所有PCR混合液加入15 μL Phusion® High-Fidelity PCR Master Mix(New England Biolabs)、0.2 μmol/L引物和10 ng基因组DNA模板,反应程序为:98 ℃变性60 s,然后98 ℃ 10 s、50 ℃ 30 s和72 ℃ 30 s,30个循环,最后在72 ℃保持5 min。根据PCR产物浓度进行等量混样,充分混匀后对PCR产物进行检测并回收目的条带,最后使用NovaSeq6000进行上机测序,构建PCR-free文库,文库经过Qubit 和Q-PCR定量评估合格后,进行双末端(PE250)测序。测序的原始数据经FLASH(V1.2.7)软件[25]进行拼接后再使用fastp软件(Version 0.23.1)[26]进行严格的过滤处理,最后去除其中的嵌合体序列,得到有效数据。利用Uparse算法[27]对有效数据进行聚类,默认以97%的一致性将序列聚类成为可分类操作单元(OTUs),对OTUs序列进行物种注释和分类。然后使用Qiime软件(Version 1.9.1)计算Shannon和Simpson等指数,使用R软件(Version 2.15.3)绘制多样性分析相关图,最后使用Tax4Fun软件进行功能预测分析。

1.6 统计与分析

采用SPSS 26.0统计软件对试验数据进行单因素方差分析(one-way ANOVA),并采用Duncan氏多重比较检验法进行组间比较,采用GraphPad Prism 9作图,结果以平均值和标准误表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 SFN对高脂饲粮诱导的肥胖小鼠体重的影响

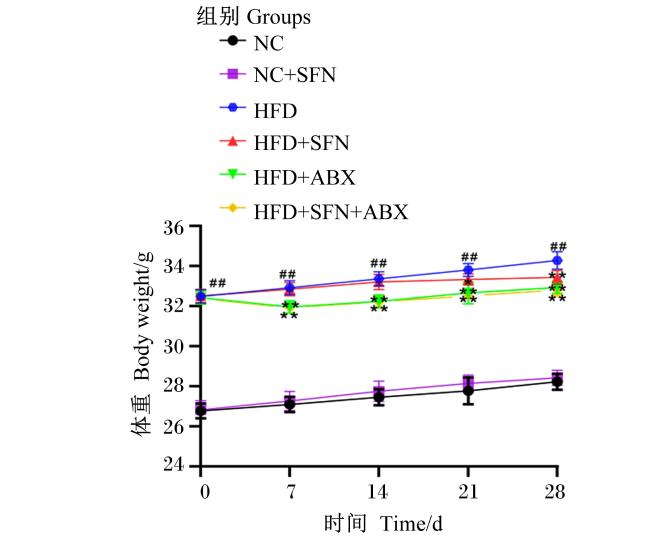
图1可知,与NC组相比,高脂饲粮饲喂后的肥胖小鼠体重均极显著增加(P<0.01),且体重增重超过20%,成功建立肥胖模型。NC+SFN组与NC组体重差异不显著(P>0.05);与HFD组相比,HFD+SFN组第21天体重显著减少(P<0.05),第28天体重极显著减少(P<0.01),HFD+ABX组和HFD+SFN+ABX组小鼠体重从第7天开始极显著减少(P<0.01);同时观察到ABX给药后7 d体重下降至最低,但在后面试验期内体重呈增长趋势,而HFD+SFN组体重一直呈下降趋势。
图1 SFN对高脂饲粮诱导的肥胖小鼠体重的影响

NC:空白对照组;NC+SFN:正常+萝卜硫素组;HFD:肥胖对照组;HFD+SFN:肥胖+萝卜硫素组;HFD+ABX:肥胖+抗生素组;HFD+SFN+ABX:肥胖+萝卜硫素+抗生素组。下图同。与NC组相比:#表示P<0.05,##表示P<0.01;与HFD组相比:*表示P<0.05,**表示P<0.01。

Fig.1 Effects of SFN on body weight of high fat diet induced obese mouse

NC: blank control group; NC+SFN: normal+SFN group; HFD: obesity control group; HFD+SFN: obesity +SFN group; HFD+ABX: obesity+antibiotic group; HFD+SFN+ABX: obesity+SFN+antibiotic group. The same as below. Compared with the NC group, # means P<0.05, ## means P<0.01; compared with the HFD group, * means P<0.05,** means P<0.01.

2.2 SFN对高脂饲粮诱导的肥胖小鼠肠道抗氧化基因表达水平的影响

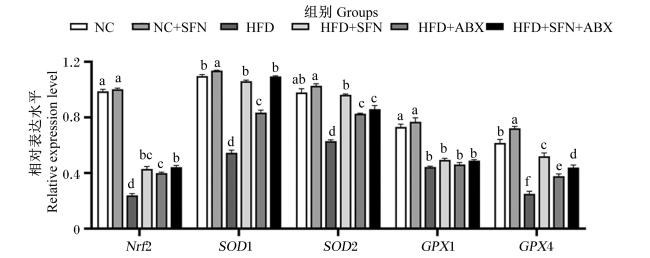
图2可知,与NC组相比,NC+SFN组的肠道超氧化物歧化酶1(SOD1)和谷胱甘肽过氧化酶4(GPX4)的mRNA相对表达量显著升高(P<0.05),HFD组5个基因的mRNA相对表达量均显著下降(P<0.05)。与HFD组相比,HFD+SFN组、HFD+ABX组和HFD+SFN+ABX组肠道的Nrf2、SOD1、超氧化物歧化酶2(SOD2)和GPX4的mRNA相对表达量显著升高(P<0.05);且HFD+SFN组和HFD+SFN+ABX组肠道中SOD1和GPX4的mRNA相对表达量显著高于HFD+ABX组(P<0.05)。
图2 SFN对高脂饲粮诱导的肥胖小鼠肠道抗氧化基因表达水平的影响

Nrf2:核因子E2相关因子2 nuclear factor E2 related factor 2;SOD1:超氧化物歧化酶1 superoxide dismutase 1; SOD2: 超氧化物歧化酶2 superoxide dismutase 2; GPX1: 谷胱甘肽过氧化酶1 glutathione peroxidase 1; GPX4: 谷胱甘肽过氧化酶4 glutathione peroxidase 4。

同一指标数据柱标注不同字母表示差异显著(P<0.05)。图4图6同。The same index data column marked with different letters indicated significant difference (P<0.05). The same as Fig.4 and Fig.6.

Fig.2 Effects of SFN on expression levels of intestinal antioxidant genes of high fat diet induced obese mouse

2.3 SFN对高脂饲粮诱导的肥胖小鼠肠道微生物的影响

2.3.1 SFN对高脂饲粮诱导的肥胖小鼠盲肠微生物OTUs数量的影响
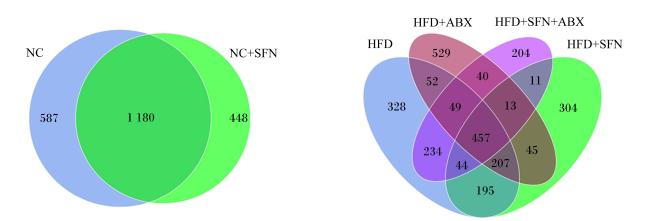
通过Illumina NovaSeq测序平台对肠道微生物16S rRNA基因的V3~V4区域进行测序,平均测得117 329条原始数据,通过拼接和质控后平均得到76 282条有效数据。发现各组小鼠盲肠内容物的肠道菌群测序所得的OTUs数都有所差异(图3)。NC组和NC+SFN组中特有OTUs数分别为587和448个,2组共有OTUs为1 180个。HFD组、HFD+SFN组、HFD+ABX组和HFD+SFN+ABX组各自的总OTUs数分别为1 566、1 276、1 392、1 049个,各自特有的OTUs数分别为328、304、529、204个,4个组共有OTUs数为559个。结果表明2个正常组小鼠的肠道微生物群落相似,4个肥胖组小鼠肠道微生物群落有一定差异性。
图3 SFN对高脂饲粮诱导的肥胖小鼠肠道微生物OTUs的Venn图的影响

Fig.3 Effects of SFN on gut microbial Venn diagram of OTUs of high fat diet induced obese mouse

2.3.2 SFN对高脂饲粮诱导的肥胖小鼠盲肠微生物多样性的影响

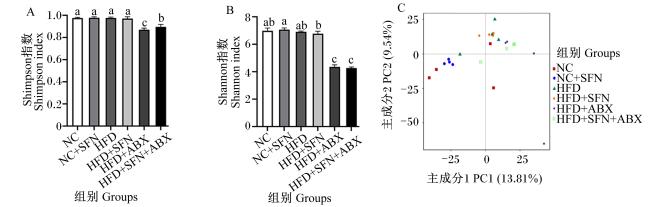
群落多样性越高,物种分布越均匀,Simpson和Shannon指数越大。Alpha多样性分析如图4-A图4-B所示,与NC组相比,NC+SFN组小鼠的Simpson指数和Shannon指数均增大,但差异不显著(P>0.05)。HFD+ABX组和HFD+SFN+ABX组的Simpson指数和Shannon指数显著低于其他4组(P<0.05),且HFD+SFN+ABX组的Simpson指数显著高于HFD+ABX组(P<0.05)。基于Beta多样性的主成分分析(PCA)(图4-C),NC组与NC+SFN组、HFD组与HFD+SFN组以及HFD+ABX组和HFD+SFN+ABX组的点明显分布于3个区域,表明正常小鼠与肥胖小鼠微生物群落组成存在明显差异,而ABX治疗后,肠道微生物群落明显被扰乱;同时各2组之间均有重叠样本点,表明两两之间肠道微生物群落组成相似度高。
图4 SFN对高脂饲粮诱导的肥胖小鼠肠道微生物多样性分析的影响

Fig.4 Effects of SFN on gut microbial diversity analysis of high fat diet induced obese mouse

2.3.3 SFN对高脂饲粮诱导的肥胖小鼠盲肠微生物相对丰度和结构组成的影响
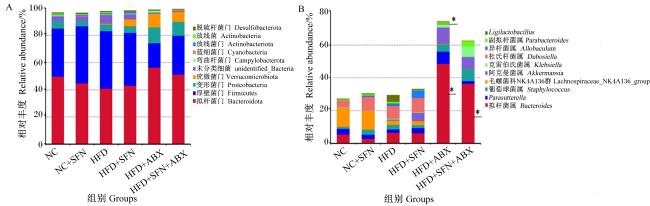
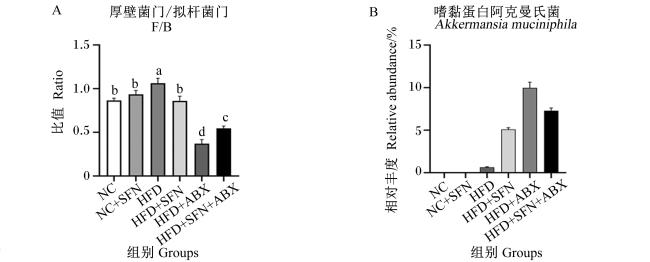
结果显示,在盲肠微生物门水平上(图5-A),各组小鼠盲肠微生物优势菌群主要是拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)、变形菌门(Proteobacteria)、疣微菌门(Verrucomicrobiota)、弯曲杆菌门(Campylobacterota)、蓝细菌门(Cyanobacteria)、放线菌门(Actinobacteria)和脱硫杆菌门(Desulfobacterota)等,且各组间前10位优势菌门排序不一,表明HFD、SFN和ABX均能影响小鼠的肠道微生物结构组成。HFD会严重扰乱肠道菌群,特征之一便是增加厚壁菌门相对丰度,减少拟杆菌门相对丰度,升高厚壁菌门/拟杆菌门(F/B)值。如图6-A所示,与NC组相比,HFD组的F/B值显著升高(P<0.05)。与HFD组相比,HFD+SFN组的F/B显著降低(P<0.05),并接近NC组(P>0.05);而HFD+ABX组和HFD+SFN+ABX组的F/B值显著小于HFD组和NC组(P<0.05),但与HFD+ABX组相比,HFD+SFN+ABX组的F/B显著升高(P<0.05)。
图5 门水平(A)和属水平(B)上排名前10位微生物相对丰度和结构组成图

与HFD组相比,*表示P<0.05,**表示P<0.01。Compared with the HFD group, * means P<0.05, ** means P<0.01.

Fig.5 Relative abundance and structure composition of top 10 microorganisms at phylum level (A) and genus level (B)

图6 厚壁菌门/拟杆菌门的比值(A)和嗜黏蛋白阿克曼氏菌的相对丰度(B)

Fig.6 Firmicutes/Bacteroidota (A) ratio and relative abundance of Akkermansia muciniphila (B)

在属水平上(图5-B),各组小鼠盲肠微生物优势菌群主要是有拟杆菌属(Bacteroides)、Parasutterella、葡萄球菌属(Staphylococcus)、毛螺菌科NK4A136群 (Lachnospiraceae_NK4A136_group)、阿克曼菌属(Akkermansia)和克雷伯氏菌属(Klebsiella)、杜氏杆菌属(Dubosiella)、异杆菌属(allobaculum)等。与NC组相比,NC+SFN组中条件致病菌拟杆菌属和Parasutterella相对丰度呈现减少趋势,杜氏杆菌属和毛螺菌科NK4A136群相对丰度呈现增加趋势。与HFD组相比,HFD+SFN组条件致病菌拟杆菌属、葡萄球菌属和克雷伯氏菌属相对丰度表现减少趋势,有益菌异杆菌属、阿克曼菌属及嗜黏蛋白阿克曼氏菌(Akkermansia muciniphila)(图6-B)的相对丰度呈增加趋势,但差异不显著(P>0.05);HFD+ABX组和HFD+SFN+ABX组的条件致病菌拟杆菌属相对丰度显著增加(P<0.05),有益菌杜氏杆菌属相对丰度显著减少(P<0.05),毛螺菌科NK4A136群相对丰度呈减少趋势,致病菌克雷伯氏菌属和葡萄球菌属相对丰度呈增加趋势。

2.3.4 SFN对高脂饲粮诱导的肥胖小鼠盲肠微生物功能预测

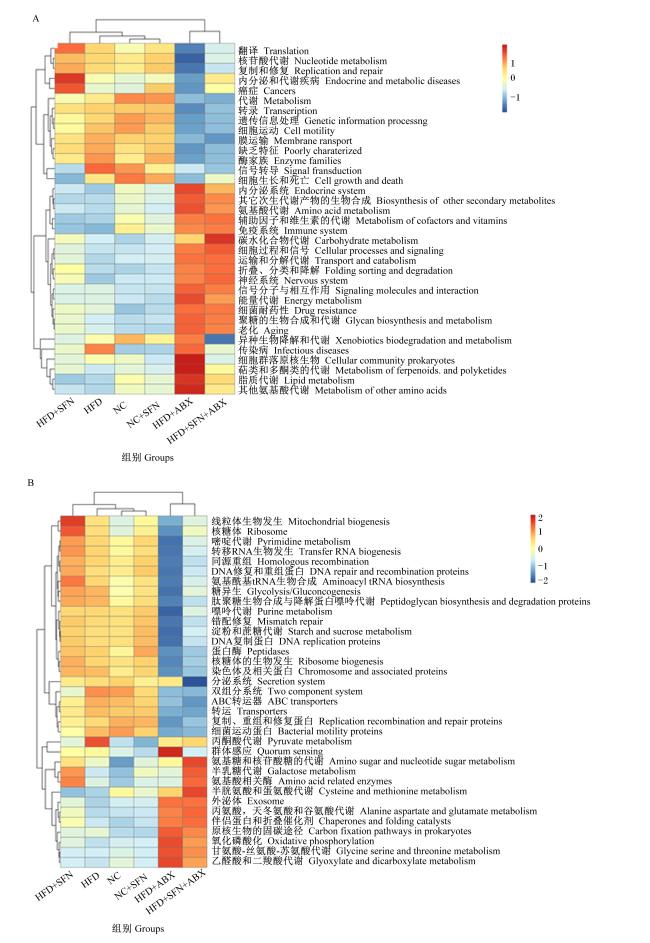
利用Tax4Fun对小鼠肠道微生物样本测序结果中可能存在的KEGG通路以及COG功能信息进行预测(图7),NC组、NC+SFN组富集在信号转导和细胞生长和死亡;HFD组富集在信号转导和酶素家族等;而HFD+SFN组富集在翻译、内分泌和代谢性疾病和癌症等,主要包括线粒体生物发生、核糖体和氨基酸相关酶等;HFD+ABX组富集于脂质代谢、其他的氨基酸代谢和细菌耐药性等;HFD+SFN+ABX组主要富集于碳水化合物代谢、细菌耐药性和细胞过程和信号等,主要包括半胱氨酸和蛋氨酸代谢以及氨基酸相关酶等。
图7 第2水平(A)和第3水平(B)功能注释聚类热图

Fig.7 Level 2 (A) and level 3 (B) functional annotation cluster heat maps

3 讨论

3.1 SFN对高脂饲粮诱导的肥胖小鼠体重的影响

Xu等[28]和Zhang等[29]研究证明,SFN对肥胖小鼠增重有改善作用。同组前期试验也证明SFN能增强肥胖小鼠的糖耐量,减少白色脂肪组织纤维化,从而降低肥胖小鼠的增重[30]。本试验结果也表明,SFN能延缓肥胖小鼠的增重,但对健康小鼠体重无显著影响。研究证实,ABX能减轻高脂饲粮饲喂小鼠的胰岛素抵抗,抑制脂肪生成减轻体重,对肥胖小鼠短期有较好的治疗作用[31-32],但抗生素治疗被证实长期干扰易产生耐药性,会对肠道微生物产生严重持久的负面影响,诱导动物机体引发难以治愈的感染和疾病[33]。本试验同样证明,虽然ABX能降低高脂饲粮诱导的肥胖小鼠的增重,但1周后体重表现增长趋势,产生普遍效应;而SFN虽治疗效果不如ABX,但后期保持持续减重作用。因此从长期效果看,SFN较ABX更能发挥减重作用。

3.2 SFN对高脂饲粮诱导的肥胖小鼠肠道抗氧化功能的影响

研究表明,长期采食高脂饲粮会导致血液内游离脂肪酸含量增加,造成肝脏脂肪过量和脂毒性环境,导致线粒体功能障碍及大量活性氧的产生,最终引起动物全身性氧化应激;并发现与白色脂肪组织衍生激素——瘦素有关[34]。氧化应激也是导致动物肥胖、糖尿病和非酒精性脂肪肝等疾病的重要潜在因素[35]。SFN是一种天然自由基清除剂,作为Nrf2的天然激活剂,可通过介导Nrf2/抗氧化反应元件(ARE)信号通路及下游抗氧化酶[如SOD、过氧化氢酶(CAT)、GPX]来降低氧化应激[36]。有研究证实了SFN可通过激活肥胖小鼠血清、肝脏和脂肪组织中Nrf2而调节脂质代谢,缓解肥胖诱导的氧化应激[29-30,37],而Zhang等[38]研究发现,SFN可显著提高体外培养的人结肠上皮细胞SOD和GPX的活性,通过缓解氧化应激减轻肠道上皮细胞损伤。但关于SFN是否能够调节肥胖诱导的肠道氧化应激的研究甚少。本试验说明高脂饲粮抑制了肠道中SOD和GPX活性,造成肠道氧化应激。经SFN治疗后,肥胖小鼠肠道内Nrf2、SOD1、SOD2和GPX4的mRNA相对表达量均显著提高,且SOD1和GPX4的mRNA相对表达量均高于ABX单独治疗;同时SFN干预ABX治疗后,也显著提高肠道内不同抗氧化酶的mRNA相对表达量。因此,SFN可能通过激活Nrf2通路增强肠道抗氧化酶的活性,消除多余的活性氧,缓解高脂饲粮引起的肠道氧化应激,增强肥胖小鼠的肠道抗氧化能力,保护肠道健康。

3.3 SFN对高脂饲粮诱导的肥胖小鼠肠道微生物的影响

随着测序技术的发展,人们对肠道菌群与肥胖的复杂关系有了越来越深入的了解。Turnbaugh等[39]通过粪菌移植试验法证实肠道微生物在肥胖和相关代谢紊乱的发展中发挥因果作用。之后也有越来越多的证据表明,肠道微生物及其代谢产物[短链脂肪酸(SCFA)等]能影响营养获取、能量代谢和脂质代谢等[11,40]。因此,肠道菌群被认为是肥胖过程中的关键环境因子,也是缓解肥胖的潜在治疗靶点。厚壁菌门、拟杆菌门在肠道菌群中占主导位置,而F/B值是第1个由其推导出的指标,高脂饲粮引起的典型肠道菌群失调特征为:厚壁菌门相对丰度减少,拟杆菌门相对丰度增加,F/B提高[41]。其中毛螺菌科是厚壁菌门中占主导的细菌家族之一,毛螺菌科NK4A136群被认定为潜在有益菌,可发酵产生乙酸和丁酸[42],为肠道上皮细胞提供能量、调节脂质代谢等[43];异杆菌属也可发酵产生丁酸和乳酸,且可能具有一定的抗肥胖作用[44]
嗜黏蛋白-阿克曼氏菌是“明星”益生菌,可以调节脂质代谢和脂肪细胞代谢,并改善肠道屏障,缓解肠道炎症,从而治疗肥胖及其代谢疾病[45-46]。克雷伯氏杆菌为条件病原菌,寄生于动物呼吸道或肠道,可引起畜禽肺炎等疾病[47]。Xu等[28]研究显示,SFN给药能显著降低肥胖小鼠的F/B值,并增加阿克曼菌属。Jun等[48]研究证实,SFN增加异杆菌属可能利于加强肠道屏障功能,减轻炎症。本试验同样表明,SFN能降低肥胖小鼠的F/B值并接近正常值,并增加嗜黏蛋白-阿克曼氏菌和产SCFA的毛螺菌科NK4A136群和异杆菌属的相对丰度,降低条件致病菌克雷伯氏菌属的相对丰度。本试验还证实,抗生素治疗肥胖小鼠虽有明显减重效果,但也使F/B值显著低于正常小鼠,减少有益菌杜氏杆菌属相对丰度,扰乱了肠道微生物群落,造成肠道菌群失调,因此在治疗后期效果不佳。Wang等[49]也证明抗生素起到一部分治疗作用时,也会引起小鼠的肠道菌群和脂质代谢紊乱。另外本试验数据还显示,SFN能一定程度上提高ABX治疗后小鼠肠道抗氧化酶活性,对ABX抗肥胖效果有积极作用,而这正向推动可能基于SFN对肠道微生物的调节作用。同时根据功能预测显示,SFN不仅可能调节肥胖小鼠的肠道微生物参与线粒体生物发生,从而增强肠道上皮细胞功能,改善胰岛素敏感度[50];还可能通过调节肠道微生物参与氨基酸代谢途径保护抗生素治疗小鼠的肠道健康,例如半胱氨酸和蛋氨酸代谢,对抗氧化、蛋白质的合成与代谢和免疫有重要影响[51-52]。综上所述,SFN能抑制部分条件致病菌,改善高脂饲粮和抗生素长期干扰诱导的肠道菌群紊乱,调节肠道微生物,尤其与抗肥胖和产生丁酸等SCFA的微生物相关;并参与氨基酸代谢途径保护抗生素治疗后小鼠的肠道健康。

4 结论

本试验结果表明,SFN可通过激活Nrf2信号通路增强肠道抗氧化酶的活性,提高肥胖小鼠肠道抗氧化能力;可能通过抑制有害菌,及调节与抗肥胖肠道微生物及其代谢产物SCFA参与氨基酸代谢等生命活动,进而维护肥胖或抗生素长期干扰后肠道菌群的动态平衡,保护动物机体肠道健康。
[1]
HANEISHI Y, FURUYA Y M, HASEGAWA M Y, et al. Polyunsaturated fatty acids-rich dietary lipid prevents high fat diet-induced obesity in mice[J]. Scientific Reports, 2023, 13(1):5556.

DOI PMID

[2]
YEOMANS M R. Adverse effects of consuming high fat-sugar diets on cognition: implications for understanding obesity[J]. Proceedings of the Nutrition Society, 2017, 76(4):455-465.

[3]
RODRIGUES R R, GURUNG M, LI Z P, et al. Transkingdom interactions between Lactobacilli and hepatic mitochondria attenuate western diet-induced diabetes[J]. Nature Communications, 2021, 12(1):101.

[4]
FUNG T T, RIMM E B, SPIEGELMAN D, et al. Association between dietary patterns and plasma biomarkers of obesity and cardiovascular disease risk[J]. The American Journal of Clinical Nutrition, 2001, 73(1):61-67.

[5]
GONCALVES M D, HOPKINS B D, CANTLEY L C. Dietary fat and sugar in promoting cancer development and progression[J]. Annual Review of Cancer Biology, 2019,3:255-273.

[6]
ČOLAK E, PAP D. The role of oxidative stress in the development of obesity and obesity-related metabolic disorders[J]. Journal of Medical Biochemistry, 2021, 40(1):1-9.

DOI PMID

[7]
BIELKA W, PRZEZAK A, PAWLIK A. The role of the gut microbiota in the pathogenesis of diabetes[J]. International Journal of Molecular Sciences, 2022, 23(1):480.

[8]
FAN Y, PEDERSEN O. Gut microbiota in human metabolic health and disease[J]. Nature Reviews Microbiology, 2021, 19(1):55-71.

[9]
ZHANG M, YANG X J. Effects of a high fat diet on intestinal microbiota and gastrointestinal diseases[J]. World Journal of Gastroenterology, 2016, 22(40):8905-8909.

PMID

[10]
SHON W J, JUNG M H, KIM Y, et al. Sugar-sweetened beverages exacerbate high-fat diet-induced inflammatory bowel disease by altering the gut microbiome[J]. The Journal of Nutritional Biochemistry, 2023,113:109254.

[11]
杨竹青, 宋万明, 陈从英, 等. 影响宿主脂肪沉积的肠道微生物类别及其作用机理研究[J]. 动物营养学报, 2023, 35(11):6801-6809.

DOI

YANG Z Q, SONG W M, CHEN C Y, et al. Research progress on gut microbial taxa and their mechanisms affecting host fat deposition[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):6801-6809. (in Chinese)

DOI

[12]
GU H, GAN M, WANG L, et al. Differential expression analysis of tRNA-derived small RNAs from subcutaneous adipose tissue of obese and lean pigs[J]. Animals, 2022, 12(24):3561.

[13]
CHEN X Y, PAN S F, LI F, et al. Plant-derived bioactive compounds and potential health benefits:involvement of the gut microbiota and its metabolic activity[J]. Biomolecules, 2022, 12(12):1871.

[14]
KAMAL M M, AKTER S, LIN C N, et al. Sulforaphane as an anticancer molecule:mechanisms of action,synergistic effects,enhancement of drug safety,and delivery systems[J]. Archives of Pharmacal Research, 2020, 43(4):371-384.

[15]
MANGLA B, JAVED S, SULTAN M H, et al. Sulforaphane:a review of its therapeutic potentials,advances in its nanodelivery,recent patents,and clinical trials[J]. Phytotherapy Research, 2021, 35(10):5440-5458.

[16]
TIAN S H, LI X F, WANG Y F, et al. The protective effect of sulforaphane on type Ⅱ diabetes induced by high-fat diet and low-dosage streptozotocin[J]. Food Science & Nutrition, 2021, 9(2):747-756.

[17]
NAGATA N, XU L, KOHNO S, et al. Glucoraphanin ameliorates obesity and insulin resistance through adipose tissue browning and reduction of metabolic endotoxemia in mice[J]. Diabetes, 2017, 66(5):1222-1236.

DOI PMID

[18]
RANAWEERA S S, NATRAJ P, RAJAN P, et al. Anti-obesity effect of sulforaphane in broccoli leaf extract on 3T3-L1 adipocytes and ob/ob mice[J]. Journal of Nutritional Biochemistry, 2022,100:108885.

[19]
HOLMAN J, HURD M, MOSES P L, et al. Interplay of broccoli/broccoli sprout bioactives with gut microbiota in reducing inflammation in inflammatory bowel diseases[J]. The Journal of Nutritional Biochemistry, 2023,113:109238.

[20]
RAHMAN ALIZADEH M, MAHDAVI A H, RAHMANI H R, et al. Clove bud (Syzygium aromaticum) improved blood and hepatic antioxidant indices in laying hens receiving low n-6 to n-3 ratios[J]. Journal of Animal Physiology and Animal Nutrition, 2017, 101(5):881-892.

DOI PMID

[21]
SHAWKY N M, SEGAR L. Sulforaphane improves leptin responsiveness in high-fat high-sucrose diet-fed obese mice[J]. European Journal of Pharmacology, 2018,835:108-114.

[22]
YE J, ZHAO Y, CHEN X M, et al. Pu-erh tea ameliorates obesity and modulates gut microbiota in high fat diet fed mice[J]. Food Research International, 2021,144:110360.

[23]
吴海, 周赛男, 郭纯, 等. 一种基于PCR分析多样性的小鼠肠道微生物宏基因组提取方法[J]. 中国微生态学杂志, 2012, 24(7):648-651.

WU H, ZHOU S, GUO C, et al. A metagenome DNA extracting method of intestinal flora in mice for molecular diversity analysis based on PCR technology[J]. Chinese Journal of Microecology, 2012, 24(7):648-651.

[24]
JENSEN E A, BERRYMAN D E, MURPHY E R, et al. Heterogeneity spacers in 16S rDNA primers improve analysis of mouse gut microbiomes via greater nucleotide diversity[J]. BioTechniques, 2019, 67(2):55-62.

DOI PMID

[25]
MAGOČ T, SALZBERG S L. FLASH:fast length adjustment of short reads to improve genome assemblies[J]. Bioinformatics, 2011, 27(21):2957-2963.

[26]
BOKULICH N A, SUBRAMANIAN S, FAITH J J, et al. Quality-filtering vastly improves diversity estimates from Illumina amplicon sequencing[J]. Nature Methods, 2013, 10(1):57-59.

DOI PMID

[27]
EDGAR R C. UPARSE:highly accurate OTU sequences from microbial amplicon reads[J]. Nature Methods, 2013, 10(10):996-998.

[28]
XU X, DAI M, LAO F, et al. Effect of glucoraphanin from broccoli seeds on lipid levels and gut microbiota in high-fat diet-fed mice[J]. Journal of Functional Foods, 2020,68:103858.

[29]
ZHANG Y, WU Q F, LIU J, et al. Sulforaphane alleviates high fat diet-induced insulin resistance via AMPK/Nrf2/GPx4 axis[J]. Biomedicine & Pharmacotherapy, 2022,152:113273.

[30]
ZHANG Z Z, CHEN H L, PAN C, et al. Sulforaphane reduces adipose tissue fibrosis via promoting M2 macrophages polarization in HFD fed-mice[J]. Biochimica et Biophysica Acta (BBA)-Molecular Cell Research, 2024, 1871(2):119626.

[31]
SUN L L, PANG Y Y, WANG X M, et al. Ablation of gut microbiota alleviates obesity-induced hepatic steatosis and glucose intolerance by modulating bile acid metabolism in hamsters[J]. Acta Pharmaceutica Sinica. B, 2019, 9(4):702-710.

DOI PMID

[32]
HAN H, WANG M Y, ZHONG R Q, et al. Depletion of gut microbiota inhibits hepatic lipid accumulation in high-fat diet-fed mice[J]. International Journal of Molecular Sciences, 2022, 23(16):9350.

[33]
FISHBEIN S R S, MAHMUD B, DANTAS G. Antibiotic perturbations to the gut microbiome[J]. Nature Reviews Microbiology, 2023, 21(12):772-788.

[34]
MASSCHELIN P M, COX A R, CHERNIS N, et al. The impact of oxidative stress on adipose tissue energy balance[J]. Frontiers in Physiology, 2019,10:1638.

[35]
RANI V, DEEP G, SINGH R K, et al. Oxidative stress and metabolic disorders:pathogenesis and therapeutic strategies[J]. Life Sciences, 2016,148:183-193.

[36]
RUHEE R T, SUZUKI K. The integrative role of sulforaphane in preventing inflammation, oxidative stress and fatigue:a review of a potential protective phytochemical[J]. Antioxidants, 2020, 9(6):521.

[37]
MARTINS T, COLAÇO B, VENÂNCIO C, et al. Potential effects of sulforaphane to fight obesity[J]. Journal of the Science of Food and Agriculture, 2018, 98(8):2837-2844.

DOI PMID

[38]
ZHANG Y J, WU Q. Sulforaphane protects intestinal epithelial cells against lipopolysaccharide-induced injury by activating the AMPK/SIRT1/PGC-1ɑ pathway[J]. Bioengineered, 2021, 12(1):4349-4360.

[39]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

[40]
DE VOS W M, TILG H, VAN HUL M, et al. Gut microbiome and health:mechanistic insights[J]. Gut, 2022, 71(5):1020-1032.

[41]
TSENG C H, WU C Y. The gut microbiome in obesity[J]. Journal of the Formosan Medical Association, 2019, 118(Suppl.1):S3-S9.

[42]
ABDUGHENI R, WANG W Z, WANG Y J, et al. Metabolite profiling of human-originated Lachnospiraceae at the strain level[J]. iMeta, 2022, 1(4):e58.

[43]
ZHU X, CAI J, WANG Y, et al. A high-fat diet increases the characteristics of gut microbial composition and the intestinal damage associated with non-alcoholic fatty liver disease[J]. International Journal of Molecular Sciences, 2023, 24(23):16733.

[44]
ZHANG M, ZHANG X, ZHU J Y, et al. Bidirectional interaction of nobiletin and gut microbiota in mice fed with a high-fat diet[J]. Food & Function, 2021, 12(8):3516-3526.

[45]
王祥煌, 杜雯鹃, 徐乐, 等. 嗜黏蛋白阿克曼菌的生理功能及其在动物生产中的应用前景[J]. 动物营养学报, 2023, 35(9):5598-5610.

DOI

WANG X H, DU W J, XU L, et al. Physiological functions of Akkermansia muciniphila and its application prospects in animal production[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):5598-5610. (in Chinese)

[46]
XU Y, WANG N, TAN H Y, et al. Function of Akkermansia muciniphila in obesity:interactions with lipid metabolism,immune response and gut systems[J]. Frontiers in Microbiology, 2020,11:219.

[47]
LI B, ZHAO Y, LIU C, et al. Molecular pathogenesis of Klebsiella pneumoniae[J]. Future Microbiology, 2014, 9(9):1071-1081.

[48]
JUN S R, CHEEMA A, BOSE C, et al. Multi-omic analysis reveals different effects of sulforaphane on the microbiome and metabolome in old compared to young mice[J]. Microorganisms, 2020, 8(10):1500.

[49]
WANG X J, GU L P, ZHANG Y H, et al. Effects of dehydroepiandrosterone alone or in combination with a high-fat diet and antibiotic cocktail on the heterogeneous phenotypes of PCOS mouse models by regulating gut microbiota[J]. Frontiers in Endocrinology, 2022,13:1030151.

[50]
TONEY A M, FAN R, XIAN Y B, et al. Urolithin a, a gut metabolite, improves insulin sensitivity through augmentation of mitochondrial function and biogenesis[J]. Obesity (Silver Spring,Md), 2019, 27(4):612-620.

[51]
夏茂, 赵小刚, 郭吉余, 等. 蛋氨酸代谢及其对动物繁殖性能的影响研究进展[J]. 中国畜牧杂志, 2023, 59(5):17-23.

XIA M, ZHAO X G, GUO J Y, et al. Research progress on methionine metabolism and its effect on animal reproductive performance[J]. Chinese Journal of Animal Science, 2023, 59(5):17-23. (in Chinese)

[52]
GAI Y P, LIU B, MA H J, et al. The methionine biosynthesis regulator AaMetR contributes to oxidative stress tolerance and virulence in Alternaria alternata[J]. Microbiological Research, 2019,219:94-109.

Outlines

/