RESEARCH PAPER

Effects of Dietary Protein Level on Growth Performance, Serum Biochemical, Immune and Antioxidant Indices and Serum Metabolites of Lactating Calves

  • MA Li’na , 1, 2 ,
  • LI Leilei 3 ,
  • KANG Xiaodong 2 ,
  • GU Yaling , 1, * ,
  • GAO Haihui , 2, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Institute of Animal Science, Ningxia Academy of Agriculture and Forestry Sciences, Yinchuan 750002, China
  • 3 Ningxia Nationalities Vocational and Technical College, Wuzhong 751100, China
* GU Yaling, professor, E-mail: ;
GAO Haihui, associate professor, E-mail:

Received date: 2024-03-21

  Online published: 2024-09-08

Abstract

This experiment was conducted to investigate the effects of dietary protein level on growth performance, serum biochemical, immune, antioxidant indices and serum metabolites of lactating Simmental hybrid calves. Thirty newborn Simmental hybrid calves with average body weight of (42.00±2.5) kg and similar age were randomly divided into 3 groups with 10 calves in each group (half male and half female). Calves were suckled with cows and supplemented with pellet diets starting at 7 days of age. Calves in the three groups were fed the high protein level pellet diet with 22% crude protein (CP) and 5.40 MJ/kg combined net energy (NEmf) (high protein group), medium protein level pellet diet with 20% CP and 5.62 MJ/kg NEmf (medium protein group) and low protein level pellet diet with 18% CP, 5.70 MJ/kg NEmf (low protein group), respectively, and fed the same alfalfa hay. The pre-trial period lasted for 10 days, and the experimental period lasted for 90 days. The results showed as follows: 1) the body weight on day 60 and day 90 and average daily gain of calves in high protein group were significantly higher than those in medium and low protein groups (P<0.05). 2) The contents of total protein (TP), glucose (GLU) and immunoglobulin A (IgA), the activities of superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px) and total antioxidant capacity (T-AOC) in serum of calves in high protein group were significantly higher than those in medium and low protein groups (P<0.05), and the contents of tumor necrosis factor-α (TNF-α) and malondialdehyde (MDA) in serum were significantly lower than those in medium and low protein groups (P<0.05); the serum interleukin-4 (IL-4) content in high protein group was significantly higher than that in low protein group (P<0.05). 3) Through serum metabolomics analysis, 124 differential metabolites were screened out among the three groups, and mainly enriched in metabolic pathways such as cholesterol metabolism, bile secretion and protein digestion and absorption, etc., among which 6 metabolites as carnitine, glycochenodeoxycholic acid, cholic acid, deoxycholic acid, lithocholic acid and ceramide C18 could be used as the main indicators to identify the serum metabolomics characteristics of the growth and development of calves. In conclusion, diets with high protein level can increase the average daily gain, enhance the immune and antioxidant capacity, and promote the cholesterol metabolism, bile secretion and protein digestion and absorption of lactating calves. Under the conditions of this experiment, the pullet diet with 22% CP and 5.40 MJ/kg NEmf for lactation calves is suitable.

Cite this article

MA Li’na , LI Leilei , KANG Xiaodong , GU Yaling , GAO Haihui . Effects of Dietary Protein Level on Growth Performance, Serum Biochemical, Immune and Antioxidant Indices and Serum Metabolites of Lactating Calves[J]. Chinese Journal of Animal Nutrition, 2024 , 36(9) : 5776 -5792 . DOI: 10.12418/CJAN2024.491

随着经济社会的发展和人们健康饮食需求的提高,牛肉消费潜力不断增长,这意味着肉牛产业需要向更加精细化、科技化的方向道路。犊牛是养牛产业发展的基础,犊牛培育阶段也是肉牛产业发展的关键阶段,保障犊牛的健康成长是提高肉牛生产性能的一项重要技术措施[1]。近年来,通过营养调控措施改善肉牛的生产性能始终是产业界和学界人员研究的重点和热点,国内外关于营养调控促进肉用犊牛生产性能提升的研究已取得较大进展。研究表明,全混合颗粒饲料可提高安格斯公犊干物质采食量,减少精饲料用量,并提高日增重、产肉能力和经济效益[2];饲喂精补颗粒饲料可以提高肉牛哺乳犊牛的生长性能,降低腹泻发生率,改善血液指标[3];母体营养均衡供给会提升犊牛初生重、血清糖和氮营养代谢物含量,并提高血清生长相关激素及免疫球蛋白含量,从而促进犊牦牛的生长发育[4];高蛋白质[22%粗蛋白质(CP)]饲粮可以显著提高哺乳期安格斯犊牛日增重,并改善血清生化、免疫和抗氧化指标[5]
从出生到60日龄是幼龄畜营养调控的“窗口期”,这个阶段的营养素供给决定了之后生理阶段的机体生长发育、消化系统发育以及免疫系统建立,并决定了成年畜的机体健康和产品质量[1]。代谢组学已广泛应用于动物营养学的研究中,通过代谢组学技术可揭示营养物质的代谢过程、代谢通路及作用机理,为精准营养调控提供科学依据。虽然目前有关犊牛营养调控的研究较多,但关于不同蛋白质水平饲粮对哺乳期西门塔尔杂交犊牛生长、生理及代谢方面影响的研究报道较少。因此,本研究以哺乳期西门塔尔杂交犊牛为研究对象,探究饲粮不同蛋白质水平对其生长性能、血清生化、免疫和抗氧化指标以及血清代谢物的影响,并进一步利用代谢组学技术深入探究其内在机制,以期为我国肉用犊牛的饲粮营养管理提供理论基础和实践指导。

1 材料与方法

1.1 试验设计和饲粮

选择平均体重为(42.00±2.50) kg、日龄相近的30头新生西门塔尔杂交犊牛,随机分为3组,每组10头(公母各占1/2)。犊牛随母牛哺乳,从7日龄开始补饲颗粒料。3组犊牛分别饲喂高蛋白质水平[高蛋白质组,22% CP、5.40 MJ/kg综合净能(NEmf)]、中蛋白质水平(中蛋白质组,20% CP、5.62 MJ/kg NEmf)和低蛋白质水平(低蛋白质组,18% CP、5.70 MJ/kg NEmf)的颗粒料,并饲喂相同的苜蓿干草。预试期10 d,正试期 90 d。
饲粮参照《肉牛饲养标准》(NY/T 815—2004)配制,其中颗粒料饲喂量为体重的1%,日饲喂2次;苜蓿干草饲喂量为2 kg/(头·d),饲粮精粗比为40∶60。颗粒料组成及营养水平见表1,苜蓿干草营养成分见表2
表1 颗粒料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of pellet diets (DM basis) %

项目
Items
高蛋白质组
High protein group
中蛋白质组
Medium protein group
低蛋白质组
Low protein group
原料Ingredients
玉米Corn 55.0 57.5 59.0
棉籽粕Cottonseed meal 29.0 15.2 8.0
豆粕Soybean meal 10.0 19.0 22.5
麸皮Bran 1.0 3.0 5.0
大豆油Soybean oil 0.3 0.5
预混料Premix1) 5.0 5.0 5.0
合计Total 100.0 100.0 100.0
营养水平Nutrient levels2)
综合净能NEmf/(MJ/kg) 5.40 5.62 5.70
粗蛋白质CP 22.05 20.01 18.56
粗脂肪EE 5.11 4.95 4.02
中性洗涤纤维NDF 25.87 24.46 25.93
酸性洗涤纤维ADF 15.34 14.08 14.99
粗灰分Ash 7.13 7.01 6.98
钙Ca 0.6 0.8 1.0
磷P 0.4 0.5 0.5

1)预混料为每千克颗粒料提供 The premix provided the following per kg of pellet diets:VA 250 000 IU,VD 60 000 IU,VE 1 000 IU,Fe 80 mg,Cu 12 mg,Zn 80 mg,Mn 70 mg,Se 0.40 mg,I 1 mg,Co 0.80 mg。

2)综合净能参考NASEM(2016)计算,其余为实测值。NEmf was calculated by reference to NASEM (2016), while the others were measured values.

表2 苜蓿干草营养成分

Table 2 Nutrients in alfalfa hay

项目Items 含量Content
干物质DM/% 92.96
粗蛋白质CP/% DM 8.63
粗脂肪EE/% DM 2.57
粗灰分Ash/% DM 5.52
中性洗涤纤维NDF/% DM 54.53
酸性洗涤纤维ADF/% DM 26.11
钙Ca/% DM 0.59
磷P/% DM 0.30
总能GE/(MJ/kg DM) 20.08

1.2 样品采集

1.2.1 饲粮样品的采集

正试期间,每15 d采集1次犊牛饲草料,并将6次采集的饲草料混合在一起,采用四分法取样品500 g,于-20 ℃冰箱中保存,用于常规营养成分测定。

1.2.2 血清样品的采集

试验结束时,在犊牛晨饲3 h后采集血样,用一次性真空促凝采血管尾静脉采血,在2 500×g下离心15 min,分离血清至2 mL无菌离心管中,置于液氮中带回实验室保存于-20 ℃下,用于后续血清指标及代谢组检测。

1.3 测定指标及方法

1.3.1 饲粮营养成分含量测定

饲粮中干物质、CP、粗脂肪、粗灰分、中性洗涤纤维、酸性洗涤纤维、钙和磷含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 6438—2007、GB/T 20806—2006、NY/T 1459—2007、GB/T 6436—2018和GB/T 6437—2018方法测定,总能采用氧弹式热量计测定。

1.3.2 犊牛生长性能指标

分别于犊牛出生(试验开始)以及正试期第30、60和90天测量体重,记录试验期间饲草料饲喂量和剩余量,计算平均日增重、干物质采食量和料重比,计算公式如下:
平均日增重=(末重-初重)/试验天数;
干物质采食量=(总饲喂量-总剩料量)×干物质含量/(试验天数×犊牛头数);
料重比=干物质采食量/平均日增重。

1.3.3 血清生化、免疫和抗氧化指标测定

采用生化分析仪(爱德士)测定血清生化指标,采用酶联免疫吸附试验(ELISA)法测定血清免疫和抗氧化指标,测定步骤依据试剂盒说明书进行。

1.3.4 血清代谢物检测

采用液相色谱-串联质谱(LC-MS/MS)法进行非靶向代谢组学的分析,由北京奥维森基因科技有限公司完成。代谢组样品首先经过前处理去除蛋白及杂质并提取代谢物,然后在液相色谱-质谱(LC-MS)正、负模式下分别上机检测采集信息,后续的数据分析过程中将2组数据合并分析,得到代谢物的质谱(MS)和串联质谱(MS/MS)信息。采用Progenesis QI(Waters Corporation,美国)软件进行代谢物注释和数据预处理等,最终得到代谢物列表及数据矩阵,结合t检验和正交偏最小二乘方判别分析(OPLS-DA)的变量投影重要性(VIP)值,以VIP>1、P<0.05为标准筛选出差异代谢物。采用Origin 8.0软件根据接受者操作特征曲线(ROC)下的面积(AUC)进行判别,当代谢物AUC>0.8时,说明此代谢物具有较好的识别能力;当代谢物AUC>0.9时,说明此代谢物是识别血清样品的主要标志指标。根据所获得的代谢物通过京都基因与基因组百科全书(KEGG)和基因本体(GO)数据库进行注释和代谢产物途径分析。

1.4 数据统计分析

试验数据Excel 2010进行初步整理,然后采用SPSS 22.0软件进行单因素方差分析,并采用Duncan氏法进行多重比较,结果数据以“平均值±标准差”形式表示,P<0.05表示差异显著。

2 结果与分析

2.1 饲粮蛋白质水平对犊牛生长性能的影响

表3可知,高蛋白质组犊牛第60天和第90天体重以及平均日增重显著高于中蛋白质组和低蛋白质组(P<0.05),且中蛋白质组和低蛋白质组之间上述指标无显著差异(P>0.05)。各组间其他生长性能指标均无显著差异(P>0.05)。
表3 饲粮蛋白质水平对犊牛生长性能的影响

Table 3 Effects of dietary protein level on growth performance of calves

项目
Items
高蛋白质组
High protein
group
中蛋白质组
Medium protein
group
低蛋白质组
Low protein
group
P
P-value
初生重Birth body weight/kg 45.28±2.04 43.14±2.16 42.89±2.43 0.156
第30天体重Body weight on day 30/kg 98.43±13.04 90.95±14.64 92.63±15.83 0.234
第60天体重Body weight on day 60/kg 169.54±24.50a 143.35±24.82b 128.51±16.19b <0.001
第90天体重Body weight on day 90/kg 185.60±11.01a 165.39±13.21b 158.75±12.56b <0.001
平均日增重ADG/(kg/d) 1.65±0.23a 1.24±0.11b 1.17±0.08b 0.025
干物质采食量DMI/(kg/d) 1.28±0.28 1.25±0.19 1.03±0.25 0.178
颗粒料采食量Pellet diet intake/(kg/d) 1.12±0.15 0.98±0.06 0.92±0.21 0.370
苜蓿干草采食量Alfalfa hay intake/(kg/d) 0.74±0.03 0.68±0.02 0.71±0.02 0.172
料重比F/G 1.29±0.48 1.55±0.51 1.14±0.04 0.452

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。表4同。

Values in the same with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as Table 4.

2.2 饲粮蛋白质水平对犊牛血清生化、免疫和抗氧化指标的影响

表4可知,高蛋白质组犊牛血清总蛋白(TP)、葡萄糖(GLU)、免疫球蛋白A(IgA)含量和超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性以及总抗氧化能力(T-AOC)均显著高于中蛋白质组和低蛋白质组(P<0.05),高蛋白质组血清肿瘤坏死因子-α(TNF-α)和丙二醛(MDA)含量显著低于中蛋白质组和低蛋白质组(P<0.05),且中蛋白质组和低蛋白质组之间上述指标均无显著差异(P>0.05);高蛋白质组血清白细胞介素-4(IL-4)含量显著高于低蛋白质组(P<0.05)。各组间其他血清指标均无显著差异(P>0.05)。
表4 饲粮蛋白质水平对犊牛血清生化、免疫和抗氧化指标的影响

Table 4 Effects of dietary protein level on serum biochemical, immune and antioxidant indices of calves

项目
Items
高蛋白质组
High protein
group
中蛋白质组
Medium protein
group
低蛋白质组
Low protein
group
P
P-value
总蛋白TP/(g/L) 75.37±1.20a 69.17±5.11b 62.42±2.46b 0.036
甘油三酯TG/(mmol/L) 0.39±0.14 0.39±0.12 0.25±0.07 0.332
葡萄糖GLU/(mmol/L) 7.01±0.30a 5.85±0.40b 3.10±0.18b <0.001
免疫球蛋白A IgA/(mg/mL) 7.39±0.20a 5.35±0.33b 3.62±0.21b <0.001
免疫球蛋白G IgG/(mg/mL) 13.12±1.00 12.47±0.45 10.24±1.36 0.443
免疫球蛋白M IgM/(mg/mL) 4.86±0.21 4.06±0.57 4.12±0.55 0.203
白细胞介素-4 IL-4/(pg/mL) 92.24±5.92a 90.93±4.18ab 84.64±3.61b 0.046
肿瘤坏死因子-α TNF-α/(pg/mL) 234.88±13.87b 252.49±14.46a 259.09±19.24a 0.029
超氧化物歧化酶SOD/(U/mL) 64.69±10.69a 60.62±1.81b 48.89±0.18b <0.001
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 5.57±1.24a 3.00±1.72b 2.77±0.41b 0.023
丙二醛MDA/(nmol/mL) 4.39±0.05b 5.34±0.12a 6.03±0.04a 0.029
总抗氧化能力T-AOC/(μmol/mL) 1.23±0.15a 1.00±0.05b 0.23±0.01b <0.001

2.3 饲粮蛋白质水平对犊牛血清代谢物的影响

2.3.1 多元变量模式识别分析
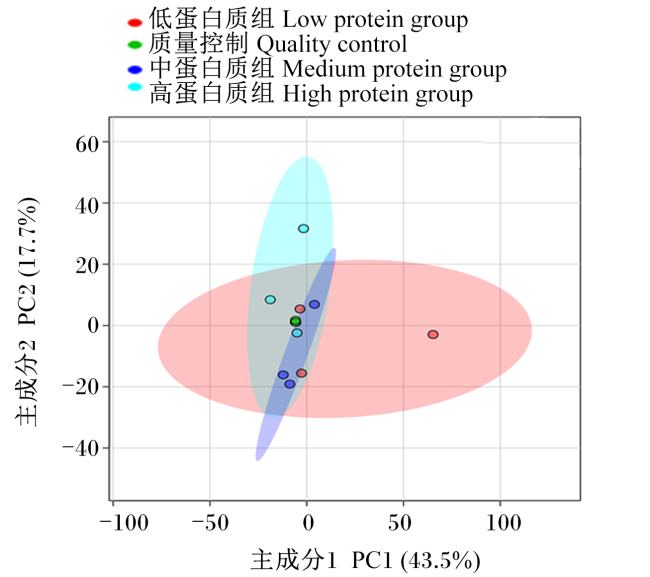
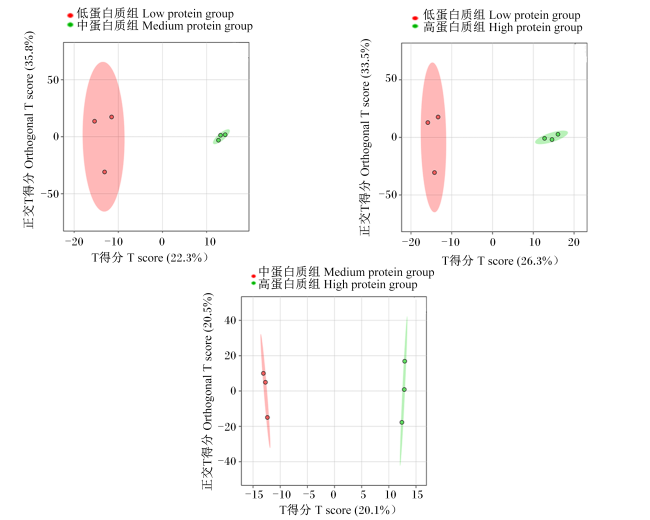
图1所示,在主成分分析(PCA)结果中,各组样本均位于其95%的置信区间内,表明各组样本组内差异小;各组样本间出现部分重叠,表明组间具有类似的代谢物特征;不过,不同组变化规律不同,说明饲粮不同蛋白质水平使犊牛血清代谢物发生了不同幅度的变化,即饲粮蛋白质水平对犊牛血清代谢组有较大影响。如图2所示,OPLS-DA得分图显示,不同组间样品均发生明显的分离,同一组内样品呈聚集趋势,表明组间聚类差异显著,OPLS-DA模型稳定可靠,对各组样品具有良好的预测能力。
图1 犊牛血清代谢物PCA

Fig.1 PCA in serum metabolites of calves

图2 犊牛血清代谢物OPLS-DA

Fig.2 OPLS-DA in serum metabolites of calves

2.3.2 血清差异代谢物的筛选

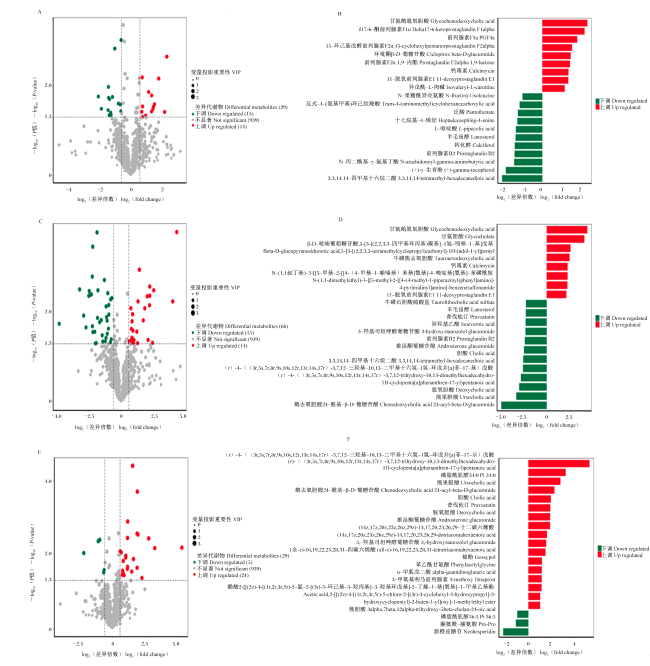
图3表5可知,低蛋白质组与中蛋白质组相比共筛选出29个血清差异代谢物,其中14个代谢物上调,15个代谢物下调;对差异排名前20的代谢物进行可视化分析得出,甘氨鹅脱氧胆酸、δ17-6-酮前列腺素F1α和前列腺素F3a等含量显著上调(P<0.05),3,3,14,14-四甲基十六烷二酸、(+)-γ-生育酚和N-丙二酰基-γ-氨基丁酸等含量显著下调(P<0.05)。低蛋白质组与高蛋白组相比共筛选出66个差异代谢物,其中29个代谢物上调,37个代谢物下调;对差异排名前20的代谢物进行可视化分析得出,甘氨鹅脱氧胆酸、甘氨胆酸和β-D-吡喃葡萄糖苷酸,5-[3-四甲基环丙基)羰基]-1氢-吲哚-1-基]戊基等含量显著上调(P<0.05),鹅去氧胆酸24-酰基-β-D-葡糖苷酸、熊果胆酸和脱氧胆酸等含量显著下调(P<0.05)。高蛋白质组与中蛋白质组相比共筛选出29个血清差异代谢物,其中24个代谢物上调,5个代谢物下调;对差异排名前20的代谢物进行可视化分析得出,(r)-4-((3r,5s,7r,8r,9s,10s,12r,13r,14s,17r)-3,7,12-三羟基-10,13-二甲基十六氢-1氢-环戊并[a]菲-17-基)戊酸、磷脂酰肌醇34∶0和熊果胆酸等含量显著上调(P<0.05),新橙皮糖苷、脯氨酰-脯氨酸和磷脂酰肌醇36∶5含量显著下调(P<0.05)。
图3 饲粮蛋白质水平对犊牛血清代谢物的影响

A、C和E为差异代谢物火山图,B、D和F为前20种差异代谢物。A和B表示低蛋白质组与中蛋白质组相比,C和D表示低蛋白质组与高蛋白组相比,E和F表示高蛋白质组与中蛋白质组相比。

Fig.3 Effects of dietary protein level on serum metabolites of calves

A, C and E were volcano plots of differential metabolites, and B, D and F were top 20 differential metabolites. A and B represented low protein group vs. medium protein group, C and D represented low protein group vs. high protein group, and E and F represented high protein group vs. medium protein group.

表5 饲粮蛋白质水平对犊牛血清代谢物的影响

Table 5 Effects of dietary protein level on serum metabolites of calves

项目
Items
代谢物
Metabolites
含量变化
Content change
变量投影
重要性
VIP
log2
(差异倍数)
log2
(fold change)
低蛋白质组与中蛋白质组相比Low protein group vs. medium protein group
1 3,3,14,14-四甲基十六烷二酸
3,3,14,14-tetramethyl-hexadecanedioic acid
下调 1.82 -2.05
2 (+)-γ-生育酚(+)-gamma-tocopherol 下调 1.79 -1.86
3 N-丙二酰基-γ-氨基丁酸
N-arachidonoyl-gamma-aminobutyric acid
下调 1.75 -1.43
4 前列腺素B2 Prostaglandin B2 下调 1.88 -1.41
5 钙化醇Calciferol 下调 1.84 -1.40
6 羊毛甾醇Lanosterol 下调 1.66 -1.36
7 L-哌啶酸L-pipecolic acid 下调 1.88 -1.34
8 十七烷基-4-烯烃Heptadecasphing-4-enine 下调 1.70 -1.27
9 泛酸Pantothenate 下调 1.72 -1.24
10 反式-4-(氨基甲基)环己烷羧酸
Trans-4-(aminomethyl)cyclohexanecarboxylic acid
下调 1.87 -1.16
11 N-果糖酰异亮氨酸N-fructosyl isoleucine 下调 2.01 -1.01
12 三甲胺N-氧化物Trimethylamine N-oxide 下调 1.83 -0.78
13 獐牙马素Swertiamarin 下调 1.78 -0.66
14 季戊四醇四(3,5-二叔丁基-4-羟基氢化肉桂酸酯)
Pentaerythritol tetrakis(3,5-di-tert-butyl-4-hydroxyhydrocinnamate)
下调 1.71 -0.62
15 L-苏氨酸L-threonine 下调 2.07 -0.60
16 4'-O-beta-D-葡萄糖基-5-O-甲基维沙米醇
4'-O-beta-D-glucosyl-5-O-methylvisamminol
上调 1.75 0.70
17 1-苯甲酰-2-羟基-sn-甘油-3-磷酸胆碱
1-behenoyl-2-hydroxy-sn-glycero-3-phosphocholine
上调 2.00 0.73
18 (r)-丁酰肉碱(r)-butyrylcarnitine 上调 1.76 0.74
19 肉碱Carnitine 上调 1.90 0.75
20 美托洛尔酸Metoprolol acid 上调 1.78 0.95
21 异戊酰-L-肉碱Isovaleryl-L-carnitine 上调 1.87 1.14
22 11-脱氧前列腺素E1 11-deoxyprostaglandin E1 上调 1.81 1.32
23 钙霉素Calcimycin 上调 1.88 1.33
24 前列腺素F2α 1,9-内酯Prostaglandin F2alpha 1,9-lactone 上调 1.79 1.41
25 环吡酮β-D-葡糖苷酸Ciclopirox beta-D-glucuronide 上调 1.81 1.44
26 15-环己基戊醇前列腺素F2α
15-cyclohexylpentanorprostaglandin F2alpha
上调 1.86 1.51
27 前列腺素F3a PGF3a 上调 2.01 1.78
28 δ17-6-酮前列腺素F1α Delta17-6-ketoprostaglandin F1alpha 上调 1.85 2.15
29 甘氨鹅脱氧胆酸Glycochenodeoxycholic acid 上调 2.01 2.29
低蛋白质组与高蛋白质组相比Low protein group vs. high protein group
1 鹅去氧胆酸24-酰基-β-D-葡糖苷酸
Chenodeoxycholic acid 24-acyl-beta-D-glucuronide
下调 1.74 -4.80
2 熊果胆酸Ursocholic acid 下调 1.85 -3.22
3 脱氧胆酸Deoxycholic acid 下调 1.80 -2.91
4 (r)-4-((3r,5s,7r,8r,9s,10s,12r,13r,14s,17r)-3,7,12-三羟基-
10,13-二甲基十六氢-1氢-环戊并[a]菲-17-基)戊酸
(r)-4-((3r,5s,7r,8r,9s,10s,12r,13r,14s,17r)-3,7,12-trihydroxy-10,13-
dimethylhexadecahydro-1H-cyclopenta[a]phenanthren-17-yl)pentanoic acid
下调 1.71 -2.72
5 3,3,14,14-四甲基十六烷二酸
3,3,14,14-tetramethyl-hexadecanedioic acid
下调 1.84 -2.51
6 胆酸Cholic acid 下调 1.86 -2.47
7 雄甾酮葡糖苷酸Androsterone glucuronide 下调 1.83 -2.40
8 前列腺素B2 Prostaglandin B2 下调 1.88 -2.31
9 3-羟基司坦唑醇葡糖苷酸3-hydroxystanozolol glucuronide 下调 1.88 -2.24
10 异羟基乙酸Isoevernic acid 下调 1.72 -2.23
11 普伐他汀Pravastatin 下调 1.92 -2.20
12 羊毛甾醇Lanosterol 下调 1.70 -2.19
13 磷脂酰肌醇34∶0 Pi 34∶0 下调 1.68 -2.04
14 3-羟基异戊酸3-hydroxyisovaleric acid 下调 1.65 -1.99
15 2-羟基腺嘌呤2-hydroxyadenine 下调 1.65 -1.94
16 羟基脂肪酸支链脂肪酸酯28∶0 FAHFA 28∶0 下调 1.90 -1.88
17 (+)-γ-生育酚(+)-gamma-tocopherol 下调 1.73 -1.84
18 醋酸,2-[[(2z)-4-[(1r,2r,3r,5r)-5-氯-2-[(3r)-3-环己基-3-
羟丙基]-3-羟基环戊基]-2-丁烯-1-基]氧基]-1-甲基乙基酯
Acetic acid,2-[[(2z)-4-[(1r,2r,3r,5r)-5-chloro-2-[(3r)-3-cyclohexyl-3-
hydroxypropyl]-3-hydroxycyclopentyl]-2-buten-1-yl]oxy]-1-methylethyl ester
下调 1.87 -1.80
19 1-甲基鸟苷1-methylguanosine 下调 1.77 -1.67
20 7-甲基鸟苷7-methylguanosine 下调 1.79 -1.55
21 石胆酸Lithocholic acid 下调 1.73 -1.47
22 3-甲氧基利马前列腺素3-methoxy limaprost 下调 1.59 -1.43
23 十七烷基-4-烯烃Heptadecasphing-4-enine 下调 1.88 -1.30
24 1-单亚麻酸甘油酯1-monolinoleoyl-rac-glycerol 下调 1.64 -1.24
25 N-果糖酰异亮氨酸N-fructosyl isoleucine 下调 1.65 -1.18
26 N,n-二甲基鸟苷N,n-dimethylguanosine 下调 1.83 -1.17
27 熊胆酸
3alpha,7beta,12alpha-trihydroxy-5beta-cholan-24-oic acid
下调 1.74 -1.13
28 精氨基缬氨酸Arg-Val 下调 1.73 -1.09
29 吲哚Indole 下调 1.64 -1.08
30 三甲胺N-氧化物Trimethylamine N-oxide 下调 1.86 -1.04
31 D-喹喹糖D-quinovose 下调 1.69 -0.99
32 苯乙酸Phenyllactic acid 下调 1.83 -0.96
33 L-苏氨酸L-threonine 下调 1.79 -0.96
34 棉酚Gossypol 下调 1.61 -0.83
35 缬氨酰丙氨酰赖氨酸Val-Ala-Lys 下调 1.83 -0.83
36 L-正亮氨酸L-norleucine 下调 1.65 -0.77
37 季戊四醇四(3-(3,5-二叔丁基-4-羟基苯基)丙酸酯)
Pentaerythritol tetrakis(3,5-di-tert-butyl-4-hydroxyhydrocinnamate)
下调 1.81 -0.72
38 暹罗皂苷i Siamenoside i 上调 1.67 0.62
39 异戊酰-L-肉碱Isovaleryl-L-carnitine 上调 1.55 0.64
40 假白藜芦碱Pseudojervine 上调 1.83 0.74
41 N-去-(4,4-二氟环己甲酰氧基)-N-苄氧羰基-3-
叔丁基二甲基硅氧基甲基马拉韦罗
N-des-(4,4-difluorocyclohexanecarboxy)-N-
carbobenzyloxy-3-tert-butyldimethylsilyloxymethylmaraviroc
上调 1.67 0.75
42 茄边碱Solamargine 上调 1.69 0.78
43 1-山嵛酰基-2-羟基-sn-甘油-3-磷酸胆碱
1-behenoyl-2-hydroxy-sn-glycero-3-phosphocholine
上调 1.71 0.79
44 1-二十糖酰基-sn-甘油-3-磷酸胆碱
1-arachidoyl-2-hydroxy-sn-glycero-3-phosphocholine
上调 1.65 0.83
45 N-[2-(二甲基氨基)乙基]-N-甲基-4-[[[[4-[4-(4-吗啉
基)-7-(2,2,2-三氟乙基)-7氢-吡咯并[2,3-D]嘧啶-2-基]
苯基]氨基甲酰基]氨基]-苯甲酰胺
N-[2-(dimethylamino)ethyl]-N-methyl-4-[[[[4-[4-(4-morpholinyl)-
7-(2,2,2-trifluoroethyl)-7H-pyrrolo[2,3-D]pyrimidin-
2-yl]phenyl]amino]carbonyl]amino]-benzamide
上调 1.81 0.84
46 利血平Reserpine 上调 1.81 0.88
47 1-棕榈酰基-2-(4-酮基十二烷-3-烯-二基)磷脂酰胆碱
1-palmitoyl-2-(4-ketododec-3-enedioyl)phosphatidylcholine
上调 1.74 0.91
48 升麻素苷H2 Cimicifugoside H2 上调 1.67 0.92
49 丙硫菌唑Prothioconazole 上调 1.67 0.94
50 十氢甘柏酸Decahydrogambogic acid 上调 1.65 0.96
51 卡麦角林Cabergoline 上调 1.64 0.99
52 前列腺素F3a PGF3a 上调 1.75 1.21
53 3-(1氢-吲哚-3-基甲基)-6,18-二甲基-9-(2-甲基丙基)-
12-(1-异丙基)-15-丙-2-基-1,4,7,10,13,16,19-七氮
杂环二烷-2,5,8,11,14,17,20-庚酮
3-(1H-indol-3-ylmethyl)-6,18-dimethyl-9-(2-methylpropyl)-
12-(1-phenylethyl)-15-propan-2-yl-1,4,7,10,13,16,19-
heptazacyclotricosane-2,5,8,11,14,17,20-heptone
上调 1.65 1.27
54 美托洛尔酸Metoprolol acid 上调 1.84 1.30
55 伊马替尼Imatinib 上调 1.88 1.41
56 环吡酮β-D-葡糖苷酸
Ciclopirox beta-D-glucuronide
上调 1.74 1.71
57 15-环己基戊醇前列腺素F2α
15-cyclohexylpentanorprostaglandin F2alpha
上调 1.80 1.82
58 前列腺素F2α 1,9-内酯
Prostaglandin F2alpha 1,9-lactone
上调 1.83 2.01
59 牛磺石胆酸硫酸盐Taurolithocholic acid sulfate 上调 1.65 2.08
60 11-脱氧前列腺素E1 11-deoxyprostaglandin E1 上调 1.80 2.19
61 N-(1,1叔丁基)-3-[[5-甲基-2-[[4-(4-甲基-1-
哌嗪基)苯基]氨基]-4-嘧啶基]氨基]-苯磺酰胺
N-(1,1-dimethylethyl)-3-[[5-methyl-2-[[4-(4-methyl-1-
piperazinyl)phenyl]amino]-4-pyrimidinyl]amino]-
benzenesulfonamide
上调 1.82 2.21
62 钙霉素Calcimycin 上调 1.85 2.21
63 牛磺熊去氧胆酸Tauroursodeoxycholic acid 上调 1.62 2.42
64 β-D-吡喃葡萄糖苷酸,5-[3-[(2,2,3,3-四甲基
环丙基)羰基]-1氢-吲哚-1-基]戊基
Beta-D-glucopyranosiduronic acid,5-[3-[(2,2,3,3-
tetramethylcyclopropyl)carbonyl]-1H-indol-1-yl]pentyl
上调 1.85 2.52
65 甘氨胆酸Glycocholate 上调 1.82 3.99
66 甘氨鹅脱氧胆酸Glycochenodeoxycholic acid 上调 1.91 4.30
高蛋白质组与中蛋白质组相比High protein group vs. medium protein group
1 新橙皮糖苷Neohesperidin 下调 2.07 -2.18
2 脯氨酰-脯氨酸Pro-Pro 下调 2.10 -1.08
3 磷脂酰肌醇36∶5 Pi 36∶5 下调 2.13 -0.97
4 N-硬脂酰鞘氨醇(神经酰胺C18)
N-stearoylsphingosine (ceramide C18)
下调 1.90 -0.67
5 升麻素苷H2 Cimicifugoside H2 下调 1.94 -0.63
6 缬氨酰丙氨酰赖氨酸Val-Ala-Lys 上调 2.06 0.60
7 1-棕榈酰基-2-羟基-sn-甘油-3-磷酸-(1-rac-甘油)
1-palmitoyl-2-hydroxy-sn-glycero-3-phospho-(1-rac-glycerol)
上调 2.05 0.67
8 β-羟基丁酸Beta-hydroxybutyrate 上调 1.87 0.75
9 γ-L-谷氨酰-L-谷氨酸
Gamma-L-glutamyl-L-glutamic acid
上调 1.92 0.78
10 异戊酰甘氨酸Isovalerylglycine 上调 1.89 0.82
11 反式羟基格列美脲Trans-hydroxyglimepiride 上调 2.01 0.83
12 前列腺素B2 Prostaglandin B2 上调 1.88 0.90
13 熊胆酸
3alpha,7beta,12alpha-trihydroxy-5beta-cholan-24-oic acid
上调 2.04 1.02
14 醋酸,2-[[(2z)-4-[(1r,2r,3r,5r)-5-氯-2-[(3r)-3-
环己基-3-羟丙基]-3-羟基环戊基]-2-丁烯-1-基]
氧基]-1-甲基乙基酯
Acetic acid,2-[[(2z)-4-[(1r,2r,3r,5r)-5-chloro-2-[(3r)-3-
cyclohexyl-3-hydroxypropyl]-3-hydroxycyclopentyl]-2-
buten-1-yl]oxy]-1-methylethyl ester
上调 2.04 1.02
15 3-甲氧基利马前列腺素3-methoxy limaprost 上调 1.94 1.14
16 α-甲胍戊二酸alpha-guanidinoglutaric acid 上调 2.13 1.15
17 苯乙酰甘氨酸Phenylacetylglycine 上调 1.96 1.16
18 棉酚Gossypol 上调 2.17 1.17
19 (全-z)-16,19,22,25,28,31-四碳六烯酸
(all-z)-16,19,22,25,28,31-tetratriacontahexaenoic acid
上调 1.92 1.48
20 3-羟基司坦唑醇葡糖苷酸
3-hydroxystanozolol glucuronide
上调 2.22 1.54
21 (14z,17z,20z,23z,26z,29z)-14,17,20,23,26,29-十二碳六烯酸
(14z,17z,20z,23z,26z,29z)-14,17,20,23,26,29-
dotriacontahexaenoic acid
上调 2.03 1.61
22 雄甾酮葡糖苷酸Androsterone glucuronide 上调 2.13 1.88
23 脱氧胆酸Deoxycholic acid 上调 1.95 1.88
24 普伐他汀Pravastatin 上调 2.21 1.90
25 胆酸Cholic acid 上调 2.14 1.95
26 鹅去氧胆酸24-酰基-β-D-葡糖苷酸
Chenodeoxycholic acid 24-acyl-beta-D-glucuronide
上调 1.85 2.25
27 熊果胆酸Ursocholic acid 上调 2.12 2.77
28 磷脂酰肌醇34∶0 Pi 34∶0 上调 2.08 3.23
29 (r)-4-((3r,5s,7r,8r,9s,10s,12r,13r,14s,17r)-3,7,12-
三羟基-10,13-二甲基十六氢-1氢-环戊并[a]菲-17-基)戊酸
(r)-4-((3r,5s,7r,8r,9s,10s,12r,13r,14s,17r)-3,7,12-trihydroxy-
10,13-dimethylhexadecahydro-1H-cyclopenta[a]
phenanthren-17-yl)pentanoic acid
上调 2.08 5.30

2.3.3 血清差异代谢物代谢通路分析

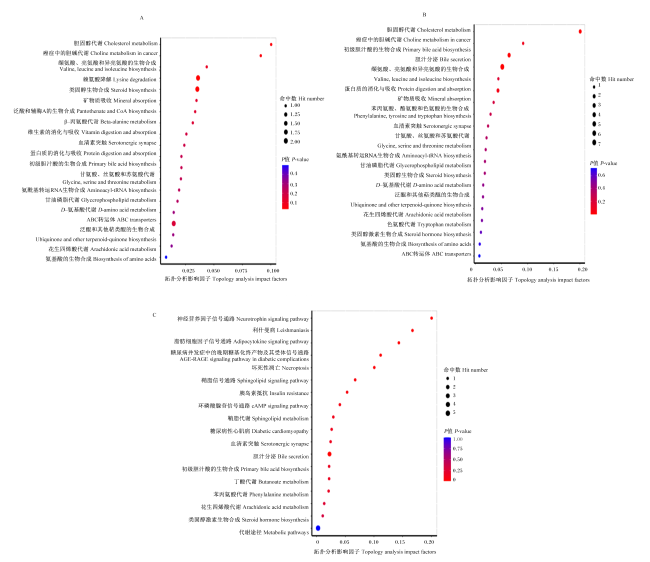
图4所示,采用KEGG数据库对犊牛血清差异代谢物进行代谢通路富集分析,结果显示,低蛋白质组与中蛋白质组相比血清差异代谢物主要富集在赖氨酸降解、类固醇生物合成和胆固醇代谢等代谢通路;低蛋白质组与高蛋白组相比血清差异代谢物主要富集在胆固醇代谢、初级胆汁酸的生物合成、胆汁分泌以及蛋白质的消化与吸收等代谢通路;高蛋白质组与中蛋白质组相比血清差异代谢物主要富集在神经营养因子信号通路、坏死性凋亡和胆汁分泌等代谢通路。
图4 犊牛血清差异代谢物代谢通路分析

A表示低蛋白质组与中蛋白质组相比,B表示低蛋白质组与高蛋白组相比,C表示高蛋白质组与中蛋白质组相比。

Fig.4 Analysis of metabolic pathways of serum differential metabolites of calves

A represented low protein group vs. medium protein group, B represented low protein group vs. high protein group, and C represented high protein group vs. medium protein group.

2.3.4 标志血清代谢物的筛选

选择3组犊牛血清代谢组中发现的12种代谢物(肉碱、L-哌啶酸、羊毛甾醇、钙化醇、甘氨胆酸、甘氨鹅脱氧胆酸、胆酸、脱氧胆酸、石胆酸、普伐他汀、牛磺石胆酸硫酸盐和神经酰胺C18),采用Origin 8.0软件筛选出AUC>0.8的6种代谢物(肉碱、甘氨鹅脱氧胆酸、胆酸、脱氧胆酸、石胆酸和神经酰胺C18),可以作为主要标志指标来识别犊牛生长发育的血清代谢组学特征。

3 讨论

3.1 饲粮蛋白质水平对犊牛生长性能的影响

在动物生长发育过程中,饲粮营养水平的高低直接影响其生长性能。良好的营养水平和配比有助于犊牛生长发育及免疫器官功能的完善,从而提高犊牛免疫力及对环境的抵抗能力。营养不足或不平衡会导致生长迟缓,而优化的营养配方可以促进犊牛的生长发育,并降低其发病率。犊牛饲粮中的能量和蛋白质水平对犊牛生长性能和健康状况有非常关键的作用[3],尤其是蛋白质作为动物体生命的物质基础,除了维持生长发育外,更是在维持免疫功能及表达免疫活性中发挥着特殊的生物学作用[6]。犊牛在哺乳期的主要营养来源于母乳,但在30日龄左右,犊牛已经开始逐渐采食颗粒饲料和牧草,此时,加强营养成分的摄入和吸收,有利于犊牛后期体重的增加。此外,在犊牛断奶之前引入干饲料,可使犊牛快速有效地适应干饲料,增加营养摄入,提升生长性能,并对犊牛瘤胃功能发育及免疫系统的完善有积极作用[7]。相关研究表明,当饲喂西门塔尔犊牛高营养水平饲粮(20.20% CP,3.65 MJ/kg NEmf)时,可显著提高犊牛平均日增重、胸围、饲料转化率和养殖效益[8]。荷斯坦奶公牛CP摄入量、血清尿素氮含量、氮摄入量、总氮分泌以及可消化氮沉积率均随着饲粮蛋白质水平的提高而线性提高,提高饲粮蛋白质水平能显著提高奶公牛终体重、平均日增重、采食量、体高和腰围[9]。高蛋白质水平饲粮(22% CP)可显著提高哺乳期犊牛体重和日增重,降低料重比[5]。高蛋白质组犊牛采食量最高,且犊牛平均日增重随着饲粮蛋白质水平的提高而提高[10]。通过饲喂代乳粉可保证犊牛摄入充足的营养物质,为生命活动提供能量,从而显著提高犊牛成活率[11]。本研究发现,高蛋白质组犊牛第60天和第90天体重以及平均日增重均显著高于低蛋白质组和中蛋白质组,这表明饲粮蛋白质水平对犊牛生长发育有显著影响,高蛋白质水平饲粮能提高犊牛采食量,并提高犊牛早期生长性能,这与前人研究结果一致。犊牛的生长性能很大程度上取决于其采食的饲粮类型、饲养系统和肠道菌群平衡等[12]

3.2 饲粮蛋白质水平对犊牛血清生化、免疫和抗氧化指标以及血清代谢物的影响

血清指标是反映机体活动代谢的各项重要参数,动物血清指标主要有生化指标、免疫指标和抗氧化指标。血液指标因其方便、经济的特点而被用作评估动物健康与代谢状况的判断依据[13]。血清TP是构成机体组织和修补组织的原料,同时也是维持动物新陈代谢和生理功能的重要物质[14]。Sharma等[15]研究发现,犊牛开食料中的CP含量增加后,血清TP含量也随之增加。Li等[16]也研究发现,用蛋白质含量较高的代乳粉饲喂犊牛,血浆TP含量也较高。这与本研究中高蛋白质组犊牛血清TP含量显著高于中蛋白质组和低蛋白质组的结果相同,原因可能是当犊牛开食料中的蛋白质含量增加时,会使血液中的蛋白质免于分解,从而暂时提高血液中的蛋白质含量。GLU是动物体生长代谢主要的能量来源,为体内各种器官的正常运转提供能量,血液中GLU含量的变化反映出了机体对GLU的吸收和利用情况[17]。本研究中,高蛋白质组犊牛血清GLU含量显著高于中蛋白质组和低蛋白质组,推测可能是血清GLU含量的提高促进了机体GLU代谢,从而改善了平均日增重。血清免疫球蛋白含量反映了体液免疫的功能状态[18]。本研究中,高蛋白质组犊牛血清IgA含量显著高于中蛋白质组和低蛋白质组,血清免疫球蛋白G(IgG)和免疫球蛋白M(IgM)含量各组间差异虽不显著,但高蛋白质组在数值上均高于中蛋白质组和低蛋白质组。这表明高蛋白质水平饲粮提升了犊牛的免疫机能,使其抗病力更强。IL-4对肝脏的主要作用是通过促进胰岛素刺激的葡萄糖摄取和脂质合成来促进能量储存,并具有重要的免疫调节功能[19]。TNF-α作为一种促炎症细胞因子,会增加细胞的通透性,损害肠道屏障功能及促进水肿的形成,并与埃希氏菌引起的腹泻有关[20]。MDA是机体脂质产生过氧化反应之后的产物,其含量越高,代表此时机体所承受的氧化应激反应越严重[21]。GSH-Px和SOD是动物机体抗氧化系统中的重要组成部分,它们可以催化与活性氧相关的各种化学反应,在抑制羟基自由基的形成和清除过氧化物方面发挥着重要作用,并在机体自卫中起着至关重要的作用[22]。SOD活性间接反映了机体清除自由基的能力。T-AOC是衡量动物机体内所有抗氧化物质和抗氧化酶抗氧化能力的综合指标[23]。本试验中,高蛋白质组犊牛血清IL-4含量显著高于低蛋白质组,血清SOD、GSH-Px活性以及T-AOC显著高于中蛋白质组和低蛋白质组,血清TNF-α和MDA含量显著低于中蛋白质组和低蛋白质组,这表明高蛋白质水平饲粮可以提升犊牛的抗氧化能力,减少犊牛细胞损伤和疾病的发生。
代谢组学是研究生物体内小分子代谢物的组成和变化。在牛和羊的饲养中,通过分析代谢组可以更好地理解饲粮营养如何影响动物的代谢过程,从而优化饲粮配方以改善健康和生产性能。本研究通过代谢组学比较饲喂不同蛋白质水平饲粮犊牛的血清样品,结果显示不同蛋白质水平饲粮改变了犊牛血清代谢组特征。与中蛋白质组和低蛋白质组相比,高蛋白质组犊牛血清鹅去氧胆酸24-酰基-β-D-葡糖苷酸、熊果胆酸和脱氧胆酸等代谢物含量显著上调。熊果胆酸和脱氧胆酸通过初级胆汁酸生物合成产生,在胆囊和小肠脂肪吸收和消化中起关键作用[24]。较高含量的熊果胆酸和脱氧胆酸已被证明可以促进胆囊收缩,增强胆汁和脂肪酸的形成,进而改善肠道对脂肪酸、甘油和胆固醇的吸收,并影响肠道微生物的生长和组成,最终促进肠道消化和吸收[25]。本研究结果表明,高蛋白质水平饲粮可能会刺激犊牛肠道胆汁循环系统,减少胆汁酸的合成,有利于犊牛对营养物质的消化吸收。分析3组血清差异代谢物类型发现,主要包括氨基酸及其代谢物、胆汁酸及其代谢物、胆碱、杂环化合物以及色素等。作为主要底物或中间产物,它们参与体内多种代谢,主要代谢途径包括胆固醇代谢、胆汁分泌以及蛋白质的消化与吸收等。胆固醇是一种具有多种作用的脂质,它是细胞膜的重要组成部分,是胆汁酸、类固醇和氧甾醇的前体[26]。胆固醇从饮食中吸收,并在细胞途径中合成,生物合成约占血清胆固醇的80%[27]。Johnson等[28]研究发现,较高的能量供应增强了16周龄公犊牛的胆固醇生物合成。这与本研究中较高蛋白质水平饲粮促进了犊牛胆固醇代谢的结果一致。胆汁酸由肝脏合成,维持体内脂质代谢的平衡,在肠道中运输脂肪,促进脂肪吸收[29]。胆汁酸作为肠道微生物和宿主之间双向通讯的重要信号和调节因子,可以通过多种宿主受体沿肠-肝轴执行关键的病理生理功能[30]。小肠中的脂肪酶可被胆汁酸激活,最终催化脂质的消化和利用[31]。由此可见,本研究中高蛋白质组犊牛生长性能优于其余2组,这可能与高蛋白质组犊牛饲粮中的较高水平蛋白质增强了其免疫机能与对营养物质的吸收能力有关。Leal等[32]研究发现,断奶前饲喂不同营养水平的饲粮会影响荷斯坦犊牛的蛋白质和能量代谢。Chen等[33]研究表明,通过补饲精料浓缩补充料可以提高膳食蛋白质和能量水平,从而导致更高的平均日增重。Connolly等[34]研究表明,血浆β-羟基丁酸、肌酐和天冬氨酸的含量与和牛的生长速度相关。Ogunade等[35]研究表明,脯氨酰缬氨酸、脯氨酰异亮氨酸和脯氨酰亮氨酸在内的代谢物含量在生长速度较快高的公牛血液中更高。Kim等[36]研究发现,饲喂不同蛋白质水平饲粮的汉和牛蛋白质消化吸收代谢受到影响。本研究中,不同蛋白质水平饲粮也改变了犊牛血清代谢组,影响了犊牛蛋白质代谢。高蛋白质组犊牛生长速度较中蛋白质组和低蛋白质组更快,原因是其血清中的氨基酸含量较高以及体内蛋白质代谢更为活跃。因此,不同蛋白质水平饲粮影响了犊牛机体代谢,较高蛋白质水平饲粮促进了犊牛胆固醇代谢、胆汁分泌以及蛋白质的消化与吸收,使犊牛生长性能提升。此外,本研究筛选出肉碱、甘氨鹅脱氧胆酸、胆酸、脱氧胆酸、石胆酸和神经酰胺C18这6种代谢物,可以作为主要标志指标来识别犊牛生长发育的血清代谢组学特征。

4 结论

① 高蛋白质水平饲粮可显著提高哺乳期犊牛平均日增重,并增强犊牛免疫和抗氧化能力。
② 血清代谢组分析表明,饲粮蛋白质通过影响胆固醇代谢、胆汁分泌、蛋白质的消化与吸收途径以及中间代谢产物调控犊牛机体免疫功能和抗氧化能力。
③ 本试验条件下,哺乳期犊牛颗粒料以22% CP和5.40 MJ/kg NEmf为宜。
[1]
刁其玉. 营养调控技术在犊牛培育中的应用[J]. 饲料工业, 2020, 41(7):1-7.

DIAO Q Y. The application of nutrition regulation technology in calf rearing[J]. Feed Industry, 2020, 41(7):1-7. (in Chinese)

[2]
郭万正, 赵娜, 李容, 等. 不同饲养方式及育肥期对安格斯公犊牛生产和屠宰性能的影响[J]. 养殖与饲料, 2023, 22(11):10-14.

GUO W Z, ZHAO N, LI R, et al. Effects of different feeding methods and fattening period on production and slaughter performance of Angus male calves[J]. Animals Breeding and Feed, 2023, 22(11):10-14. (in Chinese)

[3]
贾睿, 王卫, 顾元科. 饲粮中能量和蛋白质水平对犊牛健康的影响[J]. 中国畜禽种业, 2020, 16:9:110.

JIA R, WANG W, GU Y K. Effect of energy and protein levels in diet on calf health[J]. China Livestock and Poultry Seed Industry, 2020, 16(9):110. (in Chinese)

[4]
尚恺圆, 江明锋, 官久强, 等. 围产期母体营养调控对犊牦牛生长发育、血清生化及免疫功能的影响[J]. 畜牧兽医学报, 2024, 55(4):1638-1648.

DOI

SHANG K Y, JIANG M F, GUAN J Q, et al. Effects of maternal nutritional regulation during the perinatal period on the growth and development,serum biochemistry and immune function of calf yaks[J]. Acta Veterinaria Et Zootechnica Sinica, 2024, 55(4):1638-1648. (in Chinese)

[5]
马丽娜, 高总元, 高海慧, 等. 饲粮蛋白水平对哺乳期犊牛生长性能、血清生化、免疫与抗氧化指标的影响[J]. 饲料研究, 2022, 45(13):12-15.

MA L N, GAO Z Y, GAO H H, et al. Effects of dietary protein level on growth performance,serum biochemistry,immunity and antioxidant indexes in lactating calves[J]. Feed Research, 2022, 45(13):12-15. (in Chinese)

[6]
董佳琦, 金三俊, 汪晶晶, 等. 蛋白质营养水平对畜禽免疫作用的影响[J]. 黑龙江畜牧兽医, 2017(5):80-82.

DONG J Q, JIN S J, WANG J J, et al. Effect of protein nutrition level on immunity of livestock and poultry[J]. Heilongjiang Animal Science and Veterinary Medicine, 2017(5):80-82. (in Chinese)

[7]
XUE F, ZHOU Z, REN L, et al. Influence of rumen-protected lysine supplementation on growth performance and plasma amino acid concentrations in growing cattle offered the maize stalk silage/maize grain-based diet[J]. Animal Feed Science&Technology, 2011, 169(1/2):61-67.

[8]
高兴超, 汪继武, 张昌吉, 等. 不同营养水平日粮对犊牛生长性能和血清生化指标的影响[J]. 饲料工业, 2020, 41(7):25-30.

GAO X C, WANG J W, ZHANG C J, et al. Effects of diets with different nutritional levels on growth performance and serum biochemistry indexes of calf[J]. Feed Industry, 2020, 41(7):25-30. (in Chinese)

[9]
夏传齐. 营养水平对荷斯坦奶公牛生长性能、血液生化指标、瘤胃发酵、屠宰性能及肉品质的影响[D]. 博士学位论文. 北京: 中国农业大学, 2018:36-37.

XIA C Q. Effects of dietary nutrition levels on growth performance,plasma parameters,rumen fermentation,carcass characteristics and meat quality of Holstein bulls[D]. Ph.D. Thesis. Beijing: China Agricultural University, 2018:36-37. (in Chinese)

[10]
黄杰. 不同蛋白水平全价颗粒料对公犊牛生长性能、血清生化指标及瘤胃发酵的影响[D]. 硕士学位论文, 扬州: 扬州大学, 2021:11-14.

HUANG J. Effect of different protein levels of full-valent granules on growth performance,serum biochemical indexes and rumen fermentation of male calves[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2021:11-14. (in Chinese)

[11]
马涛, 崔凯, 张成福, 等. 不同培育模式对牦牛犊牛生长性能、瘤胃发酵参数和血清生化指标的影响[J]. 动物营养学报, 2021, 33(4):2055-2062.

DOI

MA T, CUI K, ZHANG C F, et al. Effects of different feeding modes on growth performance,rumen fermentation parameters and serum biochemical indices of yak calves[J]. Chinese Journal of Animal Nutrition, 2021, 33(4):2055-2062. (in Chinese)

[12]
UYENO Y, SHIGEMORI S G U, SHIMOSATO T. Effect of probiotics/prebiotics on cattle health and productivity[J]. Microbes and Environments/JSME, 2015, 30(2):126-132.

[13]
BURÇAK E, YALÇIN S. Effects of dietary sepiolite usage on performance,carcass characteristics,blood parameters and rumen fluid metabolites in Merino cross breed lambs[J]. Applied Clay Science, 2018, 163:291-298.

[14]
云强. 蛋白水平及Lys/Met对断奶犊牛生长、消化代谢及瘤胃发育的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2016:35-36.

YUN Q. Effects of protein level and Lys/Met on growth,digestive metabolism and rumen development of weaned calves[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2016:35-36. (in Chinese)

[15]
SHARMA B, NIMJE P, TOMAR S K, et al. Effect of different fat and protein levels in calf ration on performance of Sahiwal calves[J]. Asian-Australasian Journal of Animal Sciences, 2020, 33(1):53-60.

[16]
LI H, DIAO Q Y, ZHANG N F, et al. Growth,nutrient utilization and amino acid digestibility of dairy calves fed milk replacers containing different amounts of protein in the preruminant period[J]. Asian-Australasian Journal of Animal Sciences, 2008, 21(8):1151-1158.

[17]
占今舜, 詹康, 杨富裕, 等. 饲粮中添加益生菌对努比亚山羊生长性能、血液生化指标和瘤胃发酵的影响[J]. 中国草食动物科学, 2021, 41(6):6-12,23.

ZHAN J S, ZHAN K, YANG F Y, et al. Effects of diet supplemented probiotics on growth performance,blood biochemical indices and rumen fermentation of Nubian goats[J]. China Herbivore Science, 2021, 41(6):6-12,23. (in Chinese)

[18]
TAN J, CHO H, PHOLCHAREE T, et al. Functional human IgA targets a conserved site on malaria sporozoites[J]. Science Translational Medicine, 2021, 13(599):eabg2344.

[19]
YANG C P, SHIAU M Y, LAI Y R, et al. Interleukin-4 boosts insulin-induced energy deposits by enhancing glucose uptake and lipogenesis in hepatocytes[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018:6923187.

[20]
PETERSON K M, SHU J F, DUGGAL P, et al. Association between TNF-alpha and Entamoeba histolytica diarrhea[J]. The American Journal of Tropical Medicine and Hygiene, 2010, 82(4):620-625.

[21]
霍子韩, 李岩, 徐宏建, 等. 开食料中添加不同诱食剂对荷斯坦犊牛采食偏好、生长性能和血液指标的影响[J]. 动物营养学报, 2023, 35(9):5775-5786.

DOI

HUO Z H, LI Y, XU H J, et al. Effects of starter supplemented with different feeding attractants on feeding preference,growth performance and blood indexes of Holstein calves[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):5775-5786. (in Chinese)

[22]
VALKO M, RHODES C J, MONCOL J, et al. Free radicals,metals and antioxidants in oxidative stress-induced cancer[J]. Chemico-Biological Interactions, 2006, 160(1):1-40.

[23]
WANG M Y, ZHANG S F, ZHONG R Q, et al. Olive fruit extracts supplement improve antioxidant capacity via altering colonic microbiota composition in mice[J]. Frontiers in Nutrition, 2021, 8:645099.

[24]
XU L, LI Y P, WEI Z X, et al. Chenodeoxycholic acid (CDCA) promoted intestinal epithelial cell proliferation by regulating cell cycle progression and mitochondrial biogenesis in IPEC-J2 cells[J]. Antioxidants, 2022, 11(11):2285.

[25]
DU J L, XIANG X J, LI Y N, et al. Molecular cloning and characterization of farnesoid X receptor from large yellow croaker (Larimichthys crocea) and the effect of dietary CDCA on the expression of inflammatory genes in intestine and spleen[J]. Comparative Biochemistry and Physiology Part B:Biochemistry & Molecular Biology, 2018, 216:10-17.

[26]
MAZEIN A, WATTERSON S, HSIEH W Y, et al. A comprehensive machine-readable view of the mammalian cholesterol biosynthesis pathway[J]. Biochemical Pharmacology, 2013, 86(1):56-66.

DOI PMID

[27]
COHEN D E. Balancing cholesterol synthesis and absorption in the gastrointestinal tract[J]. Journal of Clinical Lipidology, 2008, 2(2):S1-S3.

[28]
JOHNSON C, DANCE A, KOVALCHUK I, et al. Enhanced early-life nutrition upregulates cholesterol biosynthetic gene expression and Sertoli cell maturation in testes of pre-pubertal Holstein bulls[J]. Scientific Reports, 2019, 9(1):6448.

DOI PMID

[29]
YANG Y X, ZHANG J F. Bile acid metabolism and circadian rhythms[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2020, 319(5):G549-G563.

[30]
GUZMAN M, MANITHODY C, KREBS J, et al. Impaired gut-systemic signaling drives total parenteral nutrition-associated injury[J]. Nutrients, 2020, 12(5):1493.

[31]
SCHOELER M, CAESAR R. Dietary lipids,gut microbiota and lipid metabolism[J]. Reviews in Endocrine & Metabolic Disorders, 2019, 20(4):461-472.

[32]
LEAL L N, DOELMAN J, KEPPLER B R, et al. Preweaning nutrient supply alters serum metabolomics profiles related to protein and energy metabolism and hepatic function in Holstein heifer calves[J]. Journal of Dairy Science, 2021, 104(7):7711-7724.

DOI PMID

[33]
CHEN H, WANG C J, HUASAI S M J, et al. Dietary concentrate supplementation alters serum metabolic profiles related to energy and amino acid metabolism in grazing Simmental heifers[J]. Frontiers in Veterinary Science, 2021, 8:743410.

[34]
CONNOLLY S, DONA A, WILKINSON W L, et al. Relationship of the blood metabolome to subsequent carcass traits at slaughter in feedlot Wagyu crossbred steers[J]. Scientific Reports, 2019, 9(1):15139.

DOI PMID

[35]
OGUNADE I M, MCCOUN M. Average daily gain divergence in beef steers is associated with altered plasma metabolome and whole blood immune-related gene expression[J]. Translational Animal Science, 2020, 4(3):txaa074.

[36]
KIM Y, KIM S H, OH S J, et al. Metabolomic analysis of organic acids,amino acids,and fatty acids in plasma of Hanwoo beef on a high-protein diet[J]. Metabolomics, 2020, 16(10):114.

Outlines

/