RESEARCH PAPER

Protective Mechanism of Bamboo Leaf Flavonoids on Hydrogen Peroxide-Induced Pyroptosis of Bovine Mammary Epithelial Cells Was Discussed Based on Silent Information Regulator 1/p65 Pathway

  • WANG Linwei , 1 ,
  • GUAN Shuwen 1 ,
  • ZHAO Xiaobo 1 ,
  • WANG Jing 1 ,
  • GUO Gang , 2, * ,
  • JIANG Linshu , 1, *
Expand
  • 1 Beijing Key Laboratory of Dairy Cow Nutrition, Beijing University of Agriculture, Beijing 102206, China
  • 2 Beijing Sunlon Livestock Development Co., Ltd., Beijing 100176, China
* GUO Gang, senior livestock specialist, E-mail: ;
JIANG Linshu, professor, E-mail:

Received date: 2024-02-22

  Online published: 2024-09-08

Abstract

This study aimed to explore the mechanism by which bamboo leaf flavonoids (BLF) pretreatment alleviates pyroptosis in bovine mammary epithelial cells (bMECs) induced by hydrogen peroxide (H2O2). bMECs were used as the research subjects, and control group, BLF group, H2O2 group, BLF+H2O2 group, BAY 11-7082+H2O2 group, BLF+BAY 11-7082+H2O2 co-treatment group, EX 527+H2O2 group and BLF+EX 527+H2O2 co-treatment group were set up in this experiment. BLF was administered at a concentration of 80 μg/mL, and H2O2 was used at 800 μmol/L. BAY 11-7082 and EX 527 were used to inhibit the expression of p65 and silent information regulator 1 (SIRT1), respectively. Gene and protein expression levels in the cells were detected using PCR and Western Blot. The number of pyroptotic cells was determined by flow cytometry. The fluorescence intensity of apoptosis-associated speck-like protein (ASC) spots was detected by immunofluorescence to observe the role of the SIRT1/p65 pathway in BLF-mediated alleviation of H2O2-induced bMECs pyroptosis. The results showed as follows: 1) p65 mRNA and protein expression levels were significantly increased in H2O2-induced bMECs pyroptosis (P<0.05), and significantly decreased following BLF treatment (P<0.05). BLF and BAY 11-7082 significantly inhibited p65 expression and nuclear translocation (P<0.05), effectively alleviating bMECs pyroptosis. The expression levels of pyroptosis-related genes and proteins in bMECs were significantly reduced by BLF and BAY 11-7082 (P<0.05), as well as the fluorescence intensity of ASC spots was reduced. 2) SIRT1 mRNA and protein expression levels were significantly decreased in H2O2-induced bMEC pyroptosis (P<0.05), and significantly increased following BLF treatment (P<0.05). EX 527 significantly inhibited SIRT1 expression, while promoted p65 expression and nuclear translocation (P<0.05). EX 527 also significantly increased the expression levels of pyroptosis-related genes and proteins in bMECs (P<0.05), and enhanced ASC spots fluorescence intensity. In summary, 80 μg/mL BLF alleviates H2O2-induced bMECs pyroptosis and NLRP3 inflammasome activation by inhibiting p65 expression and nuclear translocation. SIRT1 expression is downregulated in H2O2-induced bMEC pyroptosis, and BLF alleviates bMECs pyroptosis by upregulating SIRT1 expression, thereby inhibiting p65 expression and exerting a protective effect on the cells.

Cite this article

WANG Linwei , GUAN Shuwen , ZHAO Xiaobo , WANG Jing , GUO Gang , JIANG Linshu . Protective Mechanism of Bamboo Leaf Flavonoids on Hydrogen Peroxide-Induced Pyroptosis of Bovine Mammary Epithelial Cells Was Discussed Based on Silent Information Regulator 1/p65 Pathway[J]. Chinese Journal of Animal Nutrition, 2024 , 36(9) : 5949 -5969 . DOI: 10.12418/CJAN2024.505

竹叶黄酮(bamboo leaf flavonoids,BLF)作为竹叶中的主要活性成分,具有抗炎、抗氧化、抗菌、调节脂代谢、调节免疫等多种生物学功能[1-3],是一种天然酚类抗氧化剂[4],具有良好的应用前景。研究表明,BLF可显著提高动物体内抗氧化酶活性,增强免疫能力[5-6],下调过氧化氢(hydrogen peroxide,H2O2)诱导的氧化损伤细胞模型和高脂饮食诱导的小鼠模型中肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)和白细胞介素-1β(interleukin-1β,IL-1β)等炎症因子的表达[7]。周晓燕等[8]研究发现,BLF能够有效抑制糖尿病大鼠脑组织海马区炎症因子白细胞介素-6(interleukin-6,IL-6)、环氧合酶-2(cyclooxygenase-2,COX-2)和TNF-α的表达,从而抑制大鼠海马区的炎症反应。在李建凤等[9]的研究中,10 μg/mL的BLF可以通过调控核因子红细胞相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)信号通路中的关键基因,缓解热应激对奶牛乳腺上皮细胞(bovine mammary epithelial cells,bMECs)的影响。本实验室前期研究已证实了在奶牛生产中BLF对奶牛乳腺的保护作用。侯昆等[10]研究发现,在奶牛饲粮中添加BLF可以有效降低奶牛血清中IL-1β与TNF-α的含量,增加白细胞介素-2(interleukin-2,IL-2)的含量,从而有效改善奶牛乳房炎;詹经纬等[11]通过建立bMECs MAC-T的氧化应激模型,发现80 μg/mL BLF预处理24 h可以缓解800 μmol/L H2O2处理8 h所导致的MAC-T氧化损伤。另外,多种黄酮类化合物均可通过影响核苷酸结合寡聚化结构域样受体样蛋白3(NOD-like receptor containing a pyrin domain 3,NLRP3)炎症小体的表达缓解全身性炎症及细胞焦亡,改善免疫功能及机体健康[12-15]
细胞焦亡是由各种病原微生物感染或其他危险信号引起的、伴随着炎性反应的程序性细胞死亡[16]。细胞焦亡的发生需要多种细胞因子的参与,其中NLRP3是细胞焦亡途径中研究最为广泛的炎性小体之一[17]。在规模化奶牛生产中,受饲粮、管理、环境等因素的限制,奶牛易造成机体自由基稳态失衡产生氧化应激,从而引起奶牛乳腺细胞焦亡[18-20],对奶牛健康状况及泌乳性能产生负面影响[21]。研究表明,NLRP3炎症小体的激活可能需要核因子-kappa B(nuclear factor-kappa B,NF-κB)的p65亚基来调节[22-24],其中沉默信息调节因子1(silent information regulator 1,SIRT1)可促进NF-κB活化[25],并通过对p65去乙酰化调控细胞炎症[26]。此外,天然植物功能组分可通过抑制NLRP3信号通路缓解细胞焦亡,对相关细胞和器官起到保护作用[27-30]。本实验室前期研究已证实BLF可缓解H2O2诱导的bMECs焦亡,但作用机理尚未明晰。因此,本试验将进一步探究BLF对H2O2诱导的bMECs焦亡的保护作用机制,解释p65在BLF缓解bMECs焦亡中的作用,并验证p65表达是否受到SIRT1的调控,为BLF作为缓解bMECs焦亡的天然植物饲料添加剂提供理论依据。

1 材料与方法

1.1 主要材料

原代bMECs由中国农科院畜牧兽医研究所智慧畜牧业创新团队惠赠;98% BLF由浙江大学生物系统工程与食品科学学院惠赠。
试验所用其他试剂与耗材如下:H2O2(天津光复,中国),DMEM/F12培养基、胎牛血清(FBS)、青霉素/链霉素溶液、0.25%胰蛋白酶-乙二胺四乙酸(Gibco,美国),磷酸盐缓冲液(PBS)(Wissen,中国),细胞培养皿、细胞培养板、离心管、枪头(Corning,美国),BCA试剂盒、蛋白酶抑制剂、RIPA、苯甲基磺酰氟(PMSF)、Trizol、ECL化学发光试剂盒、聚丙烯酰胺凝胶电泳(PAGE)试剂盒、十二烷基硫酸钠(SDS)-PAGE缓冲液、聚偏二氟乙烯(PVDF)膜、脱脂奶粉、抗荧光淬灭封片液[含4',6-二脒基-2-苯基吲哚(DAPI)]、BAY 11-7082、胞浆蛋白与核蛋白抽提试剂盒、EX 527(Beyotime,中国),二甲基亚砜(DMSO)、TBST、甘氨酸、甲醇、Hoechst 33342/PI双染试剂盒、Tris、SDS(Solarbio,中国),cDNA反转录试剂盒、SYBR® Premix Ex TaqTM Ⅱ(Erik,中国),氯仿、异丙醇、无水乙醇(北京化工厂,中国),羊抗兔免疫球蛋白G(IgG)、羊抗鼠IgG、预染蛋白Marker(LABLEAD,中国),SIRT1、p65、NLRP3、凋亡相关斑点样蛋白(apoptosis-associated speck-like protein,ASC)、IL-1β、哺乳动物相关激酶7(mammalian-related kinase 7,NEK7)、核纤层蛋白B1(lamin B1,LMNB1)抗体、p65一抗(Santa,中国),半胱天冬酶(cysteinyl aspartate specific proteinase,Caspase)-1、消皮素D N末端片段(gasdermin D N-terminal,GSDMD-N)抗体(Abcam,美国),白细胞介素-18(interleukin-18,IL-18)抗体(Bioss,中国),β-肌动蛋白(β-actin,ACTB)抗体(CST,美国)。

1.2 主要仪器设备

试验所用主要仪器设备如下:荧光倒置显微镜(Motic,中国)、二氧化碳(CO2)细胞培养箱(Thermo,美国)、双功能气浴恒温振荡器(常州峥嵘,中国)、恒温恒湿箱(上海一恒,中国)、荧光定量PCR仪(Roche,瑞士)、垂直电泳转印系统(Bio-Rad,美国)、天能化学发光成像仪(上海天能,中国)、Gene Max基因扩增仪(杭州博日,中国)、Cyto FLEX流式细胞仪(Beckman Coulter,中国)。

1.3 试剂配制

1.3.1 细胞培养液

细胞完全培养液:DMEM/F-12培养基中加入10% FBS和1%青霉素/链霉素溶液,混匀,4 ℃保存备用;细胞维持培养液:DMEM/F-12培养基中加入2% FBS,混匀,4 ℃保存备用。BLF处理液:取5 mg的98% BLF加入5 mL细胞维持培养液,得到1 mg/mL的储备液,稀释至80 μg/mL;H2O2处理液:取100 μL 30% H2O2与870 μL的细胞维持培养液配制成1 mmol/L的H2O2储备液,稀释至800 μmol/L。本试验所设定的BAY 11-7082与EX 527的浓度参考李方[31]的研究。在10 mg的BAY 11-7082中加入1 mL的DMSO,配制成50 mmol/L的溶液保存。使用时取1 μL浓度为50 mmol/L的BAY 11-7082加入10 mL配制好的维持培养液处理细胞,最终浓度稀释至5 μmol/L。在5 mg的EX 527中加入1.005 mL的DMSO,配制成20 mmol/L的溶液保存。使用时取20 μL浓度为20 mmol/L的EX 527加入20 mL配制好的维持培养液处理细胞,使最终浓度为10 μmol/L。

1.3.2 Western Blot用试剂

2 L SDS-PAGE电泳液:6 g Tris+28.8 g甘氨酸+2 g SDS+800 mL去离子水,混匀后定容至2 L,备用;2 L转膜液:6 g Tris+28.8 g甘氨酸+200 mL甲醇+800 mL去离子水,4 ℃冰箱储存。当蛋白质分子质量大于80 ku时,转膜液中另需添加2 g的SDS。

1.4 试验方法

1.4.1 细胞培养

将液氮中装有bMECs的冻存管转移至37 ℃水浴锅快速融化,移入装有预热的细胞完全培养液的15 mL离心管中,吹打混匀,离心5 min(4 ℃,7 500×g),弃去上清,重悬后移至60 mm培养皿孵育。培养2 d后观察培养液颜色和细胞状态,培养液变为淡黄色则吸出培养液,PBS漂洗2次后加入新培养液继续孵育。待细胞融合度达85%,PBS漂洗2次,吸取1 mL 0.25%胰蛋白酶-乙二胺四乙酸于培养皿作用1 min,吸取1 mL培养液迅速停止消化。收集细胞悬液,按上述条件离心后弃上清,重悬至新培养皿孵育。

1.4.2 试验分组

试验共设8个组,分别为对照(CON)组、BLF组、H2O2组、BLF+H2O2组、BAY 11-7082+H2O2组、BLF+BAY 11-7082+H2O2组、EX 527+H2O2组和BLF+EX 527+H2O2组。bMECs培养在60 mm培养皿中,于37 ℃、5%CO2的细胞培养箱中孵育,融合度达85%开始处理。对照组细胞接种于不添加任何物质的维持培养液中培养24 h;BLF组细胞接种于含80 μg/mL BLF的维持培养液中培养24 h;H2O2组细胞接种于含800 μmol/L H2O2的维持培养液中培养8 h;BLF+H2O2组细胞先接种于含80 μg/mL BLF的维持培养液中培养24 h后,再用含800 μmol/L H2O2的维持培养液培养8 h;BAY 11-7082+H2O2组与EX 527+H2O2组细胞先分别接种于含5 μmol/L BAY 11-7082和10 μmol/L EX 527的维持培养基中培养1 h,再用含800 μmol/L H2O2的维持培养基培养8 h;BLF+BAY 11-7082+H2O2组和BLF+EX 527+H2O2组细胞先用含5 μmol/L BAY 11-7082或10 μmol/L EX 527的维持培养液培养1 h,再用含80 μg/mL BLF的维持培养液培养24 h,最后用含800 μmol/L H2O2的维持培养液培养8 h。

1.4.3 实时荧光定量PCR(RT-qPCR)技术检测焦亡相关基因的表达

将细胞培养皿置于冰盒上,吸取培养液,PBS漂洗2次。各孔加入500 μL Trizol,作用均匀后刮净细胞转移至1.5 mL无RNA酶管;加入100 μL氯仿,振荡混匀后放置2 min;离心15 min(4 ℃,12 000×g)。取上清300 μL移至新无RNA酶管,另取等量异丙醇摇匀静放10 min,离心10 min(4 ℃,12 000×g);留沉淀加75%乙醇离心10 min(4 ℃,7 500×g);弃上清离心3 min(4 ℃,12 000×g),开盖静置3~5 min后加50 μL DEPC。NanoDrop微量分光光度计测量总RNA浓度后-80 ℃储存。反应液配制参考Erik的cDNA反转录试剂盒,反应条件参考本实验室前期研究[32],具体如下:37 ℃,15 min;85 ℃,5 s。使用ACTB和甘油醛-3-磷酸脱氢酶(glyceraldehyde-3-phosphate dehydrogenase,GAPDH)作为内参,将反转录成功的NLRP3、NEK7、ASCp65、消皮素D(gasdermin D,GSDMD)、IL-18和IL-1β的cDNA加入PCR反应系统,体系配制和扩增条件参考本实验室前期研究[32]。采用2-ΔΔCt法计算目的基因的mRNA表达水平。引物序列见表1
表1 引物序列

Table 1 Primer sequences

基因名称
Gene names
GenBank登录号
GenBank accession
number
引物序列
Primer sequences (5'—3')
产物长度
Product
length/bp
退火温度
Annealing
temperature/℃
核苷酸结合寡聚化结构域
样受体样蛋白3
NLRP3
NM_001102219.1 F:AGATCATGTTGGACTGGGCA
R:CATCAAAGCCGTCCATGAGG
204 60
凋亡相关斑点样蛋白
ASC
NM_174730.2 F:CAGCGGACGAGCTCAAAAAG
R:ACCGTACGCCTCCAGATAGT
149 60
哺乳动物相关激酶7
NEK7
XM_003587112.6 F:TTCAGCTCCAAAACCACAGC
R:ACACAGCGAGTACAGGTTCA
186 60
白细胞介素-1β
IL-1β
NM_174093.1 F:AAACTCCAGGACAGAGAGCAAAA
R:CTCTCCTTGCACAAAGCTCATG
126 60
白细胞介素-18
IL-18
NM_174091.2 F:TGGCTGCAGAACAAGTAGAAG
R:TGGTCTGGGGTGCATTATCT
243 60
消皮素D
GSDMD
XM_059893205.1 F:TTTGTAGTGACCGAGGTGCT
R:ATGTCCCAGTCAGAGCCAAT
215 60
β-肌动蛋白
ACTB
NM_173979.3 F:CAAGTACCCCATTGAGCACG
R:GTCATCTTCTCACGGTTGGC
159 60
甘油醛-3-磷酸脱氢酶
GAPDH
NM_001034034.2 F:TGGAAAGGCCATCACCATCT
R:CCCACTTGATGTTGGCAG
53 60
p65 NM_001080242.2 F:GACCAACAACAACCCCTTCC
R:ATTCACCCGGCAGATCTTGA
196 60
沉默信息调节因子1
SIRT1
XM_024986766.2 F:TACCCCATGAAGTGCCTCAG
R:ATATTGAGGGGTGTGGGTGG
238 60

1.4.4 Western Blot技术检测焦亡相关蛋白的表达

细胞经PBS漂洗2次,每次5 min,取1 mL以100∶1∶2混合的RIPA+PMSF+磷酸酶抑制剂于培养皿,移至1.5 mL离心管中;离心10 min(4℃,12 000×g)取上液。BCA试剂盒测定蛋白浓度后加入SDS Loading Buffer保持浓度一致,沸水浴10 min,保存至-80 ℃备用。根据目的蛋白分子质量大小参考试剂盒说明选取对应的浓度配制分离胶(8%、10%、12%)和浓缩胶(5%),倒入电泳液没过内侧玻璃板,加入10 μL样品至加样孔,最左侧孔添加5 μL彩色预染蛋白(Marker)进行参考。加入电泳液进行电泳。根据彩色预染蛋白切出所需凝胶,转移至厚滤纸上,将剪切好并且经甲醇浸泡的PVDF膜铺满凝胶,上盖1张厚滤纸,闭合转膜所需夹子,转膜(20 ku以下小蛋白直流300 mA,其余蛋白直流350 mA)。TBST洗膜5 min,快速封闭液在37 ℃封闭15 min。膜用TBST漂洗3次,每次5 min,后经一抗4 ℃孵育过夜;次日用TBST漂洗3次,每次15 min,后经二抗室温孵育60 min。TBST漂洗3次,每次15 min,置于化学发光成像仪,膜上滴满ECL显色液曝光。用Image J检测分析图像。

1.4.5 免疫荧光技术检测ASC荧光强度

吸取各培养孔上清,PBS漂洗3次,每次5 min,每孔1 mL 4%多聚甲醛固定30 min,晾干。PBS漂洗3次,每次3 min,加入0.3% Triton X-100进行25 min通透,PBS漂洗3次,每次3 min,之后再加入3% BSA孵育60 min,封闭抗原。弃封闭液+ASC一抗(1∶100),湿盒37 ℃孵育2 h;PBS漂洗5次,每次3 min,然后用FITC(1∶100)处理1 h;PBS漂洗5次,每次3 min,加入抗荧光猝灭封片液(含DAPI)处理5 min。用荧光显微镜进行观察。

1.4.6 流式细胞术检测BAY11-7082对bMECs焦亡的影响

收集1×10⁵~1×10⁶个细胞于1.5 mL离心管,离心取沉淀,用1 mL细胞染色缓冲液重悬;加入5 μL Hoechst 33342和5 μL PI染色,4 ℃摇床孵育30 min,流式细胞仪检测红、蓝荧光。

1.4.7 提取胞核和胞浆蛋白

收集0.5×10⁷~2×10⁷个细胞,根据胞浆和胞核蛋白抽提试剂盒说明书进行操作,提取胞核和胞浆蛋白。

1.5 数据统计分析

试验结果用平均值±标准差表示,采用Excel 2016对试验数据进行初步处理,应用SPSS 26.0进行单因素方差分析(one-way ANOVA),使用Duncan氏法进行组间多重比较,P<0.05为差异显著,P>0.05为差异不显著。最终结果由Origin 2021绘图呈现。

2 结果与分析

2.1 BLF通过调控p65缓解H2O2诱导的bMECs焦亡

2.1.1 BLF缓解H2O2诱导的bMECs焦亡中p65的表达水平
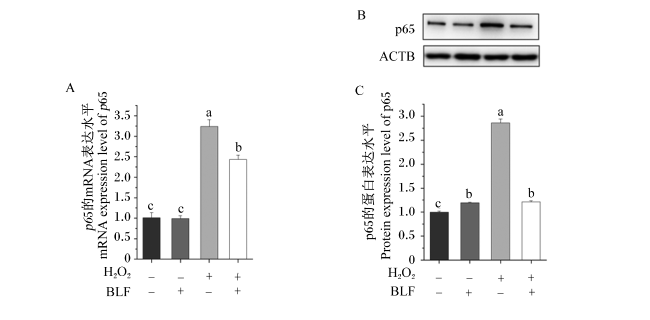
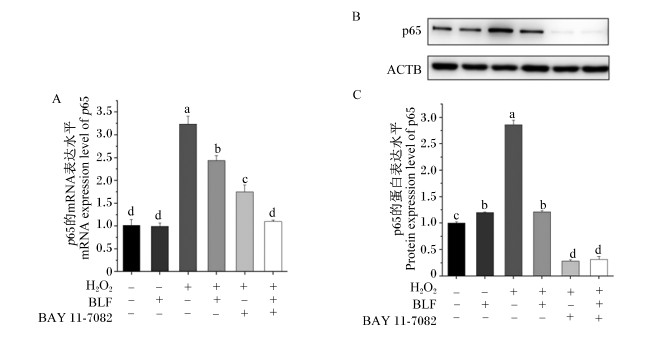
为了探究p65是否参与BLF对H2O2诱导的bMECs焦亡的缓解,检测了对照组、BLF组、H2O2组和BLF+H2O2组中p65的mRNA和蛋白表达情况。通过细胞培养提取以上各组的mRNA和蛋白,利用RT-qPCR和Western Blot技术检测细胞内p65的mRNA和蛋白表达水平,结果如图1所示。与对照组相比,在80 μg/mL的BLF处理24 h的情况下,p65的mRNA表达水平无显著变化(P>0.05);而在800 μmol/L的H2O2处理8 h的情况下,p65的mRNA和蛋白表达水平均显著升高(P<0.05)。经过80 μg/mL的BLF预处理24 h后的BLF+H2O2组的bMECs,其p65的mRNA和蛋白表达水平均显著低于H2O2组(P<0.05),且p65的蛋白表达水平恢复至BLF组水平,说明p65参与了BLF对H2O2诱导的bMECs焦亡的作用过程。
图1 BLF缓解H2O2诱导的bMECs焦亡中p65的表达水平

A:p65的mRNA表达水平 mRNA expression level of p65;B:蛋白表达条带 protein expression bands;C:p65的蛋白表达水平 protein expression level of p65。

H2O2:过氧化氢;BLF:竹叶黄酮;ACTB:β-肌动蛋白。数据柱标注不同小写字母表示差异显著(P<0.05),相同小写字母表示差异不显著(P>0.05)。下图同。

Fig.1 Expression level of p65 in H2O2 induced pyroptosis of bMECs alleviated by BLF

H2O2: hydrogen peroxide; BLF: bamboo leaf flavonoids; ACTB: β-actin. Data columns marked with different lowercase letters indicate significant difference (P<0.05), while with the same lowercase letters indicate no significant difference (P>0.05). The same as below.

2.1.2 BAY 11-7082对H2O2诱导的bMECs焦亡的影响

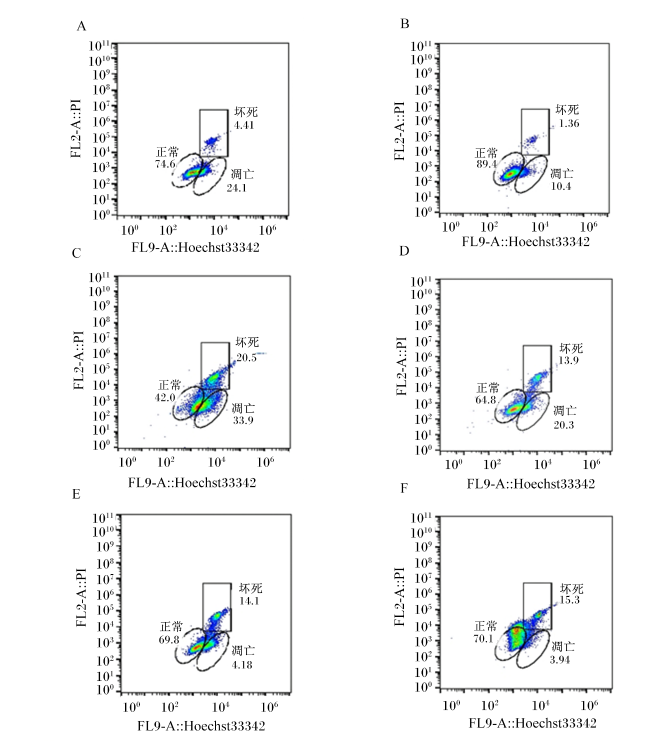
为了进一步明确p65在H2O2诱导的bMECs焦亡中的调控作用,使用p65抑制剂BAY 11-7082来模拟p65低表达。将对照组、BLF组、H2O2组、BLF+H2O2组、BAY 11-7082+H2O2组和BLF+BAY 11-7082+H2O2组的bMECs进行Hoechst 33342/PI染色,使用流式细胞术检测焦亡细胞的数量,结果如图2所示。BAY 11-7082+H2O2组的bMECs焦亡水平与H2O2组相比显著降低(P<0.05),说明BAY 11-7082可能是通过抑制p65表达从而有效缓解bMECs焦亡;与BLF+H2O2组相比则无显著差异(P>0.05),说明BLF可能与BAY 11-7082具有相似的缓解bMECs焦亡的功能;而BLF+BAY 11-7082+H2O2组与BAY 11-7082+H2O2组相比无显著差异(P>0.05),表明在BAY 11-7082处理的基础上对bMECs进行BLF预处理未能进一步缓解bMECs焦亡。
图2 流式细胞术检测BAY 11-7082对bMECs焦亡的影响

A:对照组 CON group;B:BLF组 BLF group;C:H2O2组H2O2 group;D:BLF+H2O2组 BLF+H2O2 group;E:BAY 11-7082+H2O2组 BAY 11-7082+H2O2 group;F:BLF+BAY 11-7082+H2O2组 BLF+BAY 11-7082+H2O2 group。

FL9-A::Hoechst33342:Hoechst33342染料在FL9通道检测到的荧光强度 fluorescence intensity detected in FL9 channel for Hoechst33342 dye;FL2-A::PI:PI染料在FL2通道检测到的荧光强度 fluorescence intensity detected in FL2 channel for PI dye。图9同 the same as Fig.9

Fig.2 Detection of effects of BAY 11-7082 on pyroptosis of bMECs by flow cytometry

2.1.3 BLF和BAY 11-7082对p65表达的影响

为了进一步明确p65在H2O2诱导的bMECs焦亡中是否有调控作用,利用RT-qPCR和Western Blot技术检测bMECs内p65的mRNA和蛋白表达水平,验证BLF和BAY 11-7082对p65的抑制效果,结果如图3所示。在经过BAY 11-7082处理后,BAY 11-7082+H2O2组的p65的mRNA表达水平显著低于H2O2组(P<0.05),蛋白表达水平显著低于H2O2组(P<0.05),说明BAY 11-7082对p65的抑制效果显著;BLF+BAY 11-7082+H2O2组的p65的mRNA和蛋白表达水平则均显著低于H2O2组与BLF+H2O2组(P<0.05),说明经过BLF预处理后,BAY 11-7082对p65的抑制效果进一步增强,BLF可能与BAY 11-7082在抑制p65的表达上具有协同作用。
图3 BLF和BAY 11-7082对bMECs焦亡中p65表达的影响

A:p65的mRNA表达水平 mRNA expression level of p65;B:蛋白表达条带 protein expression bands;C:p65的蛋白表达水平 protein expression level of p65。

Fig.3 Effects of BLF and BAY 11-7082 on expression of p65 in pyroptosis of bMECs

2.1.4 BLF和BAY 11-7082对p65核转位的影响

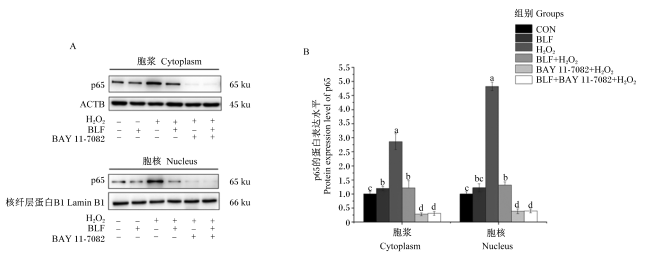
为了进一步探究BLF和BAY 11-7082对bMECs焦亡时p65表达的影响,利用Western Blot技术检测胞浆和胞核中p65的蛋白表达水平并分析其核转位情况,结果如图4所示。与对照组相比,H2O2诱导bMECs焦亡时胞核和胞浆内p65的蛋白表达水平均显著升高(P<0.05),且由胞浆向胞核的转移明显增加,表明在H2O2诱导的bMECs焦亡中,H2O2促进了p65的表达及核转位;BLF+H2O2组的p65在胞浆和胞核的蛋白表达水平均显著低于H2O2组(P<0.05),说明BLF抑制了H2O2诱导的bMECs焦亡时p65的表达及核转位;BAY 11-7082+H2O2组和BLF+BAY 11-7082+H2O2组的p65在胞浆和胞核的蛋白表达水平均显著低于H2O2组(P<0.05),说明BAY 11-7082对p65的表达及核转位的抑制效果明显。
图4 Western Blot检测BLF和BAY 11-7082对bMECs焦亡中p65核转位的影响

A:蛋白表达条带 protein expression bands;B:p65在胞浆和胞核中的蛋白表达水平 protein expression levels of p65 in cytoplasm and nucleus。

Fig.4 Detection of effects of BLF and BAY 11-7082 on p65 nuclear translocation in pyroptosis of bMECs by Western Blot

2.1.5 BLF和BAY 11-7082对bMECs焦亡相关基因表达的影响
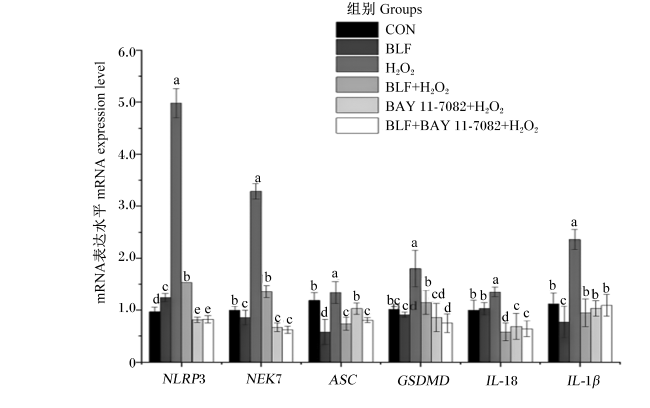
本试验利用RT-qPCR技术进一步探究了BLF和BAY 11-7082对bMECs焦亡相关基因mRNA表达水平的影响,结果如图5所示。与H2O2组相比,BLF+H2O2组、BAY 11-7082+H2O2组和BLF+BAY 11-7082+H2O2组的NLRP3、NEK7、ASCGSDMDIL-18、IL-1β的mRNA表达水平均显著降低(P<0.05),说明BLF与BAY 11-7082可有效抑制bMECs焦亡相关基因的表达。
图5 BLF和BAY 11-7082对bMECs焦亡相关基因表达的影响

NLRP3:核苷酸结合寡聚化结构域样受体样蛋白3 NOD-like receptor containing a pyrin domain 3;NEK7:哺乳动物相关激酶7 mammalian-related kinase 7;ASC:凋亡相关斑点样蛋白 apoptosis-associated speck-like protein;GSDMD:消皮素D gasdermin D;IL-18:白细胞介素-18 interleukin-18;IL-1β:白细胞介素-1β interleukin-1β。图12同 the same as Fig.12

Fig.5 Effects of BLF and BAY 11-7082 on expression of related genes in pyroptosis of bMECs

2.1.6 BLF和BAY 11-7082对bMECs焦亡相关蛋白表达的影响
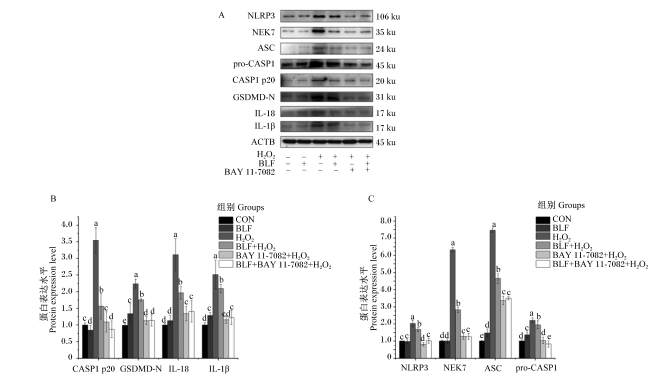
本试验利用Western Blot技术进一步探究了BLF和BAY 11-7082对bMECs焦亡相关蛋白表达水平的影响,结果如图6所示。与H2O2组相比,BLF+H2O2组、BAY 11-7082+H2O2组和BLF+BAY 11-7082+H2O2组的bMECs焦亡相关蛋白表达水平均显著降低(P<0.05),说明BLF与BAY 11-7082可有效抑制bMECs焦亡相关蛋白的表达。
图6 BLF和BAY 11-7082对bMECs焦亡相关蛋白表达的影响

A:蛋白表达条带 protein expression bands;B、C:焦亡相关蛋白表达水平 expression levels of related proteins in pyroptosis。

CASP1 p20:半胱天冬酶1 p20 cysteinyl aspartate specific proteinase 1 p20;GSDMD-N:消皮素D N末端片段 gasdermin D N-terminal domain;IL-18:白细胞介素-18 interleukin-18;IL-1β:白细胞介素-1β interleukin-1β;NLRP3:核苷酸结合寡聚化结构域样受体样蛋白3 NOD-like receptor containing a pyrin domain 3;NEK7:哺乳动物相关激酶7 mammalian-related kinase 7;ASC:凋亡相关斑点样蛋白 apoptosis-associated speck-like protein;pro-CASP1:半胱天冬酶1前体 pro-cysteinyl aspartate specific proteinase 1。图13同 the same as Fig.13

Fig.6 Effects of BLF ans BAY 11-7082 on expression of related proteins in pyroptosis of bMECs

2.1.7 BLF和BAY 11-7082对bMECs内ASC斑点的影响

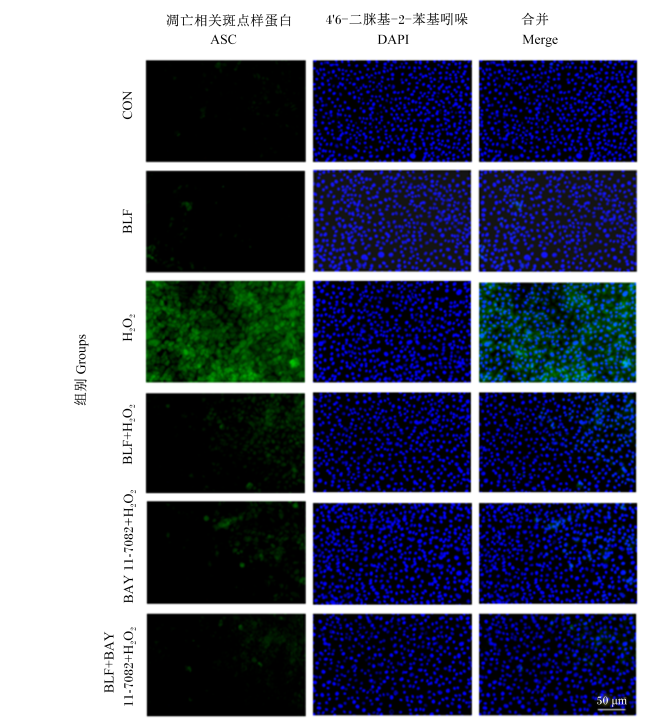
本试验利用免疫荧光技术检测了各组bMECs内ASC斑点的荧光强度,结果如图7所示。与H2O2组相比,BLF+H2O2组、BAY 11-7082+H2O2组和BLF+BAY 11-7082+H2O2组的ASC斑点的荧光强度均明显降低,进一步证实了BLF可能是通过抑制p65的表达来缓解H2O2诱导的bMECs焦亡。
图7 免疫荧光检测BAY 11-7082对bMECs焦亡中ASC斑点的影响

Fig.7 Detection of effects of BAY 11-7082 on ASC spots in pyroptosis of bMECs by immunofluorescence

2.2 BLF通过SIRT1调节p65缓解H2O2诱导的bMECs焦亡

2.2.1 SIRT1在BLF调节H2O2诱导的bMECs焦亡中的表达

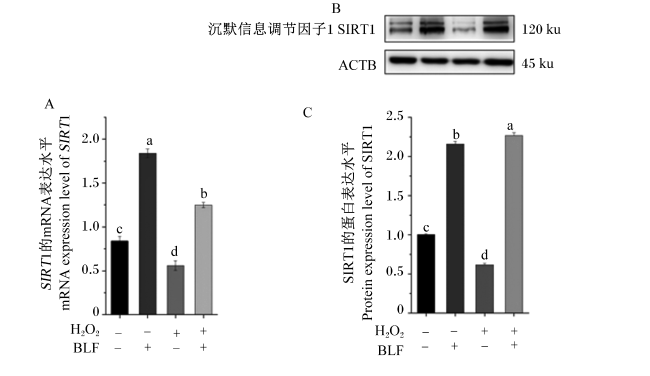
为了探究SIRT1是否参与BLF对H2O2诱导的bMECs焦亡的缓解,通过细胞培养提取以上各组的mRNA和蛋白,利用RT-qPCR和Western Blot技术检测了细胞内SIRT1的mRNA和蛋白表达水平,结果如图8所示。与对照组相比,在80 μg/mL的BLF处理24 h的情况下,SIRT1的mRNA和蛋白表达水平均显著升高(P<0.05);而在800 μmol/L的H2O2处理8 h的情况下,SIRT1的mRNA和蛋白表达水平均显著降低(P<0.05);而经过BLF预处理的BLF+H2O2组的bMECs,其SIRT1的mRNA和蛋白表达水平均显著高于H2O2组(P<0.05),且蛋白表达水平恢复至BLF组水平,说明SIRT1参与了BLF对H2O2诱导的bMECs焦亡的缓解作用过程。
图8 BLF缓解H2O2诱导的bMECs焦亡中SIRT1的表达

A:SIRT1的mRNA表达水平 mRNA expression level of SIRT1;B:蛋白表达条带 protein expression bands;C:SIRT1的蛋白表达水平 protein expression level of SIRT1。

Fig.8 BLF alleviates SIRT1 expression in H2O2 induced pyroptosis of bMECs

2.2.2 EX 527对H2O2诱导的bMECs焦亡的影响

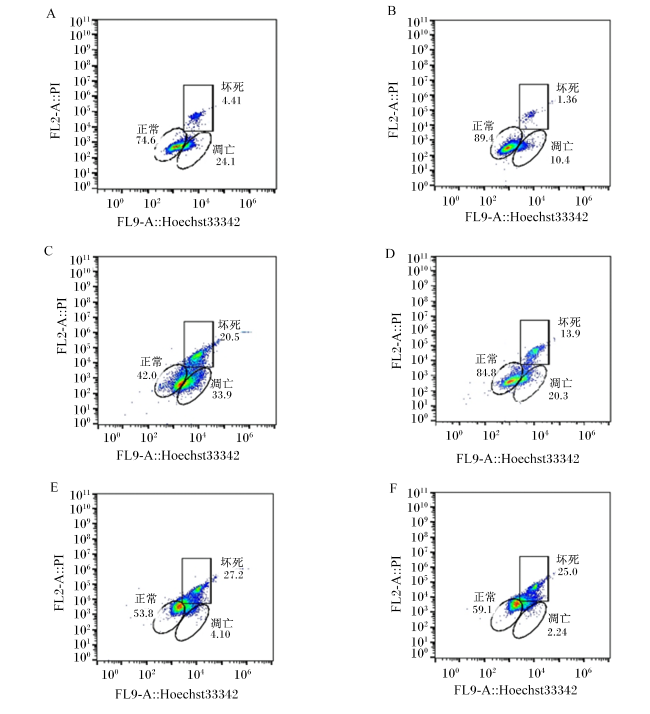
为了进一步明确BLF对H2O2诱导的bMECs焦亡的保护作用是否通过SIRT1调控,使用了SIRT1抑制剂EX 527来模拟SIRT1低表达。将对照组、BLF组、H2O2组、BLF+H2O2组、EX 527+H2O2组和BLF+EX 527+H2O2组的bMECs进行Hoechst33342/PI染色,使用流式细胞术检测焦亡细胞的数量,结果如图9所示。EX 527+H2O2组的bMECs焦亡水平与H2O2组相比显著升高(P<0.05),说明EX 527可能是通过抑制SIRT1表达从而促进bMECs焦亡;BLF+EX 527+H2O2组的bMECs焦亡水平与EX 527+H2O2组相比无显著差异(P>0.05),说明在BLF预处理下也未能有效缓解bMECs焦亡。
图9 流式细胞术检测EX 527对bMECs焦亡的影响

A:对照组 CON group;B:BLF组 BLF group;C:H2O2组 H2O2 group;D:BLF+H2O2组 BLF+H2O2 group;E:EX 527+H2O2组 EX 527+H2O2 group;F:BLF+EX 527+H2O2组 BLF+EX 527+H2O2 group。

Fig.9 Detection of effects of EX 527 on pyroptosis of bMECs by flow cytometry

2.2.3 BAY 11-7082和EX 527对SIRT1表达的影响

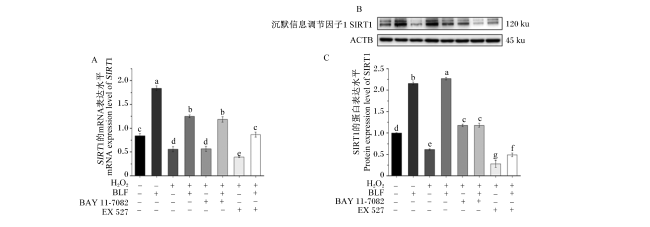
为验证EX 527对SIRT1的抑制效果,利用RT-qPCR和Western Blot技术检测bMECs内SIRT1的mRNA以及蛋白表达水平,结果如图10所示。在经过EX 527的处理后,EX 527+H2O2组的SIRT1的mRNA和蛋白表达水平均显著低于H2O2组(P<0.05),说明EX 527对SIRT1的抑制效果显著;BLF+EX 527+H2O2组的SIRT1的mRNA和蛋白表达水平则均显著高于EX 527+H2O2组(P<0.05),说明经过BLF预处理后,EX 527对SIRT1的抑制效果减弱;然而,BAY 11-7082对SIRT1的mRNA表达没有显著影响(P>0.05)。
图10 BAY 11-7082和EX 527对bMECs焦亡中SIRT1表达的影响

A:SIRT1的mRNA表达水平 mRNA expression level of SIRT1;B:蛋白表达条带 protein expression bands;C:SIRT1的蛋白表达水平 protein expression level of SIRT1。

Fig.10 Effects of BAY 11-7082 and EX 527 on expression of SIRT1 in pyroptosis of bMECs

2.2.4 EX 527对p65表达及核转位的影响

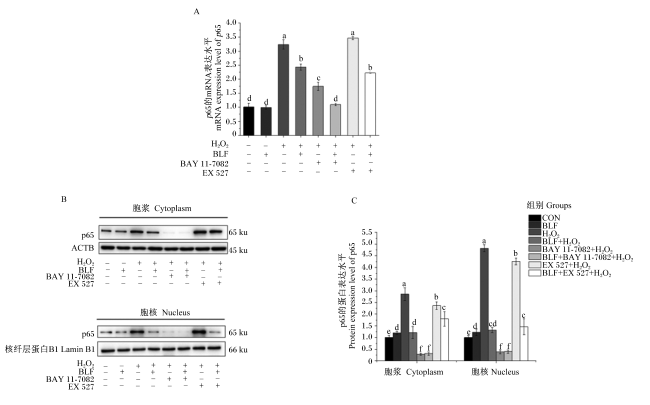
为进一步探究BLF是否通过调节SIRT1来影响p65的表达以缓解H2O2诱导的bMECs焦亡,利用RT-qPCR技术检测EX 527对p65的mRNA表达水平,并利用Western Blot技术检测胞浆和胞核中p65的蛋白表达水平,分析其核转位情况。如图11-A所示,EX 527+H2O2组bMECs的p65的mRNA表达水平显著高于BAY 11-7082+H2O2组(P<0.05),且恢复到H2O2组水平,说明EX 527作为SIRT1的抑制剂可促进p65的mRNA表达;在经过BLF的预处理后,BLF+EX 527+H2O2组bMECs的p65的mRNA表达水平则显著降低(P<0.05),说明BLF可能通过减弱EX 527对SIRT1的抑制效果从而减少p65的mRNA表达。如图11-C所示,EX 527+H2O2组bMECs的p65的蛋白表达水平显著高于BAY 11-7082+H2O2组(P<0.05),且由胞浆向胞核的转移明显增加,表明EX 527促进了p65的表达及核转位;在经过BLF预处理后,BLF+EX 527+H2O2组bMECs的p65的蛋白表达水平则显著降低(P<0.05),且p65向胞核的转移减少,表明BLF也可能通过减弱EX 527对SIRT1的抑制效果从而减少p65的蛋白表达及核转位。
图11 EX 527对bMECs焦亡中p65表达及核转位的影响

A:p65的mRNA表达水平 mRNA expression level of p65;B:蛋白表达条带 protein expression bands;C:p65在胞浆和胞核中的蛋白表达水平 protein expression level of p65 in cytoplasm and nucleus。

Fig.11 Effects of EX 527 on expression and nuclear transposition of p65 in pyroptosis of bMECs

2.2.5 EX 527对bMECs焦亡相关基因表达的影响

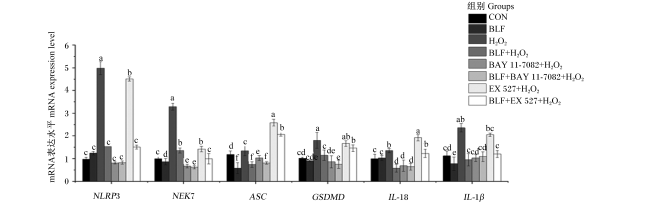
利用RT-qPCR技术探究了EX 527对bMECs焦亡相关基因表达水平的影响,焦亡相关基因的mRNA表达水平如图12所示。EX 527+H2O2组bMECs焦亡相关基因mRNA表达水平均显著高于BLF+H2O2组和BAY 11-7082+H2O2组(P<0.05),进一步证实了EX 527可能通过抑制SIRT1的表达,从而使p65表达增强,导致bMECs焦亡相关基因表达水平增强。
图12 EX 527对bMECs焦亡相关基因表达的影响

Fig.12 Effects of EX 527 on expression of related genes in pyroptosis of bMECs

2.2.6 EX 527对bMECs焦亡相关蛋白表达的影响

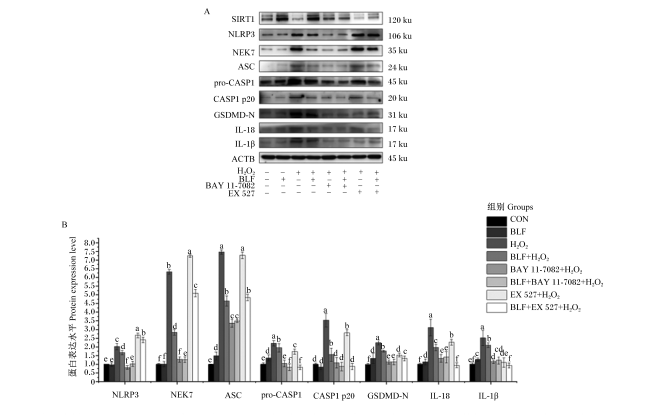
利用Western Blot技术分析了EX 527对bMECs焦亡相关蛋白表达的影响,以进一步探究SIRT1调控bMECs焦亡的机制,结果如图13所示。与BLF+H2O2组和BAY 11-7082+H2O2组相比,EX 527+H2O2组中NLRP3、NEK7、ASC、Caspase-1 p20以及IL-18的蛋白表达水平显著增强(P<0.05),但GSDMD-N和IL-1β的蛋白表达水平无显著变化(P>0.05)。
图13 EX 527对bMECs焦亡相关蛋白表达的影响

A:蛋白表达条带 protein expression bands;B:焦亡相关蛋白表达水平 expression levels of related proteins in pyroptosis。

Fig.13 Effects of EX 527 on expression of related proteins in pyroptosis of bMECs

2.2.7 EX 527对bMECs内ASC斑点的影响

利用免疫荧光技术检测细胞内ASC斑点的荧光强度,以进一步明确SIRT1在BLF缓解H2O2诱导的bMECs焦亡中的作用,结果如图14所示。EX 527+H2O2组中bMECs的ASC斑点的荧光强度最高,BLF+EX 527+H2O2组的ASC斑点的荧光强度被逆转,但仍然未恢复到BLF+H2O2组水平。
图14 免疫荧光检测EX 527对bMECs焦亡中ASC斑点的影响

Fig.14 Detection of effects of EX 527 on ASC spots in pyroptosis of bMECs by immunofluorescence

3 讨论

细胞焦亡的通路分为Caspase-1介导的经典焦亡通路[33]和Caspase-4/5/11介导的非经典焦亡通路[34]。其中,NLRP3/Cappase-1/GSDMD介导的细胞焦亡为焦亡最经典通路[35]。炎症小体的形成、Caspase的激活以及大量促炎因子的主动释放是细胞焦亡的重要标志[36]。NLRP3炎症小体的激活刺激包括感染期间出现的广泛介质[37]、组织损伤[38]或代谢应激[39]。丝氨酸/苏氨酸蛋白激酶NEK7是NLRP3的一个关键相互作用伙伴,导致NLRP3的寡聚以及ASC斑点的形成和IL-1β和IL-18的成熟,以响应活性氧(reactive oxygen species,ROS)等NLRP3炎症小体激活信号[40]。ROS还通过ROS依赖的转录因子NF-κB和脂多糖(lipopolysaccharide,LPS)介导的NLRP3去泛素化参与NLRP3炎性小体的启动信号[41]。大量研究表明了NLRP3在包括寄生虫、脂肪代谢和炎症中的重要作用[42-44]。但关于NLRP3在奶牛乳腺细胞焦亡中是否具有关键作用尚未见报道。
H2O2作为一种ROS,可诱导细胞毒性,造成细胞内大分子氧化损伤,导致细胞死亡[45]。刘佳[46]的研究证明了H2O2可通过p65诱导人主动脉内皮细胞(human aortic endothelial cells,HAECs)焦亡,且HAECs内的SIRT1通过去乙酰化抑制NF-κB的表达,因此本研究也采用H2O2成功构建了原代bMECs焦亡模型。
NF-κB转录因子在协调免疫和炎症反应中发挥核心作用[47],其中p65作为NF-κB转录因子的成员之一得到了广泛研究[48]。在畜牧领域已有研究表明p65介入了无乳链球菌[32]、金葡萄球菌[49]和大肠杆菌[50]所诱导的炎症。在奶牛氧化应激时也检测到p65表达的上调,通过抑制奶牛单核细胞中NF-κB p65的表达可以缓解LPS引起的氧化应激,提高抗氧化酶活性[51],因此本研究通过H2O2诱导bMECs焦亡,探究p65在缓解bMECs焦亡中的作用。已有研究表明黄酮类化合物对bMECs中NF-κB的调控作用。例如,任婷婷等[52]研究发现,葛根黄酮通过抑制LPS诱导的原代bMECs中NF-κB的活化和降低下游TNF-α的表达来提供抗炎效果;陈喜宏等[53]建立的LPS诱导的MAC-T炎症模型中,芹菜素通过在转录和翻译水平降低其p65和丝裂原活化蛋白激酶(mitogen activated protein kinases,MAPK)的表达,从而降低下游炎症因子起到抗炎效果。但尚不明确p65在BLF缓解H2O2诱导的bMECs焦亡中参与NLRP3炎症小体调控的生理过程。本研究检测了BLF缓解H2O2诱导bMECs焦亡模型中p65的表达情况,结果表明,H2O2诱导下bMECs中p65的mRNA和蛋白表达水平均显著提高,说明p65参与了H2O2诱导的bMECs焦亡;在BLF+H2O2组中,BLF的预处理下调了H2O2导致的p65表达水平的升高,缓解了bMECs的焦亡。这与Teng等[54]的研究结果一致,其试验使用重楼皂苷Ⅵ(polyphyllin Ⅵ,PPⅥ)诱导A549和H1299细胞内ROS水平升高,从而激活NF-κB p65,导致A549和H1299细胞Caspase-1依赖的细胞焦亡,而使用延龄草处理A549和H1299细胞则逆转了这一过程。为进一步探究p65参与bMECs焦亡的调控机制,本试验引入了p65抑制剂BAY 11-7082来模拟p65低表达模型。在BAY 11-7082处理下,p65的表达降低,同时NLRP3炎症小体相关通路的mRNA和蛋白表达被抑制,ASC斑点的荧光强度降低,NEK7的表达被下调,下游炎症因子的表达水平也被降低,这说明p65作为NLRP3炎症小体通路的上游发挥调控细胞焦亡的作用,其作用与NLRP3炎症小体是正相关的,BAY 11-7082则拮抗了这一效果。这一结果也与刘佳[46]使用si-p65转染HAECs得到的结果一致,低表达p65降低了HAECs中NLRP3炎症小体的通路蛋白表达,缓解了焦亡。在H2O2诱导下我们应用BLF处理得到了与BAY 11-7082作用相类似的结果,但BLF与BAY 11-7082共同处理并没有使这种抑制效果增强,其原因还需要后续进一步的研究。
SIRT1是一种烟酰胺腺嘌呤二核苷酸(nicotinamide adenine dinucleotide,NAD+)依赖的去乙酰化酶[55],具有调节内分泌、代谢、免疫应答、氧化应激、炎症和抗衰老等多种生理功能[56-58],也是多种天然植物功能组分发挥疾病保护作用的重要分子靶点[59]。在体内和体外,SIRT1作为急性炎症反应和相关疾病的一部分被下调[60-61],一些药物和上游分子通过上调SIRT1的表达表现出很强的抗炎活性[62-63]。因此,开发和利用具有调节SIRT1作用的生物活性物质对抑制细胞焦亡具有重要意义。在畜牧领域有研究表明SIRT1通过腺苷酸活化蛋白激酶(adenosine monophosphate-activated protein kinase,AMPK)、Janus激酶2(Janus kinase 2,JAK2)、哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)等信号通路参与了奶牛乳脂、乳蛋白的合成过程[64]。此外,多种植物黄酮等已经被证明可以通过上调SIRT1的表达来改善大鼠氧化应激、脑损伤和保护海马神经元细胞[65-67],但尚无在bMECs中的研究,其是否参与H2O2诱导的bMECs焦亡仍不清楚。因此,本研究探究了H2O2和BLF对SIRT1表达的影响,结果表明在H2O2刺激下SIRT1的表达被显著抑制,BLF预处理则可以显著提高SIRT1的表达,并且BLF可以逆转H2O2刺激所导致的SIRT1表达下调。这一结果可能说明了SIRT1参与了H2O2诱导的bMECs焦亡,且SIRT1可以调控NF-κB信号通路,但并不明确是否可以调控bMECs中NLRP3炎症小体的表达。为了进一步探究SIRT1在BLF缓解bMECs焦亡中的作用,本试验引入了SIRT1抑制剂EX 527来模拟SIRT1低表达,同样使用BLF进行预处理,探究SIRT1与p65在调控细胞焦亡时的互作关系。结果表明,在使用H2O2刺激的条件下抑制SIRT1后,p65的表达显著升高,并促进了p65向胞核的移位;同时NLRP3炎症小体通路以及NEK7都被显著上调,ASC斑点的荧光强度也呈现较高水平。在应用BLF+EX 527+H2O2处理的情况下,SIRT1的表达水平被BLF上调,p65的核移位情况被下调,NLRP3炎症小体通路的mRNA和蛋白表达水平被显著抑制,但GSDMD-N和IL-1β的蛋白表达水平与EX 527+H2O2组相比降低并不显著。以上结果与郭文帆等[68]的研究结果一致,其发现茶黄素可以通过提高AMPK/SIRT1表达,来抑制NF-κB信号通路引起的大鼠膝骨关节炎(knee osteoarthritis,KOA)。时延龙等[69]的研究则表明,栀子苷可能激活AMPK/SIRT1/NF-κB通路诱导人乳腺癌细胞MCF-7线粒体功能障碍,从而抑制MCF-7细胞增殖和侵袭,促进其焦亡。这些研究与本试验结果都说明了SIRT1与炎症和细胞焦亡的密切关系,而黄酮类物质可以通过影响SIRT1的表达调控炎症和焦亡等生理过程,这有望成为缓解奶牛乳腺炎的新靶点。

4 结论

BLF可通过抑制p65的表达和核转位,缓解H2O2诱导的bMECs焦亡和NLRP3炎症小体激活;在H2O2诱导的bMECs焦亡中SIRT1被显著抑制,BLF可通过上调SIRT1的表达来减少p65的表达和核转位以缓解H2O2诱导的bMECs焦亡。
[1]
张硕. 竹叶黄酮与丁酸钠对仙居鸡生产性能、蛋品质和脂质代谢的影响[D]. 硕士学位论文. 杭州: 浙江农林大学, 2021.

ZHANG S. Effects of bamboo leaf flavonoids and sodium butyrate on the performance,egg quality and lipid metabolism of Xianju chicken[D]. Master’s Thesis. Hangzhou: Zhejiang A & F University, 2021. (in Chinese)

[2]
方菊. 竹叶黄酮的提取分离有抑菌效果研究[D]. 硕士学位论文. 合肥: 合肥工业大学, 2012.

FANG J. Extraction,separation and antimicrobial activities of bamboo leaves flavonoids[D]. Master’s Thesis. Hefei: Hefei University of Technology, 2012. (in Chinese)

[3]
唐浩国, 魏晓霞, 李叶, 等. 竹叶黄酮对小鼠脾细胞免疫的分子机制研究[J]. 食品科学, 2007, 28(9):523-526.

TANG H G, WEI X X, LI Y, et al. Study on molecule mechanism of immunoregulation to spleen cells of rat with flavonoids from bamboo leaves[J]. Food Science, 2007, 28(9):523-526. (in Chinese)

[4]
曹晶, 代重山. 竹叶黄酮的生物学功能及其在动物生产的应用[J]. 中国饲料, 2023(23):14-18.

CAO J, DAI C S. Biological functions of bamboo leaf flavonoids and its application in animal production[J]. China Feed, 2023(23):14-18. (in Chinese)

[5]
李成贤, 曹洪志, 易宗容, 等. 竹叶提取物对肉牛生长性能、营养物质表观消化率、血清抗氧化和免疫指标的影响[J]. 饲料研究, 2021, 44(12):10-14.

LI C X, CAO H Z, YI Z R, et al. Effect of bamboo leaf extract on growth performance,nutrients apparent digestibility,serum antioxidant and immune indexes of beef cattle[J]. Feed Research, 2021, 44(12):10-14. (in Chinese)

[6]
YU Y, LI Z M, CAO G T, et al. Bamboo leaf flavonoids extracts alleviate oxidative stress in HepG2 cells via naturally modulating reactive oxygen species production and Nrf2-mediated antioxidant defense responses[J]. Journal of Food Science, 2019, 84(6):1609-1620.

DOI PMID

[7]
LI S, LIANG T, ZHANG Y, et al. Vitexin alleviates high-fat diet induced brain oxidative stress and inflammation via anti-oxidant,anti-inflammatory and gut microbiota modulating properties[J]. Free Radical Biology & Medicine, 2021, 171:332-344.

[8]
周晓燕, 应长江, 王珊珊, 等. 竹叶黄酮抑制大鼠脑海马的炎症反应减轻糖尿病大鼠认知功能障碍[J]. 中国医学创新, 2016, 13(35):21-23.

ZHOU X Y, YING C J, WANG S S, et al. Bamboo leaf flavone alleviates cognitive deficit through inhibiting inflammation in hippocampus in diabetic rats[J]. Medical Innovation of China, 2016, 13(35):21-23. (in Chinese)

[9]
李建凤, 赵佳桢, 沈义媛, 等. 竹叶黄酮对热应激诱导奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2022, 34(1):626-639.

DOI

LI J F, ZHAO J Z, SHEN Y Y, et al. Protective effects of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by heat stress[J]. Chinese Journal of Animal Nutrition, 2022, 34(1):626-639. (in Chinese)

[10]
侯昆, 童津津, 楚康康, 等. 竹叶黄酮与青蒿提取物对患隐性乳房炎奶牛产奶性能、乳中体细胞数及血清免疫和抗氧化相关指标的影响[J]. 动物营养学报, 2019, 31(9):4286-4295.

DOI

HOU K, TONG J J, CHU K K, et al. Effects of bamboo leaf flavonoids and Artemisia annua extract on milk performance,milk somatic cell count and serum immune and antioxidant related indexes of dairy cows with subclinical mastitis[J]. Chinese Journal of Animal Nutrition, 2019, 31(9):4286-4295. (in Chinese)

[11]
詹经纬, 李欣, 关淑文, 等. 竹叶黄酮对过氧化氢诱导的奶牛乳腺上皮细胞氧化损伤的保护作用[J]. 动物营养学报, 2023, 35(4):2616-2628.

DOI

ZHAN J W, LI X, GUAN S W, et al. Protective effect of bamboo leaf flavonoids on oxidative damage of bovine mammary epithelial cells induced by hydrogen peroxide[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2616-2628. (in Chinese)

DOI

[12]
LI L L, QI J J, TAO H, et al. Protective effect of the total flavonoids from Clinopodium chinense against LPS-induced mice endometritis by inhibiting NLRP3 inflammasome-mediated pyroptosis[J]. Journal of Ethnopharmacology, 2023, 312:116489.

[13]
郭娜, 孙云朝, 孙春霞, 等. 山楂黄酮通过抑制ROS/NLRP3信号通路对辐射损伤小鼠睾丸的保护作用[J]. 中成药, 2023, 45(1):258-263.

GUO N, SUN Y C, SUN C X, et al. Hawthorn flavonoids protect the testis of radiation-injured mice by inhibiting ROS/NLRP3 signaling pathway[J]. Chinese Traditional Patent Medicine, 2023, 45(1):258-263. (in Chinese)

[14]
吕鑫, 顾志荣, 祁梅, 等. 锁阳黄酮对阿尔茨海默病大鼠海马组织ROS含量及NADPH氧化酶、NLRP3表达的影响[J]. 中国中医药信息杂志, 2023, 30(4):82-87.

LV X, GU Z R, QI M, et al. Effects of cynomorium songaricum flavonoids on ROS content and expressions of NADPH oxidase and NLRP3 in hippocampus of alzheimer disease rats[J]. Chinese Journal of Information on Traditional Chinese Medicine, 2023, 30(4):82-87. (in Chinese)

[15]
ZHANG G X, TANG L M, LIU H B, et al. Psidium guajava flavonoids prevent NLRP3 inflammasome activation and alleviate[J]. The American Journal of Chinese Medicine, 2021, 49(8):2001-2015.

[16]
肖金龙, 王浩, 万全, 等. 撒坝猪源E.coli高致病性毒力岛通过NLRP3/ASC/Caspase-1途径诱导IPEC-J2细胞焦亡[J]. 畜牧兽医学报, 2023, 54(12):5218-5227.

DOI

XIAO J L, WANG H, WAN Q, et al. Induction of IPEC-J2 pyroptosis by E.coli HPI from Saba pig via NLRP3/ASC/Caspase-1 pathway[J]. Acta Veterinaria Et Zootechnica Sinica, 2023, 54(12):5218-5227. (in Chinese)

[17]
张慧欣, 辜银萍, 胡宇声, 等. NLRP3炎性小体和细胞焦亡在消化系统疾病中的作用机制[J]. 中国兽医杂志, 2023, 59(1):96-101.

ZHANG H X, GU Y P, HU Y S, et al. The mechanism of NLRP3 inflammasome and pyroptosis in digestive system diseases[J]. Chinese Journal of Veterinary Medicine, 2023, 59(1):96-101. (in Chinese)

[18]
BARBATO O, HOLMES B, FILIPESCU I E, et al. Dietary supplementation of yerba mate (Ilex paraguariensis) during the dry period improves redox balance in lactating dairy cows[J]. Antioxidants, 2019, 8(2):38.

[19]
SUN X D, JIA H D, XU Q S, et al. Lycopene alleviates H2O2-induced oxidative stress, inflammation and apoptosis in bovine mammary epithelial cells via the NFE2L2 signaling pathway[J]. Food & Function, 2019, 10(10):6276-6285.

[20]
WEI Z J, NIE G H, YANG F, et al. Inhibition of ROS/NLRP3/Caspase-1 mediated pyroptosis attenuates cadmium-induced apoptosis in duck renal tubular epithelial cells[J]. Environmental Pollution, 2021, 273:115919.

[21]
CAPUCO A V, CHOUDHARY R K. Symposium review:determinants of milk production:understanding population dynamics in the bovine mammary epithelium[J]. Journal of Dairy Science, 2020, 103(3):2928-2940.

[22]
魏祎, 刘超, 齐鸣, 等. 岩白菜素通过调控NF-κB/NLRP3通路和代谢对特发性肺间质纤维化小鼠的影响[J]. 中成药, 2023, 45(1):62-69.

WEI Y, LIU C, QI M, et al. Effects of bergenin on mice with idiopathic pulmonary fibrosis by regulating NF-κB/NLRP3 pathway and metabolism[J]. Chinese Traditional Patent Medicine, 2023, 45(1):62-69. (in Chinese)

[23]
张富慧, 郝静峰, 张自艳, 等. 菊苣酸调控p38MAPK/NF-κB/NLRP3信号通路对缺血性脑卒中大鼠神经元凋亡及炎症反应的影响[J]. 中风与神经疾病杂志, 2022, 39(8):694-698.

ZHANG F H, HAO J F, ZHANG Z Y, et al. Impacts of cichoric acid on neuronal apoptosis and inflammatory response in ischemic stroke rats by regulating p38 MAPK/NF-κB/NLRP3 signaling pathway[J]. Journal of Apoplexy and Nervous Diseases, 2022, 39(8):694-698. (in Chinese)

DOI

[24]
吴本升. 黄蜀葵花总黄酮抑制NF-κB/NLRP3信号通路改善溃疡性结肠炎的作用机制研究[D]. 博士学位论文. 南京: 南京中医药大学, 2022.

WU B S. Alleviative effects of total flavone abelmoschus manihot against ulcerative colitis via inhibiting NF-κB/NLRP3 signaling pathway[D]. Ph.D.Thesis. Nanjing: Nanjing University of Chinese Medicine, 2022. (in Chinese)

[25]
ZHANG Y M, TAO X F, YIN L H, et al. Protective effects of dioscin against cisplatin-induced nephrotoxicity via the microRNA-34a/sirtuin 1 signalling pathway[J]. British Journal of Pharmacology, 2017, 174(15):2512-2527.

DOI PMID

[26]
DENG H J, ZHOU C H, HUANG L T, et al. Activation of silent information regulator 1 exerts a neuroprotective effect after intracerebral hemorrhage by deacetylating NF-κB/p65[J]. Journal of Neurochemistry, 2021, 157(3):574-585.

[27]
LUO X, BAO X Y, WENG X Z, et al. The protective effect of quercetin on macrophage pyroptosis via TLR2/Myd88/NF-κB and ROS/AMPK pathway[J]. Life Sciences, 2022, 291:120064.

[28]
TANG K, SU W H, HUANG C H, et al. Notoginsenoside R1 suppresses inflammatory response and the pyroptosis of nucleus pulposus cells via inactivating NF-κB/NLRP3 pathways[J]. International Immunopharmacology, 2021, 101(Part B):107866.

[29]
ZOU Y P, LUO X, FENG Y, et al. Luteolin prevents THP-1 macrophage pyroptosis by suppressing ROS production via Nrf2 activation[J]. Chemico-biological Interactions, 2021, 345:109573.

[30]
SHI H L, ZHANG Y L, XING J, et al. Baicalin attenuates hepatic injury in non-alcoholic steatohepatitis cell model by suppressing inflammasome-dependent GSDMD-mediated cell pyroptosis[J]. International Immunopharmacology, 2020, 81:106195.

[31]
李方. 白藜芦醇调节SIRT1/NF-κB/NLRP3炎性小体通路影响力竭运动大鼠肾脏炎症反应的机制[D]. 博士学位论文. 北京: 北京体育大学, 2020.

LI F. Effect and mechanism of resveratrol on kidney inflammation of exhausted exercise rats via modulating SIRT1/NF-κB/NLRP3 inflammsome pathway[D]. Ph.D.Thesis. Beijing: Beijing Sport University, 2020. (in Chinese)

[32]
牛慧. 苦参碱对无乳链球菌诱导的奶牛乳腺上皮细胞炎症反应的保护机制研究[D]. 硕士学位论文. 北京: 北京农学院, 2022.

NIU H. Study on the protective mechanism of matrine against bovine mammary epithelial cells inflammation induced by Streptococcus agalactiae[D]. Master’s Thesis. Beijing: Beijing University of Agriculture, 2022. (in Chinese)

[33]
LIU X, ZHANG Z B, RUAN J B, et al. Inflammasome-activated gasdermin D causes pyroptosis by forming membrane pores[J]. Nature, 2016, 535(7610):153-158.

[34]
AGLIETTI R A, ESTEVEZ A, GUPTA A, et al. GSDMD p30 elicited by Caspase-11 during pyroptosis forms pores in membranes[J]. Proceedings of the National Academy of Sciences of the United States of America, 2016, 113(28):7858-7863.

DOI PMID

[35]
HADIAN K, STOCKWELL B R. The therapeutic potential of targeting regulated non-apoptotic cell death[J]. Nature Reviews Drug Discovery, 2023, 22(9):723-742.

DOI PMID

[36]
周杨淑, 喻礼怀, 董丽. 细胞焦亡的分子机制及其营养调控[J]. 动物营养学报, 2023, 35(12):7648-7657.

DOI

ZHOU Y S, YU L H, DONG L. Molecular mechanisms of cell pyroptosis and its nutritional regulation[J]. Chinese Journal of Animal Nutrition, 2023, 35(12):7648-7657. (in Chinese)

DOI

[37]
KANNEGANTI T D, OZÖREN N, BODY-MALAPEL M, et al. Bacterial RNA and small antiviral compounds activate Caspase-1 through cryopyrin/Nalp3[J]. Nature, 2006, 440(7081):233-236.

[38]
LEEMANS J C, CASSEL S L, SUTTERWALA F S. Sensing damage by the NLRP3 inflammasome[J]. Immunological Reviews, 2011, 243(1):152-162.

DOI PMID

[39]
SCHRODER K, ZHOU R B, TSCHOPP J. The NLRP3 inflammasome:a sensor for metabolic danger?[J]. Science, 2010, 327(5963):296-300.

[40]
ZHAO N, LI C C, DI B, et al. Recent advances in the NEK7-licensed NLRP3 inflammasome activation:mechanisms,role in diseases and related inhibitors[J]. Journal of Autoimmunity, 2020, 113:102515.

[41]
JULIANA C, FERNANDES-ALNEMRI T, KANG S, et al. Non-transcriptional priming and deubiquitination regulate NLRP3 inflammasome activation[J]. The Journal of Biological Chemistry, 2012, 287(43):36617-36622.

[42]
董记红. Mitofusin 2对脂肪肝奶牛肝脏脂代谢紊乱和炎症的调节机制[D]. 博士学位论文. 长春: 吉林大学, 2021.

DONG J H. The regulatory mechanism of mitofusin 2 in hepatic altered lipid metabolism and inflammation of dairy cows with fatty liver[D]. Ph.D.Thesis. Changchun: Jilin University, 2021. (in Chinese)

[43]
马梦汝. LncRNA-XIST通过NF-κB/NLRP3炎性小体通路调节奶牛乳腺上皮细胞的炎性应答[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2018.

MA M R. LncRNA-XIST mediates bovine mammary epithelial cell inflammatory response via NF-κB/NLRP3 inflammasome pathway[D]. Master’s Thesis. Yangling: Northwest A & F University, 2018. (in Chinese)

[44]
刘明超. 奶牛子宫内膜炎早期诊断及益生菌抗大肠杆菌诱导的子宫内膜上皮细胞炎性损伤作用机理[D]. 博士学位论文. 北京: 中国农业大学, 2017.

LIU M C. Early diagnosis of endometritis of dairy cows and the mechanism of probiotics against inflammatory injury of bovine endometrial epithelial cells induced by Escherichia coli[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2017. (in Chinese)

[45]
BEG A A, RUBEN S M, SCHEINMAN R I, et al. I kappa B interacts with the nuclear localization sequences of the subunits of NF-kappa B:a mechanism for cytoplasmic retention[J]. Genes & Development, 1992, 6(10):1899-1913.

[46]
刘佳. SIRT1通过去乙酰化NF-κB(p65)调控H2O2诱导的人主动脉内皮细胞焦亡的机制研究[D]. 博士学位论文. 长春: 吉林大学, 2022.

LIU J. The mechanism of SIRT1 regulating H2O2-induced pyroptosis of human aortic endothelial cells by deacetylating of NF-κB (p65)[D]. Ph.D.Thesis. Changchun: Jilin University, 2022. (in Chinese)

[47]
HAYDEN M S, GHOSH S. Shared principles in NF-kappaB signaling[J]. Cell, 2008, 132(3):344-362.

DOI PMID

[48]
HOESEL B, SCHMID J A. The complexity of NF-κB signaling in inflammation and cancer[J]. Molecular Cancer, 2013, 12:86.

DOI PMID

[49]
王建强, 李俊, 马晓敏, 等. 金黄色葡萄球菌侵染对奶牛乳腺上皮细胞Nrf2和NF-κB信号通路转导的影响[J]. 中国兽医学报, 2020, 40(12):2413-2418,2424.

WANG J Q, LI J, MA X M, et al. Effects of Staphylococcus aureus infection on Nrf2 and NF-κB signaling pathway in bovine mammary epithelial cells[J]. Chinese Journal of Veterinary Science, 2020, 40(12):2413-2418,2424. (in Chinese)

[50]
王一, 吴建美, 毕艳楠, 等. 大肠杆菌对体外培养的奶牛乳腺成纤维细胞TGF-β1和NF-κBTLR4表达的影响[J]. 中国兽医科学, 2015, 45(7):764-770.

WANG Y, WU J M, BI Y N, et al. Effect of Escherichia coli on TGF-β1,TLR4 and NF-κB mRNA expression and protein secretion in bovine mammary fibroblast cultured in vitro[J]. Chinese Veterinary Science, 2015, 45(7):764-770. (in Chinese)

[51]
郑亚光. 壳聚糖通过NF-κB信号通路调节奶牛抗氧化功能与抗炎症反应的机理研究[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学, 2020.

ZHENG Y G. Mechanism of chitosan regulating antioxidant function and anti-inflammatory response of dairy cows by NF-κB signaling pathway[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2020. (in Chinese)

[52]
任婷婷, 张东君, 朱丽萍, 等. 葛根素对奶牛乳腺上皮细胞炎症模型中NF-κB信号通路的影响[J]. 农业生物技术学报, 2016, 24(1):44-51.

REN T T, ZHANG D J, ZHU L P, et al. Effect of puerarin on NF-κB signaling pathway in inflammation model of bovine (Bos taurus) mammary epithelial cells[J]. Journal of Agricultural Biotechnology, 2016, 24(1):44-51. (in Chinese)

[53]
陈喜宏, 余世田, 马骁, 等. 芹菜素通过NF-κB和MAPK通路抑制MAC-T细胞和小鼠乳腺的炎性反应[J]. 中国兽医学报, 2022, 42(10):2042-2050.

CHEN X H, YU S T, MA X, et al. Inflammatory inhibition of apigenin through NF-κB and MAPK pathways in MAC-T cells[J]. Chinese Journal of Veterinary Science, 2022, 42(10):2042-2050. (in Chinese)

[54]
TENG J F, MEI Q B, ZHOU X G, et al. Polyphyllin Ⅵ induces Caspase-1-mediated pyroptosis via the induction of ROS/NF-κB/NLRP3/GSDMD signal axis in non-small cell lung cancer[J]. Cancers, 2020, 12(1):193.

[55]
CANTÓ C, AUWERX J. Targeting sirtuin 1 to improve metabolism:all you need is NAD+?[J]. Pharmacological Reviews, 2012, 64(1):166-187.

[56]
DAENTHANASANMAK A, IAMSAWAT S, CHAKRABORTY P, et al. Targeting Sirt-1 controls GVHD by inhibiting T-cell allo-response and promoting treg stability in mice[J]. Blood, 2019, 133(3):266-279.

DOI PMID

[57]
NOGUEIRAS R, HABEGGER K M, CHAUDHARY N, et al. Sirtuin 1 and sirtuin 3:physiological modulators of metabolism[J]. Physiological Reviews, 2012, 92(3):1479-1514.

[58]
GUARENTE L, PICARD F. Calorie restriction—the SIR2 connection[J]. Cell, 2005, 120(4):473-482.

[59]
ISIDE C, SCAFURO M, NEBBIOSO A, et al. SIRT1 activation by natural phytochemicals:an overview[J]. Frontiers in Pharmacology, 2020, 11:1225.

[60]
BAI X Z, HE T, LIU Y, et al. Acetylation-dependent regulation of notch signaling in macrophages by SIRT1 affects sepsis development[J]. Frontiers in Immunology, 2018, 9:762.

DOI PMID

[61]
ZHANG Z Y, LOWRY S F, GUARENTE L, et al. Roles of SIRT1 in the acute and restorative phases following induction of inflammation[J]. The Journal of Biological Chemistry, 2010, 285(53):41391-41401.

[62]
LI Y, LIU T T, LI Y T, et al. Baicalin ameliorates cognitive impairment and protects microglia from LPS-induced neuroinflammation via the SIRT1/HMGB1 pathway[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:4751349.

[63]
HU T Y, FAN X Q, MA L, et al. TIM4-TIM1 interaction modulates Th2 pattern inflammation through enhancing SIRT1 expression[J]. International Journal of Molecular Medicine, 2017, 40(5):1504-1510.

[64]
曹佩佩, 冀思同, 窦文丽, 等. 沉默信息调节因子2相关酶1对乳脂,乳蛋白合成和乳腺炎的调节及其可能机制[J]. 动物营养学报, 2023, 35(3):1426-1432.

DOI

CAO P P, JI S T, DOU W L, et al. Regulation of silent information regulator 2-related enzyme 1 on milk fat,milk protein synthesis and mastitis and its possible mechanism[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1426-1432. (in Chinese)

[65]
吴颖, 王敏纯, 廖卫国, 等. 毛蕊异黄酮苷通过SIRT1通路对缺血性脑损伤大鼠的保护作用及机制[J]. 中药新药与临床药理, 2022, 33(9):1163-1169.

WU Y, WANG M C, LIAO W G, et al. Protective effect and mechanism of calycosin-7-O-β-D-glucoside through SIRT1 pathway on ischemic brain injury in rats[J]. Traditional Chinese Drug Research & Clinical Pharmacology, 2022, 33(9):1163-1169. (in Chinese)

[66]
李闯, 马晓莉, 文志萍, 等. 香青兰总黄酮对心肌缺血再灌注损伤大鼠氧化应激和线粒体的保护作用[J]. 中成药, 2022, 44(2):390-395.

LI C, MA X L, WEN Z P, et al. Protective effects of Dracocephalum moldavica total flavonoids on oxidative stress and mitochondria in rats with myocardial ischemia-reperfusion injury[J]. Chinese Traditional Patent Medicine, 2022, 44(2):390-395. (in Chinese)

[67]
杨娴, 阮金兰. 鸡血莲黄酮通过调节AMPK/Sirt1/NF-κB信号通路改善小鼠非酒精性脂肪肝的实验研究[J]. 中医药导报, 2021, 27(4):10-14.

YANG X, RUAN J L. Experimental study on the improvement of non-alcoholic fatty liver in mice with flavone of Jixuelian (Pronephrium penangianum) by regulating the AMPK/Sirt1/NF-κB signaling pathway[J]. Guiding Journal of Traditional Chinese Medicine and Pharmacology, 2021, 27(4):10-14. (in Chinese)

[68]
郭文帆, 杨学钰, 郑雪君, 等. 茶黄素调节AMPK/SIRT1/NF-κB信号通路对膝骨关节炎大鼠的治疗作用[J]. 河北医学, 2023, 29(1):42-49.

GUO W F, YANG X Y, ZHENG X J, et al. Therapeutic effect of theaflavins modulation of AMPK/SIRT1/NF-κB signaling pathway in rats with knee osteoarthritis[J]. Hebei Medicine, 2023, 29(1):42-49. (in Chinese)

[69]
时延龙, 周鹏, 王雪凯, 等. 栀子苷通过AMPK/SIRT1/NF-κB通路调节乳腺癌细胞增殖、焦亡和侵袭[J]. 广西医科大学学报, 2022, 39(11):1700-1705.

SHI Y L, ZHOU P, WANG X K, et al. Regulation of geniposideon on the proliferation,pyroptosis and invasion of breast cancer cells through AMPK/SIRTI/NF-κB pathway[J]. Journal of Guangxi Medical University, 2022, 39(11):1700-1705. (in Chinese)

Outlines

/