REVIEW

Research Progress of Redox Potential in Rumen

  • ZHOU Yan ,
  • WANG Lizhi , * ,
  • WANG Yidan ,
  • MAO Jinju
Expand
  • Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 610000, China
*professor, E-mail:

Received date: 2024-03-18

  Online published: 2024-10-14

Abstract

Redox potential (Eh) is one of the important physicochemical parameters of rumen environment, an indicator of rumen bacterial activity, and a basic parameter to measure rumen fermentation kinetics. Rumen Eh is closely related to the synthesis of volatile fatty acid (VFA) during rumen fermentation. In this paper, the mechanism of action, influencing factors, determination methods of rumen Eh and its effects on rumen microbiota composition and cellulose degradation were reviewed, aiming to provide references for further research on rumen fermentation and rumen microecosystem.

Cite this article

ZHOU Yan , WANG Lizhi , WANG Yidan , MAO Jinju . Research Progress of Redox Potential in Rumen[J]. Chinese Journal of Animal Nutrition, 2024 , 36(10) : 6165 -6171 . DOI: 10.12418/CJAN2024.524

丰富多样的微生物群体是瘤胃发挥正常功能的关键,瘤胃内的理化特性如温度、渗透压、pH、酸碱缓冲能力以及氧化还原电位(redox potential,Eh)等为微生物生长代谢活动提供了良好条件。瘤胃Eh作为瘤胃内环境的重要理化参数之一,在一些相关学科中并没有受到与pH同等的关注[1]。Eh不但对瘤胃发酵过程中的酶促反应发挥着重要作用,而且也是影响瘤胃甲烷生成的重要因素。因此,深入了解Eh对瘤胃功能的影响及其作用机制,能够为人们调控瘤胃发酵、深入研究瘤胃微生态系统提供帮助。

1 瘤胃Eh的定义和产生机制

1.1 瘤胃Eh的定义

氧化还原反应是指在电子(e-)供体和受体的化合物之间发生1个或多个电子转移的反应[2]。Eh是在限定条件下,衡量一种化学物质或体系对电子的供能倾向[3]。厌氧环境是确保瘤胃微生物与宿主共生的关键条件,这使得碳水化合物在瘤胃内不能被完全氧化成二氧化碳和水,但是其不完全氧化产物挥发性脂肪酸(VFA)是反刍动物体内转化为糖、脂肪和非必需氨基酸的必要前体物质,而这一过程与瘤胃内Eh密切相关[4]。因此,Eh是瘤胃厌氧发酵的重要参数之一[1-2]

1.2 瘤胃Eh的产生机制

在瘤胃中,氧化还原反应发生的辅助因子为氧化型烟酰胺腺嘌呤二核苷酸(NAD+)和还原型烟酰胺腺嘌呤二核苷酸(NADH),同时NAD+和NADH也是控制瘤胃发酵即产生VFA的关键因素[5]。NAD+通过吸收2个电子和1个质子还原成NADH[3],NAD+/NADH值反映了Eh[6],瘤胃Eh越低(瘤胃环境还原程度越高),表明电子亲和力越低,即NAD+/NADH值越低;而瘤胃Eh越高(瘤胃环境氧化程度越高),表明电子亲和力越高,即NAD+/NADH值越高[3]。瘤胃中的发酵产物是主要的电子受体,摄入瘤胃的复杂碳水化合物经过初级发酵,被瘤胃微生物酶(纤维素酶等)水解生成单体物质,后被微生物摄取并在胞内生成VFA和甲烷等。其中,单糖经糖酵解途径转化生成丙酮酸的过程中释放的质子和电子被NAD+捕获,生成的NADH参与微生物胞内的还原反应,如不饱和脂肪酸的氢化过程以及甲烷的生成等。携带电子的辅助因子NADH需要被氧化成NAD+以确保丙酮酸进一步代谢生成乙酰辅酶A,进而生成丁酸[7];同时,在瘤胃微生物的发酵作用下,丙酮酸转化为丙酸,将NADH氧化[8],进而电子从NADH转移到氢离子(H+)生成氢气(H2)。乙酸作为瘤胃中主要的VFA,其生成并不耦合于NADH的氧化过程,而是由丙酮酸产生[6]。瘤胃中合成的甲烷主要来自氢气或甲基,产生的氢气被转移给产甲烷菌发生氧化还原反应合成甲烷[3,9]

2 影响瘤胃Eh的因素

2.1 pH和氧气对瘤胃Eh的影响

pH作为瘤胃重要的理化参数之一,与瘤胃Eh有着密切的联系,pH和Eh之间的关系说明在消化系统中的许多生化反应都依赖于氧化还原偶联和质子交换[10]。在奶牛进食过程中,瘤胃Eh出现明显变化,从饲喂开始到结束,瘤胃Eh明显升高,而pH变化是引起瘤胃食糜Eh变化的主要原因[11-12]。研究发现,在测定瘤胃液Eh时,瘤胃Eh与pH之间存在很强的非线性关系(图1),当pH下降时,Eh会升高[4];在另一项研究中同样表明,降低pH使得Eh往更高的趋势发展[3]。如前文所述,瘤胃中Eh的变化趋势可被理解为糖酵解过程中辅助因子NAD+/NADH值的动态过程,NAD+/NADH值的高低反映瘤胃Eh。从饲喂开始向瘤胃中输送食糜或者在瘤胃液中添加碳水化合物,会引起糖酵解途径中NAD+/NADH动态平衡破坏,H+和VFA浓度提高,即pH下降,进而使得糖酵解过程中生成的NAD+增加,NADH进一步被消耗,致使NAD+/NADH值升高,瘤胃Eh向更高的趋势发展。
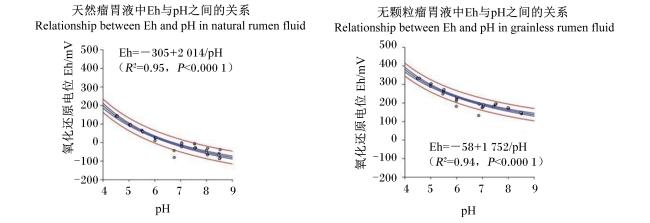
图1 瘤胃液中Eh与pH之间的关系

Fig.1 Relationship between Eh and pH in rumen fluid[4]

厌氧环境是瘤胃发酵的关键,动物采食和饮水活动以及血液循环进入瘤胃的氧气不免会对瘤胃Eh造成干扰[3,10],但是与瘤胃上皮相关的兼性厌氧菌会消耗利用进入瘤胃的氧气[13],从而有利于严格厌氧菌对复杂碳水化合物的分解。但对于患有亚急性瘤胃酸中毒(SARA)的反刍动物来说:一方面,瘤胃pH降低,致使NAD+/NADH值升高,瘤胃内环境处于高氧化程度;另一方面,低pH环境会破坏瘤胃上皮屏障,从而进一步加剧氧气扩散进入瘤胃[14],使得具有促炎作用的兼性厌氧菌数量增加,有利于Eh向更低方向发展的严格厌氧菌数量减少,而在发生氧化还原反应的过程中氧气可能还会夺取电子,从而致使瘤胃Eh发生改变。

2.2 饲粮组成对瘤胃Eh的影响

摄入瘤胃的饲粮组成和微生物组成相互关联[15],但其并不直接影响瘤胃Eh,而是通过微生物酶和代谢途径对Eh产生影响[4]。Huang等[10]对已发表的与瘤胃Eh相关的试验数据进行综合分析后发现,瘤胃Eh与干物质采食量(DMI)和饲粮精料比例呈显著正相关,与饲草中性洗涤纤维(NDF)含量呈显著负相关。饲喂高纤维饲粮的奶牛瘤胃Eh低于饲喂高淀粉饲粮的瘤胃Eh(图2)[10,16]。产生这种现象可能是由于还原程度的不同,瘤胃内还原程度越高,NAD+/NADH值越低,电子亲和力越低,即产生的Eh倾向于更低[3]。由此可见,高NDF含量、低精料比例饲粮可能使瘤胃内具有更强还原条件,饲粮中高NDF含量使瘤胃Eh值向更低的趋势发展。
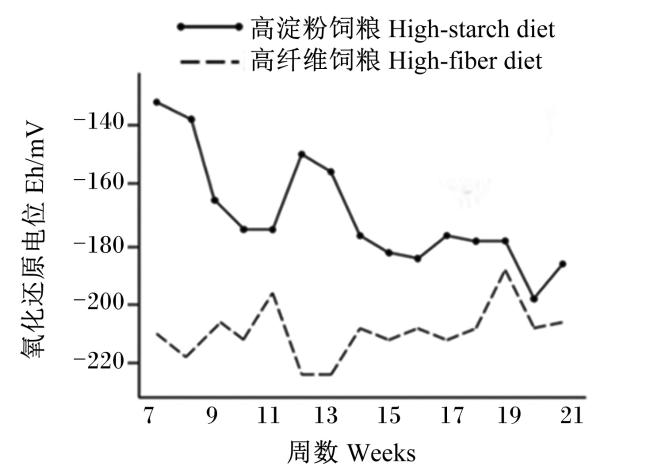
图2 高淀粉饲粮和高纤维饲粮对瘤胃Eh的影响

Fig.2 Effects of high-starch diet and high-fiber diet on rumen Eh[10]

2.3 其他因素对瘤胃Eh的影响

在测定瘤胃Eh时,温度也会对其产生影响。研究发现,对采集的瘤胃液样品分2组分别进行39 ℃水浴孵育和冰浴后测定Eh,冰浴组与瘤胃内测定的Eh更接近,更能代表体内的Eh,可能是由于冰上保存的样品降低了发酵速率[17]。此外,不同种类的反刍动物瘤胃Eh不同,同一个体在不同时期瘤胃Eh也不相同。Rey等[18]测定犊牛出生第1天的瘤胃Eh为正值(+224 mV),第2~9天、第10~40天以及第43~80天瘤胃Eh平均值分别为-164、-115和-141 mV;而Julien等[19]测定的Eh为(-159~+253)mV。表1列举了近几年来各种反刍动物瘤胃Eh的测定值[4,20-24],由此可见动物种类以及不同个体的差异性。
表1 各种反刍动物瘤胃Eh测定值

Table 1 Eh measured values in rumen of various ruminants

动物
Animals
测定方法
Assay methods
氧化还原电位
Eh/mV
参考文献
References
绵羊 Sheep 体外 -120±41 Rietmann等[4]
肉牛 Beef cattle 体内 -240 Dias Batista等[20]
奶牛 Dairy cattle 体外 -346 Thorsteinsson等[21]
肉牛 Beef cattle 体内 -243 Batista等[22]
山羊 Goats 体内 -148±6 Giger-Reverdin等[23]
奶牛 Dairy cattle 体内 -384 Qin等[24]

3 瘤胃Eh的测定

3.1 瘤胃Eh的测量方法

瘤胃Eh很少被测定,主要原因是Eh对空气污染敏感,造成测量困难。一般来说,细胞内氧化还原平衡很难测量,然而在瘤胃液中能够方便地检测到细胞外的氧化还原平衡,这种胞外氧化还原平衡可以用于反映胞内氧化还原平衡状态和直接发酵途径[4,25],因此研究人员习惯对瘤胃液(即细胞外)Eh进行测定。瘤胃Eh的测定方法有多种,传统的测定方法通常采用口腔探针装置,或者经皮穿刺腹侧瘤胃囊,再或者使用抽吸过滤器装置通过瘤胃瘘管采集瘤胃液样本进行Eh的测定[26]。然而,改变瘤胃严格厌氧条件的取样和测量技术都可能是导致Eh测量误差的重要原因。Marden等[27]开发出了一种通过蠕动泵将瘤胃液泵至39 ℃的恒温容器中以连续测量Eh的方法,该方法提供了必要的预防措施,以防止任何空气污染物接触样品,从而将样品保持在天然环境中。经过近些年的发展,生物传感器在畜牧业的使用越来越广泛,这些传感器包括在瘤胃内使用的无线瘤胃传感器[25],这种传感器测定技术与其他测定技术相比,不仅可以同时连续、高分辨率地测量瘤胃内的Eh、pH和温度等关键瘤胃参数,还可以监测严格厌氧条件下测定指标的每日变化情况[10]。另外,据报道,使用传感器在瘤胃垫和瘤胃壁附近测量Eh可能更具有意义[25]

3.2 Eh测量电极校正

表1可知,近几年来有关研究采用上述方法所测定的瘤胃Eh均为负值,反映出瘤胃高度的厌氧环境和强还原能力,同时也反映出Eh的高变异性,而这主要原因在于Eh的表达方式。根据定义,Eh是铂电极与标准氢电极(国际氢气零排放)之间的电位差。Eh是相对于标准氢电极表示的,由铂电极的电位决定[27]。在实践中,氢电极很少使用,必须根据实际使用的参比电极[例如银/氯化银(Ag/AgCl)电极或甘汞(Hg/HgCl2)电极]与标准氢电极之间的差异进行测量校正。所有记录必须校正为Eh=E0+C,其中E0是铂电极的电位,C是相对于标准氢电极使用的参比电极的电位,即39 ℃时为+199 mV[10]

4 Eh对瘤胃微生物的影响

瘤胃微生物与宿主动物之间互惠共生关系对双方至关重要。瘤胃微生物种群非常密集,超过1010个/mL瘤胃液,并具有多样性(已鉴定的物种超过2 500种),但需要指出的是,瘤胃微生物种群的很大一部分(>80%)仍然未知[28-29]。牛瘤胃宏基因组研究表明,瘤胃微生物由95%的细菌、2%~4%的古细菌以及约1%的真核生物(原生动物和真菌)组成[30]。作为瘤胃发酵过程的必要参与者,瘤胃微生物与Eh已被证明有着不可分割的联系,Eh是瘤胃细菌活性的指示剂[10],也是衡量瘤胃发酵动力学的基本参数[25]

4.1 Eh对瘤胃细菌群落的影响

细菌是瘤胃微生物中数量最高、种类最多、代谢最活跃的群体[31],瘤胃核心细菌群落主要由拟杆菌门(Bacteroidota)和厚壁菌门(Firmicutes)组成,其次是变形菌门(Proteobacteria)[32]。拟杆菌门和厚壁菌门细菌丰度明显高于所有其他瘤胃微生物的总和[33]。在瘤胃中生存的每种菌都具有相应的Eh适应范围:一般来说,需氧菌适宜Eh为+300~+500 mV,兼性厌氧菌为-100~+300 mV,厌氧菌在-250~+100 mV[1]。改变Eh可能会改变瘤胃细菌的生长和代谢活动。采集瘤胃液进行体外发酵与在瘤胃中自然发酵相比(生物反应器pH、总挥发性脂肪酸含量等参数与瘤胃中的自然条件一致),微生物群落会发生显著变化:拟杆菌门与厚壁菌门的比值从3.2变化到1.2,以双歧杆菌属(Bifidobacterium)和奥尔森氏菌属(Olsenella)为代表的变形菌门和放线菌门细菌数量显著增加[34]。发生变化的主要原因为Eh的改变,生物反应器中的Eh远低于瘤胃中的Eh。正如图1所示,在无颗粒瘤胃液(经离心处理后取上清液,名义上不含细菌、原生动物和真菌)中,测得的Eh比天然瘤胃液高出约200 mV,即阳性Eh,这表明附着在瘤胃内容物颗粒上的微生物经过发酵活动生成负的Eh[4]。因此,在反刍动物瘤胃中,正是由于微生物的存在,催生出瘤胃发酵过程中的氧化还原反应,进而产生Eh;当瘤胃Eh条件发生改变时,会对瘤胃微生物的组成产生一定的影响。
瘤胃内一些有关营养物质降解的关键细菌,如埃氏巨球形菌(Megasphaera elsdenii)、反刍兽新月形单胞菌(Selenomonas ruminantium)和牛链球菌(Streptococcus bovis)的代谢活动受到氧化还原条件的影响[35-36]。有关体外培养的研究发现,反刍兽新月形单胞菌和耐氧的牛链球菌Eh的生长上限分别为+360和+414 mV,生长下限分别为-360和-340 mV[36]。因此,在-340~0 mV内,Eh的变化对这些细菌的生长或发酵终产物几乎没有影响,但当Eh超过0 mV时[36],所有菌种的特定生长率都趋于下降。

4.2 Eh对瘤胃古菌群落的影响

瘤胃Eh的变化会对产甲烷古菌的组成也会产生影响。古细菌占瘤胃总rRNA(16S和18S)的比例小于3.3%,其中占主导地位的是产甲烷菌。与细菌相比,产甲烷菌多样性和丰富性有限[37],它们主要有助于甲烷生成,旨在缓解瘤胃中的氢分压,是瘤胃高效发酵的基础[38]。从瘤胃中分离到的产甲烷菌主要包括甲烷短杆菌属(Methanobrevibacter)和甲烷细菌属(Methanobacterium)[39]。Friedman等[16]研究发现,饲喂高谷物(65%)饲粮的奶牛瘤胃Eh明显高于饲喂非谷物饲粮的奶牛,饲粮组成的不同引起瘤胃古菌群落组成发生改变,而瘤胃古菌群落组成变化是以Eh的变化为基础,其中以运动甲烷微菌(Methanomicrobium mobile)为代表的甲烷微菌属受到瘤胃Eh的特异性影响,且当Eh降低时对其生长活动影响最大。

5 Eh对瘤胃发酵的调控

瘤胃中糖酵解以及随后生成VFA所涉及的大多数反应都是氧化还原反应,其中电子转移需要通过NAD+和NADH等辅助因子作为载体,NAD+/NADH值是发酵产物形成的关键控制器[5]。当NAD+/NADH值较低时,则需要产生更多的还原产物来氧化NADH,在产生丁酸盐和丙酸盐时会将糖酵解产生的所有NADH氧化回NAD+;当NAD+/NADH值较高时,瘤胃中的糖酵解就会被下调[5],生成VFA的比例会有所改变。瘤胃Eh与总挥发性脂肪酸产生量和乙酸盐比例呈负相关,与丙酸盐比例呈正相关[10],较负的瘤胃Eh环境更有利于丙酸的产生。反刍动物瘤胃对营养物质代谢的核心是代谢氢的生成和利用[2],因此氢气是瘤胃碳水化合物代谢的标志性产物[40]。更负的Eh有利于氢气的产生[40]和NDF消化率的提高[10],这可能是由于纤维素降解菌[如黄色瘤胃球菌(Ruminococcus flavefaciens)和产琥珀酸丝状杆菌(Fibrobacter succinogenes)]降解纤维素产生大量琥珀酸盐,在更负的Eh环境内,即瘤胃环境还原程度更高和NAD+/NADH值更低,琥珀酸盐和氢气更容易产生和被利用。甲烷的生成是最重要的氢处置途径,但是甲烷的生成是能量损失表现形式,也是温室气体重要来源。从理论上讲,可以通过瘤胃Eh调控瘤胃甲烷生成,将氢转移到对动物有营养价值的发酵产物上,从而提高动物的生产率。研究发现,抑制瘤胃甲烷生成会导致氢气积累,NAD+/NADH值降低,即Eh降低[2]。直至如今,抑制甲烷生成所致氢气累积问题并没有找到更好的解决途径。乳酸作为瘤胃发酵的重要中间产物,其可转化为丙酸成为能源物质来源,但大量累积是发生SARA的重要原因。使用饲料添加剂,如酿酒酵母[41]和富马酸[3],能够诱导较低的瘤胃Eh环境,从而增强瘤胃环境的还原能力,提高NDF消化率以及瘤胃总挥发性脂肪酸浓度,其中乙酸和丙酸浓度明显提高,而乳酸浓度明显降低,这促进了乳酸盐向丙酸盐的转化,从而防止乳酸在瘤胃中的累积。

6 小结

氧化还原反应是瘤胃中一种重要的代谢途径和生态系统信息交换方式,通过这种反应,瘤胃微生物之间进行信号交流,并影响瘤胃微生态系统的结构和功能。因此,准确测量和控制瘤胃内的Eh对于理解和优化瘤胃微生物群落的功能和代谢过程具有重要意义。截至目前,有关瘤胃Eh的研究并不全面,如何合理利用瘤胃Eh调控瘤胃蛋白质和脂质等营养素代谢的研究缺乏,系统地对瘤胃Eh进行研究,对全面了解瘤胃微生态以及进一步提高瘤胃对饲粮的降解吸收率具有积极意义。
[1]
HUSSON O. Redox potential (Eh) and pH as drivers of soil/plant/microorganism systems:a transdisciplinary overview pointing to integrative opportunities for agronomy[J]. Plant and Soil, 2013, 362(1):389-417.

[2]
UNGERFELD E M. Metabolic hydrogen flows in rumen fermentation:principles and possibilities of interventions[J]. Frontiers in Microbiology, 2020,11:589.

[3]
FIRKINS J L, MITCHELL K E. Invited review:rumen modifiers in today’s dairy rations[J]. Journal of Dairy Science, 2023, 106(5):3053-3071.

[4]
RIETMANN S J, GÄBEL G, DENGLER F. The intraruminal redox potential is stabilised by opposing influences during fermentation[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(1):53-61.

[5]
LIU C G, XUE C, LIN Y H, et al. Redox potential control and applications in microaerobic and anaerobic fermentations[J]. Biotechnology Advances, 2013, 31(2):257-265.

[6]
VAN LINGEN H J, PLUGGE C M, FADEL J G, et al. Thermodynamic driving force of hydrogen on rumen microbial metabolism:a theoretical investigation[J]. PLoS One, 2016, 11(10):e0161362.

[7]
BUCKEL W, THAUER R K. Energy conservation via electron bifurcating ferredoxin reduction and proton/Na+ translocating ferredoxin oxidation[J]. Biochimica et Biophysica acta, 2013, 1827(2):94-113.

[8]
STAMS A J M, PLUGGE C M. Electron transfer in syntrophic communities of anaerobic bacteria and archaea[J]. Nature Reviews Microbiology, 2009, 7(8):568-577.

DOI PMID

[9]
JANSSEN P H. Influence of hydrogen on rumen methane formation and fermentation balances through microbial growth kinetics and fermentation thermodynamics[J]. Animal Feed Science and Technology, 2010, 160(1/2):1-22.

[10]
HUANG Y, MARDEN J P, JULIEN C, et al. Redox potential:an intrinsic parameter of the rumen environment[J]. Journal of Animal Physiology and Animal Nutrition, 2018, 102(2):393-402.

[11]
WAGHORN G C. Electronegativity and redox potential of rumen digesta in situ in cows eating fresh lucerne[J]. New Zealand Journal of Agricultural Research, 1991, 34(3):359-361.

[12]
BICHTER M, KR͎OVÁ L, TRÍNÁCTY J. The effect of individuality of animal on diurnal pattern of pH and redox potential in the rumen of dry cows[J]. Czech Journal of Animal Science, 2010, 55(10):401-407.

[13]
MANN E, WETZELS S U, WAGNER M, et al. Metatranscriptome sequencing reveals insights into the gene expression and functional potential of rumen wall bacteria[J]. Frontiers in Microbiology, 2018,9:43.

[14]
NA S W, GUAN L L. Understanding the role of rumen epithelial host-microbe interactions in cattle feed efficiency[J]. Animal Nutrition, 2022,10:41-53.

[15]
WETZELS S U, EGER M, BURMESTER M, et al. The application of rumen simulation technique (RUSITEC) for studying dynamics of the bacterial community and metabolome in rumen fluid and the effects of a challenge with Clostridium perfringens[J]. PLoS One, 2018, 13(2):e0192256.

[16]
FRIEDMAN N, SHRIKER E, GOLD B, et al. Diet-induced changes of redox potential underlie compositional shifts in the rumen archaeal community[J]. Environmental Microbiology, 2017, 19(1):174-184.

DOI PMID

[17]
RIVERA M E, NORRIS A B, TEDESCHI L O. The effect of sample handling methodology on ruminal redox potential measured in vivo and in vitro[J]. Journal of Animal Science, 2020, 98(Suppl.2):54.

[18]
REY M, ENJALBERT F, MONTEILS V. Establishment of ruminal enzyme activities and fermentation capacity in dairy calves from birth through weaning[J]. Journal of Dairy Science, 2012, 95(3):1500-1512.

DOI PMID

[19]
JULIEN C, MARDEN J P, AUCLAIR E, et al. Interaction between live yeast and dietary rumen degradable protein level:effects on diet utilization in early-lactating dairy cows[J]. Agricultural Sciences, 2015, 6(1):1-13.

[20]
DIAS BATISTA L F, NORRIS A B, ADAMS J M, et al. Technical note:the comparison of pH and redox potential in different locations in the reticulo-rumen of growing beef steers supplemented with different levels of quebracho extract[J]. Journal of Animal Science, 2021, 99(10):skab260.

[21]
THORSTEINSSON M, MAIGAARD M, LUND P, et al. Effect of fumaric acid in combination with Asparagopsis taxiformis or nitrate on in vitro gas production,pH,and redox potential[J]. JDS Communications, 2023, 4(5):335-339.

[22]
BATISTA L F D, NORRIS A B, ADAMS J, et al. 286 effects of supplementation of quebracho extract supplementation on ruminal pH of growing beef steers[J]. Journal of Animal Science, 2021, 99(Suppl.3):158-159.

[23]
GIGER-REVERDIN S, RIGALMA K, DESNOYERS M, et al. Effect of concentrate level on feeding behavior and rumen and blood parameters in dairy goats:relationships between behavioral and physiological parameters and effect of between-animal variability[J]. Journal of Dairy Science, 2014, 97(7):4367-4378.

[24]
QIN C F, BU D P, SUN P, et al. Effects of corn straw or mixed forage diet on rumen fermentation parameters of lactating cows using a wireless data logger[J]. Animal Science Journal, 2017, 88(2):259-266.

DOI PMID

[25]
DIJKSTRA J, VAN GASTELEN S, DIEHO K, et al. Review:rumen sensors:data and interpretation for key rumen metabolic processes[J]. Animal, 2020, 14(Suppl.1):S176-S186.

[26]
DUFFIELD T, PLAIZIER J C, FAIRFIELD A, et al. Comparison of techniques for measurement of rumen pH in lactating dairy cows[J]. Journal of Dairy Science, 2004, 87(1):59-66.

PMID

[27]
MARDEN J P, BAYOURTHE C, ENJALBERT F, et al. A new device for measuring kinetics of ruminal pH and redox potential in dairy cattle[J]. Journal of Dairy Science, 2005, 88(1):277-281.

PMID

[28]
HENDERSON G, YILMAZ P, KUMAR S, et al. Improved taxonomic assignment of rumen bacterial 16S rRNA sequences using a revised SILVA taxonomic framework[J]. PeerJ, 2019,7:e6496.

[29]
HENDERSON G, COX F, GANESH S, et al. Rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2015,5:14567.

[30]
BRULC J M, ANTONOPOULOS D A, MILLER M E B, et al. Gene-centric metagenomics of the fiber-adherent bovine rumen microbiome reveals forage specific glycoside hydrolases[J]. Proceedings of the National Academy of Sciences of the United States of America, 2009, 106(6):1948-1953.

DOI PMID

[31]
DEUSCH S, CAMARINHA-SILVA A, CONRAD J, et al. A structural and functional elucidation of the rumen microbiome influenced by various diets and microenvironments[J]. Frontiers in Microbiology, 2017,8:1605.

[32]
SANJORJO R A, TSETEN T, KANG M K, et al. In pursuit of understanding the rumen microbiome[J]. Fermentation, 2023, 9(2):114.

[33]
GHARECHAHI J, VAHIDI M F, SHARIFI G, et al. Lignocellulose degradation by rumen bacterial communities:new insights from metagenome analyses[J]. Environmental Research, 2023,229:115925.

[34]
ZAPLETALOVÁ M, KAŠPAROVSKÁ J, KR͎OVÁ L, et al. Bacterial community dynamics in a rumen fluid bioreactor during in-vitro cultivation[J]. Journal of Biotechnology, 2016,234:43-49.

[35]
CABRAL L D S, WEIMER P J. Megasphaera elsdenii:its role in ruminant nutrition and its potential industrial application for organic acid biosynthesis[J]. Microorganisms, 2024, 12(1):219.

[36]
MAROUNEK M, WALLACE R J. Influence of culture Eh on the growth and metabolism of the rumen bacteria Selenomonas ruminantium,Bacteroides amylophilus,Bacteroides succinogenes and Streptococcus bovis in batch culture[J]. Microbiology, 1984, 130(2):223-229.

[37]
PATRA A, PARK T, KIM M, et al. Rumen methanogens and mitigation of methane emission by anti-methanogenic compounds and substances[J]. Journal of Animal Science and Biotechnology, 2017,8:13.

[38]
MIZRAHI I, JAMI E. Review:the compositional variation of the rumen microbiome and its effect on host performance and methane emission[J]. Animal, 2018, 12(Suppl.2):S220-S232.

[39]
KHAIRUNISA B H, HERYAKUSUMA C, IKE K, et al. Evolving understanding of rumen methanogen ecophysiology[J]. Frontiers in Microbiology, 2023,14:1296008.

[40]
KELLY W J, MACKIE R I, ATTWOOD G T, et al. Hydrogen and formate production and utilisation in the rumen and the human colon[J]. Animal Microbiome, 2022, 4(1):22.

DOI PMID

[41]
MARDEN J P, JULIEN C, MONTEILS V, et al. How does live yeast differ from sodium bicarbonate to stabilize ruminal pH in high-yielding dairy cows?[J]. Journal of Dairy Science, 2008, 91(9):3528-3535.

DOI PMID

Outlines

/