RESEARCH PAPER

Nutritional Regulation of Apis mellifera ligustica Spinola Royal Jelly on Morphology and Ovarian Proteome of Apis cerana cerana Queens

  • HUANG Zhichu , 1 ,
  • ZHAO Dongxu 1 ,
  • CHEN Daoyin 1 ,
  • LUO Guhui 1 ,
  • HUA Qiyun 1 ,
  • ZHENG Huoqing 2 ,
  • SU Xiaoling , 1, *
Expand
  • 1 Jinhua Academy of Agricultural Sciences, Jinhua 321017, China
  • 2 College of Animal Science, Zhejiang University, Hangzhou 310058, China
*senior livestock specialist, E-mail:

Received date: 2024-04-12

  Online published: 2024-10-14

Abstract

This study aims to investigate the impact of Apis mellifera ligustica Spinola royal jelly on the newborn morphology and ovarian protein expression difference of Apis cerana cerana queens. Apis mellifera ligustica Spinola workers were induced to secrete royal jelly for 0 (control), 12, 24, 36 and 48 h before grafting Apis cerana cerana larvae into queen cells. Subsequently, measurements were taken for emergency weight and 15 morphological indicators, and ovarian proteomics analysis was conducted on newly emerged Apis cerana cerana queens at 24 and 48 h. The results indicate that as the secretion time of Apis mellifera ligustica Spinola workers increased, both royal jelly weight and queen cell height showed a significant linear increase (P<0.05); however, the emergence rate of Apis cerana cerana queens decreased: those reared with 36-hour Apis mellifera ligustica Spinola royal jelly demonstrated a higher emergence rate than the control group (52.50%), which then dropped to 36.70% after 48 h. Moreover, the emergence weight of the Apis cerana cerana queens exhibited an upward trend as the secretion time of Apis mellifera ligustica Spinola workers increased, registering 188.42 mg at 24 h and increasing to 192.42 mg at 48 h; the Apis cerana cerana queens’ forewing length, forewing width, longitudinal diameter of tergites 3, 4 and 5, head length, and head width were significantly increased (P<0.05), while the tibia length and femur length were significantly decreased compared with control group (P<0.05). Proteomic analysis revealed 31 and 20 differential expressed proteins in the ovarian proteome of Apis cerana cerana queens under 24 and 48 h royal jelly secreted by Apis mellifera ligustica Spinola, respectively. Moreover, GO and KEGG analysis demonstrated that these differential expressed proteins were primarily enriched in processes related to carbohydrate metabolism, ion transport, unsaturated fatty acid metabolism, and other active pathways. This research revealed that Apis mellifera ligustica Spinola royal jelly has the potential effect of promoting the increase of emergence weight of Apis cerana cerana queens, optimizing their initial morphological development, and stimulating the higher activity of ovarian proteome, which provides important theoretical support and reference for Apis mellifera ligustica Spinola royal jelly in nutritional regulating the development of Apis cerana cerana queens.

Cite this article

HUANG Zhichu , ZHAO Dongxu , CHEN Daoyin , LUO Guhui , HUA Qiyun , ZHENG Huoqing , SU Xiaoling . Nutritional Regulation of Apis mellifera ligustica Spinola Royal Jelly on Morphology and Ovarian Proteome of Apis cerana cerana Queens[J]. Chinese Journal of Animal Nutrition, 2024 , 36(10) : 6685 -6699 . DOI: 10.12418/CJAN2024.569

在世界公认的蜜蜂属九大蜂种中,仅有东方蜜蜂(Apis cerana)和西方蜜蜂(Apis mellifera)被商业饲养用于作物授粉和蜂产品生产[1]。中华蜜蜂(Apis cerana cerana,简称中蜂)是东方蜜蜂的指名亚种,中蜂在中国境内广泛分布,有较强的适应性和抗逆性,嗅觉灵敏,善于利用零星蜜源[2],能够根据蜜粉源变化调整产卵和育虫数量,易于饲养管理[3]。但相较于西方蜜蜂的亚种意大利蜜蜂(Apis mellifera ligustica Spinola,简称意蜂),中蜂的采集力、蜂王浆产量和蜂王日产卵量都相对不足[4],且中蜂分蜂性强,难以维持强群饲养,在养殖过程中需定期更换新王或新脾维持其生产性能。意蜂能维持强群而不易闹分蜂,抗巢虫能力和学习记忆力也强于中蜂[5-6]。如果意蜂的优良特性能够引入中蜂,将大幅度提高饲养中蜂的经济效益。然而,由于中、意蜂之间存在生殖隔离[7],传统的生殖杂交方法难以将两者特性结合,在生产实践中有时会借助借浆育王技术加强中蜂的良种选育效果。
借浆育王是指在蜜蜂个体或全体的生长期内,通过天然换脾或人工饲喂蜂王浆等技术,将甲蜂种的蜂王浆饲喂给乙蜂种幼虫后,培育具有甲蜂种的特性的乙蜂种蜂王[8-9]。现已证明,蜂王浆是蜜蜂受精卵级型分化方向时期的关键食物[10],对蜜蜂级型分化的影响涵盖营养、激素调控、基因表达、蛋白质合成以及表观遗传等多个方面[11]。蜂王浆中除蛋白质、脂质等常规物质外,还含有核酸,且RNA含量比DNA丰富,幼虫持续摄取蜂王浆,编码和非编码RNA、DNA甲基化及miRNA等因素共同介导获得性性状[12-13],并通过RNA干涉(RNAi)进行调控,幼虫经历表观遗传变化,最终发育为具备生育能力的蜂王[14]。中、意蜂间蜂王浆中的DNA具有多态性,且哺育蜂的分泌物中所含的miRNA能在不同物种间调控基因表达[15],这为蜜蜂借浆育王提供了坚实的理论基础。近年来,研究人员对借浆育王的蜂种形态变化、生产性能、抗病性和分子机制等方面进行了系统研究。研究发现,意蜂蜂王浆培育的中蜂腹部出现了意蜂特征性的2~3条浅黄环,工蜂吻长、工蜂右前翅长和宽、工蜂背板长度等对蜂群产蜜量有直接影响的指标均发生了显著变化,且这些变化有利于中蜂蜂群产蜜量的提高[16];借浆育王的意蜂子代工蜂随培育代数的增加在吻长、右前翅长宽和肘脉指数等形态指标向中蜂性状靠拢[17];借浆育王蜂王与纯中蜂蜂王相比,在初生重、蜂王产卵量和卵小管数量等方面均有显著提升[18]。但借浆育王过程中,异种蜂王浆的数量未见研究,异种蜂王浆数量对育王效果的影响也不得而知,因此,针对这一问题,本研究将探讨利用意蜂吐浆不同时间王台育王对中蜂蜂王出房率、初生重和形态指标的影响,并利用蛋白质组学技术进一步分析意蜂吐浆不同时间培育的中蜂蜂王卵巢组织蛋白表达的差异,为蜂王卵巢发育调控机制的研究提供理论数据。

1 材料与方法

1.1 试验蜂群

本研究所用中蜂蜂群和意蜂蜂群均饲养于金华市农业科学研究院试验蜂场。中蜂蜂群群势在试验前调整为4足框,在育王移入中蜂幼虫前1天将蜂王关入王笼后,放入其他蜂群保存;意蜂为浙江浆蜂品种,蜂群群势在8足框以上。

1.2 蜂王培育

向中蜂塑料王台杯(直径=8.5 mm,高度=11.0 mm)中移入意蜂1日龄幼虫,放入意蜂蜂群让工蜂吐浆48、36、24和12 h后,将王台内的意蜂幼虫取出,获得意蜂工蜂吐浆48、36、24和12 h的王台杯,分别对应为T48、T36、T24和T12组,以意蜂不吐浆(0 h)的王台杯对应为对照组(CK组),然后参照常规人工育王方法[19],统一移入中蜂1日龄幼虫,放入中蜂蜂群进行育王,每群20个王台。蜂王出房前24 h将育王框从蜂箱移入培养箱(温度34 ℃,相对湿度65%),使用王台保护罩将王台进行隔离和收样,蜂王出房后立即记录初生重和王台高度指标,然后将蜂王样本置于无水乙醇中-20 ℃条件保存,待所有蜂王出房完毕后统计出房率。

1.3 蜂王解剖与形态指标测定

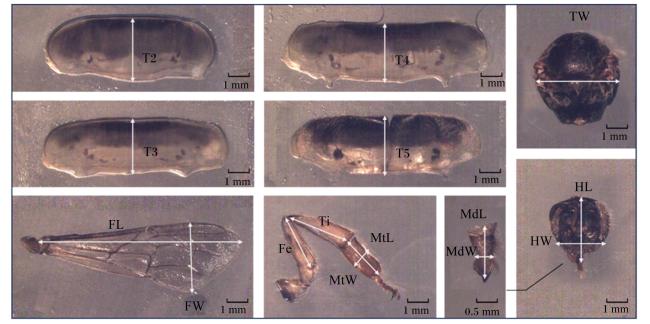
参照蜜蜂外部形态特征的标准鉴定方法[20-21],应用体视显微镜(Motic K400)和Digimizer软件测定蜂王的前翅长(forewing length,FL)、前翅宽(fore wing width,FW)、跗节长(metatarsus length,MtL)、跗节宽(metatarsus width,MtW)、胫节长(tibia length,Ti)、股节长(femur length,Fe)、背板2宽(longitudinal diameter of tergite 2,T2)、背板3宽(longitudinal diameter of tergite 3,T3)、背板4宽(longitudinal diameter of tergite 4,T4)、背板5宽(longitudinal diameter of tergite 5,T5)、胸宽(thorax width,TW)、头长(head length,HL)、头宽(head width,HW)、上颚长(mandible length,MdL)、上颚宽(mandible width,MdW)等15个与蜂王生长发育相关的形态指标(图1)。
图1 中蜂蜂王形态指标测定

T2:背板2宽 longitudinal diameter of tergite 2;T3:背板3宽 longitudinal diameter of tergite 3;T4:背板4宽 longitudinal diameter of tergite 4;T5:背板5宽 longitudinal diameter of tergite 5;TW:胸宽 thorax width;FL:前翅长 forewing length;FW:前翅宽 forewing width;MtL:跗节长 metatarsus length;MtW:跗节宽 metatarsus width;Ti:胫节长 tibia length;Fe:股节长 femur length;HL:头长 head length;HW:头宽 head width;MdL:上颚长 mandible length;MdW:上颚宽 mandible width。

Fig.1 Measurement of Apis cerana cerana queen morphological indicators

1.4 串联质谱标签(tandem mass tag,TMT)定量蛋白质组学分析

选取CK、T24和T48组的12只蜂王,取其双侧卵巢组织,将各组12只蜂王卵巢样本随机分为3份,每份中的4只蜂王卵巢混合样本作为1个重复,每组3个重复,用于后续蛋白质组测序及相关分析。蛋白质提取、定量、检测、酶切与除盐、标记、修饰肽段富集、馏分分离和质谱检测由北京诺禾致源公司检测完成。
基于质谱检测得到的Raw文件,搜索西方蜜蜂蛋白质组数据库,对蛋白进行鉴定,并评估数据质量;挑出需要比较的样品对,将每个蛋白在比较样品对中的所有生物重复定量值的均值的比值作为差异倍数(fold change,FC)。将每个蛋白在2个比较对样品中的相对定量值进行t-检验(t-test),以P≤0.05作为显著性标准。本研究中选择当FC>1.20且P≤0.05时,筛选为上调表达蛋白,当FC<0.83且P≤0.05时,筛选为下调表达蛋白。
使用GO(Gene Ontology)和KEGG(Kyoto Encyclopedia of Genes and Genomes)数据库对鉴定到的差异表达蛋白进行常见功能数据库注释,GO富集分析通过GOseq软件进行,KEGG富集分析通过KOBAS软件进行。蛋白的定量分析包括总体差异分析和差异表达蛋白的筛选及聚类分析,对筛选出的差异表达蛋白进行功能富集分析和互作网络分析,确定差异表达蛋白参与的主要生化代谢途径。

1.5 数据分析

用Excel 2016和SPSS 26.0统计软件对试验所得的数据结果进行统计分析,用箱线图四分位检测并剔除数据异常值,应用最小二乘估计法拟合线性回归方程,采用单因素方差分析(one-way ANOVA)和Tukey检验的多重比较法进行差异显著性检验,P<0.05表示差异显著。

2 结果与分析

2.1 意蜂吐浆时间对中蜂王台出房率和蜂王初生重的影响

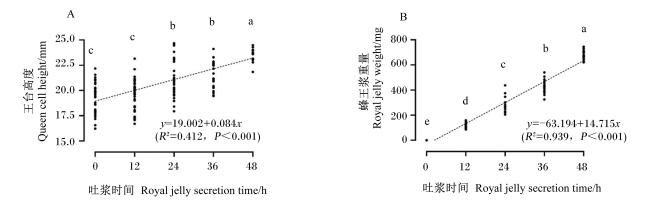
图2可知,王台高度和王台内蜂王浆重量均随意蜂吐浆时间的延长呈显著的线性增加(P<0.05),意蜂吐浆0、12、24、36和48 h时王台平均高度分别为19.33、19.67、21.07、21.68、23.66 mm(图2-A),王台内蜂王浆平均重量分别为115.70、282.20、426.69、678.11 mg(图2-B)。
图2 意蜂吐浆时间对王台高度(A)和蜂王浆重量(B)的影响

图中小写字母为不同吐浆时间的王台高度(A)或蜂王浆重量(B)的多重比较结果,标注相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Fig.2 Effects of royal jelly secretion time of Apis mellifera ligustica Spinola on queen cell height (A) and royal jelly weight (B)

In the figure, lowercase letters are the multiple comparison results of queen cell height (A) or royal jelly weight (B) at different royal jelly secretion time. The same lowercase letters indicate no significant difference (P>0.05), while different lowercase letters indicate significant difference (P<0.05).

蜂王出房率随意蜂吐浆时间的延长而下降,意蜂吐浆12、24和36 h时移虫育王的中蜂蜂王出房率分别为90.00%、82.08%和67.78%,均高于CK组的52.50%,而意蜂吐浆48 h时移虫育王的中蜂蜂王出房率降至36.70%(表1)。中蜂蜂王初生重随着意蜂吐浆时间的延长而上升,意蜂吐浆12、24和36 h时移虫育王的中蜂蜂王初生重与CK组差异不显著(P>0.05),而意蜂吐浆48 h时移虫育王的中蜂蜂王初生重显著高于CK组(P<0.05)(表1)。
表1 意蜂吐浆时间对中蜂蜂王出房率和初生重的影响

Table 1 Effects of royal jelly secretion time of Apis mellifera ligustica Spinola on emergence rate and emergence weight of Apis cerana cerana queens

吐浆时间(组别)
Royal jelly secretion time (groups)/h
出房率
Emergence rate/%
初生重
Emergence weight/mg
0(CK,n=33) 52.50 180.68±2.12b
12(T12,n=35) 90.00 184.37±2.96ab
24(T24,n=35) 82.08 188.42±2.79ab
36(T36,n=27) 67.78 189.28±2.02ab
48(T48,n=15) 36.70 192.42±2.83a

表中初生重数据为平均值±标准误;同列数据后标注不同小写字母表示差异显著(P<0.05,Turkey检验)。表2同。

Emergence weight data in the table are mean±SE. Different lowercase letters after data of the same column indicate significant difference (P<0.05,Turkey test). The same as Table 2.

2.2 意蜂吐浆时间对初生中蜂蜂王形态指标的影响

表2可知,除意蜂吐浆12 h时移虫培育的初生中蜂蜂王胫节长显著增加(P<0.05),吐浆24 h时胸宽显著增加(P<0.05)外,意蜂吐浆24 h内初生中蜂蜂王其他形态指标均与CK组没有显著差异(P>0.05);意蜂吐浆36 h时,移虫培育的初生中蜂蜂王前翅长与CK组相比显著增加(P<0.05),其他形态指标与CK组没有显著差异(P>0.05);意蜂吐浆48 h时,移虫培育的初生中蜂蜂王前翅长、前翅宽、背板3宽、背板4宽、背板5宽、头长、头宽相较CK组显著增加(P<0.05),而胫节长、股节长则显著减少(P<0.05)。
表2 意蜂吐浆时间对初生中蜂蜂王形态指标的影响

Table 2 Effects of royal jelly secretion time of Apis mellifera ligustica Spinola on morphological indexes of newly emerged Apis cerana cerana queensmm

组别
Groups
前翅 Forewing 后足 Leg 胸部
Thorax
背板 Tergite 头部 Head
前翅长
FL
前翅宽
FW
跗节长
MtL
跗节宽
MtW
胫节长
Ti
股节长
Fe
胸宽
TW
背板2宽
T2
背板3宽
T3
背板4宽
T4
背板5宽
T5
头长
HL
头宽
HW
上颚长
MdL
上颚宽
MdW
CK
(n=33)
9.495
±0.039c
3.257
±0.025bc
2.114
±0.015a
1.059
±0.011ab
3.544
±0.025a
3.017
±0.010a
3.972
±0.034b
3.102
±0.030ab
2.770
±0.024b
2.661
±0.030b
2.522
±0.047b
3.260
±0.041bc
2.724
±0.028bc
1.144
±0.011a
0.392
±0.005a
T12
(n=35)
9.500
±0.032c
3.234
±0.020c
2.103
±0.013a
1.067
±0.014ab
3.432
±0.018bc
3.007
±0.017ab
3.989
±0.018b
3.025
±0.020b
2.788
±0.016b
2.638
±0.022b
2.479
±0.021b
3.143
±0.031c
2.728
±0.020bc
1.174
±0.011a
0.406
±0.001a
T24
(n=35)
9.565
±0.027bc
3.251
±0.016bc
2.105
±0.013a
1.082
±0.013a
3.505
±0.024ab
3.009
±0.014ab
4.110
±0.026a
3.171
±0.035a
2.842
±0.024ab
2.733
±0.023ab
2.576
±0.028ab
3.267
±0.044bc
2.643
±0.029c
1.183
±0.011a
0.398
±0.004a
T36
(n=27)
9.660
±0.038b
3.324
±0.020b
2.105
±0.019a
1.017
±0.010b
3.507
±0.023ab
3.005
±0.01ab
4.036
±0.022ab
3.104
±0.027ab
2.855
±0.027ab
2.704
±0.022b
2.540
±0.030b
3.324
±0.041ab
2.768
±0.027b
1.179
±0.011a
0.390
±0.005a
T48
(n=15)
9.841
±0.038a
3.400
±0.020a
2.115
±0.016a
1.079
±0.009a
3.407
±0.027c
2.955
±0.023b
4.031
±0.029ab
3.173
±0.036a
2.930
±0.036a
2.813
±0.036a
2.674
±0.036a
3.431
±0.029a
3.014
±0.038a
1.148
±0.018a
0.396
±0.011a

2.3 意蜂吐浆时间(0、24和48 h)对中蜂蜂王卵巢蛋白质组的影响

与CK组相比,T24组的中蜂蜂王卵巢蛋白质组中共筛选出31个差异表达蛋白(表3),T48组的中蜂蜂王卵巢蛋白质组中共筛选出20个差异表达蛋白(表4)。
表3 T24组与CK组中蜂蜂王卵巢中的差异表达蛋白

Table 3 Differential expressed proteins in ovarian of Apis cerana cerana queens between T24 and CK groups

蛋白登录号
Protein accession No.
描述
Description
差异倍数
Fold change
P
P-value
A0A7M7R8K3 氯通道蛋白 Chloride channel protein 1.551 0.023 4
Q9U8X5 α-淀粉酶 Alpha-amylase 1.440 0.011 0
A0A7M7GYK2 受体型酪氨酸蛋白磷酸酶N2亚型X1 Receptor-type tyrosine-protein phosphatase N2 isoform X1 1.363 0.006 4
A0A7M7GWD2 嘌呤核苷磷酸化酶 Purine nucleoside phosphorylase 1.345 0.014 8
A0A7M7MP16 跨膜蛋白酶丝氨酸9-样 Transmembrane protease serine 9-like 1.292 0.005 9
A0A7M7KZ02 雌激素磺基转移酶 Estrogen sulfotransferase 1.289 0.006 9
A0A7M7IFH5 微管相关蛋白 Microtubule-associated protein Jupiter 1.282 0.020 1
A0A7M7MW17 未鉴定蛋白LOC100577753 Uncharacterized protein LOC100577753 1.277 0.000 9
A0A7M7IG60 α-N-乙酰葡糖苷酶异构体X1 Alpha-N-acetylglucosaminidase isoform X1 1.247 0.010 6
A0A7M7GWM1 DnaJ同源亚家族C成员22 DnaJ homolog subfamily C member 22 1.241 0.007 1
A0A7M7IG78 鼻腔耐药氟西汀蛋白6亚型X2 Nose resistant to fluoxetine protein 6 isoform X2 1.223 0.000 3
A0A7M7MKM0 UDP-葡萄糖醛酸基转移酶1-3 UDP-glucuronosyltransferase 1-3 1.220 0.027 9
A0A7M7R794 脱氢酶/还原酶SDR家族成员7 Dehydrogenase/reductase SDR family member 7 1.212 0.019 6
A0A7M7R6N0 钠/钾转运ATP酶亚基β-2 Sodium/potassium-transporting ATPase subunit beta-2 1.211 0.035 5
A0A7M7FZI2 α-生育酚转移蛋白亚型X1 Alpha-tocopherol transfer protein isoform X1 1.210 0.003 3
A0A7M7SP02 氨基肽酶-2(推测)aminopeptidase-2 (putative) 1.209 0.006 3
A0A7M7RA00 戊烯基半胱氨酸氧化酶1 Prenylcysteine oxidase 1 1.206 0.002 3
A0A7M7R4N2 脑啡肽酶-2亚型X1 Neprilysin-2 isoform X1 1.200 0.000 5
A0A7M7H0D3 IWS1样蛋白X2亚型 IWS1-like protein isoform X2 0.831 0.027 6
A0A7M7RAN7 保守的寡聚高尔基复合体亚基2 Conserved oligomeric Golgi complex subunit 2 0.829 0.022 9
A0A7M7MKX8 氧固醇结合蛋白1异构体X5 Oxysterol-binding protein 1 isoform X5 0.823 0.004 2
B0LUE8 载脂蛋白-Ⅲ样蛋白 Apolipophorin-Ⅲ-like protein 0.806 0.015 2
A0A7M7IES9 核糖核酸酶3 Ribonuclease 3 0.804 0.005 9
A0A7M7R6T9 线粒体2-氧代异戊酸脱氢酶亚单位 2-oxoisovalerate dehydrogenase subunit beta, mitochondrial 0.801 0.027 0
A0A7M7II73 四个半LIM结构域蛋白2亚型X14 Four and a half LIM domains protein 2 isoform X14 0.796 0.011 5
A0A088AF37 钙调素样蛋白4 Calmodulin-like protein 4 0.790 0.036 9
A0A7M7LN74 Notch同源物2 N末端样蛋白 Notch homolog 2 N-terminal-like protein 0.762 0.043 4
A0A7M7IEL2 泛素结合酶E2 J1亚型X1 Ubiquitin-conjugating enzyme E2 J1 isoform X1 0.736 0.011 8
A0A7M7MNK1 未鉴定蛋白LOC100576902 Uncharacterized protein LOC100576902 0.704 0.000 7
G5D4E1 卵黄蛋白原(片段) Vitellogenin (fragment) 0.593 0.045 7
G5D319 卵黄蛋白原(片段) Vitellogenin (fragment) 0.589 0.006 4
表4 T48组与CK组中蜂蜂王卵巢中的差异表达蛋白

Table 4 Differential expressed proteins in ovarian of Apis cerana cerana queens between T48 and CK groups

蛋白登录号
Protein accession No.
描述
Description
差异倍数
Fold change
P
P-value
A0A7M7GYK2 受体型酪氨酸蛋白磷酸酶N2亚型X1 Receptor-type tyrosine-protein phosphatase N2 isoform X1 1.361 0.014 8
A0A7M7MKX4 丙酮酸脱氢酶磷酸酶调节亚单位,线粒体 Pyruvate dehydrogenase phosphatase regulatory subunit, mitochondrial 1.339 0.039 4
Q9U8X5 α-淀粉酶 Alpha-amylase 1.290 0.019 4
A0A7M7IFH5 微管相关蛋白 Microtubule-associated protein jupiter 1.273 0.010 7
A0A7M7MW17 未鉴定蛋白loc100577753 Uncharacterized protein loc100577753 1.253 0.031 7
A0A7M7L667 酰基辅酶A德尔塔(11)去饱和酶 Acyl-CoA delta(11) desaturase 1.245 0.037 9
A0A7M7R6U8 核孔素nup37 Nucleoporin nup37 1.238 0.000 9
A0A7M7GWD2 嘌呤核苷磷酸化酶 Purine nucleoside phosphorylase 1.235 0.025 6
A0A7M7LK33 氧化嘌呤核苷三磷酸水解酶 Oxidized purine nucleoside triphosphate hydrolase 1.231 0.002 4
A0A7M7GJ95 几丁质酶-3样蛋白1 Chitinase-3-like protein 1 1.229 0.025 5
A0A7M7KZ02 雌激素磺基转移酶 Estrogen sulfotransferase 1.212 0.023 5
A0A7M7FYC0 辅酶q结合蛋白coq10同源物b,线粒体 Coenzyme q-binding protein coq10 homolog b, mitochondrial 1.203 0.015 5
A0A7M7MPB1 前列腺素e合成酶2 Prostaglandin e synthase 2 1.202 0.017 1
A0A7M7L965 Ral gtp酶激活蛋白亚基α-1亚基x5 Ral gtpase-activating protein subunit alpha-1 isoform x5 0.822 0.016 4
A0A7M7MW68 Nesprin-1亚型x5 Nesprin-1 isoform x5 0.818 0.039 8
A0A7M7MT97 陨石素x1亚型 Meteorin isoform x1 0.818 0.030 7
A0A7M7MNK1 未鉴定蛋白 loc100576902 Uncharacterized protein loc100576902 0.790 0.016 2
A0A7M7G9T8 Calexcitin-2 0.787 0.009 0
A0A7M7FYQ7 Pl2蛋白 Protein lethal(2) essential for life 0.764 0.019 5
A0A7M7R5I8 激动素样蛋白 Kinesin-like protein 0.711 0.031 5

2.4 意蜂吐浆0、24和48 h的王台培育的中蜂蜂王卵巢蛋白质组中差异表达蛋白的表达水平聚类
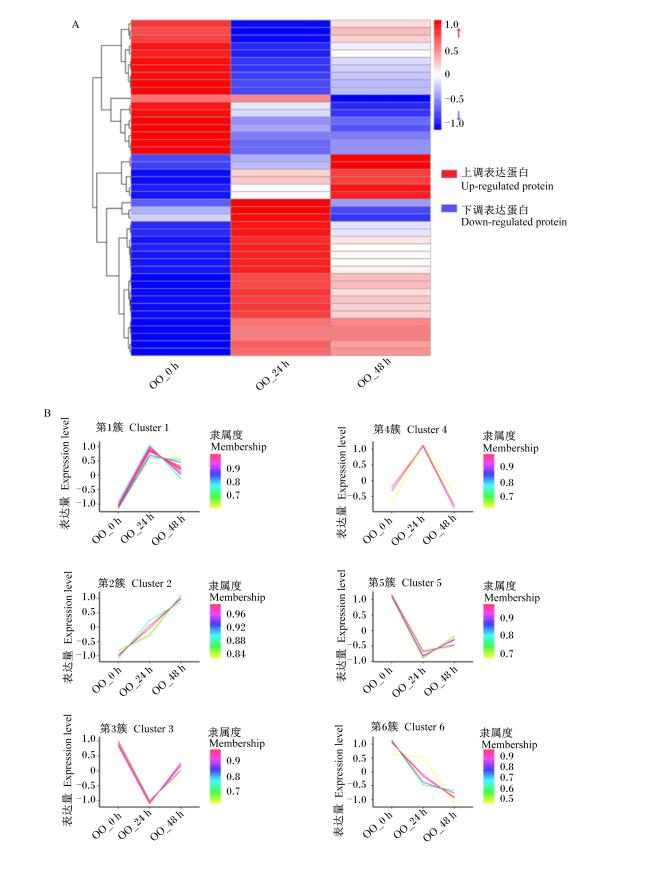
蛋白表达水平聚类分析用于判断不同试验条件下蛋白表达水平的相关性。图3-A展示了在3个比较组(CK组、T24组和T48组)中一共有45个差异表达蛋白,根据差异表达蛋白的表达趋势聚类成6簇(cluster)(图3-B),其中包括α-淀粉酶、α-N-乙酰基葡糖苷酶异构体X1在内的18个差异表达蛋白都聚类在第1簇(cluster 1),表达趋势表现为在24 h吐浆时最高,48 h吐浆时下降,但仍较CK组高。
图3 意蜂吐浆0、24和48 h时的王台培育的中蜂蜂王卵巢蛋白质组中差异表达蛋白的表达水平聚类(A)和C-means聚类(B)

OO_0 h:吐浆0 h(CK组);OO_24 h:吐浆24 h(T24组);OO_48 h:吐浆48 h(T48组)。

Fig.3 Expression level clustering (A) and C-means clustering (B) of differential expressed proteins in ovarian proteome of Apis cerana cerana queens under 0, 24 and 48 h royal jelly secreted by Apis mellifera ligustica Spinola

OO_0 h: royal jelly secretion for 0 hour (CK group); OO_24 h: royal jelly secretion for 24 hours (T24 group); OO_48 h: royal jelly secretion for 48 hours (T48 group).

2.5 差异表达蛋白注释

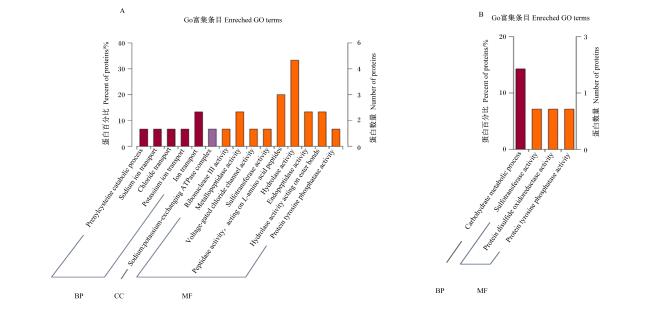
将CK组与吐浆24 h的T24组样本之间的差异表达蛋白进行GO注释分析,一共富集了43个功能类别,显著的功能分类有15个,包括5个生物过程(biological process,BP)、1个细胞组分(cell component,CC)和9个分子功能(molecular function,MF)(图4-A)。BP主要富集在离子运输(ion transport,GO:0006811)、钾离子传输(potassium ion transport,GO:0006813)和钠离子输运(sodium ion transport,GO:0006814)等;CC主要富集在钠:钾交换ATP酶复合物(sodium-potassium-exchanging ATPase complex,GO:0005890)等;MF主要富集在水解酶活性(hydrolase activity,GO:0016787)、作用于L-氨基酸肽的肽酶活性(peptidase activity, acting on L-amino acid peptides,GO:0070011)和作用于酯键的水解酶活性(hydrolase activity, acting on ester bonds,GO:0016788)等。
图4 意蜂吐浆24(A)和48 h(B)时中蜂蜂王卵巢蛋白质组中差异表达蛋白的GO功能注释

BP:生物过程 biological process;CC:细胞组分 cell component;MF:分子功能 molecular function;ion transport:离子输运;prenylcysteine catabolic process:戊烯基半胱氨酸分解代谢过程;sodium ion transport:钠离子输运;chloride transport:氯化物运输;potassium ion transport:钾离子传输;sodium:potassium-exchanging ATPase complex:钠:钾交换ATP酶复合物;ribonuclease III activity:核糖核酸酶III活性;metallopeptidase activity:金属肽酶活性;voltage-gated chloride channel activity:电压门控氯通道活性;sulfotransferase activity:磺基转移酶活性;peptidase activity,acting on L-amino acid peptides:肽酶活性,作用于L-氨基酸肽;hydrolase activity:水解酶活性;endopeptidase activity:内肽酶活性:hydrolase activity,acting on ester bonds 水解酶活性,作用于酯键;protein tyrosine phosphatase activity:蛋白质酪氨酸磷酸酶活性;sulfotransferase activity:磺基转移酶活性;protein disulfide oxidoreductase activity:蛋白质二硫化物氧化还原酶活性;protein tyrosine phosphatase activity:蛋白质酪氨酸磷酸酶活性;carbohydrate metabolic process:碳水化合物代谢过程。

Fig.4 GO function annotation of differential expressed proteins in ovarian proteome of Apis cerana cerana queens under 24 (A) and 48 h (B) royal jelly secreted by Apis mellifera ligustica Spinola

将CK组与吐浆48 h的T48组样本之间的差异表达蛋白进行GO注释分析,一共富集了28个功能类别,显著的功能分类有4个,包括1个BP和3个MF(图4-B)。BP主要富集在碳水化合物代谢过程(carbohydrate metabolic process,GO:0005975)等;MF主要富集在磺基转移酶活性(sulfotransferase activity,GO:0008146)、蛋白质二硫化物氧化还原酶活性(protein disulfide oxidoreductase activity,GO:0015035)和蛋白质酪氨酸磷酸酶活性(protein tyrosine phosphatase activity,GO:0004725)等。
GO富集分析结果表明,吐浆24 h的T24组的差异表达蛋白主要富集在离子运输、水解酶活性上,吐浆48 h的T48组的差异表达蛋白则主要富集在碳水化合物代谢和多种酶活分子功能上。
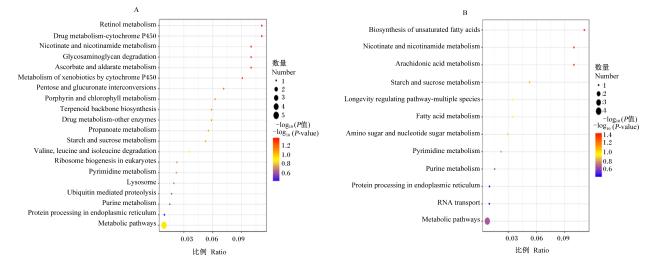
KEGG通路富集以P<0.05作为显著性富集的阈值,吐浆24 h的T24组的差异表达蛋白注释到了5条信号通路(图5-A),这些通路分别是视黄醇代谢(retinol metabolism,map00830)、药物代谢-细胞色素P450(drug metabolism-cytochrome P450,map00982)、抗坏血酸和阿糖二酸代谢(ascorbate and aldarate metabolism,map00053)、糖胺聚糖降解(glycosaminoglycan degradation,map00531)以及烟酸和烟酰胺代谢(nicotinate and nicotinamide metabolism);吐浆48 h的T48组的差异表达蛋白注释到了3条信号通路(图5-B),分别是不饱和脂肪酸的生物合成(biosynthesis of unsaturated fatty acids,map01040)、花生四烯酸代谢(arachidonic acid metabolism,map00590)以及烟酸和烟酰胺代谢(nicotinate and nicotinamide metabolism,map00760)等。
图5 意蜂吐浆24(A)和48 h(B)时中蜂蜂王卵巢蛋白质组中差异表达蛋白的KEGG通路注释

Retinol metabolism:视黄醇代谢;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;Ascorbate and aldarate metabolism:抗坏血酸和阿糖二酸代谢;Glycosaminoglycan degradation:糖胺聚糖降解;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源性物质的代谢;Pentose and glucuronate interconversions:戊糖和葡萄糖醛酸相互转化;Porphyrin and chlorophyll metabolism:卟啉与叶绿素代谢;Terpenoid backbone biosynthesis:萜类骨架生物合成;Drug metabolism-other enzymes:药物代谢-其他酶;Propanoate metabolism:丙酸代谢;Starch and sucrose metabolism:淀粉和蔗糖代谢;Metabolic pathways:代谢途径;Valine, leucine and isoleucine degradation:缬氨酸、亮氨酸和异亮氨酸降解;Ribosome biogenesis in eukaryotes:真核生物核糖体的生物发生;Pyrimidine metabolism:嘧啶代谢;Lysosome:溶酶体;Ubiquitin mediated proteolysis:泛素介导的蛋白水解;Purine metabolism:嘌呤代谢;Protein processing in endoplasmic reticulum:内质网中的蛋白质加工;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Arachidonic acid metabolism:花生四烯酸代谢;Nicotinate and nicotinamide metabolism:烟酸和烟酰胺代谢;Starch and sucrose metabolism:淀粉和蔗糖代谢;Fatty acid metabolism:脂肪酸代谢;Longevity regulating pathway-multiple species:长寿调节途径-多种;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢;Pyrimidine metabolism:嘧啶代谢;Metabolic pathways:代谢途径;Purine metabolism:嘌呤代谢;Protein processing in endoplasmic reticulum:内质网中的蛋白质加工;RNA transport:RNA转运。

Fig.5 KEGG pathway annotation in ovarian proteome of Apis cerana cerana queens under 24 (A) and 48 h (B) royal jelly secreted by Apis mellifera ligustica Spinola

3 讨论

3.1 意蜂吐浆时间对中蜂王台接受率的影响

蜂群中蜂王和工蜂都是由二倍体受精卵发育而成,二者遗传背景相同,但由于发育过程中得到的食物和发育空间的不同,雌性幼虫逐渐向蜂王和工蜂2个不同级型的方向分化,而蜂王浆是导致蜂王和工蜂级型分化的主要食物因素。前人研究发现,利用意蜂的蜂王浆培育出的中蜂蜂王能够具备意蜂的一些特性而表现出更佳的生产性能[22-23]。本研究发现,随着意蜂吐浆时间的延长,王台杯中蜂王浆的重量逐渐增加,但本试验采用意蜂分泌的新鲜蜂王浆,无法控制蜂王浆的重量,因此,本试验以吐浆时间为量化指标。意蜂吐浆12、24和36 h后移虫培育的中蜂蜂王出房率高于CK组,表明在移虫育王前利用意蜂吐浆一定时间可以提高中蜂对王台的接受率,与复式移虫育王[24-25]的效果类似。但随着意蜂吐浆时间的延长,蜂王出房率逐渐下降,且意蜂吐浆48 h后中蜂蜂王出房率低于CK组,说明意蜂吐浆时间和吐浆量并非越多越好,这可能是工蜂能够识别并清除蜂王浆过量的王台导致的[26-27],而且工蜂能够调节王台高度,以保证蜂王发育具有充足的空间,这也导致了王台高度随着台内蜂王浆重量的增加而增高。

3.2 意蜂吐浆时间对中蜂蜂王形态和初生重的影响

蜂王个体的大小和初生重是评估其品质优劣的重要标志,发育正常的蜂王头部重量几乎一致,其重量差异取决于腹部卵小管数量和发育程度[28]。本研究发现,随着意蜂吐浆时间的延长,蜂王的初生重和形态指标增加,而初生重和体型较大的蜂王具有良好的卵巢发育和较多的卵小管数量[29],能维持更大的蜂群规模[30]。形态指标方面,最为显著的是中蜂蜂王背板宽度明显增加,相较于工蜂,蜂王需要有更大的腹部空间来容纳更大的卵巢、储精囊及发育中的卵巢[31],因而背板越宽,越有利于其腹部的卵子发育。此外,中蜂蜂王的翅形指标也显著增长,由于处女王交尾后不再出巢,在养蜂生产上许多蜂农会给蜂王剪翅以限制其飞行,防止逃蜂或分蜂;但对蜂王自身而言,翅的存在对其交尾婚飞、产卵平衡和胁迫环境生存具有至关重要的作用。蜂王胫节长、股节长等与腿部结构相关的指标则随意蜂吐浆时间的延长而减少,与工蜂相比,蜂王后足花粉刷和花粉栉结构逐渐退化,但这种退化并不意味着功能的丧失,而是为了更好地适应其繁殖产卵的生物学角色[32-33],这种在长期自然选择和环境适应过程中产生的适应性变化,使得蜂群能够在各种环境中生存和繁衍。
初生重和形态指标的改变一方面是由于随着意蜂吐浆时间的延长,王台内蜂王浆的重量和各类营养物质不断增加积累,保证了蜂王在发育期间能够得到充足的营养;另一方面是由于2种蜂王浆在10-羟基-2-癸烯酸(10-hydroxy-2-decenoic acid,10-HDA)含量[34]和蛋白质组成[35]等调控蜂王发育的关键物质上存在差异,意蜂蜂王浆可能发挥了调控蜂王发育的作用,使蜂王朝着意蜂的发育方向发展。综合以上结果,中蜂育王前利用意蜂吐浆一定时间有利于中蜂蜂王生产性能的提升,但仍需进一步开展对蜂群生产性能的评价。

3.3 意蜂吐浆时间对中蜂蜂王卵巢蛋白质组的影响

Chapman等[36]研究发现,初生重及卵巢大小之间存在着因果关系,劣质蜂王表现精子存活率降低,卵巢变小,且卵巢蛋白质组成发生改变。本试验利用蛋白质组学技术进一步分析了意蜂吐浆时间对蜂王卵巢组织中蛋白表达的影响,在蛋白质组数据结果中,我们最先关注到意蜂吐浆后中蜂蜂王卵巢内糖代谢的变化。在吐浆12和24 h的2个组中,意蜂吐浆后蜂王卵巢中α-淀粉酶的活性均显著提高,吐浆24 h王台培育的蜂王卵巢α-N-乙酰基葡糖苷酶异构体X1、UDP-葡萄糖醛酸基转移酶1-3等与糖代谢相关的蛋白表达显著上调,KEGG分析结果显示这些差异表达蛋白显著富集到糖胺聚糖降解通路上;吐浆48 h王台培育的蜂王卵巢差异表达蛋白的GO分析显示主要富集在BP的碳水化合物代谢过程。卵巢内的碳水化合物代谢水平与卵巢发育状态密切相关,碳水化合物的代谢和能量产生以及抗氧化蛋白在级型差异的形成中起重要作用[37],蜂王浆与工蜂浆在组成和含量上都存在显著差异[38],蜂王浆的水分含量低于工蜂浆,糖可能是一个影响级型分化的重要因素。Asencot等[39]发现,1~3日龄的蜂王幼虫的食物中含有12.4%的糖,大约是工蜂浆的4倍,如果在工蜂浆中添加糖可以诱导幼虫向蜂王发育。其次我们关注到意蜂吐浆王台培育的蜂王卵巢组织内更活跃的离子转运行为,尤其是吐浆24 h后,卵巢组织的离子转运活动频繁高于CK组,氯离子通道蛋白、钠/钾转运ATP酶亚基β-2等蛋白表达显著上调,GO分析显示富集到离子运输过程。离子转运在生物体新陈代谢过程中起着重要作用,它参与了ATP合成、信号传导、代谢调节、酸碱平衡等多项生理过程,高离子运输活动反映着细胞代谢活动的活跃进行。同时,金属阳离子也可能参与了组蛋白去乙酰化酶(histone deacetylase,HDAC)活性调节[40],HDAC除了是广泛的抗癌药物靶点,还受到蜂王浆中主要活性成分10-HAD的抑制调控[41-42]。意蜂吐浆培育的中蜂蜂王比CK组享有更多的蜂王浆,它可能通过抑制HDAC活性,影响细胞的代谢活动和基因表达,使其呈现出更活跃的状态。
以上从糖代谢和能量消耗角度解释了意蜂吐浆培育出的中蜂蜂王发育更好的原因,相较于CK组,接受意蜂吐浆处理的试验组的蜂王卵巢发育消耗了更多的糖类和能量,多种水解酶和磷酸酶活性变化也佐证了这一点。此外,KEGG分析结果中我们观察到吐浆48 h后不饱和脂肪酸代谢的活跃进行,传统观点认为蜂王和工蜂之间的寿命差异与摄入的多不饱和脂肪酸(polyunsaturated fatty acids,PUFA)有关,工蜂和雄蜂通过饮食摄入高水平PUFA,使得其细胞膜中PUFA含量增加,可能导致更多的氧化损伤,从而导致它们的寿命较短。相比之下,蜂王的细胞膜主要以单不饱和脂肪酸为主,其膜脂肪酸组成在整个成年期间保持稳定[43]。然而,Martin等[44]通过控制饮食,在不改变工蜂寿命的情况下,在工蜂中也产生了“蜂王”膜的差异,从而否定PUFA缩短蜜蜂寿命差异的假说。本研究所得结果似乎更倾向于后一种观点,因为在蛋白质组分析结果中,意蜂吐浆培育的中蜂蜂王体内以花生四烯酸为代表的PUFA含量显著高于CK组,结合前面得出的意蜂吐浆培育出的中蜂蜂王其初生重和大部分形态指标都优于CK组,我们合理推测其预估寿命也将更长,而不会因此缩短寿命,但实际结果有待更深入的试验验证。

4 结论

本研究通过对蜂王的初生重、形态指标和卵巢中蛋白表达进行综合评估,探讨了中蜂育王前加入意蜂吐浆这一过程对中蜂育王效果的影响,发现利用意蜂吐浆后王台培育的中蜂蜂王的初生重和部分形态指标有所改善,并且蜂王的卵巢组织的代谢更加活跃,这些发现可为意蜂王浆营养调控中蜂蜂王发育提供宝贵的理论依据,同时也有助于我们更好地理解和利用这2种蜜蜂的优势,提高蜂业养殖的经济效益。
[1]
MENG L F, HUO X M, FENG M, et al. Proteomics reveals the molecular underpinnings of stronger learning and memory in eastern compared to western bees[J]. Molecular & Cellular Proteomics, 2018, 17(2):255-269.

[2]
YANG W C, KUANG H O, WANG S S, et al. Comparative sucrose responsiveness in Apis mellifera and A. cerana foragers[J]. PLoS One, 2013, 8(10):e79026.

[3]
WANG Z L, LIU T T, HUANG Z Y, et al. Transcriptome analysis of the Asian honey bee Apis cerana cerana[J]. PLoS One, 2012, 7(10):e47954.

[4]
TAN K, YANG S, WANG Z W, et al. Differences in foraging and broodnest temperature in the honey bees Apis cerana and A. mellifera[J]. Apidologie, 2012, 43(6):618-623.

[5]
SU S K, CAI F, SI A, et al. East learns from west:Asiatic honeybees can understand dance language of European honeybees[J]. PLoS One, 2008, 3(6):e2365.

[6]
QIN Q H, HE X J, TIAN L Q, et al. Comparison of learning and memory of Apis cerana and Apis mellifera[J]. Journal of Comparative Physiology:Neuroethology, Sensory,Neural,and Behavioral Physiology, 2012, 198(10):777-786.

[7]
GLOAG R, TAN K, WANG Y, et al. No evidence of queen thelytoky following interspecific crosses of the honey bees Apis cerana and Apis mellifera[J]. Insectes Sociaux, 2017, 64(2):241-246.

[8]
WOZNICA J. Studies on crosses between Apis-mellifica-caucasica and Apis-mellifica-mellifica and on their productivity under various conditions[J]. Annales Universitatis Mariae Curie-Sklodowska, 1968,22:301-311.

[9]
王静. 中华蜜蜂和意大利蜜蜂营养杂交的研究进展[J]. 中国蜂业, 2012, 63(增刊2):24-25.

WANG J. The Progress of nutritional hybridization between Apis cerana cerana and Apis mellifera ligustica[J]. Apiculture of China, 2012,63 (Suppl.2):24-25. (in Chinese)

[10]
KAMAKURA M. Royalactin induces queen differentiation in honeybees[J]. Nature, 2011, 473(7348):478-483.

[11]
李茫, 赵方媛, 曾志将, 等. 蜜蜂级型分化机理[J]. 环境昆虫学报, 2019, 41(1):83-89.

LI M, ZHAO F Y, ZENG Z J, et al. Mechanisms of caste differentiation in honeybees[J]. Journal of Environmental Entomology, 2019, 41(1):83-89. (in Chinese)

[12]
YANG Z, XU F, TESCHENDORFF A E, et al. Insights into the role of long non-coding RNAs in DNA methylation mediated transcriptional regulation[J]. Frontiers in Molecular Biosciences, 2022,9:1067406.

[13]
ZHAO Y, SUN H, WANG H T. Long noncoding RNAs in DNA methylation:new players stepping into the old game[J]. Cell & Bioscience, 2016, 6(1):45.

[14]
HE X J, BARRON A B, YANG L, et al. Extent and complexity of RNA processing in honey bee queen and worker caste development[J]. iScience, 2022, 25(5):104301.

[15]
GUO X Q, SU S K, SKOGERBOE G, et al. Recipe for a busy bee:microRNAs in honey bee caste determination[J]. PLoS One, 2013, 8(12):e81661.

[16]
曾志将, 谢宪兵, 薛运波, 等. 中蜂与意蜂营养杂交对工蜂形态指标的影响[J]. 江西农业大学学报, 2005, 27(3):454-457.

ZENG Z J, XIE X B, XUE Y B, et al. Effects of nutritional crossbreeding between Apis cerana cerana and Apis mellifera ligustica on morphological characters of worker bees[J]. Acta Agriculturae Universitatis Jiangxiensis, 2005, 27(3):454-457. (in Chinese)

[17]
何旭江, 汪志平, 陈利华, 等. 中华蜜蜂与意大利蜜蜂营养杂交对意蜂工蜂形态指标的影响[J]. 蜜蜂杂志, 2010, 30(6):3-5.

HE X J, WANG Z P, CHEN L P, et al. Effects of morphological characters of worker bees on nutritional crossbreed between Apis cerana cerana and Apis mellifera ligustica[J]. Journal of Bee, 2010, 30(6):3-5. (in Chinese)

[18]
陈环, 李方明, 郑梦娇, 等. 营养杂交对中蜂蜂王生殖潜能的影响[J]. 四川畜牧兽医, 2015(9):24-26.

CHEN H, LI F M, ZHENG M J, et al. The effect of nutritional cross breeding on the reproductive potential of the queens of Apis cerana cerana[J]. Sichuan Animal & Veterinary Sciences, 2015(9):24-26. (in Chinese)

[19]
BÜCHLER R, ANDONOV S, BIENEFELD K, et al. Standard methods for rearing and selection of Apis mellifera queens[J]. Journal of Apicultural Research, 2013, 52(1):1-30.

[20]
RUTTNER. Biogeography and taxonomy of honeybees[M]. New York: Springer-Verlag Berlin Heidelberg,1988:66-76.

[21]
SLATER G P, YOCUM G D, BOWSHER J H. Diet quantity influences caste determination in honeybees (Apis mellifera)[J]. Proceedings of the Royal Society B:Biological Sciences,2020, 287(1927):20200614.

[22]
汪志平, 何旭江, 陈利华, 等. 中蜂与意蜂营养杂交对其后代抗农药性能的影响[J]. 江西农业大学学报, 2011, 33(2):345-349.

WANG Z P, HE X J, CHEN L H, et al. The effect of nutritional crossbreeding between Apis cerana cerana and Apis mellifera ligustica on anti-pesticide performance[J]. Acta Agriculturae Universitatis Jiangxiensis, 2011, 33(2):345-349. (in Chinese)

[23]
何旭江, 汪志平, 秦秋红, 等. 中蜂与意蜂营养杂交对意蜂微卫星遗传多态性的影响[J]. 中国畜牧兽医, 2011, 38(6):107-110.

HE X J, WANG Z P, QIN Q H, et al. Effects of microsatellite genetic polymorphisms of Apis mellifera ligustica on nutritional crossbreed between Apis cerana cerana and Apis mellifera ligustica[J]. China Animal Husbandry & Veterinary Medicine, 2011, 38(6):107-110. (in Chinese)

[24]
邹垂彬, 周林斌, 颜伟玉. 优质蜂王培育的研究进展[J]. 黑龙江畜牧兽医, 2016(5):62-64.

ZOU C B, ZHOU L B, YAN W Y. Research progress in the cultivation of high-quality queen bees[J]. Heilongjiang Animal Science and Veterinary Medicine, 2016(5):62-64. (in Chinese)

[25]
王瑞生. 中华蜜蜂蜂王人工培育技术研究[D]. 硕士学位论文. 重庆: 重庆师范大学, 2014.

WANG R S. Study on artificial queen breeding techniques in honeybee (Apis cerana cerana F.)[D]. Master’s Thesis. Chongqing: Chongqing Normal University, 2013. (in Chinese)

[26]
吴小波, 颜伟玉, 曾志将. 中蜂与意蜂合群饲养及其工蜂监督[J]. 中国蜂业, 2008(1):7-10.

Wu X B, YAN W Y, ZENG Z J. Study on raising the collaboration colonies of Apis cerana cerana and Apis mellifera ligustica and the workers policing in the colonies[J]. Apiculture of China, 2008(1):7-10. (in Chinese)

[27]
吴帆. 嗅觉调控工蜂识别幼虫及浆蜂增强幼虫接受机制研究[D]. 博士学位论文. 北京: 中国农业科学院, 2020.

WU F. Insights into larval identification by honey bee workers and stronger olfactory sense of accepting larvae in queen cells by royal jelly bees[D]. Ph.D.Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2020. (in Chinese)

[28]
DELANEY D A, KELLER J J, CAREN J R, et al. The physical,insemination,and reproductive quality of honey bee queens (Apis mellifera L.)[J]. Apidologie, 2011,42:1-13.

[29]
雷树明, 杨爽, 陈顺安. 滇南中蜂自然蜂王与人工蜂王的初生重比较[J]. 黑龙江畜牧兽医, 2014(19):166-168.

LEI S M, YANG S, CHEN S A. Comparison of the initial birth weight between natural and artificial queens of Chinese honeybees in southern Yunnan[J]. Heilongjiang Animal Science and Veterinary Medicine, 2014(19):166-168. (in Chinese)

[30]
WRIGHT C M, LICHTENSTEIN J L L, TIBBETTS E A, et al. Individual variation in queen morphology and behavior predicts colony performance in the wild[J]. Behavioral Ecology and Sociobiology, 2019, 73(9):122.

[31]
金梦杰, 李震, 刘建辉, 等. 西方蜜蜂羽化出房蜂王与工蜂形态及生理生化指标比较[J]. 江西农业大学学报, 2023, 45(5):1220-1229.

JIN M J, LI Z, LIU J H, et al. Comparative of morphology and physiological biochemical indexes between newly emerged queen and worker of Apis mellifera[J]. Acta Agriculturae Universitatis Jiangxiensis, 2023, 45(5):1220-1229. (in Chinese)

[32]
SANTOS C G, HARTFELDER K. Insights into the dynamics of hind leg development in honey bee (Apis mellifera L.) queen and worker larvae-a morphology/differential gene expression analysis[J]. Genetics and Molecular Biology, 2015, 38(3):263-277.

[33]
DE SOUZA D A, KAFTANOGLU O, DE JONG D, et al. Differences in the morphology,physiology and gene expression of honey bee queens and workers reared in vitro versus in situ[J]. Biology Open, 2018, 7(11):bio036616.

[34]
WANG W X, TIAN L Q, HUANG Q, et al. Effects of 10-hydroxy-2-decenoic acid on the development of honey bee (Apis mellifera) larvae[J]. Journal of Apicultural Research, 2014, 53(1):171-176.

[35]
CHRISTIAN W W P. Honeybee evolution:royal jelly proteins help queen larvae to stay on top[J]. Current Biology, 2018, 28(8):R350-R351.

[36]
CHAPMAN A, AMIRI E, HAN B, et al. Fertility costs of cryptic viral infections in a model social insect[J]. Scientific Reports, 2022, 12(1):15857.

DOI PMID

[37]
刘蓓, 王丽华. 蜜蜂发育相关基因研究[J]. 亚热带农业研究, 2014, 10(2):126-133.

LIU B, WANG L H. A study of development-related genes in honeybee[J]. Subtropical Agriculture Research, 2014, 10(2):126-133. (in Chinese)

[38]
WANG Y, MA L T, ZHANG W X, et al. Comparison of the nutrient composition of royal jelly and worker jelly of honey bees (Apis mellifera)[J]. Apidologie, 2016, 47(1):48-56.

[39]
ASENCOT M, LENSKY Y. The effect of sugars and juvenile hormone on the differentiation of the female honeybee larvae (Apis mellifera L.) to queens[J]. Life Sciences, 1976, 18(7):693-699.

[40]
GANTT S L, JOSEPH C G, FIERKE C A. Activation and inhibition of histone deacetylase 8 by monovalent cations[J]. Journal of Biological Chemistry, 2010, 285(9):6036-6043.

DOI PMID

[41]
POLSINELLI G A, YU H D. Regulation of histone deacetylase 3 by metal cations and 10-hydroxy-2E-decenoic acid:possible epigenetic mechanisms of queen-worker bee differentiation[J]. PLoS One, 2018, 13(12):e0204538.

[42]
SPANNHOFF A, BEDFORD M T, KIM Y K, et al. Histone deacetylase inhibitor activity in royal jelly might facilitate caste switching in bees[J]. EMBO Reports, 2011, 12(3):238-243.

DOI PMID

[43]
MARTIN N, HULBERT A J, BRENNER G C, et al. Honey bee caste lipidomics in relation to life-history stage and the long life of the queen[J]. Journal of Experimental Biology, 2019, 222(Pt 24):jeb207043.

[44]
MARTIN N, HULBERT A J, BICUDO J E P W, et al. The adult lifespan of the female honey bee (Apis mellifera):metabolic rate,AGE pigment and the effect of dietary fatty acids[J]. Mechanisms of Ageing and Development, 2021,199:111562.

Outlines

/