RESEARCH PAPER

Compare and Reveal Difference of Liver Fat Metabolism of Tan Sheep at Different Growth Stages Using Transcriptome Analysis Method

  • DU Jiawen ,
  • REN Wenyi ,
  • XU Xiaofeng , * ,
  • ZHANG Lili , *
Expand
  • College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
*XU Xiaofeng, professor, E-mail: ;
ZHANG Lili, associate professor, E-mail:

Received date: 2024-04-30

  Online published: 2024-10-14

Abstract

The purpose of this study was to explore the differential genes affecting liver fat metabolism at different growth stages of Tan sheep. The left lobe of liver of 3 sheep at 3, 6 and 9 months of age were collected. The control group was 3 months old, and the experimental group was 6 months old, and then 6 months old as the control group, 9 months old as the experimental group. Finally, transcriptome sequencing was performed by Illumian software and real-time fluorescence quantitative PCR (RT-qPCR) verification was performed. The results showed that 265 differentially expressed genes (91 up-regulated and 174 down-regulated) were detected at 6 months of age compared with 3 months of age. Compared with 6 months of age, 286 differentially expressed genes (195 up-regulated and 91 down-regulated) were detected at 9 months of age. The Kyoto Encyclopedia of genes and Genomes (KEGG) pathway annotation results showed that compared with 3 months of age, 6 months of age were mainly enriched in peroxisome proliferator activated receptor (PPAR) signaling pathway, unsaturated fatty acid biosynthesis, cholesterol metabolism and other signaling pathways. Compared with 6 months of age, 9 months of age was mainly enriched in insulin resistance, calcium signaling pathway, adenylate activated protein kinase (AMPK) and other signaling pathways. ClueGo was used to enrich the common genes in the two groups and found that they were mainly in cholesterol metabolism, starch and sucrose metabolism, calcium signaling and other pathways. RT-qPCR results of 5 randomly selected acyl-CoA synthetase 5 (ACSL5), apolipoprotein A4 (APOA4), ANGPTL8 (ANGPTL8), protein phosphatase 1 regulatory subunit 3C (PPP1R3C) and acetyl-CoA carboxylase β (ACACB) genes were consistent with the transcriptome sequencing results. Through transcriptomic sequencing analysis of liver of Tan sheep at different ages, ACSL5 and APOA4 are selected as the genes regulating liver fat metabolism of Tan sheep at 3 and 6 months of age, and PPP1R3C and ACACB are selected as the candidate genes regulating liver fat metabolism of Tan sheep at 6 and 9 months of age. ANGPTL8, glycogen 2 (GYG2), serotonin receptor 2A (HTR2A), and solute vector family 8 member A3 (SLC8A3) are the common genes regulating liver lipid metabolism in Tan sheep aged 3, 6 and 9 months of age.

Key words: Tan sheep; liver; fat; transcriptome

Cite this article

DU Jiawen , REN Wenyi , XU Xiaofeng , ZHANG Lili . Compare and Reveal Difference of Liver Fat Metabolism of Tan Sheep at Different Growth Stages Using Transcriptome Analysis Method[J]. Chinese Journal of Animal Nutrition, 2024 , 36(10) : 6744 -6756 . DOI: 10.12418/CJAN2024.574

滩羊产业是宁夏回族自治区优先支持发展的农业战略性主导产业之一,除裘皮有特色外,肉质鲜美、口感细嫩、膻味较轻的特点已经得到消费者的广泛认可[1],但滩羊生长发育过程中体内脂代谢基础研究理论的不足以及与脂代谢相关疾病调控机制的不明是制约滩羊业发展的关键因素之一。肝脏作为动物机体重要的代谢器官,对动物机体代谢平衡的维持有着重要的作用[2]。脂肪作为动物机体主要的能量来源,当动物机体能量需求增加时,如处于围产期或泌乳高峰期的奶牛,体内的脂肪大量分解导致血液中脂肪酸含量增加,由于肝脏是机体进行脂肪代谢的中枢,脂肪酸的摄取、酯化、氧化和分泌都发生在肝细胞中[3],且肝脏中脂肪酸可以转换成甘油三酯和胆固醇,以极低密度脂蛋白(VLDL)颗粒的形式分泌,而反刍动物体内VLDL的含量相对于其他动物较少[4-5],这种再酯化不仅会导致肝脏脂肪积累,肝细胞脂肪变性,最终形成脂肪肝,损害肝脏功能,还可能对肌肉组织造成影响。肌肉是主要能量消耗部位,也是脂肪存储的重要场所。当肝脏无法有效地处理脂肪时,多余的脂肪可能会被转移到肌肉中,导致肌肉脂肪沉积增加。这种肌肉脂肪沉积可能会影响肌肉的功能和结构,进而影响肉质性状[6-9]。此外,研究表明,肝脏脂肪的积累还可能影响肌肉的能量代谢[10]
回顾以往,可以发现大量研究只集中在不同饲养方式、不同精粗比以及添加不同饲粮对滩羊生长性能、肉品质等的影响,而关于滩羊不同生长阶段肝脏脂肪代谢相关基因的研究很少。一般来讲,滩羊前3个月为羔羊阶段,4~6月为生长发育阶段,7~9月为育肥阶段,之后,滩羊生长速度会逐渐变慢,达到一个相对稳定的水平。因此,本研究以3、6、9月龄滩羊的肝脏作为研究对象,通过转录组技术筛选出不同生长阶段滩羊肝脏脂肪沉积的候选基因,明确其调控作用,以期为培育滩羊、预防和管理疾病及提高肉品质提供分子理论基础。

1 材料与方法

1.1 试验动物及饲粮

试验在宁夏回族自治区吴忠市盐池县某滩羊试验基地内进行。试验选择相同饲养条件下3、6、9月龄健康公滩羊各3只,单栏(4 m×4 m)饲养,宰前活重及胴体重见表1。试验以3月龄为对照组,6月龄为试验组;再以6月龄为对照组,9月龄为试验组。饲粮参照《肉羊营养需要量》(NY/T 816—2021)并结合滩羊生产实际进行配制。试验期间,所有试验羊只自由饮水,每日饲喂2次(06:30和17:30)。基础饲粮组成及营养水平见表2。试验饲粮干物质、粗蛋白质、粗脂肪、粗灰分、中性洗涤纤维、钙、磷含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6433—2006、GB/T 6438—2007、GB/T 20806—2006、GB/T 6436—2018、GB/T 6437—2018测定,代谢能计算方法为原料代谢能乘以该原料在饲粮中所占比例,然后相加,其中原料代谢能参考《中国饲料成分及营养价值表(2022年第33版)》[11]。本研究获得了宁夏大学科技伦理审查委员会的伦理许可,并获得了宁夏大学科技伦理委员会的批准(批准号:NXU-420)。
表1 不同月龄滩羊宰前活重和胴体重

Table 1 Live weight before slaughter and carcass weight of Tan sheep at different ages kg

项目 Items 3月龄 3 months of age 6月龄 6 months of age 9月龄 9 months of age
宰前活重 Live weight before slaughter 40.78±2.09 46.24±5.26 41.40±1.69
胴体重 Carcass weight 12.76±0.76 22.34±1.59 19.24±3.56
表2 基础饲粮组成及营养水平(干物质基础)

Table 2 Composition and nutrient levels of the basal diet (DM basis)%

项目 Items 含量 Content
原料 Ingredients
玉米秸秆 Corn stalk 30.00
玉米 Corn 25.00
柠条 Caragana korshinskii 15.00
豆粕 Soybean meal 10.00
胚芽粕 Germ meal 7.00
玉米干酒糟及其可溶物 Corn DDGS 5.50
菜籽粕 Rapeseed meal 3.00
预混料 Premix1) 3.00
糖蜜 Molasses 1.20
脱霉剂 Mildew removing agent 0.30
合计 Total 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 11.02
粗蛋白质 CP 14.44
中性洗涤纤维 NDF 41.98
粗脂肪 EE 2.53
粗灰分 Ash 4.45
钙 Ca 0.96
磷 P 0.40

1) 每千克预混料含有 One kilogram of premix contained the following:VA 1 600 000 IU,VD 800 000 IU,VE 1 000 IU,Cu 160 mg,Fe 500 mg,Zn 800 mg,Mn 600 mg,I 6 mg,Se 1 mg。

2) 代谢能为计算值,其余为实测值。ME was a calculated value, while the others were measured values.

1.2 样品采集

屠宰前,试验羊禁食12 h,禁水2 h,宰后30 min内从每只动物的肝脏左叶快速取样, 3月龄样本编号分别为M3_1、M3_2、M3_3,6月龄样本编号分别为M6_1、M6_2、M6_3,9月龄样本编号分别为M9_1、M9_2、M9_3,每个样本≥5 g,于-80 ℃保存,用于转录组测序。

1.3 RNA提取、文库构建和转录组测序

采用TRIzol法提取肝脏总RNA,随后利用琼脂糖凝胶电泳、NanoPhotometer spectrophotomete和Agilent 2100 bioanalyzer对RNA样品进行严格质控,质控包括检测RNA样品的浓度、纯度及完整性。通过Oligo(dT)磁珠富集总RNA中带有polyA结构的mRNA,采用离子打断的方式,将RNA打断到长度300 bp左右的片段。以RNA为模板,用6碱基随机引物和逆转录酶合成cDNA第1链,并以第1链cDNA为模板进行第2链cDNA的合成。文库构建完成后,采用PCR扩增进行文库片段富集,之后根据片段大小进行文库选择,文库大小在450 bp。接着,通过Agilent 2100 Bioanalyzer对文库进行质检,再对文库总浓度及文库有效浓度进行检测。样品经过RNA抽提、纯化、建库之后,采用第2代测序技术(NGS),基于Illumina测序平台,对这些文库进行双未端(paired-end,PE)测序。整个建库测序过程均由上海拜谱生物科技有限公司完成。

1.4 测序数据质控、比对

为了保证数据分析的质量及可靠性,对测序获得的原始数据过滤、测序错误率检查、GC含量分布检查,获得后续分析使用的clean reads,利用HISAT2比对软件将clean reads比对到参考基因组上,比对完成后,采用subread软件中的featureCounts工具对基因进行表达水平的定量,分别过滤掉比对质量值低于10的reads,非成对比对上的reads,比对到基因组多个区域的reads。

1.5 差异表达分析

使用HTSeq统计比对到每1个基因上read count值,作为基因的原始表达量。结果以FPKM标准化处理的值表示,使不同基因、不同样本间的基因表达水平具有可比性。采用DESeq对基因表达进行差异分析,筛选差异表达基因条件为:以矫正后的P值(Padj)<0.05和log2|FoldChange|>1作为组间差异显著基因的筛选标准。

1.6 GO功能富集和KEGG通路富集分析

通过pathway显著性富集能够探究差异表达基因参与的生物学通路和信号转导途径。因此采用clusterProfiler软件中的enrichGO函数和enrichPathway函数分别对差异表达基因进行GO和KEGG富集分析。以Padj<0.05作为显著性富集的阈值。

1.7 实时荧光定量PCR(RT-qPCR)

使用NCBI搜索基因找到其CDS区序列并采用Primer Premier 5.0设计其引物(表3),引物由上海拜谱生物科技有限公司合成。利用TaKaRa反转录试剂盒将RNA反转录cDNA,以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,采用耶拿(Analytikjena)(德国)荧光定量PCR仪对筛选到的差异表达基因进行RT-qPCR检测。反应体系15 μL:SYBR Green Ⅱ Mix 7.5 μL,上、下游引物各0.3 μL,cDNA模板1.5 μL,ddH2O 5.4 μL。反应条件为95 ℃预变性30 s,95 ℃变性5 s,60 ℃退火30 s,共40个循环。
表3 引物信息

Table 3 Primer information

基因
Genes
引物序列
Primer sequences(5'—3')
产物长度
Product length/bp
GenBank登录号
GenBank accession No.
酰基辅酶A合成酶5
ACSL5
F:AAAACTGGGACAGAAGGTGGC
R:ACTCTGGGAGTTGGTGATGGAC
184 NC_056075.1
载脂蛋白A4
APOA4
F:CAACAGCGTGCGTGGAA
R:GCTGCTGACCTTGTCCCTC
247 NC_056068.1
血管生成素样蛋白8
ANGPTL8
F:CCAAGAGCTACGTGCGAGTC
R:GCCATCATCTCCTGCTTCTGT
273 NC_056058.1
蛋白磷酸酶1调节亚基3C
PPP1R3C
F:TCTGGGACAACAACGAGGGT
R:TGCCATTCTGGGAAGAGCC
184 NC_056075.1
乙酰辅酶A羧化酶β
ACACB
F:AGGATAATCGCAGCCCAGTC
R:TTGCTCGTCCCGTCACCA
219 NC_056070.1
甘油醛-3-磷酸脱氢酶
GAPDH
F:TGACGCTCCCATGTTTGTGA
R:GCGTGGACAGTGGTCATAAGT
162 NC_056056.1

1.8 数据统计分析

本试验每个样本重复3次,根据2-ΔΔCt值计算5个目的基因的相对表达量,并通过log2|FoldChange|标准化处理。使用SPSS 26.0统计软件的one-way ANOVA程序进行方差分析。使用Graphpad Pism 9.5软件制作图片。P<0.05表示差异显著。

2 结果与分析

2.1 测序数据质量评估

将质控后的clean reads比对到参考基因组上,结果显示,样品比对基因组的总比对率均在96.55%以上,比对基因集的唯一比对率均在94.96%以上(表4)。这表明数据质量可靠,可用于后续分析,同时样品间均匀的比对率表明,样品之间的数据具有可比性。
表4 测序数据质量评估

Table 4 Sequencing data quality assessment

样品
Samples
质控后的reads总数
Total number of reads after quality control/条
总比对率
Total mapping ratio/%
唯一比对率
Uniquely mapping ratio/%
M3_1 43 071 008 96.97 95.29
M3_2 45 684 690 96.91 95.59
M3_3 47 783 898 97.01 95.13
M6_1 43 730 532 97.15 95.05
M6_2 44 403 010 97.05 95.24
M6_3 45 065 820 97.08 95.16
M9_1 40 059 442 96.55 95.42
M9_2 43 650 516 96.65 94.96
M9_3 37 984 766 97.04 95.59

M3_1、M3_2、M3_3,M6_1、M6_2、M6_3,M9_1、M9_2、M9_3分别为3、6、9月龄滩羊的样本编号。下同。

M3_1, M3_2, M3_3, M6_1, M6_2, M6_3 and M9_1, M9_2, M9_3 were the sample numbers of Tan sheep aged 3, 6 and 9 months, respectively. The same below.

2.2 差异表达基因筛选与分析

2.2.1 差异表达基因筛选

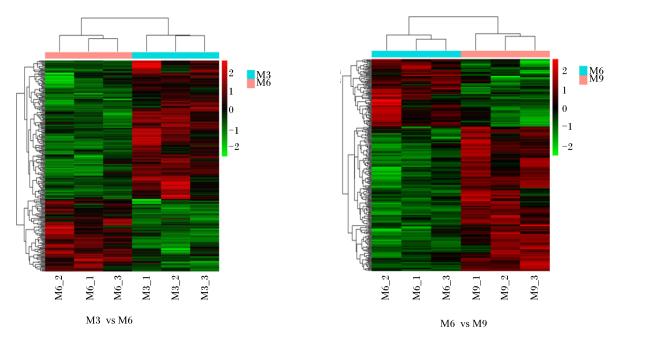
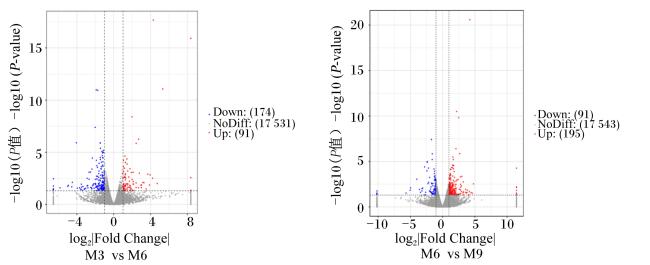
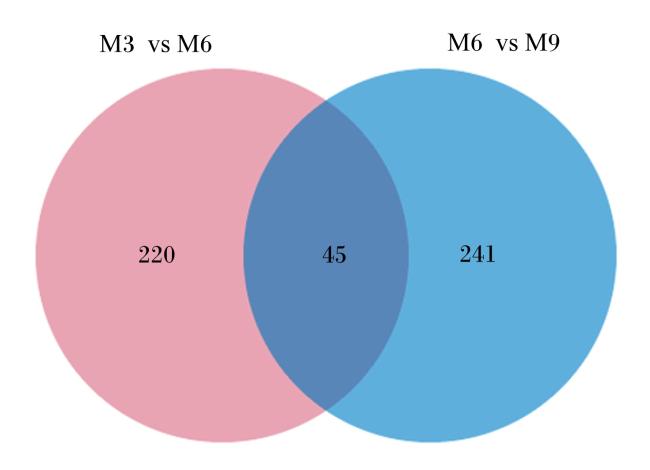
对2组的差异表达基因进行聚类发现,每组不同月龄各聚为一类,组间明显分开(图1),说明均一性和相关性很好,可以进行后续分析;对2组样本进行转录组测序,采用DESeq对基因表达进行差异分析,以表达差异倍数log2|FoldChange|>1和显著性Padj<0.05作为筛选差异表达基因的条件,结果显示:M3 vs M6共筛选到265个差异表达基因,其中上调91个,下调174个;M6 vs M9共筛选到286个差异表达基因,其中上调195个,下调91个(图2);有45个差异表达基因在2组中均有表达(图3)。
图1 不同月龄滩羊肝脏差异表达基因聚类热图

M3为3月龄,M6为6月龄,M9为9月龄。下图同。

Fig.1 Clustering heat map of differentially expressed genes in liver of Tan sheep at different months of age

M3 is 3 months of age, M6 is 6 months of age, and M9 is 9 months of age. The picture below is the same.

图2 不同月龄滩羊肝脏差异表达基因火山图

Down:下调;Up:上调;NoDiffi:无差异 no difference。

Fig.2 Volcano map of differentially expressed genes in liver of Tan sheep at different months of age

图3 不同月龄滩羊差异基因的韦恩图

Fig.3 Venn diagram of differential genes in Tan sheep at different months of age

2.2.2 差异表达基因功能富集分析

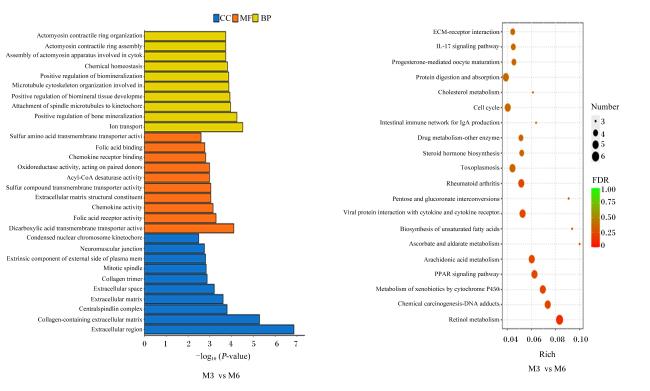
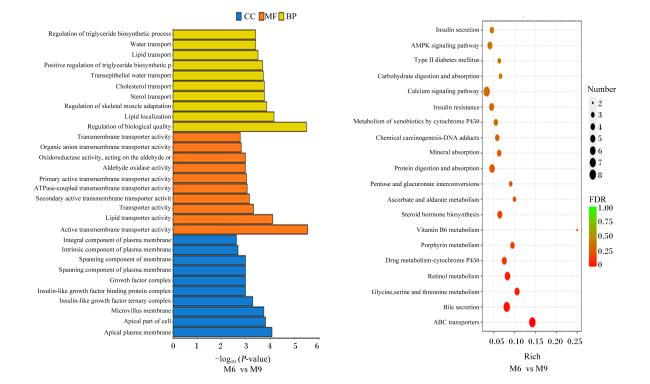
将筛选的差异表达基因进行GO功能富集分析,选取前30个显著条目绘成柱状图(图4图5),结果显示:M3 vs M6中有653个显著富集,生物过程、细胞组分和分子功能分别为488、59和106个,与脂肪代谢相关的信号通路有离子传输、二羧酸跨膜转运蛋白活性、脂蛋白代谢过程的调节等;M6 vs M9中有625个显著富集,生物过程、细胞组分和分子功能分别为425、53和147个,与脂肪代谢相关的信号通路有脂质转运体活性、胆固醇转运、甘油三酯生物合成等。
图4 3、6月龄滩羊肝脏差异表达基因GO功能和KEGG通路富集分析图

CC:细胞组分 cell components; MF:分子功能 molecular functions; BP:生物过程 biological processes; Number:富集到此 pathway上的基因个数 the number of genes enriched in this pathway;rich:该pathway 中富集到的差异基因个数与注释到的差异基因个数的比值 the ratio of the number of differential genes enriched in this pathway to the number of differential genes annotated;FDR:错误发现率false discovery rate。图5同 the same as Fig.5

Actomyosin contractile ring organization:肌动球蛋白收缩环组织;Actomyosin contractile ring assembly:肌动球蛋白收缩环组;Assembly of actomyosin apparatus involved in cytok:细胞内肌动球蛋白装置的组装;Chemical homeostasis:化学体内平衡;Positive regulation of biomineralization:积极调节生物矿化;Microtubule cytoskeleton organization involved in:微管细胞骨架组织参与;Positive regulation of biomineral tissue developme:生物矿物组织发育的正向调节;Attachment of spindle microtubules to kinetochore:纺锤体微管与着丝点的附着;Positive regulation of bone mineralization:积极调节骨矿化;Ion transport:离子传输;Sulfur amino acid transmembrane transporter activi:硫氨基酸跨膜转运蛋白活性;Folic acid binding:叶酸结合;Chemokine receptor binding:趋化因子受体结合;Oxidoreductase activity, acting on paired donors:氧化还原酶活性,作用于配对供体;Acyl-CoA desaturase activity:酰基辅酶A去饱和酶活性;Sulfur compound transmembrane transporter activity:硫化合物跨膜转运蛋白活性;Extracellular matrix structural constituent:细胞外基质结构成分;Chemokine activity:趋化因子的活动;Folic acid receptor activity:叶酸受体活性;Dicarboxylic acid transmembrane transporter active:二羧酸跨膜转运蛋白活性;Condensed nuclear chromosome kinetochore:浓缩核染色体着丝点;Neuromuscular junction:神经肌肉接头;Extrinsic component of external side of plasma mem:等离子体膜外侧面的外部成分;Mitotic spindle:有丝分裂纺锤体;Collagen trimer:胶原蛋白三聚物;Extracellular space:细胞外空间;Extracellular matrix:细胞外基质;Centralspindlin complex:蛋白质复合体;Collagen-containing extracellular matrix:含胶原蛋白的细胞外基质;Extracellular region:细胞外区域;ECM-receptor interaction:ECM-受体交互;IL-17 signaling pathway:白细胞介素-17信号通路;Progesterone-mediated oocyte maturation:孕激素介导的卵母细胞成熟;Protein digestion and absorption:蛋白质消化吸收;Cholesterol metabolism:胆固醇代谢;Cell cycle:细胞周期;Intestinal immune network for IgA production:肠道免疫网络产生免疫球蛋白A;Drug metabolism-other enzyme:药物代谢-其他酶;Steroid hormone biosynthesis:类固醇激素生物合成;Toxoplasmosis:弓形体病;Rheumatoid arthritis:类风湿性关节炎;Pentose and glucoronate interconversions:戊糖和葡萄糖酸盐的相互转化;Viral protein interaction with cytokine and cytokine receptor:病毒蛋白与细胞因子及细胞因子受体的相互作用;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Ascorbate and aldarate metabolism:抗坏血酸和醛酸盐代谢;Arachidonic acid metabolism:花生四烯酸代谢;PPAR signaling pathway:过氧化物酶体增殖物活化受体信号通路;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源性药物的代谢作用;Chemical carcinogenesis-DNA adducts:化学致癌作用-DNA加合物;Retinol metabolism:视黄醇的新陈代谢。

Fig.4 GO function and KEGG pathway enrichment analysis of differentially expressed gene in liver of Tan sheep at 3 and 6 months of age

图5 6、9月龄滩羊肝脏差异表达基因GO功能和KEGG通路富集分析图

Regulation of triglyceride biosynthetic process:甘油三酯生物合成过程的调控;Water transport:水运输;Lipid transport:脂质运输;Positive regulation of triglyceride biosynthetic p:甘油三酯生物合成的正调控;Transepithelial water transport:经上皮水运输;Cholesterol transport:胆固醇运输;Sterol transport:甾醇运输;Regulation of skeletal muscle adaptation:骨骼肌适应的调节;Lipid localization:脂质本地化;Regulation of biological quality:生物质量调控;Transmembrane transporter activity:跨膜转运蛋白活性;Organic anion transmembrane transporter activity:有机阴离子跨膜转运活性;Oxidoreductase activity, acting on the aldehyde or:氧化还原酶活性,作用于醛或;Aldehyde oxidase activity:醛氧化酶活性;Primary active transmembrane transporter activity:初级活性跨膜转运蛋白活性;ATPase-coupled transmembrane transporter activity:ATP酶偶联跨膜转运蛋白活性;Secondary active transmembrane transporter activit:二级活性跨膜转运蛋白活性;Transporter activity:运输活动;Lipid transporter activity:脂质转运体活性;Active transmembrane transporter activity:活性跨膜转运蛋白活性;Integral component of plasma membrane:质膜的组成部分;Intrinsic component of plasma membrane:质膜的固有成分;Spanning component of membrane:膜的跨越分量;Spanning component of plasma membrane:质膜的跨越成分;Growth factor complex:生长因子复合体;Insulin-like growth factor binding protein complex:胰岛素样生长因子结合蛋白复合物;Insulin-like growth factor ternary complex:胰岛素样生长因子三元复合物;Microvillus membrane:微绒毛膜;Apical part of cell:细胞的顶端部分;Apical plasma membrane:顶质膜;Insulin secretion:胰岛素分泌;AMPK signaling pathway:腺苷酸活化蛋白激酶信号通路;Type Ⅱ diabetes mellitus:Ⅱ型糖尿病;Carbohydrate digestion and absorption:碳水化合物的消化和吸收;Calcium signaling pathway:钙信号通路;Insulin resistance:胰岛素抵抗;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源性药物的代谢作用;Chemical carcinogenesis-DNA adducts:化学致癌-DNA加合物;Mineral absorption:矿物质的吸收;Protein digestion and absorption:蛋白质消化吸收;Pentose and glucuronate interconversions:戊糖和葡萄糖酸盐的相互转化;Ascorbate and aldarate metabolism:抗坏血酸和醛酸盐代谢;Steroid hormone biosynthesis:类固醇激素的生物合成;Vitamin B6 metabolism:维生素B6代谢;Porphyrin metabolism:卟啉代谢;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;Retinol metabolism:视黄醇代谢;Glycine,serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸的代谢;Bile secretion:胆汁分泌;ABC transporters:ABC转运蛋白。

Fig.5 GO function and KEGG pathway enrichment analysis of differentially expressed gene in liver of Tan sheep at 6 and 9 months of age

对差异表达基因进行KEGG通路分析,挑选FDR值最小的即富集最显著的前20条通路并绘制成气泡图(图4图5)。其中,M3 vs M6主要富集在过氧化物酶体增殖物激活受体(PPAR)信号通路、不饱和脂肪酸的生物合成、胆固醇代谢等信号通路;M6 vs M9主要富集在胰岛素抵抗、钙信号通路、腺苷酸活化蛋白激酶(AMPK)信号通路等。
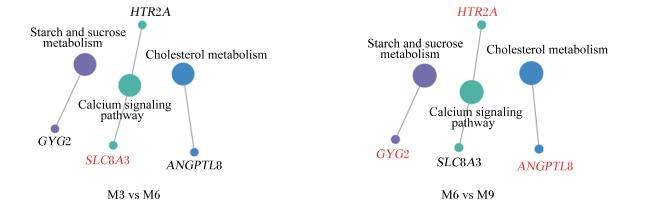
通过GO和KEGG功能富集分析,每个阶段筛选出了2个主要与肝脏脂肪代谢相关的差异表达基因(表5)。且筛选了4个在2组中均表达的与脂肪代谢相关的共有基因,利用ClueGo将2组中的共有基因进行富集分析,发现它们在不同生长阶段的表达情况不同(表6),且主要富集在胆固醇代谢、淀粉和蔗糖代谢、钙信号通路(图6)。
表5 部分KEGG通路与差异表达基因富集结果

Table 5 Enrichment results of partial KEGG pathways and differentially expressed genes

组别
Groups
基因
Genes
信号通路
Signaling pathways
表达
Expression
P
P-value


M3 vs M6
酰基辅酶A合成酶5
ACSL5
过氧化物酶体增殖物激活
受体信号通路
下调 0.005 2
载脂蛋白A4
APOA4
胆固醇代谢 下调 0.031 0


M6 vs M9
蛋白磷酸酶1调节亚基3C
PPP1R3C
胰岛素抵抗、胰岛素信号通路 上调 0.025 1
乙酰辅酶A羧化酶β
ACACB
胰岛素抵抗、脂肪酸生物合成 上调 0.035 8
表6 共有基因表达结果

Table 6 Results of common gene expression

组别 Groups 基因 Genes 表达 Expression PP-value


M3 vs M6
血管生成素样蛋白8 ANGPTL8 下调 0.000 6
糖原蛋白2 GYG2 下调 <0.000 1
5-羟色胺受体2A HTR2A 下调 0.015 5
溶质载体家族8成员A3 SLC8A3 上调 0.037 2


M6 vs M9
血管生成素样蛋白8 ANGPTL8 上调 0.034 8
糖原蛋白2 GYG2 上调 0.008 8
5-羟色胺受体2A HTR2A 上调 0.044 2
溶质载体家族8成员A3 SLC8A3 下调 0.000 6
图6 脂代谢相关基因ClueGo分析

Starch and sucrose metabolism:淀粉和蔗糖代谢;Calcium signaling pathway:钙信号通路;Cholesterol metabolism:胆固醇代谢;ANGPTL8:血管生成素样蛋白8 angiopoietin-like protein 8;GYG2:糖原蛋白2 glycogenin 2;HTR2A:5-羟色胺受体2A serotonin receptor 2A;SLC8A3:溶质载体家族8成员A3 solute carrier family 8 members A3。

红色表示上调基因,黑色表示下调基因。The red represented the up-regulated genes, and the black represented the down-regulated genes.

Fig.6 ClueGo analysis of fat-metabolism-related genes

2.3 RT-qPCR验证

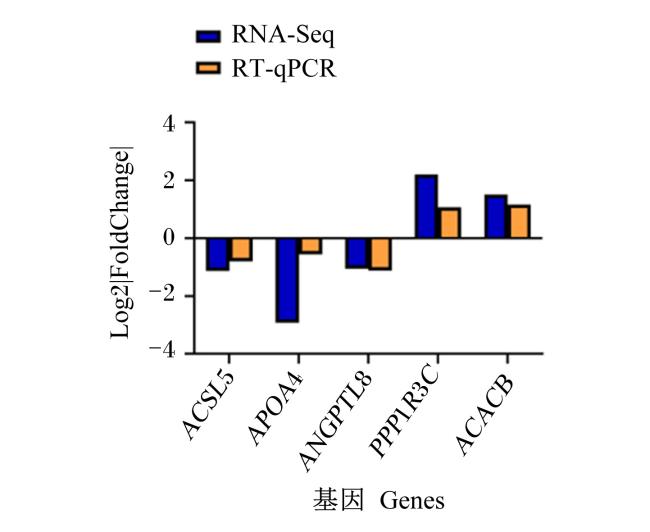
随机挑选ACSL5、APOA4等5个差异表达基因进行RT-qPCR,结果显示:RT-qPCR结果与转录组测序结果一致(图7)。
图7 RT-qPCR验证结果

RT-qPCR :实时荧光定量PCR real-time fluorescence quantitative PCR;ACSL5:酰基辅酶A合成酶5 acyl-CoA synthetase 5;APOA4:载脂蛋白A4 apolipoprotein A4;ANGPTL8:血管生成素样蛋白8 angiopoietin-like protein 8;PPP1R3C:蛋白磷酸酶1调节亚基3C protein phosphatase 1 regulatory subunit 3C;ACACB:乙酰辅酶A羧化酶β acetyl-coa carboxylase beta。

Fig.7 RT-qPCR verification results

3 讨论

3.1 3、6月龄滩羊肝脏脂代谢相关差异表达基因分析

长链脂肪酸的激活是其在细胞和组织中使用的第1步[12]。脂肪酸(FAs)首先被激活为酰基辅酶A,然后参与β-氧化或复杂脂质生物合成。该反应由长链酰基辅酶A合成酶(ACSL)家族的成员催化[4,13]。哺乳动物中不同的ACSL亚型具有不同的分布、底物偏好和特定功能[14]。此外,不同的ACSL亚型在将长链脂肪酰基辅酶A分配到不同的代谢途径中起着关键作用[15-16]。其中,ACSL5是一种重要的脂肪酸代谢酶,参与脂肪酸的活化和氧化过程[17]。PPARα信号通路主要存在于肝脏、心脏和肌肉等组织,激活可以促进脂肪酸的氧化和减少脂肪酸合成。载脂蛋白A-Ⅳ(APOA4)是一种重要的脂蛋白,它的功能多种多样,其中包括参与胆固醇的代谢。研究表明,APOA4能够影响肝脏中甘油三酯的分泌,且肝脏中甘油三酯含量与APOA4 mRNA表达水平有关[18]。曲比伍且等[19]研究发现,山羊APOA4基因在肝脏中的表达最高,可能通过抑制分化标志基因及脂肪代谢标志基因的表达,进而抑制肌内脂肪细胞的分化和脂滴积聚,可作为山羊肌内脂肪细胞分化的负向调节因子。本研究中,与3月龄相比,6月龄滩羊肝脏富集在PPAR信号通路的ACSL5与富集在胆固醇代谢途径的APOA4表达都显著下调。ACSL5表达下调,引起肝脏中脂肪酸氧化降低,脂质含量增加;APOA4表达下调,可能说明抑制分化标志基因及脂肪代谢标志基因的表达能力降低,导致肝脏脂质增加,与前人研究结果一致。

3.2 6、9月龄滩羊肝脏脂代谢相关差异表达基因分析

蛋白质磷酸酶1调节亚基3C(PPP1R3C)是一种蛋白质编码基因,作为一种糖原靶向亚基,可以调节蛋白质磷酸酶1(PP1)的活性,激活糖原合成酶,降低糖原磷酸化酶的活性,从而限制糖原的分解[20]。胰岛素抵抗是指胰岛素作用的靶器官对胰岛素作用的敏感性下降,导致脂肪分解减少[21]。研究发现,脂肪组织中PPP1R3C的转基因过表达增加了进入糖原合成途径的葡萄糖流量,表明脂肪细胞能够储存高水平的糖原[22]。在小鼠体内敲低PPP1R3C的表达可以减少肝脏的脂质沉积,并改善胰岛素敏感性[23]。与普通秋田小鼠相比,过表达PPP1R3C的秋田小鼠生成更多的肝脏脂质,表现在肝脏甘油三酯含量增加[24]。乙酰辅酶A羧化酶B(ACACB)是一种参与脂肪酸合成的酶,可将乙酰辅酶A生成丙二酸单酰辅酶A,是脂肪酸合成和代谢中的一个关键步骤[25]。研究表明,ACACB的活性可能会影响肝脏中的脂肪含量。通过抑制肝内脂肪的从头生成(denovo lipogenesis,DNL)核心酶,可以改善非酒精性脂肪性肝病(NAFLD)患者的肝脏脂肪变性、炎症以及纤维化[26]。此外,还有研究指出,肝脏特异性ACC1/2双敲除小鼠(LDKO)免受肝脏脂肪变性的影响,这可能提示了ACACB在肝脏脂肪积累中的潜在作用[27]。本研究中,与6月龄相比,9月龄滩羊肝脏PPP1R3CACACB表达都显著上调,其中PPP1R3C表达上调,胰岛素抵抗通路增强,脂肪分解减少;ACACB表达上调,胰岛素抵抗增强,脂肪酸含量升高,导致脂质积累,与前人研究结果一致。

3.3 3、6、9月龄滩羊肝脏脂代谢相关差异表达基因分析

3.3.1 脂肪细胞生长发育的调控

溶质载体家族8成员A3(SLC8A3)基因编码的是钠/钙交换整合膜蛋白家族的成员,这种蛋白在多种细胞类型中参与维持钙离子的稳态。在细胞信号传导中,SLC8A3蛋白可能通过调节细胞内钙离子浓度来影响多种细胞过程,包括细胞周期调控和细胞代谢过程[28]。与3月龄相比,6月龄滩羊SLC8A3表达上调,这时脂肪细胞调控和代谢过程增强,到9月龄时表达下调,可能是随着滩羊的生长,身体结构和功能发生了某些生理变化,为适应环境条件影响了SLC8A3的表达,目前关于SLC8A3在肝脏中的研究较少,后续还需深入研究。5-羟色胺受体2A(HTR2A)属于5-羟色胺受体家族中的一员,5-羟色胺(5-HT)是一种神经递质,它通过与特定的5-HT受体结合来发挥其生物学效应。HTR2A作为G蛋白偶联受体,与Gs蛋白偶联,通过增加细胞内cAMP的水平来传递信号[29],进而参与调节肝脏的生命代谢活动,尤其是在肝脏脂肪细胞发育的不同阶段。与3月龄相比,6月龄滩羊HTR2A表达下调,在脂肪细胞发育的早期,5-羟色胺可能通过HTR2A促进特定的代谢途径,而在肝脏生长发育后,5-HT的作用可能会有所不同,导致HTR2A的表达下调,随着肝脏脂肪细胞发育的成熟,到9月龄时表达上调,其他与肝脏生命代谢相关的基因表达可能会增加,从而导致HTR2A表达上调。

3.3.2 糖原合成与胆固醇代谢

在滩羊的生长发育过程中,肝脏的功能会随着年龄的增长而发生变化。在幼年时期,肝脏可能更多地参与到生长和发育相关的代谢活动中,而在成年时期,肝脏的功能可能会更加注重维持体内的代谢过程。这可能导致滩羊将代谢产生的能量用于维持自身生长发育,而在储存能量上微乎其微,这种功能的转变可能会影响肝脏中特定基因表达模式的变化。糖原蛋白2(GYG2)是糖原合成过程中的关键酶,它在肝脏中的表达尤为重要,当血糖水平高时,肝脏会合成更多的糖原来储存能量,反之则分解糖原释放能量,满足生长发育的需求[30]。血管生成素样蛋白是一类与脂类、葡萄糖、能量代谢和血管生成密切相关的蛋白质家族,共有8个成员,在代谢调控等方面发挥着重要作用[31]。其中,血管生成素样蛋白8(ANGPTL8)因表现出与ANGPTL3和ANGPTL4这2种蛋白功能的相似性——与脂蛋白脂肪酶(LPL)结合和调节甘油三酯代谢[32],被认为是脂质代谢的新兴参与者[33]。研究表明,ANGPTL8的表达上调可能会导致肝脏脂肪含量的变化[34-35]。本研究中,与3月龄相比,6月龄滩羊肝脏的GYG2和ANGPTL8表达下调,可能与滩羊前期的生长发育有关,到9月龄时表达上调,此时滩羊生长发育已经成熟,肝脏脂肪代谢活动加强,脂质增多。

4 结论

通过对不同月龄滩羊的肝脏进行转录组测序分析,筛选出ACSL5、APOA4可作为3、6月龄滩羊肝脏脂肪代谢调控的基因,PPP1R3CACACB作为6、9月龄滩羊肝脏脂肪代谢调控的候选基因,ANGPTL8、GYG2、HTR2ASLC8A3作为3、6、9月龄滩羊肝脏脂肪代谢调控的共有基因。本研究对后续滩羊肝脏脂肪代谢的研究具有一定的参考价值。
[1]
梁鹏. 三个绵羊品种肉质性状的转录组学与代谢组学研究[D]. 硕士学位论文. 银川: 宁夏大学, 2022.

LIANG P. Transcriptomics and metabolomics of meat quality traits in three sheep breeds[D]. Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[2]
王杰. 蛋氨酸对羔羊生长发育及肝脏LncRNA基因表达调控的影响[D]. 硕士学位论. 北京: 中国农业科学院, 2017.

WANG J. Effect of dietary methionine on growth,development and hepatic LncRNA gene expression in lambs[D]. Master’s Thesis. Beijing: The Chinese Academy of Agricultural Sciences, 2017. (in Chinese)

[3]
GLUCHOWSKI N L, BECUWE M, WALTHER T C, et al. Lipid droplets and liver disease:from basic biology to clinical implications[J]. Nature Reviews Gastroenterology & Hepatology, 2017, 14(6):343-355.

[4]
TIWARI S M A, SIDDIQI S A. Intracellular trafficking and secretion of VLDL[J]. Arteriosclerosis,Thrombosis,and Vascular Biology, 2012, 32(5):1079-1086.

[5]
ALVES-BEZERRA M, COHEN D E. Triglyceride metabolism in the liver[J]. Comprehensive Physiology, 2017, 8(1):1-8.

[6]
BHAT N, MANI A. Dysregulation of lipid and glucose metabolism in nonalcoholic fatty liver disease[J]. Nutrients, 2023, 15(10):2323.

[7]
ZHANG X Y, LIU C Y, KONG Y Y, et al. Effects of intramuscular fat on meat quality and its regulation mechanism in Tan sheep[J]. Frontiers in Nutrition, 2022,9:908355.

[8]
丁艳艳. 添加左旋肉碱对滩羊生产性能、胴体品质、肉品质及脂质代谢的影响[D]. 硕士学位论. 杨凌: 西北农林科技大学, 2012.

DING Y Y. Effects of L-carnitine supplementation on growth performance,carcass traits,meat quality and lipogensis of sheep[D]. Master’s Thesis. Yangling: Northwest A&F University, 2012. (in Chinese)

[9]
矫丽娟, 罗海玲, 张玉伟, 等. 甘草提取物对滩羊肝脏脂肪代谢关键酶活性的影响[J]. 中国农业大学学报, 2013, 18(4):118-123.

JIAO L J, LUO H L, ZHANG Y W, et al. Effects of licorice extract on the activities of key enzymes in liver lipid metabolism of Tan sheep[J]. Journal of China Agricultural University, 2013, 18(4):118-123. (in Chinese)

[10]
赵天章. 日粮油脂类型对羊肉脂肪酸和肌内脂肪含量的影响及其机理[D]. 博士学位论文. 北京: 中国农业大学, 2014.

ZHAO T Z. Effect and the initial mechanism research of dietary oil sources on fatty acid and intramucular fat contents of lamb[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2014. (in Chinese)

[11]
中国农业科学院北京畜牧兽医研究所动物营养学国家重点实验室、中国饲料数据库情报网中心国家农业科学数据中心. 中国饲料成分及营养价值表(2022年第33版)[J]. 中国饲料, 2022(23),109-119.

Institute of Animal Science and Veterinary Medicine,Chinese Academy of Agricultural Sciences, China Feed Database Information Network Center, National Agricultural Science Data Center.Table of feed composition and nutritional value in China (33rd edition 2022)[J]. Feed in China, 2022(23),109-119. (in Chinese)

[12]
KUWATA H, HARA S. Role of acyl-CoA synthetase ACSL4 in arachidonic acid metabolism[J]. Prostaglandins & Other Lipid Mediators, 2019,144:106363.

[13]
LI B J, QIAO L Y, AN L X, et al. Transcriptome analysis of adipose tissues from two fat-tailed sheep breeds reveals key genes involved in fat deposition[J]. BMC Genomics, 2018, 19(1):338.

DOI PMID

[14]
GREVENGOED T J, KLETT E L, COLEMAN R A. Acyl-CoA metabolism and partitioning[J]. Annual Review of Nutrition, 2014,34:1-30.

[15]
TANG Y, ZHOU J, HOOI S C, et al. Fatty acid activation in carcinogenesis and cancer development:essential roles of long-chain acyl-CoA synthetases[J]. Oncology Letters, 2018, 16(2):1390-1396.

[16]
LI L O, ELLIS J M, PAICH H A, et al. Liver-specific loss of long chain acyl-CoA synthetase-1 decreases triacylglycerol synthesis and β-oxidation and alters phospholipid fatty acid composition[J]. Journal of Biological Chemistry, 2009, 284(41):27816-27826.

[17]
彭梦玲, 胡文业, 李乃馨, 等. 组学技术分析肉鸡胚胎发育过程中肝脏蛋白表达的变化[J]. 畜牧兽医学报, 2020, 51(2):252-259.

DOI

PENG M L, HU W Y, LI N X, et al. The changes of hepatic proteins during chicken embryonic development based on proteomics analysis[J]. Acta veterinaria et zootechnica Sinica, 2020, 51(2):252-259. (in Chinese)

DOI

[18]
VERHAGUE M A, CHENG D M, WEINBERG R B, et al. Apolipoprotein A-Ⅳ expression in mouse liver enhances triglyceride secretion and reduces hepatic lipid content by promoting very low density lipoprotein particle expansion[J]. Arteriosclerosis,Thrombosis,and Vascular Biology, 2013, 33(11):2501-2508.

[19]
曲比伍且, 李艳艳, 李鑫, 等. 山羊APOA4基因抑制肌内脂肪细胞分化[J]. 畜牧兽医学报, 2023, 54(5):1927-1938.

DOI

QU B W J, LI Y Y, LI X, et al. APOA4 gene inhibits intramuscular adipocyte differentiation in goat[J]. Acta Veterinaria et Zootechnica Sinica, 2023, 54(5):1927-1938. (in Chinese)

[20]
王晨玺. Ppp1r3c对脂肪生成和肥胖形成的影响及机制研究[D]. 硕士学位论文. 镇江: 江苏大学, 2022.

WANG C X. Roles and underlying mechanism of PPP1r3c in adipogenesis and obesity[D]. Master’s Thesis. Zhenjiang: Jiangsu University, 2022. (in Chinese)

[21]
KIM J Y, NASR A, TFAYLI H, et al. Increased lipolysis,diminished adipose tissue insulin sensitivity,and impaired β-cell function relative to adipose tissue insulin sensitivity in obese youth with impaired glucose tolerance[J]. Diabetes, 2017, 66(12):3085-3090.

[22]
CEPERUELO-MALLAFRÉ V, EJARQUE M, SERENA C, et al. Adipose tissue glycogen accumulation is associated with obesity-linked inflammation in humans[J]. Molecular Metabolism, 2016, 5(1):5-18.

[23]
LU B B, BRIDGES D, YANG Y M, et al. Metabolic crosstalk:molecular links between glycogen and lipid metabolism in obesity[J]. Diabetes, 2014, 63(9):2935-2948.

[24]
LÓPEZ-SOLDADO I, GUINOVART J J, DURAN J. Increasing hepatic glycogen moderates the diabetic phenotype in insulin-deficient Akita mice[J]. The Journal of Biological Chemistry, 2021,296:100498.

[25]
唐俊婷, 李会芳, 刘华, 等. 乙酰辅酶A羧化酶B基因多态性与2型糖尿病的相关性研究[J]. 中国糖尿病杂志, 2016, 24(1):17-22.

TANG J T, LI H F, LIU H, et al. Association analysis between the polymorphisms of ACACB gene and type 2 diabetes mellitus[J]. Chinese Journal of Diabetes, 2016, 24(1):17-22. (in Chinese)

[26]
杨柳, 李锦忠, 李敏然. 脂肪生成抑制剂治疗非酒精性脂肪性肝病的研究进展[J]. 世界华人消化杂志, 2022, 30(16):735-742.

YANG L, LI J Z, LI M R. Progress in research of lipogenesis inhibitors for treatment of nonalcoholic fatty liver disease[J]. World Chinese Journal of Digestology, 2022, 30(16):735-742. (in Chinese)

[27]
DEJA S, FLETCHER J A, KUCEJOVA B, et al. 204-OR:inhibition of hepatic ACC on a high-fat diet results in hyperglycemia and hepatomegaly due to excess energy generation[J]. Diabetes, 2020, 69(Suppl.1):204-OR.

[28]
KHANANSHVILI D. The SLC8 gene family of sodium-calcium exchangers (NCX)- structure,function,and regulation in health and disease[J]. Molecular Aspects of Medicine, 2013, 34(2/3):220-235.

[29]
ZHANG X, CHENG B, MA Y, et al. Genome-wide survey and functional analysis reveal TCF21 promotes chicken preadipocyte differentiation by directly upregulating HTR2A[J]. Biochemical and Biophysical Research Communications, 2022,587:131-138.

[30]
HAM M, CHO Y, KANG T W, et al. Transcriptome-wide analysis reveals GYG2 as a mitochondria-related aging biomarker in human subcutaneous adipose tissue[J]. Aging Cell, 2024, 23(2):e14049.

[31]
付玮玮, 马云, 陈宁博, 等. 血管生成素样蛋白家族表达调控及其在动物分子育种领域的现状分析[J]. 生物工程学报, 2015, 31(11):1567-1578.

FU W W, MA Y, CHEN N B, et al. Expression of angiopoietin-like proteins for animal breeding:a review[J]. Chinese Journal of Biotechnology, 2015, 31(11):1567-1578. (in Chinese)

[32]
QUAGLIARINA F, WANG Y, KOZLITINA J, et al. Atypical angiopoietin-like protein that regulates ANGPTL3[J]. Proceedings of the National Academy of Sciences, 2012, 109(48):19751-19756.

[33]
ZHANG R, ABOU-SAMRA A B. Emerging roles of lipasin as a critical lipid regulator[J]. Biochemical and Biophysical Research Communications, 2013, 432(3):401-405.

DOI PMID

[34]
黄丽. ANGPTL8对非酒精性脂肪性肝病的影响[D]. 博士学位论文. 武汉: 华中科技大学, 2022.

HUANG L. The effect of ANGPTL8 on nonalcoholic fatty liver disease[D]. Ph.D.Thesis. Wuhan: Huazhong University of Science and Technology, 2022. (in Chinese)

[35]
李莲. 基于RNA-Seq分析ANGPTL8干预C57BL6小鼠肝脏脂代谢的信号网络研究[D]. 硕士学位论文. 镇江: 江苏大学, 2022.

LI L. Tanscriptome-based analysis of the signaling network of ANGPTL8-mediated hepatic lipid metabolism in C57BL6 mice[D]. Master’s Thesis. Zhenjiang: Jiangsu University, 2022. (in Chinese)

Outlines

/