RESEARCH PAPER

Effects of Lactobacillus reuteri from Cattle on Growth Performance, Immune Performance, Antioxidant Capacity and Intestinal Health of Mice Challenged with Enterotoxigenic Escherichia coli

  • LI Yuanyuan ,
  • LIANG Wei * ,
  • CHEN Long ,
  • NIE Cunxi ,
  • PENG Hongmei ,
  • WU Yanyan ,
  • ZHANG Wenju , **
Expand
  • College of Animal Science and Technology, Shihezi University, Shihezi 832000, China
**professor, E-mail:

*Contributed equally

Received date: 2024-04-10

  Online published: 2024-10-14

Abstract

The aim of this study was to investigate the effects of Lactobacillus reuteri from cattle on growth performance, organ indexes, immune performance, antioxidant capacity, intestinal barrier function and intestinal tissue morphology of mice challenged with enterotoxigenic Escherichia coli (ETEC). Forty 4-week-old specific pathogen free (SPF) grade male ICR mice with the similar initial body weight were randomly divided into 4 groups with 10 mice in each group, namely control group, challenge group, test Ⅰ group and test Ⅱ group. The formal experiment began after 7 days of adaptive feeding, and the formal experiment lasted for 22 days. During days 1 to 17 of the formal experiment, mice in the control group and the challenge group were fed a basal diet and gavaged with 0.2 mL saline every day. Mice in the test Ⅰ group and test Ⅱ group were fed basal diet and gavaged with 0.2 mL Lactobacillus reuteri suspensions of 1×10⁸ and 1×10⁹ CFU/mL every day, respectively. From days 18 to 22 of the formal experiment, mice in the control group, were gavaged with 0.2 mL saline every day, and mice in other groups were gavaged with 0.2 mL ETEC of 5×10⁹ CFU/mL every day for challenge. The results showed as follows: 1) after ETEC challenge, compared with the control group, the average daily gain of mice in the challenge group was significantly decreased (P<0.05); however, there was no significant change in the test Ⅰ group and test Ⅱ group (P>0.05). 2) After ETEC challenge, the thymus index of mice in the challenge group was significantly decreased and the heart index was significantly increased compared with the control group (P<0.05), while there was no significant change in the test Ⅰ group and test Ⅱ group (P>0.05). 3) After ETEC challenge, compared with the challenge group, the contents of serum immunoglobulin A, immunoglobulin G, immunoglobulin M and interleukin-10 were significantly increased in the test Ⅱ group (P<0.05), while the contents of interleukin-6, tumor necrosis factor-α and interleukin-1β were significantly decreased (P<0.05). 4) After ETEC challenge, the activity of glutathione peroxidase in serum of mice in the test Ⅰ group and test Ⅱ group was significantly higher and the content of malondialdehyde was significantly lower than those in the challenge group (P<0.05); in addition, the activity of superoxide dismutase in serum of mice in the test Ⅱ group was significantly higher than that in the challenge group (P<0.05). 5) After ETEC challenge, compared with the challenge group, the diamine oxidase activity in serum of mice in the test Ⅰ group and test Ⅱ group was significantly decreased (P<0.05), and the contents of D-lactate and endotoxin in serum of mice in the test Ⅱ group were also significantly reduced (P<0.05). 6) Compared with the control group, the villi height of jejunum in the challenge group was significantly decreased (P<0.05), while there was no significant change in the test Ⅰ group and test Ⅱ group (P>0.05). In summary, Lactobacillus reuteri from cattle can alleviate the weight loss of mice caused by ETEC challenge, improve the immune performance and antioxidant capacity, and reduce the organ and intestinal damage caused by ETEC infection.

Cite this article

LI Yuanyuan , LIANG Wei , CHEN Long , NIE Cunxi , PENG Hongmei , WU Yanyan , ZHANG Wenju . Effects of Lactobacillus reuteri from Cattle on Growth Performance, Immune Performance, Antioxidant Capacity and Intestinal Health of Mice Challenged with Enterotoxigenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2024 , 36(10) : 6768 -6779 . DOI: 10.12418/CJAN2024.576

产肠毒素大肠杆菌(ETEC)是引起幼龄动物肠道疾病的主要病原菌之一,其可以通过定植因子黏附并定植在肠道上皮细胞膜表面,在增殖和生长过程中分泌肠毒素破坏肠道屏障功能,增加动物肠道通透性,进而引起肠道炎症反应和腹泻的发生[1-2]。此外,ETEC感染还会导致动物生产性能降低、机体免疫力及抗氧化能力下降等[3-4],给畜禽养殖业带来巨大的经济损失。抗生素类药物在治疗畜禽大肠杆菌感染疾病的中发挥重要作用,但随着抗生素的大量使用甚至滥用,造成动物机体耐药性不断增加,以及畜禽作为食源性动物,体内抗生素的残留引发的食品安全问题给人类健康带来的重大威胁[5],抗生素替代品的研究与开发已成为畜禽行业研究的热点。
大量研究表明,益生菌在促进幼龄动物生长发育、降低腹泻发生率、改善机体免疫性能、强化肠道屏障功能等方面发挥重要作用[6]。吴妍妍[7]研究表明,给新生犊牛补充由嗜酸乳杆菌、枯草芽孢杆菌及酵母菌组成的复合微生态制剂,可以提高感染大肠杆菌(E.coli)K99犊牛的平均日增重,有助于改善和修复犊牛肠道上皮组织结构。Baillo等[8]研究表明,植物乳杆菌CRL1506和CRL681提高了ETEC攻毒小鼠肠道中白细胞介素(IL)-10的水平,可以通过改善肠道上皮防御和先天免疫增加ETEC的清除率,同时可以保护宿主免受炎症的影响。Pupa等[9]研究表明,补充植物乳杆菌(22F和25F)和乳酸链球菌(72N)提高了ETEC攻毒断奶仔猪的平均日增重,降低了促炎细胞因子IL-1αIL-6、IL-8和肿瘤坏死因子-α(TNF-α)的表达,与仅接受ETEC攻毒组仔猪相比,接受益生菌治疗的仔猪肠道组织形态得到改善,绒毛高度和绒毛高度/隐窝深度显著增加。以上研究表明,益生菌作为抗生素替代品在防治动物感染大肠杆菌的过程中具有较好应用前景。
罗伊氏乳杆菌是国际上公认的新型益生乳酸菌,可以通过产生乳酸、罗伊氏素等多种抗菌物质抑制病原体的入侵[10],通过影响细胞因子的生成刺激或抑制先天性免疫[11],以通过调节结肠菌群组成、提高短链脂肪酸浓度[12]、降低肠道pH维持动物肠道健康,同时对提高动物的生产性能、预防腹泻的发生等也具有积极促进作用[13]。研究表明,益生菌对宿主健康的影响具有菌株特异性,从肠道中分离的细菌可以提升益生菌的有效性[14]。本团队以健康犊牛直肠粪便为分离源,分离筛选出具有抗腹泻特性的牛源罗伊氏乳杆菌1株[15]。前期研究发现,此菌株可以缓解犊牛断奶腹泻,改善断奶犊牛肠道屏障功能[16],但对ETEC感染引起的肠道疾病的防治是否能发挥作用却不得而知。因此,本试验通过建立ETEC感染小鼠肠道炎症模型,探讨饲粮中添加牛源罗伊氏乳杆菌对ETEC攻毒小鼠生长性能、脏器指数、免疫性能、抗氧化能力、肠道屏障功能及肠道组织形态结构的影响,旨在为ETEC感染导致的畜禽肠道疾病问题的解决提供理论基础和科学依据。

1 材料与方法

1.1 试验材料

试验小鼠购自新疆医科大学动物实验中心。小鼠基础饲粮由沈阳市于洪区前民实验动物实验饲料厂提供,主要由玉米、豆粕、面粉、麦麸和鱼粉等组成,其营养成分含量如表1所示。试验用牛源罗伊氏乳杆菌和ETEC由石河子大学动物科技学院实验室保存,ETEC血清型为O78:K99。血清免疫球蛋白A(IgA)、免疫球蛋白M(IgM)、免疫球蛋白G(IgG)、TNF-α、IL-1β、IL-6、IL-10、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)、丙二醛(MDA)、D-乳酸(D-LA)、二胺氧化酶(DAO)和内毒素(ET)酶联免疫吸附测定(ELISA)试剂盒均购自上海酶联生物科技有限公司。
表1 小鼠基础饲粮营养成分含量(干物质基础)

Table 1 Nutrient contents of the basal diet for mice (DM basis)%

项目 Items 含量 Content
粗蛋白质 CP 21.22
粗脂肪 EE 6.00
粗纤维 CF 2.00
粗灰分 Ash 6.60
钙 Ca 1.20
总磷 TP 0.93

1.2 试验设计

试验选用健康、4周龄、初始体重为(19.71±1.04) g的无特定病原体(SPF)级ICR雄性小鼠40只,随机分为4组(每组10只),分别为对照组、攻毒组、试验Ⅰ组和试验Ⅱ组。小鼠于鼠笼中饲养,自由采食和饮水,适应性饲养7 d后进行正式试验,正试期22 d。在正式试验第1~17天,对照组和攻毒组小鼠饲喂基础饲粮,每天灌胃0.2 mL的生理盐水;试验Ⅰ组和试验Ⅱ组小鼠饲喂基础饲粮,每天分别灌胃1×10⁸和1×10⁹ CFU/mL的牛源罗伊氏乳杆菌菌悬液0.2 mL[16-17];在正式试验第18~22天,对照组小鼠每天灌胃0.2 mL的生理盐水,其他组小鼠每天灌胃5×10⁹ CFU/mL的ETEC菌悬液0.2 mL进行攻毒[18]。攻毒结束后,各组随机选取6只小鼠采集血液,静置30 min后,4 ℃下以3 092×g离心10 min,制备血清,-20 ℃保存,用于进一步分析。小鼠眼球摘除采血后经乙醚麻醉,采用颈椎脱臼法处死,迅速打开腹腔,取胸腺、脾脏、心脏、肾脏,用于脏器指数分析;同时,采集小鼠空肠组织,用磷酸盐缓冲溶液(PBS)冲洗去除肠道内容物,置于4%多聚甲醛中固定48 h,用于肠道组织形态学分析。

1.3 检测指标

1.3.1 饲粮营养成分含量测定

小鼠饲粮中粗蛋白质、粗灰分、粗纤维、粗脂肪、总磷、钙含量分别参照GB/T 6432—2018、GB/T 6438—2007、GB/T 6434—2022、GB/T 6433—2006、GB/T 6437—2018、GB/T 6436—2018中的方法测定。

1.3.2 生长性能的测定

分别于ETEC攻毒前、试验结束后对小鼠进行称重,以平均日增重(ADG)为指标,分析大肠杆菌感染对小鼠生长性能的影响。称量前小鼠断粮、不断水。

平均日增重(g/d)=[试验结束后体重(g)-攻毒前体重(g)]/攻毒天数(d)。

1.3.3 脏器指数的测定

取出小鼠胸腺、脾脏、心脏和肾脏后,用PBS冲洗,使用滤纸吸干表面水分,称重。参考Yang等[19]描述的方法进行脏器指数计算:

脏器指数(%)=[脏器重量(g)/活体重量(g)]×100。

1.3.4 血清指标的测定

采用ELISA试剂盒测定小鼠血清中IgA、IgM、IgG、TNF-α、IL-1β、IL-6、IL-10、SOD、GSH-Px、CAT、MDA、D-LA、DAO和ET的含量或活性,试验操作严格按照试剂盒说明书进行。

1.3.5 空肠组织形态的测定

空肠组织采用Hu等[20]描述的苏木精-伊红(HE)染色法制作切片后用于组织形态学分析。主要步骤为:肠道组织在4%多聚甲醛中固定48 h后—脱水—将组织置于二甲苯中浸没至完全透明—将透明组织置于石蜡中—包埋—切片—37 ℃水浴展片—37 ℃烘箱内烘干—脱蜡—乙醇梯度洗脱—苏木精染色—伊红染色—乙醇梯度脱水—封片—晾干。将制作好的肠道组织切片置于光学显微镜下观察并拍照,测量绒毛高度和隐窝深度,计算绒毛高度/隐窝深度。

1.4 数据处理与统计分析

试验数据在Excel 2016中初步整理后,采用SPSS 26.0软件对数据进行单因素方差分析,并采用Duncan氏法进行多重比较。试验结果以“平均值±标准差”表示,P<0.05为差异显著。

2 结果与分析

2.1 牛源罗伊氏乳杆菌对ETEC攻毒小鼠生长性能的影响

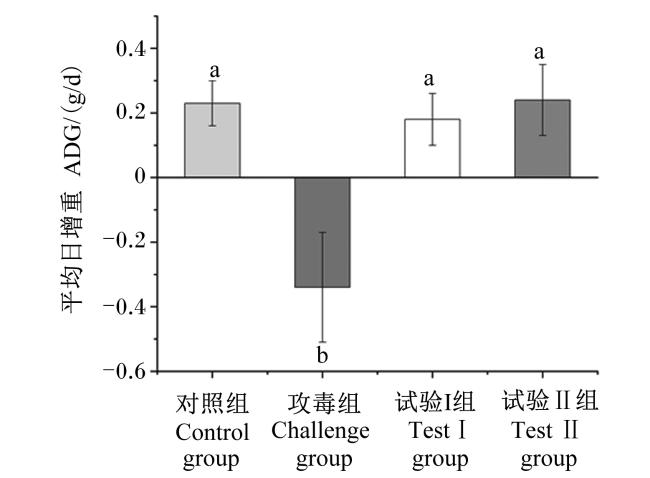
图1所示,ETEC攻毒后,与对照组相比,攻毒组小鼠平均日增重显著降低(P<0.05);灌胃牛源罗伊氏乳杆菌的试验Ⅰ组和试验Ⅱ组小鼠平均日增重有所降低,但与对照组相比无显著差异(P>0.05);同时,试验Ⅰ组和试验Ⅱ组小鼠平均日增重显著高于攻毒组(P<0.05),表明牛源罗伊氏乳杆菌的干预缓解了ETEC感染引起的体重下降,促进了小鼠体重的恢复。
图1 牛源罗伊氏乳杆菌对ETEC攻毒小鼠平均日增重的影响

数据柱形标注不同小写字母表示差异显著(P<0.05)。

Fig.1 Effects of Lactobacillus reuteri from cattle on ADG of mice challenged with ETEC

Value columns with different lowercase letters mean significant difference (P<0.05).

2.2 牛源罗伊氏乳杆菌对ETEC攻毒小鼠脏器指数的影响

表2所示,ETEC攻毒后,攻毒组小鼠的胸腺指数显著低于对照组、试验Ⅰ组和试验Ⅱ组(P<0.05),心脏指数显著高于对照组、试验Ⅰ组和试验Ⅱ组(P<0.05),而灌胃牛源罗伊氏乳杆菌的试验Ⅰ组和试验Ⅱ组小鼠胸腺指数和心脏指数与对照组相比差异不显著(P>0.05);同时,攻毒组、试验Ⅰ组和试验Ⅱ组小鼠脾脏指数低于对照组,但无统计学差异(P>0.05);此外,各组小鼠的肾脏指数无显著差异(P>0.05)。
表2 牛源罗伊氏乳杆菌对ETEC攻毒小鼠脏器指数的影响

Table 2 Effects of Lactobacillus reuteri from cattle on organ indexes of mice challenged with ETEC%

项目
Items
对照组
Control group
攻毒组
Challenge group
试验Ⅰ组
Test Ⅰ group
试验Ⅱ组
Test Ⅱ group
P
P-value
胸腺指数 Thymus index 0.12±0.01a 0.08±0.03b 0.13±0.03a 0.14±0.03a 0.002
脾脏指数 Spleen index 0.54±0.19 0.41±0.12 0.46±0.19 0.40±0.09 0.402
心脏指数 Heart index 0.50±0.05b 0.58±0.06a 0.51±0.05b 0.47±0.06b 0.011
肾脏指数 Kidney index 1.67±0.06 1.66±0.12 1.67±0.14 1.59±0.09 0.571

同行数据肩标不同字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts indicate significant difference (P<0.05), while with the same or no letter superscripts indicate no significant difference (P>0.05). The same as below.

2.3 牛源罗伊氏乳杆菌对ETEC攻毒小鼠血清免疫指标的影响

表3所示,ETEC攻毒后,攻毒组小鼠血清中IgA、IgG、IgM和IL-10含量较对照组显著降低(P<0.05),IL-6、TNF-α和IL-1β含量较对照组显著升高(P<0.05),表明ETEC攻毒引起小鼠机体炎症反应,导致免疫性能显著下降。与对照组相比,灌胃牛源罗伊氏乳杆菌的试验Ⅰ组和试验Ⅱ组小鼠血清中IgA、IgG、IgM和IL-10含量显著降低(P<0.05),TNF-α和IL-1β含量显著升高(P<0.05);但与攻毒组相比较,试验Ⅰ组和试验Ⅱ组小鼠血清中IgG和IL-10含量显著升高(P<0.05),IL-6、TNF-α和IL-1β含量显著降低(P<0.05),并且灌胃高浓度牛源罗伊氏乳杆菌的试验Ⅱ组小鼠血清中IgA和IgM含量也得到显著升高(P<0.05),表明牛源罗伊氏乳杆菌可以通过增强机体体液免疫功能、减轻肠道炎症来降低ETEC对小鼠机体免疫性能的影响。
表3 牛源罗伊氏乳杆菌对ETEC攻毒小鼠血清免疫指标的影响

Table 3 Effects of Lactobacillus reuteri from cattle on serum immune indexes of mice challenged with ETEC

项目
Items
对照组
Control group
攻毒组
Challenge group
试验Ⅰ组
Test Ⅰ group
试验Ⅱ组
Test Ⅱ group
P
P-value
免疫球蛋白A IgA/(g/L) 10.80±1.35a 6.55±1.92c 7.78±0.87c 9.15±1.25b <0.001
免疫球蛋白G IgG/(g/L) 39.73±2.60a 25.53±6.29c 30.40±3.33b 33.12±3.28b <0.001
免疫球蛋白M IgM/(g/L) 21.33±2.78a 12.62±2.75c 14.35±2.15c 17.90±2.68b <0.001
白细胞介素-6 IL-6/(pg/mL) 28.66±3.86c 46.70±4.31a 38.12±4.85b 32.53±4.33c <0.001
白细胞介素-10 IL-10/(pg/mL) 35.47±2.03a 24.10±2.68c 29.42±3.12b 32.37±4.33b <0.001
肿瘤坏死因子-α TNF-α/(pg/mL) 213.39±23.35d 357.42±13.29a 280.94±20.31b 238.83±18.78c <0.001
白细胞介素-1β IL-1β/(pg/mL) 43.27±5.50c 78.15±6.03a 59.94±8.40b 54.96±9.54b <0.001

2.4 牛源罗伊氏乳杆菌对ETEC攻毒小鼠血清抗氧化指标的影响

表4可知,ETEC攻毒后,与对照组相比,攻毒组、灌胃牛源罗伊氏乳杆菌的试验Ⅰ组和试验Ⅱ组小鼠血清中SOD和GSH-Px活性显著降低(P<0.05),同时MDA含量显著升高(P<0.05),表明ETEC攻毒引起了小鼠氧化应激反应。但与攻毒组相比,灌胃牛源罗伊氏乳杆菌显著提高了小鼠血清中GSH-Px活性(P<0.05),显著降低了MDA含量(P<0.05),并且灌胃高浓度牛源罗伊氏乳杆菌还显著提高了小鼠血清中SOD活性(P<0.05)。此外,与对照组相比,攻毒组和灌胃低浓度牛源罗伊氏乳杆菌的试验Ι组小鼠血清中CAT活性显著降低(P<0.05),灌胃高低浓度牛源罗伊氏乳杆菌的试验Ⅱ组小鼠血清中CAT活性与对照组相比无显著差异(P>0.05)。以上研究结果表明,ETEC攻毒可引起小鼠氧化应激,牛源罗伊氏乳杆菌的补饲尤其是高浓度牛源罗伊氏乳杆菌的补饲提高小鼠抗氧化能力的效果显著。
表4 牛源罗伊氏乳杆菌对ETEC攻毒小鼠血清抗氧化指标的影响

Table 4 Effects of Lactobacillus reuteri from cattle on serum antioxidant indexes of mice challenged with ETEC

项目
Items
对照组
Control group
攻毒组
Challenge group
试验Ⅰ组
Test Ⅰ group
试验Ⅱ组
Test Ⅱ group
P
P-value
超氧化物歧化酶SOD/(ng/mL) 68.21±5.58a 48.62±6.03c 53.90±6.06c 61.04±5.57b <0.001
谷胱甘肽过氧化物酶
GSH-Px/(mIU/mL)
729.38±66.17a 487.64±73.14c 642.30±31.32b 673.53±82.46b <0.001
过氧化氢酶 CAT/(pg/mL) 74.79±7.55a 51.76±8.12b 57.18±6.23b 67.69±6.61a <0.001
丙二醛 MDA/(nmol/mL) 3.89±0.60d 6.66±0.53a 5.76±0.48b 4.67±0.37c <0.001

2.5 牛源罗伊氏乳杆菌对ETEC攻毒小鼠血清肠道通透性指标的影响

表5所示,ETEC攻毒后,攻毒组小鼠血清中D-LA、ET含量和DAO活性显著升高(P<0.05),表明小鼠感染ETEC后引起肠道损伤,进而导致肠道通透性增加。与攻毒组相比,灌胃牛源罗伊氏乳杆菌显著降低了小鼠血清中DAO活性(P<0.05),且灌胃高浓度罗伊氏乳杆菌还显著降低了小鼠血清中D-LA和ET含量(P<0.05),表明牛源罗伊氏乳杆菌的补饲尤其是高浓度罗伊氏乳杆菌的补饲对修复ETEC引起的小鼠肠道损伤有着积极作用。
表5 牛源罗伊氏乳杆菌对ETEC攻毒小鼠血清肠道通透性指标的影响

Table 5 Effects of Lactobacillus reuteri from cattle on serum intestinal permeability indexes of mice challenged with ETEC

项目
Items
对照组
Control group
攻毒组
Challenge group
试验Ⅰ组
Test Ⅰ group
试验Ⅱ组
Test Ⅱ group
P
P-value
D-乳酸 D-LA/(μmol/L) 42.85±6.64b 69.02±4.87a 67.61±5.77a 46.92±3.73b <0.001
二胺氧化酶 DAO/(U/mL) 13.74±1.60c 20.00±2.13a 17.30±1.75b 14.43±1.95c <0.001
内毒素 ET/(EU/mL) 45.82±7.62c 67.64±7.31a 62.64±8.14ab 54.82±4.82b <0.001

2.6 牛源罗伊氏乳杆菌对ETEC攻毒小鼠空肠组织形态的影响

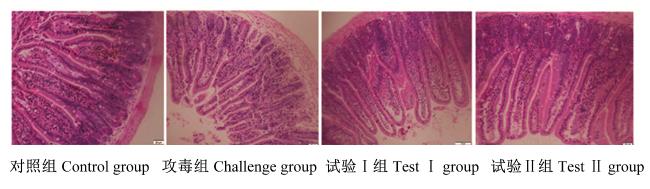
图2所示,ETEC攻毒后,攻毒组小鼠空肠绒毛出现断裂,表明ETEC对空肠组织造成了损伤。由表5可知,与对照组相比,攻毒组小鼠空肠绒毛高度显著降低(P<0.05),试验Ⅰ组和试验Ⅱ组空肠绒毛高度则无显著变化(P>0.05),表明牛源罗伊氏乳杆菌的干预缓解了ETEC导致的小鼠空肠绒毛的损伤。
图2 各组小鼠空肠组织切片

Fig.2 Histologic sections of jejunum of mice in each group (200×)

表6 牛源罗伊氏乳杆菌对ETEC攻毒小鼠空肠绒毛高度、隐窝深度和绒毛高度/隐窝深度的影响

Table 6 Effects of Lactobacillus reuteri from cattle on villus height, crypt depth and V/C in jejunum of mice challenged with ETEC

项目
Items
对照组
Control group
攻毒组
Challenge group
试验Ⅰ组
Test Ⅰ group
试验Ⅱ组
Test Ⅱ group
P
P-value
绒毛高度 Villus height/μm 203.23±18.48a 164.03±15.43b 197.48±9.88a 199.14±16.80a 0.048
隐窝深度 Crypt depth/μm 70.18±3.96 78.81±1.01 77.38±10.25 73.20±12.07 0.580
绒毛高度/隐窝深度 V/C 2.91±0.40 2.08±0.18 2.59±0.43 2.76±0.43 0.064

3 讨论

3.1 牛源罗伊氏乳杆菌对ETEC攻毒小鼠生长性能的影响

Yi等[21]研究报道,在断奶仔猪饲粮中添加5×10¹⁰ CFU/kg的猪源罗伊氏乳杆菌LR1,可显著提高断奶仔猪的平均日增重。Bhogoju等[22]在肉鸡饲粮中添加罗伊氏乳杆菌,发现肉鸡生长性能得到显著提高。汪亚苹[23]对早期补饲牦牛源罗伊氏乳杆菌LR601-1的新生幼鼠体重变化进行分析,发现在罗伊氏乳杆菌LR601-1补饲第2周和第3周,小鼠体重分别得到显著和极显著提高。本研究发现,ETEC攻毒后,与对照组相比,攻毒组小鼠平均日增重显著降低,而灌胃牛源罗伊氏乳杆菌的试验组小鼠的平均日增重未显著下降,表明牛源罗伊氏乳杆菌的早期干预对ETEC菌感染引发的小鼠生长性能的降低具有缓解作用。已有研究表明,益生菌通过产生细菌素、有机酸来拮抗肠道内病原菌感染,增加食糜和黏膜中乳酸菌和厌氧菌等有益菌数量,促进动物生长性能的提高;此外,益生菌还可通过其表面成分和代谢产物缓解炎症反应,增强肠道上皮屏障功能,进而改善动物生长发育[24]。因此,推测牛源罗伊氏乳杆菌的补饲对ETEC感染引发的小鼠体重降低的缓解作用与以上益生菌的益生作用有关。

3.2 牛源罗伊氏乳杆菌对ETEC攻毒小鼠脏器指数的影响

动物的脏器指数是衡量机体生理机能状态的重要指标。胸腺和脾脏是动物重要的免疫器官。胸腺负责T淋巴细胞发育和成熟[25],脾脏含有多种免疫活性细胞及免疫因子,是动物免疫应答的重要场所,在机体炎症反应中发挥十分重要的作用[26]。大肠杆菌侵入感染机体时,会直接或间接导致机体细胞发生氧化损伤,对机体造成功能性障碍,导致机体器官产生损伤。黄诗琦[27]研究报道,大肠杆菌感染后,小鼠的胸腺和脾脏发生萎缩,组织微观结构发生变化,胸腺指数和脾脏指数显著降低。本研究结果与上述前人研究结果一致,发现ETEC攻毒后,攻毒组小鼠胸腺指数较对照组显著降低,脾脏指数也有所降低,表明ETEC攻毒对小鼠免疫器官造成损伤。心脏是机体组成的核心器官,心脏的正常运行是机体赖以生存的重要条件。大肠杆菌可引起机体心脏功能障碍,细菌毒力因子如脂多糖(LPS),是引起心脏炎症和心肌细胞死亡的主要因素。LPS诱导的心脏功能障碍是由多种促炎介质,如IL-1βTNF-αIL-6的过度表达以及活性氧(ROS)的产生介导的[28]。侯元华[29]研究发现,当白羽肉鸡被大肠杆菌侵入感染时,对肉鸡心脏造成氧化应激和损伤,使其心脏指数显著高于正常生长状态的肉鸡。本研究发现,ETEC攻毒后,与对照组相比,攻毒组小鼠心脏指数显著升高,这与前人研究结果相似。已有研究表明,益生菌可直接作用于宿主免疫系统,刺激胸腺、脾脏等免疫器官发育;此外,益生菌中含有多种免疫活性成分,如肽聚糖等,具有和免疫辅佐剂类似的功能,能促进免疫器官的发育,加快免疫器官的成熟[30]。本研究结果显示,牛源罗伊氏乳杆菌的补饲显著提高了小鼠胸腺指数,对改善小鼠脾脏指数也具有积极促进作用,同时显著降低了小鼠的心脏指数,表明牛源罗伊氏乳杆菌能够增强小鼠胸腺和脾脏的免疫功能,进而促进机体免疫力的提升,同时其对ETEC引起的小鼠心脏损伤也具有较好的缓解作用。

3.3 牛源罗伊氏乳杆菌对ETEC攻毒小鼠免疫性能的影响

细胞因子在机体炎症反应过程中起着重要的作用,机体正常状态下,各种促炎因子和抑炎因子保持着相对稳定的平衡状态,当机体受到细菌、病毒等一系列刺激后,这一平衡状态被打破,各种细胞因子的含量发生变化。据文献报道,大肠杆菌细胞壁中含有的LPS可直接诱导炎症反应,并通过启动丝裂原活化蛋白激酶信号通路进一步促进炎性细胞因子的产生[18,31]。免疫球蛋白在免疫系统的防御机制中发挥着重要作用,其中IgA、IgG和IgM是介导机体体液免疫反应的重要效应分子,具有抗菌、免疫调节和启动补体等作用。苗人方等[32]研究发现,小鼠感染大肠杆菌后血清中TNF-α和IL-1β含量显著升高,IgA、IgG和IgM含量显著降低。本研究结果表明,ETEC攻毒后,攻毒组和灌胃牛源罗伊氏乳杆菌的试验Ⅰ组和试验Ⅱ组小鼠血清中促炎因子IL-6、TNF-α和IL-1β含量显著高于对照组,IgA、IgG和IgM含量显著低于对照组,这与上述前人研究结果一致。益生菌可以介导细胞因子的释放而产生免疫调节作用,同时产生的细胞因子可以刺激B淋巴细胞分泌IgA、IgG和IgM,活化辅助性T淋巴细胞和巨噬细胞等进行免疫调节。Griet等[33]在LPS刺激的小鼠巨噬细胞的体外试验中发现,罗伊氏乳杆菌CRL1098可以降低促炎介质如环氧合酶-2(COX-2)、一氧化氮合酶(NOS)和促炎细胞因子TNF-α和IL-6的产生。本研究结果表明,牛源罗伊氏乳杆菌的补饲使小鼠血清中IL-6、TNF-α和IL-1β含量显著降低,IgA、IgG和IgM含量显著升高,这与前人研究结果类似,表明牛源罗伊氏乳杆菌可通过调节细胞免疫改变血清中细胞因子和免疫球蛋白含量,增强机体的免疫功能。IL-10是一种免疫调节细胞因子,在各种炎症反应中通过抑制促炎细胞因子,如IFN-γ、TNF-α、IL-1β和IL-6等,来调节宿主的免疫反应,减轻炎症期间的细胞损伤[34]。在本研究中,与攻毒组相比,试验Ⅰ组和试验Ⅱ组小鼠血清中IL-10含量显著升高,而IFN-γ、TNF-α和IL-6含量显著降低,也证实了这一观点。同时,这与前人研究得出的益生菌可以通过Toll样受体与肠黏膜上皮细胞结合来释放细胞因子调控免疫T细胞的表达,产生IL-10等增强机体免疫能力的结果类似[35],推测牛源罗伊氏乳杆菌可通过刺激抗炎细胞因子IL-10的分泌,抑制促炎因子的分泌来减轻炎症反应对机体的损伤。总的来说,牛源罗伊氏乳杆菌能够提高机体免疫能力,减轻炎症反应,进而降低ETEC对小鼠机体造成的损伤。

3.4 牛源罗伊氏乳杆菌对ETEC攻毒小鼠抗氧化能力的影响

SOD、CAT和GSH-Px等抗氧化酶构成了抗氧化防御的第1道防线,在宿主生物系统的全面防御机制中起着关键作用。组织或血液中抗氧化酶活性较高,表明机体具有较强的抗氧化能力。SOD可以催化超氧阴离子自由基( O 2 -·)转化为过氧化氢(H2O2)和氧气(O2),CAT通过分解H2O2参与细胞的抗氧化防御[36],GSH-Px可防止磷脂膜、酶和自由基的损伤。本研究发现,ETEC攻毒后,与攻毒组相比,灌胃高浓度牛源罗伊氏乳杆菌的试验Ⅱ组小鼠血清中SOD、CAT和GSH-Px的活性显著升高,推测牛源罗伊氏乳杆菌通过降低 O 2 -·和过氧化物自由基的数量来减轻ETEC对机体的氧化损伤。MDA是细胞内脂质过氧化的产物,也是一种重要的氧化应激指标。在本研究中,与攻毒组相比,灌胃牛源罗伊氏乳杆菌显著降低了ETEC攻毒小鼠血清中MDA含量,此研究结果与唐佳等[37]报道的灌服罗伊氏乳杆菌可显著提高患有坏死性小肠结肠炎小鼠降低肠道组织中MDA含量的结果相似。总的来说,牛源罗伊氏乳杆菌提高了ETEC感染小鼠的抗氧化能力,可以通过提高抗氧化酶的活性来缓解ETEC对机体的氧化损伤。

3.5 牛源罗伊氏乳杆菌对ETEC攻毒小鼠肠道通透性的影响

D-LA由肠道细菌发酵产生,通常作为细菌感染的标志。DAO是小肠黏膜上层绒毛中具有高度活性的细胞内酶,能够反映肠道机械屏障的完整性和受损伤程度。机体在受到应激、创伤时会引起肠道屏障功能受损,肠壁通透性增加,进而促进D-LA、DAO进入血液循环[38]。通常D-LA、DAO和ET是评价肠道屏障功能的重要标志物,其在血清中的活性或含量与肠道通透性呈正相关[39]。研究表明,致病性大肠杆菌感染会诱导肠上皮细胞凋亡、降低紧密连接和黏附连接蛋白的表达,破坏肠道上皮细胞紧密连接的完整性,进而引起肠屏障功能损伤和肠道通透性增加[3,40]。与前人研究结果相似,本研究发现ETEC攻毒后,小鼠血清中DAO活性和D-LA、ET含量显著升高。益生菌表面蛋白和代谢产物等可诱导黏蛋白表达,增强肠上皮紧密连接,保护肠上皮细胞,减轻炎症,从而增强肠上皮屏障功能,降低肠道通透性[41],如副干酪乳杆菌显著降低了大肠杆菌O8攻毒小鼠血浆中DAO活性和连蛋白(Zonulin)含量[42],唾液乳杆菌显著降低了LPS攻毒仔猪血清中D-LA含量和DAO活性[43]。本研究结果表明,与攻毒组相比,灌胃牛源罗伊氏乳杆菌显著降低了小鼠血清中DAO活性,灌胃高浓度牛源罗伊氏乳杆菌还显著降低了小鼠血清中D-LA和ET含量,表明一定浓度的罗伊氏乳杆菌可抑制大肠杆菌肠毒素的产生,有效缓解ETEC感染引起的小鼠肠道通透性的增加。

3.6 牛源罗伊氏乳杆菌对ETEC攻毒小鼠肠道组织形态的影响

绒毛高度、隐窝深度及绒毛高度/隐窝深度是评价小肠完整程度的重要参考指标。小肠绒毛主要从肠黏膜上皮细胞中摄取氨基酸、葡萄糖和无机盐等物质,给机体供给营养。肠绒毛高度与动物生长性能、消化和吸收能力密切相关。当机体感染大肠杆菌时,肠道屏障受到损伤,小肠绒毛高度显著降低[44-45]。益生菌可以激活细胞有丝分裂并诱导肠上皮细胞增殖,促进绒毛高度的增加[46]。Meng等[47]报道,植物乳杆菌KLDS1.0318通过改善绒毛高度和隐窝深度,较好地恢复了环磷酰胺诱导的小鼠异常肠道组织形态。本研究结果表明,与攻毒组相比,灌胃牛源罗伊氏乳杆菌使小鼠空肠绒毛高度显著升高,推测牛源罗伊氏乳杆菌可以提高小鼠肠道上皮细胞的屏障完整性,缓解ETEC感染导致的肠道损伤。

4 结论

牛源罗伊氏乳杆菌的补饲能够缓解ETEC感染引起的小鼠体重下降,对小鼠脏器指数的改善、机体免疫功能和抗氧化能力的提高具有积极促进作用,同时对ETEC感染导致的肠道损伤具有保护作用。
[1]
ZHANG Y C, TAN P, ZHAO Y, et al. Enterotoxigenic Escherichia coli:intestinal pathogenesis mechanisms and colonization resistance by gut microbiota[J]. Gut Microbes, 2022, 14(1):2055943.

[2]
王栋. 腐殖酸钠对大肠杆菌致肠道损伤的保护作用及对犊牛腹泻的防控研究[D]. 博士学位论文. 哈尔滨: 东北农业大学, 2023.

WANG D. Protective effect of sodium humate on intestinal injury induced by Escherichia coli and study on the prevention and control of diarrhea in calves[D]. Ph.D.Thesis. Harbin: Northeast Agricultural University, 2023. (in Chinese)

[3]
何利娜. 致病性E. coli O1对新生犊牛肠道菌群、机体免疫及代谢的影响机制[D]. 博士学位论文. 呼和浩特: 内蒙古农业大学,2023:38-44.

HE L N. Effect mechanism of pathogenic E. coli O1 on intestinal flora,immunity and metabolism of newborn calves[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University,2023:38-44. (in Chinese)

[4]
HE Z Y, MA Y L, YANG S R, et al. Gut microbiota-derived ursodeoxycholic acid from neonatal dairy calves improves intestinal homeostasis and colitis to attenuate extended-spectrum β-lactamase-producing enteroaggregative Escherichia coli infection[J]. Microbiome, 2022, 10(1):79.

[5]
PEREIRA R V V, CARROLL L M, LIMA S, et al. Impacts of feeding preweaned calves milk containing drug residues on the functional profile of the fecal microbiota[J]. Scientific Reports, 2018, 8(1):554.

DOI PMID

[6]
KELSEY A J, COLPOYS J D. Effects of dietary probiotics on beef cattle performance and stress[J]. Journal of Veterinary Behavior:Clinical Applications and Research, 2018,27:8-14.

[7]
吴妍妍. 大肠杆菌K99致腹泻犊牛肠道菌群变化及微生态制剂调控效果研究[D]. 博士学位论文. 河子: 石河子大学,2022:62-75.

WU Y Y. Changes of gut microbiota in calves with diarrhea due to Escherichia coli K99 and study on the control effect of probiotics[D]. Ph.D.Thesis. Shihezi: Shihezi University,2022:62-75. (in Chinese)

[8]
BAILLO A, VILLENA J, ALBARRACÍN L, et al. Lactiplantibacillus plantarum strains modulate intestinal innate immune response and increase resistance to enterotoxigenic Escherichia coli infection[J]. Microorganisms, 2022, 11(1):63.

[9]
PUPA P, APIWATSIRI P, SIRICHOKCHATCHAWAN W, et al. Microencapsulated probiotic Lactiplantibacillus plantarum and/or Pediococcus acidilactici strains ameliorate diarrhoea in piglets challenged with enterotoxigenic Escherichia coli[J]. Scientific Reports, 2022, 12(1):7210.

[10]
张如春, 司华哲, 陈双双, 等. 罗伊氏乳杆菌在畜禽生产中应用的研究进展[J]. 动物营养学报, 2019, 31(3):1031-1036.

ZHANG R C, SI H Z, CHEN S S, et al. Research progress on application of Lactobacillus reuteri in livestock husbandry[J]. Chinese Journal of Animal Nutrition, 2019, 31(3):1031-1036. (in Chinese)

[11]
吴胜男, 胡胜兰, 蒋宗勇, 等. 罗伊氏乳杆菌调节肠黏膜屏障功能的作用及机制[J]. 动物营养学报, 2021, 33(9):4861-4869.

DOI

WU S N, HU S L, JIANG Z Y, et al. Role and mechanism of Lactobacillus reuteri in regulating intestinal mucosal barrier function[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):4861-4869. (in Chinese)

[12]
LI S Q, QI C, ZHU H L, et al. Lactobacillus reuteri improves gut barrier function and affects diurnal variation of the gut microbiota in mice fed a high-fat diet[J]. Food & Function, 2019, 10(8):4705-4715.

[13]
洪伟彬. 乳杆菌对断奶仔猪生产性能和肠道健康的影响[D]. 硕士学位论文. 广州: 华南农业大学,2016:22-30.

HONG W B. Effect of Lactobacillus on growth performance and mucosal immunity in weaned piglets[D]. Master’s Thesis. Guangzhou: South China Agricultural University,2016:22-30. (in Chinese)

[14]
HOU M, LU Y B, YE M J, et al. Characterization and assessment of sheep-origin probiotic Bacillus licheniformis B63 strain for potential use in intestinal health and disease[J/OL]. Probiotics and Antimicrobial Proteins, 2023.(2023-10-24)[2024-04-01]. https://link.springer.com/article/10.1007/s12602-023-10172-5#citeas.

[15]
李元元, 李鑫, 何泽纯, 等. 牛源乳酸菌的分离鉴定及体外益生特性研究[J]. 动物营养学报, 2024, 36(1):626-636.

DOI

LI Y Y, LI X, HE Z C, et al. Isolation and identification of lactic acid bacteria from calves and their probiotic properties in vitro[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):626-636. (in Chinese)

[16]
LI Y Y, LI X, NIE C X, et al. Effects of two strains of Lactobacillus isolated from the feces of calves after fecal microbiota transplantation on growth performance,immune capacity,and intestinal barrier function of weaned calves[J]. Frontiers in Microbiology, 2023,14:1249628.

[17]
伊婷, 乔家运, 李玉鹏, 等. 植物乳杆菌对小鼠体重、炎症反应及肠道健康的影响[J]. 动物营养学报, 2023, 35(4):2668-2676.

DOI

YI T, QIAO J Y, LI Y P, et al. Effects of Lactobacillus plantarum on body weight,inflammatory response and intestinal health of mice[J]. Chinese Journal of Animal Nutrition, 2023, 35(4):2668-2676. (in Chinese)

[18]
王兆雨, 吴晓宇, 裴小琪, 等. 生物活性肽对产肠毒素大肠杆菌诱导的小鼠肠道损伤的缓解作用[J]. 动物营养学报, 2023, 35(7):4659-4667.

DOI

WANG Z Y, WU X Y, PEI X Q, et al. Mitigative effects of bioactive peptide on intestinal injury of mice induced by enterotoxigenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4659-4667. (in Chinese)

[19]
YANG J X, MARIA T C, ZHOU B, et al. Quercetin improves immune function in arbor acre broilers through activation of NF-κB signaling pathway[J]. Poultry Science, 2020, 99(2):906-913.

DOI PMID

[20]
HU J, CHEN L L, ZHENG W Y, et al. Lactobacillus frumenti facilitates intestinal epithelial barrier function maintenance in early-weaned piglets[J]. Frontiers in Microbiology, 2018,9:897.

[21]
YI H B, WANG L, XIONG Y X, et al. Effects of Lactobacillus reuteri LR1 on the growth performance,intestinal morphology,and intestinal barrier function in weaned pigs[J]. Journal of Animal Science, 2018, 96(6):2342-2351.

[22]
BHOGOJU S, KHWATENGE C N, TAYLOR-BOWDEN T, et al. Effects of Lactobacillus reuteri and Streptomyces coelicolor on growth performance of broiler chickens[J]. Microorganisms, 2021, 9(6):1341.

[23]
汪亚苹. 牦牛源罗伊氏乳酸杆菌早期补饲对宿主肠道微生物发育的影响[D]. 博士学位论文. 武汉: 华中农业大学,2023:64-84.

WANG Y P. Effects of early administration of Lactobacillus reuteri isolated from yaks on host intestinal microbiome[D]. Ph.D.Thesis. Wuhan: Huazhong Agricultural University,2023:64-84. (in Chinese)

[24]
ZHU C P, YAO J C, ZHU M N, et al. A Meta-analysis of Lactobacillus-based probiotics for growth performance and intestinal morphology in piglets[J]. Frontiers in Veterinary Science, 2022,9:1045965.

[25]
PABST R. The thymus is relevant in the migration of mature lymphocytes[J]. Cell and Tissue Research, 2019, 376(1):19-24.

DOI PMID

[26]
PEREZ O A, YEUNG S T, VERA-LICONA P, et al. CD169+ macrophages orchestrate innate immune responses by regulating bacterial localization in the spleen[J]. Science Immunology, 2017, 2(16):eaah5520.

[27]
黄诗琦. 鸡血藤黄酮对大肠杆菌败血症的调节作用研究[D]. 硕士学位论文. 南宁: 广西大学,2019:60-70.

HUANG S Q. Regulatory effect of flavonoids from Spatholobus suberectus Dunn on Escherichia coli sepsis[D]. Master’s Thesis. Nanning: Guangxi University,2019:60-70. (in Chinese)

[28]
GUO H R, ZUO Z C, WANG F Y, et al. Attenuated cardiac oxidative stress,inflammation and apoptosis in obese mice with nonfatal infection of Escherichia coli[J]. Ecotoxicology and Environmental Safety, 2021,225:112760.

[29]
侯元华. 牛磺酸对大肠杆菌感染肉鸡心脏损伤的保护作用研究[D]. 硕士学位论文. 沈阳: 沈阳农业大学,2022:22-37.

HOU Y H. Study on the protective effect of taurine on heart injury in broiler chickens infected with E.coli[D]. Master’s Thesis. Shenyang: Shenyang Agricultural University,2022:22-37. (in Chinese)

[30]
王一涵, 刘明宇, 黄帆, 等. 益生菌调节家禽免疫机制的研究进展[J]. 中国家禽, 2018, 40(19):45-48.

WANG Y H, LIU M Y, HUANG F, et al. Research advances on effects of probiotics the regulation of immune function in poultry[J]. China Poultry, 2018, 40(19):45-48. (in Chinese)

[31]
REN C X, WANG Y J, LIN X F, et al. A combination of formic acid and monolaurin attenuates enterotoxigenic Escherichia coli induced intestinal inflammation in piglets by inhibiting the NF-κB/MAPK pathways with modulation of gut microbiota[J]. Journal of Agricultural and Food Chemistry, 2020, 68(14):4155-4165.

[32]
苗人方, 吴凯, 孙媛之, 等. 植物精油复合三丁酸甘油酯对大肠杆菌攻毒小鼠生长性能、血液指标和肠道形态的影响[J]. 动物营养学报, 2024, 36(1):592-601.

DOI

MIAO R F, WU K, SUN Y Z, et al. Effects of plant essential oil combined with tributyrin on growth performance,blood indices and intestinal morphology of mice challenged with Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2024, 36(1):592-601. (in Chinese)

[33]
GRIET M, ZELAYA H, MATEOS M V, et al. Soluble factors from Lactobacillus reuteri CRL1098 have anti-inflammatory effects in acute lung injury induced by lipopolysaccharide in mice[J]. PLoS One, 2014, 9(10):e110027.

[34]
ABDEL-MONEIM A M E, SELIM D A, BASUONY H A, et al. Effect of dietary supplementation of Bacillus subtilis spores on growth performance,oxidative status,and digestive enzyme activities in Japanese quail birds[J]. Tropical Animal Health and Production, 2020, 52(2):671-680.

[35]
MALDONADO GALDEANO C, CAZORLA S I, LEMME DUMIT J M, et al. Beneficial effects of probiotic consumption on the immune system[J]. Annals of Nutrition and Metabolism, 2019, 74(2):115-124.

DOI PMID

[36]
IGHODARO O M, AKINLOYE O A. First line defence antioxidants-superoxide dismutase (SOD),catalase (CAT) and glutathione peroxidase (GPX):their fundamental role in the entire antioxidant defence grid[J]. Alexandria Journal of Medicine, 2018, 54(4):287-293.

[37]
唐佳, 郭春宝, 龚放. 罗伊氏乳杆菌对坏死性小肠结肠炎氧化应激的保护机制[J]. 南方医科大学学报, 2019, 39(10):1221-1226.

TANG J, GUO C B, GONG F. Protective effect of Lactobacillus reuteri against oxidative stress in neonatal mice with necrotizing enterocolitis[J]. Journal of Southern Medical University, 2019, 39(10):1221-1226. (in Chinese)

[38]
王树玲, 赵胜兵, 方军, 等. 应激及肠道屏障功能障碍在炎症性肠病中的作用[J]. 世界华人消化杂志, 2016, 24(21):3248-3254.

WANG S L, ZHAO S B, FANG J, et al. Role of stress and intestinal barrier dysfunction in inflammatory bowel disease[J]. World Chinese Journal of Digestology, 2016, 24(21):3248-3254. (in Chinese)

[39]
王栋, 何炎峻, 柳可欣, 等. 腐殖酸钠对肠产毒素性大肠杆菌K88感染小鼠肠道损伤的保护作用[J]. 动物营养学报, 2022, 34(6):3991-4002.

DOI

WANG D, HE Y J, LIU K X, et al. Protective effects of sodium humate on intestinal damage in mice infected with enterotoxigenic Escherichia coli K88[J]. Chinese Journal of Animal Nutrition, 2022, 34(6):3991-4002. (in Chinese)

DOI

[40]
LEDWABA S E, COSTA D V S, BOLICK D T, et al. Enteropathogenic Escherichia coli infection induces diarrhea,intestinal damage,metabolic alterations,and increased intestinal permeability in a murine model[J]. Frontiers in Cellular and Infection Microbiology, 2020,10:595266.

[41]
CHANG S Y, SONG M H, LEE J H, et al. Phytogenic feed additives alleviate pathogenic Escherichia coli-induced intestinal damage through improving barrier integrity and inhibiting inflammation in weaned pigs[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):107.

[42]
REN S N, CHEN A R G, TIAN Y P, et al. Lactobacillus paracasei from koumiss ameliorates diarrhea in mice via tight junctions modulation[J]. Nutrition, 2022,98:111584.

[43]
YU Y, LI Q, ZENG X F, et al. Effects of probiotics on the growth performance,antioxidant functions,immune responses,and caecal microbiota of broilers challenged by lipopolysaccharide[J]. Frontiers Veterinary Science, 2022,9:846649.

[44]
ZHANG Y Y, TIAN X R, DONG Y, et al. Bacillus coagulans prevents the decline in average daily feed intake in young piglets infected with enterotoxigenic Escherichia coli K88 by reducing intestinal injury and regulating the gut microbiota[J]. Frontiers in Cellular and Infection Microbiology, 2023,13:1284166.

[45]
MANAFI M, KHALAJI S, HEDAYATI M, et al. Efficacy of Bacillus subtilis and bacitracin methylene disalicylate on growth performance,digestibility,blood metabolites,immunity,and intestinal microbiota after intramuscular inoculation with Escherichia coli in broilers[J]. Poultry Science, 2017, 96(5):1174-1183.

[46]
ABD EL-HACK M E, EL-SAADONY M T, SHAFI M E, et al. Probiotics in poultry feed:a comprehensive review[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(6):1835-1850.

[47]
MENG Y, WANG J, WANG Z, et al. Lactobacillus plantarum KLDS1.0318 ameliorates impaired intestinal immunity and metabolic disorders in cyclophosphamide-treated mice[J]. Frontiers in Microbiology, 2019,10:00731.

Outlines

/