REVIEW

Effects of Methionine on Liver Health of Ruminants and Its Mechanisms

  • JIANG Jiali ,
  • XI Minjie ,
  • WANG Bo ,
  • ZHANG Ruiyang , *
Expand
  • College of Veterinary and Animal Science, Shenyang Agricultural University, Shenyang 110866, China
* lecturer, E-mail:

Received date: 2024-05-18

  Online published: 2024-11-09

Abstract

Methionine is the first limiting amino acid in ruminants, which has multiple physiological functions, such as glucose and lipid metabolism, anti-inflammatory and antioxidant. Due to the degradation of rumen microbiota, rumen protected methionine (RPM) is often used to supplement ruminants with methionine in production. As the metabolic center of nutrients and important immune organ in ruminants, liver health is closely related to animal performance and health. Recent studies have demonstrated that methionine has regulatory effects on liver metabolism and functions, thus maintaining the liver health of ruminants. Therefore, the present study mainly reviews the physicochemical properties and nutritional functions of methionine, the types of RPM and its absorption, the effects and mechanisms of methionine on the liver health of ruminants. The present study may provide scientific basis and theoretical reference for the application of RPM in ruminant production.

Cite this article

JIANG Jiali , XI Minjie , WANG Bo , ZHANG Ruiyang . Effects of Methionine on Liver Health of Ruminants and Its Mechanisms[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 6853 -6863 . DOI: 10.12418/CJAN2024.584

蛋氨酸是反刍动物的第一限制性氨基酸,除可直接参与蛋白质合成外,还具有内源性抗氧化、抗炎、调节机体免疫等作用[1-2]。动物机体对蛋氨酸的需要量远高于自身合成量,无法满足生产需要,常需在饲粮中额外添加。然而,研究显示,蛋氨酸在瘤胃中仅能稳定存在3~4 h,其易在微生物作用下发生脱氨氧化[3]。因此,过瘤胃蛋氨酸(rumen protected methionine,RPM)在反刍动物上的应用研究备受关注。研究表明,RPM可有效降低瘤胃微生物对蛋氨酸的降解,为反刍动物高效补充蛋氨酸,在改善反刍动物乳成分、增加体增重和提高体内氮沉积等方面有重要作用[4-6]
动物机体内的蛋氨酸主要在肝脏中进行代谢,研究显示48%的蛋氨酸代谢以及其中85%的甲基化反应均发生在肝脏中[7-8]。肝脏是动物机体重要的代谢和免疫器官,其健康状况与动物机体密切相关,而营养物质可通过对肝脏代谢及其功能进行调控以维护肝脏及机体健康[9]。例如,肝脏中糖、脂代谢异常是反刍动物酮病、脂肪肝等慢性代谢疾病多发的重要诱因,而饲粮添加RPM可通过促进肝脏中糖异生、游离脂肪酸代谢,进而缓解围产期奶牛能量负平衡状态,降低酮病发生率[10]。然而,目前有关蛋氨酸调控反刍动物肝脏代谢及其功能,进而影响其肝脏健康的研究不够深入,且系统性不强。因此,本文结合国内外研究进展,对蛋氨酸的理化性质及营养作用、RPM类型及其吸收进行概述,并对蛋氨酸对反刍动物肝脏健康的影响与机制展开综述,旨在为RPM在反刍动物生产中的应用提供科学依据和理论参考。

1 蛋氨酸的理化性质及营养作用

蛋氨酸,又称甲硫氨酸,化学分子式为CH3SCH2CH2CH(NH2)COOH,相对分子质量为149.21,是动物体内唯一的含硫必需氨基酸。蛋氨酸为具有旋光性的化合物,主要分为L型、D型和DL型,在动物机体内主要以L型进行吸收利用。作为反刍动物的第一限制性氨基酸,蛋氨酸在反刍动物机体中发挥着重要作用。蛋氨酸可作为蛋白质的起始氨基酸参与多肽及蛋白质的合成;可调控肝脏的糖、脂代谢,防止脂质过度沉积引发肝脏疾病;可通过转硫途径生成谷胱甘肽(glutathione,GSH)、牛磺酸(taurine,Tau)等抗氧化物质,在缓解机体炎症、提高抗氧化能力中起到重要调控作用[1,11-13]。基于上述营养作用,已有研究证实蛋氨酸在促进畜禽动物生长、提高生产和繁殖性能、增强机体免疫等方面发挥着重要作用[4,14]

2 RPM

2.1 RPM的类型

因瘤胃微生物的降解,饲粮中直接添加蛋氨酸会导致到达小肠的可利用蛋氨酸数量大幅减少,降低其生物利用率。有研究表明,蛋氨酸在瘤胃内的损失率可高达20%~60%[14]。因此,反刍动物生产中常采用过瘤胃技术对蛋氨酸进行处理,以减少瘤胃内的降解损失,提高到达小肠的蛋氨酸水平。
RPM又称瘤胃保护性氨基酸,是指通过对单体蛋氨酸进行加工处理,增加蛋氨酸的瘤胃通过率,从而有效保证到达小肠的蛋氨酸数量。目前,可根据其过瘤胃保护原理将过瘤胃技术分为物理包被法与化学修饰法。物理包被法是通过对蛋氨酸外部采用特殊材料(如脂肪酸、纤维素类及其衍生物等)进行包覆或微囊化处理,使蛋氨酸到达瘤胃时不易被分解而提高其利用率;而化学修饰法是采用化学手段改变蛋氨酸的化学结构,对蛋氨酸进行加工,处理成螯合物、羟基类似物等,如蛋氨酸鳌合铜、羟基蛋氨酸钙(methionine hydroxy analogue calcium,MHA-Ca)及2-羟基-4-甲硫基丁酸异丙酯[HMBi]等。

2.2 RPM的吸收与转化

目前,物理包被法存在保护不够或过度保护的隐患,因此,有关RPM的深入研究主要集中在成本相对较低、通过化学修饰法生产的蛋氨酸羟基类似物的衍生物(如HMBi和MHA-Ca)上[15]。研究表明,HMBi在反刍动物体内的降解主要有以下3个方式[16]:1)被瘤胃壁快速吸收,并代谢为2-羟基-4-甲硫基丁酸[HMB],随血液循环主要运送至肝脏进行代谢;2)被瘤胃微生物降解利用,为菌体蛋白合成提供材料;3)未被瘤胃微生物降解,经释放进入后消化道,以蛋氨酸的形式被肠道吸收。MHA-Ca是将DL-蛋氨酸的氨基进行修饰做羟甲基化处理,避免在瘤胃内被脱氨基,到达真胃后被胃酸转化为HMB[17-18]。HMB可在L-2-羟基酸氧化酶(L-2-hydroxy acid oxidase,L-HAOX)或D-2-羟基酸脱氢酶(D-2-hydroxy acid dehydrogenase,D-HADH)的催化作用下生成α-酮酸与2-酮基-4-甲硫基-丁酸(KMB),进而在转氨酶作用下转化为L-蛋氨酸供机体吸收利用[19]。McCollum等[20]研究表明,绵羊瘤胃、肝脏、肾脏等器官中均发现L-HAOX与D-HADH的存在,但L-HAOX在肝脏中的活性显著高于其他器官,该结果表明肝脏是反刍动物HMB转化为蛋氨酸的重要场所。另外,林奕等[21]利用放射追踪法研究HMBi在反刍动物体内吸收分布情况时,推测HMBi降解时脱落的异丙醇可能通过瘤胃壁吸收或嗳气损失;同时发现肝脏中标记于HMBi羰基上的放射性分布比例远高于异丙基。综上所述,推测蛋氨酸羟基类似物的衍生物这类RPM在反刍动物肝脏内代谢以HMB转化为蛋氨酸为主,而非异丙醇等其他结合物质。然而,目前有关RPM的研究多侧重于其应用效果,其吸收转运的分子机制并未完全明确,未来应结合当前先进的研究手段进一步系统性研究RPM在反刍动物体内的消化、吸收及转运过程。

3 蛋氨酸对反刍动物肝脏健康的影响及其机制

肝脏作为动物机体关键的代谢器官,在营养物质(碳水化合物、脂肪和蛋白质等)代谢、抗氧化、抗炎、免疫调节等方面发挥着重要作用[22]。动物饲粮中的营养物质在胃肠道中被降解和吸收,并在肝脏中进行代谢与重分配,再随外周循环供给全身各组织细胞利用。因此,肝脏健康与动物机体健康及生产性能的发挥密切相关。动物机体内蛋氨酸的主要代谢场所也在肝脏,研究表明48%的蛋氨酸代谢以及其中85%甲基化反应均在肝脏中进行[7-8]。综上所述,反刍动物肝脏是RPM降解形成的HMB进一步转化为蛋氨酸的重要场所,进而依赖蛋氨酸的代谢过程而发挥生理作用。蛋氨酸在肝脏中主要通过蛋氨酸循环(包括甲基化和再甲基化过程)、转硫途径和蛋氨酸再生途径进行代谢,且在代谢过程中可产生含硫生物活性物质等,直接或间接发挥其生理功能并影响肝脏健康。

3.1 蛋氨酸对肝脏中糖、脂代谢的影响

在动物生长过程中的某些特殊生理阶段,如围产期,机体极易出现能量负平衡(negative energy balance,NEB)状态,肝脏代谢发生紊乱并引发疾病,进而影响反刍动物的生产性能[23-24]。据估计,围产期奶牛能量供应严重不足,其葡萄糖的缺乏量可高达500 g/d[25-26]。反刍动物能量负平衡时机体将会产生大量游离脂肪酸,游离脂肪酸在肝脏内主要通过重新合成甘油三酯、不完全氧化生成酮体、完全氧化进行供能或将甘油三酯结合极低密度脂蛋白排出肝脏这4种不同方式进行代谢。然而,反刍动物产生极低密度脂蛋白的能力非常有限,一旦机体发生能量负平衡,肝脏将无法有效输出甘油三酯,造成脂肪酸在肝脏中积累,并引发代谢性肝脏疾病[27]
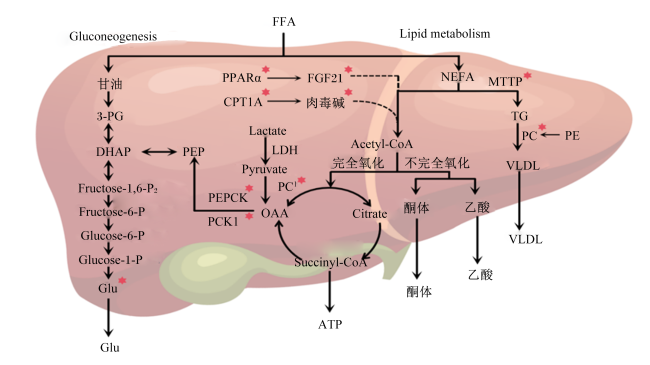
糖、脂代谢异常是围产期反刍动物酮病、脂肪肝等肝脏疾病多发的主要诱因,蛋氨酸可通过促进肝脏内糖异生作用、游离脂肪酸的完全氧化和甘油三酯转运来改善机体能量负平衡状态,进而保障肝脏健康。反刍动物所需的葡萄糖主要来自于肝脏糖异生,该过程受到过氧化物酶体增殖物激活受体α(peroxisome proliferator activated receptor α,PPARα)的调控。Osorio等[28]的研究显示,在饲粮中添加0.19%的RPM可显著增加肝脏中PPARα、丙酮酸羧化酶(pyruvate carboxylase,PC)及磷酸烯醇式丙酮酸羧化酶(phosphoenolpyruvate carboxykinase,PEPCK)的表达。位于肝脏细胞内的PC可催化丙酮酸生成草酰乙酸,而PEPCK可催化草酰乙酸生成磷酸烯醇丙酮酸,两者均为糖异生过程中的关键酶或限速酶[29]。因此,上述关键酶可直接影响糖异生过程及能力。孙菲菲[10]通过在饲粮中添加17.7 g/d的RPM来改善围产期奶牛的胰岛素敏感性,进而达到调控机体糖异生的作用。Jacometo等[30]研究表明,饲粮中添加0.08%的RPM后犊牛体内葡萄糖的含量显著提高,且肝脏PEPCK的编码基因胞质磷酸烯醇式丙酮酸羧激酶1的表达显著上调。综上可知,蛋氨酸能够刺激反刍动物肝脏糖异生基因表达,增强葡萄糖供应,改善肝脏健康。
裴明财等[31]研究表明,在围产前期奶牛饲粮中添加25 g/d的RPM可显著降低其产后外周循环中甘油三酯和高密度脂蛋白的含量,表明补充蛋氨酸具有改善动物肝脏脂质代谢的作用。Osorio等[32]在围产期奶牛饲粮中添加0.19%的RPM,发现可显著增加其肝脏中肉毒碱浓度,并降低肝脏中磷脂酰胆碱浓度、脂肪沉积量和酮病发生率。肉毒碱作为动物可自身合成的类维生素物质,可以辅酶的形式催化脂肪酸的β氧化,通过增强游离脂肪酸的完全氧化,降低因游离脂肪酸不完全氧化而产生的酮体水平,进而改善肝脏健康[33]。磷脂酰胆碱是脂肪代谢过程中的重要物质,甘油三酯可通过消耗磷脂酰胆碱、有效地结合极低密度脂蛋白并以甘油的形式运出体内,减少肝脏脂肪积累。
PPARα作为调控脂肪过氧化酶的主要因子,在调节糖、脂代谢方面发挥着重要作用[34]。成纤维细胞生长因子21(fibroblast growth factor 21,FGF21)作为PPARα的下游靶基因参与调节机体糖、脂代谢及能量稳态维持[35]。Osorio等[28]研究表明,围产期奶牛饲粮补充RPM可通过上调肝脏PPARα、FGF21轴相关基因的表达,进而提高肝脏肉毒碱棕榈酰基转移酶1A(carnitine palmitoyltransferase 1A,CPT1A)和微粒体甘油三酯转运蛋白(microsomal triglyceride transfer protein,MTTP)等与脂质代谢相关基因的表达,从而调控奶牛肝脏脂质代谢和健康。因此,PPARα和FGF21在蛋氨酸调控反刍动物肝脏糖、脂代谢过程中发挥着重要作用。然而,此过程中PPARα是否直接通过调节FGF21的表达诱导肝脏糖原合成、促进脂肪酸氧化尚未见报道,仍需进一步研究明确。
上述研究结果表明,蛋氨酸可通过调节糖异生和脂质代谢相关基因的表达、促进脂质的氧化代谢,改善肝脏中的脂类代谢,防止脂肪沉积,最终避免肝脏代谢紊乱,维护反刍动物肝脏健康。蛋氨酸对反刍动物肝脏糖、脂代谢调控的示意图见图1
图1 蛋氨酸通过糖、脂代谢调控肝脏健康的可能途径

Gluconeogenesis:糖异生;Lipid metabolism:肝脏脂质代谢;FFA:游离脂肪酸free fatty acid;3-PG:3-磷酸甘油酸 3-phosphoglycerate;DHAP:磷酸二羟丙酮 dihydroxyacetone phosphate;Fructose-1,6-P2:果糖-1,6-二磷酸;Fructose-6-P:果糖-6-磷酸;Glucose-6-P:葡萄糖-6-磷酸;Glucose-1-P:葡萄糖-1-磷酸;Glu:葡萄糖glucose;NEFA:非酯化脂肪酸nonesterified fatty acid;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator-activated receptor α;FGF21:成纤维细胞生长因子21 fibroblast growth factor 21;CPT1A:肉毒碱棕榈酰基转移酶1A carnitine palmitoyltransferase 1A;Acetyl-CoA:乙酰辅酶A;Lactate:乳酸;LDH:乳酸脱氢酶 lactic dehydrogenase;Pyruvate:丙酮酸;PEP:磷酸烯醇丙酮酸 phosphoenolpyruvate;PEPCK:磷酸烯醇式丙酮酸激酶 phosphoenolpyruvate carboxykinase;PCK1:磷酸烯醇式丙酮酸羧激酶1 phosphoenolpyruvate carboxykinase 1;PC1:丙酮酸羧化酶 pyruvate carboxylase;OAA:草酰乙酸 oxaloacetic acid;Citrate:柠檬酸;Succinyl-CoA:琥珀酸辅酶A转移酶;MTTP:微粒体甘油三酯转运蛋白 microsomal triglyceride transfer protein;TG:甘油三酯 triglyceride;PC:磷脂酰胆碱phosphatidylcholine;PE:磷脂酰乙醇胺Phosphatidylethanolamine;VLDL:极低密度脂蛋白 very low density lipoprotein。*表示升高 * indicated increase。

Fig.1 Possible pathways of methionine regulating liver health by glucose and lipid metabolism

3.2 蛋氨酸对肝脏中蛋氨酸代谢的影响

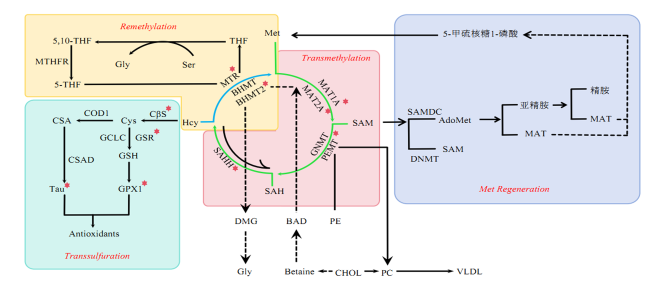
蛋氨酸在肝脏中的代谢主要通过蛋氨酸循环和转硫途径进行,其中蛋氨酸循环包括转甲基化与再甲基化过程。蛋氨酸循环的意义在于避免蛋氨酸在代谢途中损失、可间接重新获取蛋氨酸,以保证体内蛋氨酸水平充足,促进肝脏代谢正常运转;而蛋氨酸通过转硫途径可为肝脏提供抗氧化剂的前体物质,维护肝脏健康。反刍动物饲粮中添加RPM可提高蛋氨酸代谢途径中关键酶的表达,促进肝脏进行蛋氨酸代谢,维护肝脏健康。肝脏蛋氨酸代谢途径及其调控肝脏健康的可能机制见图2
图2 肝脏蛋氨酸代谢途径及其调控肝脏健康的可能机制

MAT1A:蛋氨酸腺苷转移酶1A methionine adenosyltransferase 1A;Transmethylation:转甲基化反应;Remethylation:再甲基化反应;Transsulfuration:转硫反应;Met Regeneration:蛋氨酸再生反应;GSH:谷胱甘肽 glutathione;THF:四氢叶酸 tetrahydrofolate;Met:蛋氨酸 methionine;MAT2A:蛋氨酸腺苷转移酶2A methionine adenosyltransferase 2A;SAH:S-腺苷半胱氨酸S-adenocylhomocysteine;PE:磷脂酰乙醇胺 phosphatidylethanolamine;SAM:S-腺苷同型半胱氨酸 S-adenosylhomcysteine;CDO1:半胱氨酸双加氧酶1 cysteine dioxygenase 1;BHMT2:甜菜碱-同型半胱氨酸-S-甲基转移酶2 betainehomocysteine S-methyltransferase 2;CSA:半胱亚磺酸 cysteine sulfinic acid;GNMT:甘氨酸-N-甲基转移酶 glycine-N-methyltransferase;Gly:甘氨酸 glycine;MTR:5-甲基四氢叶酸-同型半胱氨酸甲基转移酶 5-methyltetrahydrofolate-homocysteine methyltransferase;Ser:丝氨酸 serine;5,10-THF:5,10亚甲基四氢叶酸 5,10-methylenetetrahydrofolate;5-THF:5-甲基四氢叶酸 5-methyltetrahydrofo-late;SAHH:S-腺苷高半胱氨酸水解酶 S-adenosylhomocysteine hydrolase;CHOL:胆碱 choline;PC:磷脂酰胆碱 phosphatidylcholine;PEMT:磷脂酰乙醇胺甲基转移酶 phosphatidy lethanolamine methyltransferase;VLDL:极低密度脂蛋白 very low density lipoprotein;Betaine:甜菜碱;BAD:甜菜碱醛 betaine aldehyde;DMG:二甲基甘氨酸 dimethylglycine;CβS:胱硫醚β合成酶 cystathionine β-synthase;SAMDC:腺苷甲硫氨酸脱羧酶 S-adenosylmethionine decarboxylase;MTHFR:亚甲基四氢叶酸还原酶 methylenetetrahydrofolate reductase;Cys:半胱氨酸 cysteine;GCLC:谷氨酸-半胱氨酸连接酶催化亚基 glutamate-cysteine ligase;Hcy:同型半胱氨酸 homocysteine;GSR:谷胱甘肽还原酶 glutathione reductase;GPX1:谷胱甘肽过氧化物酶1 cysteine dioxygenase 1;CSAD:半胱氨酸亚磺酸脱羧酶 cysteine sulfinic acid decarboxylase;Tau:牛磺酸 taurine;DNMT:DNA甲基转移酶 DNA methyltransferase;AdoMet:腺苷基蛋氨酸 adenosine methionine;MAT:蛋氨酸腺苷转移酶 methionine adenosyltransferase;BHMT:甜菜碱-同型半胱氨酸-S-甲基转移酶 betaine-homocysteine S-methyltranferase。*表示升高 *indicated increase。

Fig.2 Metabolism pathway of hepatic methionine and its possible mechanism for regulating liver health

3.2.1 肝脏蛋氨酸循环途径

在反刍动物肝脏内,蛋氨酸在蛋氨酸腺苷转移酶1A(methionine adenosyltransferase 1A,MAT1A)与蛋氨酸腺苷转移酶2A(methionine adenosyltransferase 2A,MAT2A)激活下转化为S-腺苷甲硫氨酸(S-adenosylhomcysteine,SAM)。作为重要的活性甲基供体,SAM通过甲基转移酶磷脂酰乙醇胺甲基转移酶(phosphatidy lethanolamine methyltransferase,PEMT)催化生成S-腺苷高半胱氨酸(S-adenocylhomocysteine,SAH),继而在腺苷高半胱氨酸水解酶S-腺苷高半胱氨酸水解酶(S-adenosylhomocysteine hydrolase,SAHH)催化下水解为同型半胱氨酸(homocysteine,Hcy,此过程可逆),至此完成转甲基化过程。Hcy在甜菜碱高半胱氨酸甲基转移酶(betaine-homocysteine S-methyltranferase,BHMT)、甜菜碱-同型半胱氨酸-S-甲基转移酶2(betainehomocysteine S-methyltransferase 2,BHMT2)或5-甲基四氢叶酸高半胱氨酸甲基转移酶(5-methyltetrahydrofolate-homocysteine methyltransferase,MTR)的作用下进行再甲基化重新生成蛋氨酸,至此完成蛋氨酸循环过程[36]
通过饲粮补充RPM可上调反刍动物肝脏蛋氨酸循环途径中关键基因的表达,促进蛋氨酸代谢,进而维护肝脏正常功能与健康。Osorio等[37]在围产期奶牛饲粮中添加0.19%的RPM后显著上调肝脏蛋氨酸循环途径中MAT1AMAT2AMTRBHMT2基因的表达量,但BHMT基因的表达量无显著变化。BHMT可促进Hcy向蛋氨酸转化,BMHT2与BHMT的氨基酸蛋白质编码序列具有73%的同源性,其是否具有与BHMT相同的作用尚不明确[38]。另外,Zhou等[2]在饲粮中添加0.08%的RPM后,奶牛肝脏再甲基化途径中MTRMAT1ASAHHPEMT的mRNA表达水平显著提高。MTR可促进Hcy向蛋氨酸转化,进而在MAT1A的作用下促进SAM的生成;PEMT是磷脂酰胆碱合成的关键酶,可进一步将SAM中的3个甲基团转移至磷脂酰乙醇胺,促进磷脂酰胆碱的合成[39]。因此,饲粮补充RPM后可提高蛋氨酸循环中再甲基化途径生成的蛋氨酸及磷脂酰胆碱的水平,进而调控肝脏健康。
由此可见,蛋氨酸可调节反刍动物肝脏中蛋氨酸循环途径中关键基因的表达,加快蛋氨酸循环过程,从而提高蛋氨酸合成以维护肝脏的正常运转。

3.2.2 肝脏转硫途径

转硫途径在反刍动物肝脏代谢中发挥着重要作用,通过该途径可生成机体重要的抗氧化物质。Hcy作为蛋氨酸循环中重要的中间产物,可在胱硫醚β合成酶(cystathionine β-synthase,CβS)催化下水解生成含硫氨基酸——半胱氨酸(cysteine,Cys)[40]。Cys作为机体抗氧化剂可进一步生成GSH和Tau等重要的抗氧化物。Zhou等[2]研究发现,在奶牛围产期至产后饲粮中补充0.08%的RPM,肝脏蛋氨酸转硫途径中的关键酶CβS基因的表达量显著升高。另有研究发现,母体RPM供应导致犊牛肝脏中CβS、半胱氨酸亚磺酸脱羧酶(cysteine sulfinic acid decarboxylase,CSAD)、谷氨酸-半胱氨酸连接酶催化亚基(glutamate-cysteine ligase,GCLC)和谷胱甘肽还原酶(glutathione reductase,GSR)的表达量随产后时间有不同程度的升高[30]。CSAD可催化半胱亚磺酸生成Tau,而Cys可在GCLC和GSR催化下促进GSH的生成。上述结果表明,蛋氨酸可通过增强肝脏转硫途径,促进Tau和GSH生成,进而发挥其抗氧化作用。

3.3 蛋氨酸对肝脏炎症的影响

炎症是机体在受到损伤等外部刺激时激活自身免疫系统以分泌细胞因子的一种保护机制,而在白细胞介素-6(interleukin-6,IL-6)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等促炎因子介导下,肝脏可合成并分泌触珠蛋白和血清淀粉样蛋白A(serum amyloid A,SAA)等急性期蛋白[41]。围产期奶牛机体处于慢性炎症状态,典型特征是触珠蛋白和SAA等阳性急性期蛋白和IL-6和TNF-α等促炎因子分泌增多,而白蛋白等阴性急性期蛋白分泌减少[42-43]。研究发现,饲粮添加RPM可通过降低血浆中IL-6、SAA和触珠蛋白水平,提高白蛋白水平,进而改善围产期奶牛肝脏抗炎能力[32,37,44]。进一步研究证实,饲粮中添加RPM可能通过抑制核因子-κB(nuclear factor-κB,NF-κB)信号通路,减弱IL-6等促炎因子的分泌,进而缓解肝脏炎症[37]。NF-κB作为转录家族敏感因子,在调控机体趋化因子与促炎因子的释放、转录及表达方面发挥着重要作用[45-46]。肝脏受损时NF-κB通路将被激活,并伴随IL-6、TNF-α等促炎因子的释放[37]。另外,丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)是细胞内外信号连接的重要转导模块,参与机体内细胞增殖分化、炎症过程和细胞运动多个生理活动[47]。研究表明,在围产期奶牛饲粮中添加0.09%的RPM后,犊牛肝脏中MAPK6和急性期蛋白生成相关基因乳腺血清淀粉样蛋白A3.2(M-SAA3.2)的mRNA表达水平显著下调,而MAPK12的mRNA表达水平显著上调,提示MAPK信号通路可能参与了蛋氨酸缓解肝脏炎症的过程[13]。然而,机体炎症的发生及调控机制复杂多变,除上述通路外,Janus酪氨酸激酶-信号转导和转录激活因子(Janus kinase-signal transducer and activators of transcription pathway,JAK-STAT)信号通路和NOD样受体热蛋白结构域3(NOD-like receptor family pyrin domain containing 3,NLRP3)等其他经典炎症发生通路或调控因子是否也参与了蛋氨酸调控反刍动物肝脏健康的过程仍需更多研究阐明。

3.4 蛋氨酸对肝脏抗氧化的影响

肝脏易发氧化应激已成为现代养殖业中诱发代谢性疾病和损害畜禽动物机体免疫和健康的重要问题之一。动物机体受到外界刺激时,体内活性氧自由基(reactive oxygen species,ROS)易产生过量,致使动物体内氧化还原失衡引发氧化应激,且长期持续应激会诱导细胞发生凋亡、引发炎症等问题[48]。抗氧化系统是机体清除ROS、维持氧化还原状态平衡和保护机体免受氧化损伤的重要屏障,其中谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)和超氧化物歧化酶(superoxide dismutase,SOD)等抗氧化酶以及GSH等抗氧化物质起着重要作用[37,49]
蛋氨酸可促进动物机体内GSH等抗氧化物质的从头合成过程,提高机体清除ROS的能力,进而缓解肝脏氧化应激。肝脏中GSH和Tau是机体氧化状态的标志物,其中GSH是动物机体内最为丰富的内源性抗氧化剂,可高效清除ROS,缓解氧化应激[50];Tau则主要在肝脏合成并释放进入外周循环,因此血浆中Tau含量可反映其肝脏氧化功能[51]。Zhou等[50,52]在围产期奶牛饲粮中补充RPM后,肝脏中GSH含量及血浆中Tau含量显著升高。进一步研究发现,母体RPM供应可通过调控犊牛肝脏中CSADGCLCGSR的表达为GSH和Tau生成提供更多底物,从而促进GSH和Tau的生成[30]。此外,Zhou等[53]研究发现,饲粮补充RPM可显著提高奶牛血浆中对氧磷酶的活性。由肝脏合成的对氧磷酶不仅具有抗氧化作用,同时还可促进肝脏脂质代谢,维护肝脏健康[54]。另外,核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)是ROS的主要细胞敏感器,当Nrf2被活化后可入核与抗氧化反应元件(antioxidant response element,ARE)识别并结合,启动下游一系列抗氧化酶基因的表达,从而增强机体的抗氧化能力[55]。体外细胞培养试验结果表明,蛋氨酸可通过激活肝脏细胞Nrf2,进而促进其下游抗氧化酶的表达、降低炎症因子TNF-α的表达,提高细胞的抗氧化能力[10]。综上可知,Nrf2信号通路可能在蛋氨酸调控肝脏抗氧化的过程中发挥着重要作用。

3.5 蛋氨酸对肝脏DNA甲基化的影响

DNA甲基化作为表观遗传主要的表达机制,参与肝脏细胞的分化、凋亡等生理过程,且与肝脏疾病密切相关[56-57]。在哺乳动物中,DNA甲基化是指DNA甲基转移酶(DNA methyltransferase,DNMT)在CpG胞嘧啶残基上进行化学修饰的过程[58],其中DNMT家族中的DNMT1、DNMT2、DNMT3a和DNMT3b已被证实可进行甲基化[59]。当机体内蛋氨酸缺乏导致肝脏代谢紊乱时,提供甲基供体的SAM合成水平降低,可导致DNA甲基化生物过程受限。Osorio等[28]研究表明,奶牛补饲RPM可通过调控肝脏全基因组和PPARα启动子区域甲基化,上调PPARα下游靶向基因,调控肝脏脂质代谢和免疫功能。研究表明,饲粮中添加RPM可显著上调奶牛肝脏DNMT1、下调DNMT3A mRNA的表达,暗示奶牛肝脏中甘氨酸-N-甲基转移酶(glycine-N-methyltransferase,GNMT)可能已激活,且触发表观遗传效应[37]。DNMT对蛋氨酸的响应模式不同,可能与其在甲基化过程中所发挥的作用不同有关,DNMT3A与DNMT3B可协同识别未甲基化CpG位点,并启动从头甲基化(de novo methylation)甲基转移酶建立新的甲基化模式;而DNMT1是DNA甲基化水平的维持因子,可识别DNA复制产生的半甲基化CpG位点并维持其甲基化模式[60]。综上可知,蛋氨酸可通过调节DNA甲基化过程的甲基供应和DNA甲基转移酶活性,进而对肝脏DNA甲基化过程进行调控,但蛋氨酸调控DNA甲基化的具体机制还需进一步研究。

4 小结

综上所述,肝脏是反刍动物营养物质代谢、转化及重分配的核心枢纽,同时也是重要的免疫器官,其健康状况与动物机体密切相关。生产中补饲RPM可为反刍动物高效补充蛋氨酸,进而发挥蛋氨酸的生理功能。蛋氨酸可通过发挥其调节肝脏糖、脂和蛋氨酸代谢及抗炎、抗氧化、调控DNA甲基化过程的作用,进而维护反刍动物肝脏健康。然而,现阶段反刍动物生产中RPM的应用研究还存在一些问题有待解决:1)不同形式RPM应用于不同生产目的、不同生理阶段的反刍动物时的适宜添加量有待形成标准化;2)蛋氨酸维护反刍动物肝脏健康的作用机理不够明确,涉及调控作用的关键信号通路有待进一步研究证实;3)反刍动物生产中有关RPM的相关研究深度不够,需结合代谢组学、转录组和细胞培养技术系统解析其调控肝脏健康的机制。因此,今后的研究需通过在反刍动物上展开更多体内和体外试验,明确RPM的适宜添加量,阐明蛋氨酸发挥作用的具体作用机制,为RPM在反刍动物生产中的精准应用提供更多理论支撑。
[1]
王正旋, 杨林. 基于蛋氨酸代谢调控的内源性抗氧化分子机制[J]. 生物信息学, 2022, 20(3):149-154.

WANG Z X, YANG L. Endogenous antioxidant molecular mechanism via methionine metabolism[J]. China Journal of Bioinformatics, 2022, 20(3):149-154. (in Chinese)

[2]
ZHOU Z, GARROW T A, DONG X W, et al. Hepatic activity and transcription of betaine-homocysteine methyltransferase,methionine synthase,and cystathionine synthase in periparturient dairy cows are altered to different extents by supply of methionine and choline[J]. The Journal of Nutrition, 2017, 147(1):11-19.

[3]
PATTERSON J A, KUNG L,Jr. Metabolism of DL-methionine and methionine analogs by rumen microorganisms[J]. Journal of Dairy Science, 1988, 71(12):3292-3301.

[4]
韩宁, 黄凌霞, 刘红云. 蛋氨酸及其小肽在奶牛生产中的应用研究进展[J]. 中国畜牧杂志, 2024, 60(2):18-22.

HAN N, HUANG L X, LIU H Y. Advances in the application of methionine and its small peptides in dairy cows[J]. Chinese Journal of Animal Science, 2024, 60(2):18-22. (in Chinese)

[5]
GRAULET B, RICHARD C, ROBERT J C. The isopropyl ester of methionine hydroxy-analogue is absorbed through the rumen wall in the cow[J]. Journal of Animal and Feed Sciences, 2004,13 (Suppl.1):269-272.

[6]
ROBERT J C, SLOAN B K, ETAVE G, et al. Influence of length and ramification of the alcohol radical of esters of methionine and of 2-hydroxy-4(methylthio)butanoic acid on methionine bioavailability[J]. Journal of Dairy Science, 2001, 84(Suppl.1):34.

[7]
SAENGKERDSUB S, LINGBECK J M, WILKINSON H H, et al. Characterization of isolated yeast growth response to methionine analogs[J]. Journal of Environmental Science and Health:Pesticides, Food Contaminants,and Agricultural Wastes, 2013, 48(12):1112-1120.

[8]
MATO J M, ALVAREZ L, ORTIZ P, et al. S-adenosylmethionine synthesis:molecular mechanisms and clinical implications[J]. Pharmacology & Therapeutics, 1997, 73(3):265-280.

[9]
蔡德敏. 母猪妊娠期日粮添加甜菜碱对新生仔猪肝脏糖脂代谢的影响及其表遗传机制[D]. 博士学位论文. 南京: 南京农业大学, 2015.

CAI D M. Maternal gestational betaine supplementation affects hepatic glucose and lipid metabolism of newborn piglets through epigenetic mechanisms[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2015. (in Chinese)

[10]
孙菲菲. 胆碱和蛋氨酸对奶牛围产期营养平衡和机体健康的影响及机制[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2017.

SUN F F. Choline and methionine regulate nutrient balance and health of transition dairy cows:responses and potential mechnisms[D]. Ph.D.Thesis. Yangling: Northwest A & F University, 2017. (in Chinese)

[11]
王杰, 崔凯, 王世琴, 等. 饲粮蛋氨酸水平对羔羊肝脏及血清中蛋氨酸循环代谢相关指标的影响[J]. 动物营养学报, 2019, 31(1):188-197.

WANG J, CUI K, WANG S Q, et al. Effects of dietary methionine level on methionine cycle metabolism-related indicators in liver and serum of lambs[J]. Chinese Journal of Animal Nutrition, 2019, 31(1):188-197. (in Chinese)

[12]
ALHARTHI A S, LOPREIATO V, DAI H, et al. Short communication:supply of methionine during late pregnancy enhances whole-blood innate immune response of Holstein calves partly through changes in mRNA abundance in polymorphonuclear leukocytes[J]. Journal of Dairy Science, 2019, 102(11):10599-10605.

[13]
PALOMBO V, ALHARTHI A, BATISTEL F, et al. Unique adaptations in neonatal hepatic transcriptome,nutrient signaling,and one-carbon metabolism in response to feeding ethyl cellulose rumen-protected methionine during late-gestation in Holstein cows[J]. BMC Genomics, 2021, 22(1):280.

[14]
刘德强, 王凤红, 许瑞, 等. 过瘤胃蛋氨酸在反刍动物生产中的应用研究进展[J]. 动物营养学报, 2022, 34(12):7564-7573.

DOI

LIU D Q, WANG F H, XU R, et al. Research progress on application of rumen-protected methionine in ruminant production[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7564-7573. (in Chinese)

DOI

[15]
朱森阳, 张婵娟, 贾志海. 羟基蛋氨酸及其衍生物在反刍动物生产中的应用[J]. 饲料工业, 2006, 27(5):39-41.

ZHU S Y, ZHANG C J, JIA Z H. Application of methionine hydroxy analogue free acid in animal production[J]. Feed Industry, 2006, 27(5):39-41. (in Chinese)

[16]
刘梅英, 齐智利. 蛋氨酸羟基类似物在反刍动物中的应用[J]. 饲料研究, 2007(6):49-51.

LIU M Y, QI Z L. Application of methionine hydroxyl analogue in ruminants[J]. Feed Research, 2007(6):49-51. (in Chinese)

[17]
高红建. 氮-羟甲基蛋氨酸钙对绵羊瘤胃代谢及营养物质消化代谢的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2002.

GAO H J. Effects of N-hydroxymenthyl-DL-methionine-Ca (N-HMM-Ca) on ruminal fermentation and nutrient digestion and metabolism in sheep[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2002. (in Chinese)

[18]
卢玉飞, 张雪元, 马婷婷, 等. 过瘤胃蛋氨酸在反刍动物中的营养研究进展[J]. 饲料工业, 2014, 35(17):13-18.

LU Y F, ZHANG X Y, MA T T, et al. The nutrient research progress on rumen protected methionine in ruminants[J]. Feed Industry, 2014, 35(17):13-18. (in Chinese)

[19]
吕美, 陈代文. 蛋氨酸羟基类似物的吸收和代谢研究进展[J]. 饲料与畜牧, 2007(5):5-8.

LYU M, CHEN D W. Advances in methionine hydroxy analog absorption and metabolism research[J]. Feed and Animal Husbandry, 2007(5):5-8. (in Chinese)

[20]
MCCOLLUM M Q, VÁZQUEZ-AÑÓN M, DIBNER J J, et al. Absorption of 2-hydroxy-4-(methylthio)butanoic acid by isolated sheep ruminal and omasal epithelia[J]. Journal of Animal Science, 2000, 78(4):1078-1083.

PMID

[21]
林奕, 王之盛, 周安国. 2-羟基-4-甲硫基丁酸异丙酯(HMBi)以及2-羟基-4-甲硫基丁酸(HMB)在反刍动物中的应用[J]. 中国奶牛, 2008(11):11-15.

LIN Y, WANG Z S, ZHOU A G. The application of HMBi and HMB on the ruminants[J]. China Dairy Cattle, 2008(11):11-15. (in Chinese)

[22]
ALLEN M S. Review:control of feed intake by hepatic oxidation in ruminant animals:integration of homeostasis and homeorhesis[J]. Animal, 2020, 14(S1):s55-s64.

[23]
徐洪伟. 母牛围产期能量负平衡改善措施[J]. 北方牧业, 2022(12):24.

XU H W. Measures to improve the negative energy balance of cows during perinatal period[J]. Northern Animal Husbandry, 2022(12):24. (in Chinese)

[24]
牟湘钰, 郭勇庆. 能量负平衡对围产期奶牛的影响及调控措施[J]. 中国乳业, 2023(6):36-43.

MU X Y, GUO Y Q. Effects of negative energy balance on perinatal dairy cows and its control measures[J]. China Dairy, 2023(6):36-43. (in Chinese)

[25]
BELL A W, BAUMAN D E. Adaptations of glucose metabolism during pregnancy and lactation[J]. Journal of Mammary Gland Biology and Neoplasia, 1997, 2(3):265-278.

PMID

[26]
DRACKLEY J K, OVERTON T R, DOUGLAS G N. Adaptations of glucose and long-chain fatty acid metabolism in liver of dairy cows during the periparturient period[J]. Journal of Dairy Science, 2001, 84(Suppl.E):E100-E112.

[27]
薛本初. 日粮能量水平对生长期云南半细毛羊肝脏健康及代谢的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2022.

XUE B C. Effects of dietary energy level on liver health and metabolism of growing Yunnan semi-fine wool sheep[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2022. (in Chinese)

[28]
OSORIO J S, JACOMETO C B, ZHOU Z, et al. Hepatic global DNA and peroxisome proliferator-activated receptor alpha promoter methylation are altered in peripartal dairy cows fed rumen-protected methionine[J]. Journal of Dairy Science, 2016, 99(1):234-244.

DOI PMID

[29]
苏蔚. NEFA对体外培养肝细胞PC mRNA和PEPCK mRNA丰度及其活性的影响[D]. 硕士学位论文. 长春: 吉林大学, 2007.

SU W. Effect of NEFA on PC mRNA,PEPCK mRNA experssion and enzyme activity of in vitro culture bovine hepatocytes[D]. Master’s Thesis. Changchun: Jilin University, 2007. (in Chinese)

[30]
JACOMETO C B, ZHOU Z, LUCHINI D, et al. Maternal supplementation with rumen-protected methionine increases prepartal plasma methionine concentration and alters hepatic mRNA abundance of 1-carbon,methionine,and transsulfuration pathways in neonatal Holstein calves[J]. Journal of Dairy Science, 2017, 100(4):3209-3219.

[31]
裴明财, 曾涵芳, 林红, 等. 蛋氨酸羟基类似物异丙酯(HMBi)对奶牛产奶性能、繁殖性能及血清生化指标的影响[J]. 中国兽医学报, 2023, 43(2):396-404.

PEI M C, ZENG H F, LIN H, et al. Effect of methionine hydroxy analogue isopropyl ester (HMBi) supplementation on lactation,reproduction performance and serum parameters in Holstein cows[J]. Chinese Journal of Veterinary Science, 2023, 43(2):396-404. (in Chinese)

[32]
OSORIO J S, TREVISI E, JI P, et al. Biomarkers of inflammation,metabolism,and oxidative stress in blood,liver,and milk reveal a better immunometabolic status in peripartal cows supplemented with Smartamine M or MetaSmart[J]. Journal of Dairy Science, 2014, 97(12):7437-7450.

[33]
周庆安, 周建成, 殷举亮, 等. 肉毒碱的营养生理功能及其应用[J]. 粮食与饲料工业, 2002(10):26-27.

ZHOU Q A, ZHOU J C, YIN J L, et al. Nutritional and physiological functions of carnitine and its application[J]. Cereal & Feed Industry, 2002(10):26-27. (in Chinese)

[34]
BIONAZ M, CHEN S W, KHAN M J, et al. Functional role of PPARs in ruminants:potential targets for fine-tuning metabolism during growth and lactation[J]. PPAR Research, 2013,2013:684159.

[35]
SCHOENBERG K M, GIESY S L, HARVATINE K J, et al. Plasma FGF21 is elevated by the intense lipid mobilization of lactation[J]. Endocrinology, 2011, 152(12):4652-4661.

DOI PMID

[36]
徐巧云, 胡良宇, 王梦芝. 蛋氨酸在动物体内代谢途径与周转机制[J]. 动物营养学报, 2017, 29(11):3877-3884.

XU Q Y, HU L Y, WANG M Z. Metabolic pathway and turnover mechanism of methionine in animals[J]. Chinese Journal of Animal Nutrition, 2017, 29(11):3877-3884. (in Chinese)

[37]
OSORIO J S, JI P, DRACKLEY J K, et al. Smartamine M and MetaSmart supplementation during the peripartal period alter hepatic expression of gene networks in 1-carbon metabolism,inflammation,oxidative stress,and the growth hormone-insulin-like growth factor 1 axis pathways[J]. Journal of Dairy Science, 2014, 97(12):7451-7464.

[38]
LI F, FENG Q P, LEE C, et al. Human betaine-homocysteine methyltransferase (BHMT) and BHMT2:common gene sequence variation and functional characterization[J]. Molecular Genetics and Metabolism, 2008, 94(3):326-335.

[39]
ZEISEL S H. Choline:an important nutrient in brain development,liver function and carcinogenesis[J]. Journal of the American College of Nutrition, 1992, 11(5):473-481.

[40]
FINKELSTEIN J D. Methionine metabolism in mammals[J]. The Journal of Nutritional Biochemistry, 1990, 1(5):228-237.

[41]
CRAY C, ZAIAS J, ALTMAN N H. Acute phase response in animals:a review[J]. Comparative Medicine, 2009, 59(6):517-526.

[42]
LOOR J J, DANN H M, EVERTS R E, et al. Temporal gene expression profiling of liver from periparturient dairy cows reveals complex adaptive mechanisms in hepatic function[J]. Physiological Genomics, 2005, 23(2):217-226.

PMID

[43]
BERTONI G, TREVISI E, HAN X, et al. Effects of inflammatory conditions on liver activity in puerperium period and consequences for performance in dairy cows[J]. Journal of Dairy Science, 2008, 91(9):3300-3310.

DOI PMID

[44]
BATISTEL F, ARROYO J M, GARCES C I M, et al. Ethyl-cellulose rumen-protected methionine alleviates inflammation and oxidative stress and improves neutrophil function during the periparturient period and early lactation in Holstein dairy cows[J]. Journal of Dairy Science, 2018, 101(1):480-490.

DOI PMID

[45]
CHEN S N, TAN Y, XIAO X C, et al. Deletion of TLR4 attenuates lipopolysaccharide-induced acute liver injury by inhibiting inflammation and apoptosis[J]. Acta Pharmacologica Sinica, 2021, 42(10):1610-1619.

[46]
EZQUERRO S, MOCHA F, FRUHBECK G, et al. Ghrelin reduces TNF-α-induced human hepatocyte apoptosis,autophagy,and pyroptosis:role in obesity-associated NAFLD[J]. The Journal of Clinical Endocrinology & Metabolism, 2019, 104(1):21-37.

[47]
BROWN M D, SACKS D B. Compartmentalised MAPK pathways[J]. Handbook of Experimental Pharmacology, 2008(186):205-235.

DOI PMID

[48]
RAPA S F, WALTENBERGER B, DI PAOLA R, et al. Plumericin prevents intestinal inflammation and oxidative stress in vitro and in vivo[J]. The FASEB Journal, 2020, 34(1):1576-1590.

[49]
MOYES K M, DRACKLEY J K, MORIN D E, et al. Greater expression of TLR2,TLR4,and IL6 due to negative energy balance is associated with lower expression of HLA-DRA and HLA-A in bovine blood neutrophils after intramammary mastitis challenge with Streptococcus uberis[J]. Functional & Integrative Genomics, 2010, 10(1):53-61.

[50]
ZHOU Z, BULGARI O, VAILATI-RIBONI M, et al. Rumen-protected methionine compared with rumen-protected choline improves immunometabolic status in dairy cows during the peripartal period[J]. Journal of Dairy Science, 2016, 99(11):8956-8969.

DOI PMID

[51]
HAYES K C, STURMAN J A. Taurine in metabolism[J]. Annual Review of Nutrition, 1981,1:401-425.

[52]
ZHOU Z, VAILATI-RIBONI M, LUCHINI D N, et al. Methionine and choline supply during the periparturient period alter plasma amino acid and one-carbon metabolism profiles to various extents:potential role in hepatic metabolism and antioxidant status[J]. Nutrients, 2016, 9(1):10.

[53]
ZHOU Z, RIBONI M V, BULGARI O, et al. Physiological and molecular mechanisms associated with performance,immunometabolic status,and liver function in transition dairy cows fed rumen-protected methionine or choline[J]. Journal of Animal Science, 2016,94 (Suppl.2):22-23.

[54]
孙得俸, 王艳明, 李德鹏. 围产期补充过瘤胃蛋氨酸对奶牛免疫状态的影响[J]. 中国奶牛, 2023(7):30-33.

SUN D F, WANG Y M, LI D P. Improvement of immune status in dairy cows supplementation with rumen-protected methionine during the periparturient period[J]. China Dairy Cattle, 2023(7):30-33. (in Chinese)

[55]
NITURE S K, KHATRI R, JAISWAL A K. Regulation of Nrf2-an update[J]. Free Radical Biology & Medicine, 2014,66:36-44.

[56]
雒瑞瑞, 王彩莲, 郎侠. DNA甲基化在家畜繁殖中的研究进展[J]. 农业生物技术学报, 2023, 31(10):2190-2199.

LUO R R, WANG C L, LANG X. Research progress on DNA methylation in domestic animal reproduction[J]. Journal of Agricultural Biotechnology, 2023, 31(10):2190-2199. (in Chinese)

[57]
AMMERPOHL O, PRATSCHKE J, SCHAFMAYER C, et al. Distinct DNA methylation patterns in cirrhotic liver and hepatocellular carcinoma[J]. International Journal of Cancer, 2012, 130(6):1319-1328.

DOI PMID

[58]
SANSOM O J, MADDISON K, CLARKE A R. Mechanisms of disease:methyl-binding domain proteins as potential therapeutic targets in cancer[J]. Nature Clinical Practice.Oncology, 2007, 4(5):305-315.

[59]
CHATTOPADHYAYA S, GHOSAL S. DNA methylation:a saga of genome maintenance in hematological perspective[J]. Human Cell, 2022, 35(2):448-461.

[60]
HSIEH C L. The de novo methylation activity of Dnmt3a is distinctly different than that of Dnmt1[J]. BMC Biochemistry, 2005,6:6.

Outlines

/