REVIEW

Potentiality of Antimicrobial Peptides from Black Soldier Fly as a Novel Drug

  • WU Yanting , 1 ,
  • ZHU Jianfeng 2 ,
  • HU Wenfeng 1, 2 ,
  • LI Xueling , 1, *
Expand
  • 1 Applied Microbiology Laboratory, School of Food Science, South China Agricultural University, Guangzhou 510642, China
  • 2 Bioforte Biotechnology (Shenzhen) Co., Ltd., Shenzhen 518118, China
* associate professor, E-mail:

Received date: 2024-04-24

  Online published: 2024-11-09

Abstract

The wide application of antibiotics has brought great changes to human health, but now the abuse of antibiotics has become a major crisis of human health, and it is urgent to find new drugs to replace traditional antibiotics. Insect antimicrobial peptides is a kind of small molecule polypeptide produced by insects to resist the attack of pathogenic bacteria. Insect antimicrobial peptides have broad spectrum antibacterial activity, and their killing effect on some drug-resistant pathogens has attracted more attention. This review mainly summarizes the structural characteristics, mechanism of action, and biological functions of antimicrobial peptides from black soldier fly, and analyzed the potential of antimicrobial peptides from black soldier fly for the development of new drugs, which provided a reference for the research of antimicrobial peptides from black soldier fly, and provided a new direction for the development of new drugs and the reduction of the abuse of antibiotics.

Cite this article

WU Yanting , ZHU Jianfeng , HU Wenfeng , LI Xueling . Potentiality of Antimicrobial Peptides from Black Soldier Fly as a Novel Drug[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 6929 -6941 . DOI: 10.12418/CJAN2024.591

目前,随着抗生素的广泛使用,细菌对抗生素的耐药性越来越严重,甚至导致“超级细菌”的产生,从而对公众健康造成威胁,成为了社会风险。我国《重点管控新污染物清单(2023年版)》已将抗生素列入重点管控范围。因此,努力寻找替代方案来降低病原菌对抗生素耐药性带来的相关风险至关重要。
抗菌肽(antimicrobial peptides,AMPs)是一种广泛存在于自然界生物体内的、对致病微生物有抑杀作用的肽类物质。抗菌肽最初是指昆虫体内经诱导而产生的一类具有抗菌活性的碱性多肽物质,其在昆虫免疫系统中发挥着关键作用。这些昆虫多肽一般由15~45个氨基酸残基组成[1],分子质量在25~30 ku[2]。随着时间的推移,人们在其他动物、植物和人类中也发现了抗菌肽。由于这类活性多肽对细菌、真菌、病毒以及肿瘤细胞等具有高效的抑杀作用,逐渐成为对抗病原微生物感染的利器。其中,昆虫抗菌肽具有种类繁多、数量丰富、容易获得、稳定性高等优点,有望成为抗生素的替代品。
原产于美洲的黑水虻(black soldier fly,BSF),学名为亮班扁角水虻(Hermetia illucens L.),是一种属于水虻科双翅目的昆虫,在全球范围内广泛分布。在我国多地有所发现,已知的黑水虻种数已达到250种[3]。黑水虻是“变废为宝”的良好工具,具有将有机废弃物转化为丰富的昆虫蛋白质和脂肪类的能力[4]。之后,研究又发现了黑水虻抗菌肽,其对病原微生物的抵抗作用也成为了研究热点。因此,本文主要综述了黑水虻抗菌肽的结构特点和作用机制,以及其近几年其在抗菌、抗肿瘤和抗病毒方面的研究进展。同时,分析了黑水虻抗菌肽作为新型药物添加剂的潜力,为开发代替抗生素的药物添加剂提供参考。

1 抗菌肽的结构和作用机制

1.1 抗菌肽的结构

抗菌肽的二级结构有4种:α-螺旋、β-折叠、同有α-螺旋和β-折叠、均无α-螺旋和β-折叠。昆虫抗菌肽可根据二级结构和氨基酸种类进行分类:不含半胱氨酸的α-螺旋肽(如天蚕素类)、富含半胱氨酸肽的β-折叠肽或α-螺旋肽和β-折叠组合肽(如防御素类)、富含特殊氨基酸的多肽(如攻击素类)[5-6]。对黑水虻抗菌肽的研究主要关于防御素类、天蚕素类和攻击素类等[7]。尽管抗菌肽具有多样性,但它们有2个共同的特征:1)肽链N端富含亲水性基团,而C端富含疏水性基团;2)存在大量碱性残基。这2个特征决定了其呈双亲性并且在pH为中性条件下带正电荷[8]

1.2 抗菌肽的作用机制

昆虫的免疫系统包括细胞免疫和体液免疫系统,细胞免疫系统指的是由血细胞介导的诱导吞噬作用等过程,体液免疫系统主要是通过免疫信号通路调节效应分子的分泌,而抗菌肽属于体液免疫系统[9]。当微生物被细胞膜上的识别受体识别,就会触发细胞内的一系列信号通路,介导体液免疫反应的发生。昆虫主要通过Toll样信号和免疫缺陷(Imd)信号途径产生抗菌肽[10]。革兰氏阳性菌和真菌会激活昆虫血淋巴中Spätzle消化酶,消化后的Spätzle因子会激活细胞膜上的Toll样受体,进而识别和结合入侵微生物。而Imd信号通路通常由革兰氏阴性菌或真菌触发,革兰氏阴性菌上的肽聚糖单体(peptidoglycan,PGN)和真菌的分泌物会与细胞膜上的肽聚糖识别蛋白(peptidoglycan recognition protein,PGRP)结合。这2种信号通路独立作用,将信号转运到细胞核中诱导抗菌肽的生成[11-12]。抗菌肽产生于机体最容易受到病原体入侵的部位,广泛分布于血淋巴、皮肤黏膜等组织中[13],所以血淋巴提取法是黑水虻抗菌肽的制备方法之一[14]。抗菌肽的作用机制主要分为膜损伤机制和细胞内杀伤机制。

1.2.1 膜损伤机制

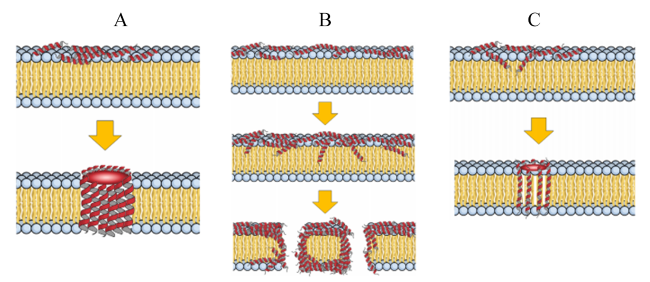
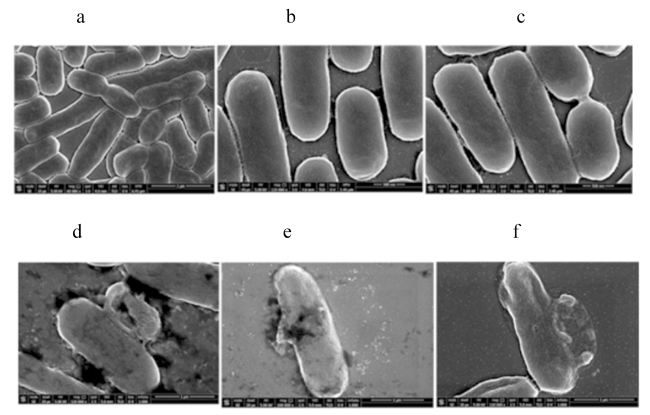
膜损伤机制是指抗菌肽可对微生物细胞膜产生物理性伤害。一般来说,微生物的细胞表面呈现净负电荷,如革兰氏阳性菌和革兰氏阴性菌都含有带负电荷的磷脂,此外,革兰氏阳性菌具有磷壁酸,而革兰氏阴性菌存在脂多糖(lipopolysaccharides,LPS),这都是带负电荷的物质[15-16]。因此,带正电荷的抗菌肽可吸附在细胞膜表面,并且抗菌肽是两亲性分子,会与细胞膜的磷脂相融合,最终使细胞膜裂解[17]。抗菌肽对膜损伤有3种模型(图1):桶形壁模型(抗菌肽连续插入膜内,α-螺旋链上的疏水区域与双分子层作用,亲水区域外露而形成孔洞,使细胞内物质外泄)[18]、地毯模型(抗菌肽在膜上大量积累达到一定密度后细胞膜裂解,抗菌肽包裹细胞膜形成微团从而产生孔隙)[19]和环形孔模型(抗菌肽疏水区域与磷脂双分子层的亲水区域产生了排斥力,导致膜表面的不稳定)[20]。由图2可见,通过扫描电子显微镜观察黑水虻防御素类抗菌肽(C-15867)作用大肠杆菌的表面形态变化,经过抗菌肽处理的细菌细胞出现了严重的形态变化,细胞表面粗糙,逐渐形成孔洞,随后细胞内容物外泄,证实了抗菌肽对细菌细胞膜的破坏作用[21]
图1 抗菌肽损伤细胞膜的3种模型

A:桶形壁模型 barrel-stave model;B:地毯模型 carpet model;C:环形孔模型 wormhole model。

Fig.1 Three models of cell membrane damage by antimicrobial peptides[17]

图2 黑水虻防御素类抗菌肽(C-15867)作用大肠杆菌的表面形态变化

a、b、c为未处理的细胞;d、e、f为抗菌肽处理3 h的细胞。标尺:a,2.0 μm;b、c,0.5 μm;d、e、f,1.0 μm。

Fig.2 Surface morphological changes of Escherichia coli affected by defense peptides of black water fly (C-15867)[21]

a, b and c were untreated cells; d, e and f were cells treated with antimicrobial peptides for 3 hours. Scale: a, 2.0 μm; b and c, 0.5 μm; d, e and f, 1.0 μm.

1.2.2 细胞内杀伤机制

昆虫抗菌肽的细胞内杀伤机制是指抗菌肽穿过微生物细胞外膜,不破坏细胞膜而进入胞内,直接与微生物细胞内靶点如DNA、RNA和特异性酶等相互作用,使细胞的正常生理功能受损,代谢出现紊乱[22]。富含脯氨酸的抗菌肽主要使用细胞内杀伤机制杀灭细菌,其通过膜上的转运蛋白(SbmA蛋白)进入细胞内,与内部靶点(细菌热休克蛋白DnaK)结合,从而来实现抑制微生物的重要代谢途径[23-24]

1.2.3 其他杀伤机制

除了上述2种杀伤机制外,抗菌肽还会与病原菌的细胞壁相互作用。革兰氏阳性菌的磷壁酸上的磷酸基团、革兰氏阴性菌的脂多糖均带负电荷,从而吸引带正电荷的抗菌肽与之结合[25]。例如,铜绿假单胞菌细胞壁的脂多糖释放到血液中可引起局部过度炎症反应,Van Moll等[26]研究发现,黑水虻的2种天蚕素类抗菌肽(HC1和HC10)能与铜绿假单胞菌细胞壁上的脂多糖的毒性中心脂质A结合,减少了小鼠巨噬细胞中炎症因子的产生,证明了黑水虻抗菌肽在对抗铜绿假单胞菌方面具有应用前景。

2 黑水虻抗菌肽的生物学功能

黑水虻为腐生性昆虫,以腐烂的动植物基质或动物粪便为食,而且可以在含有丰富致病微生物的环境中生存。王路逸等[27]用含有大肠杆菌、沙门氏菌、金黄色葡萄球菌的饲料喂养黑水虻幼虫,探索黑水虻的杀菌效果,结果发现,摄取了病原菌的黑水虻肠道内在停止摄入后这3种菌数量逐渐减少,黑水虻之所以能够保护自身免受基质中病原体的侵害,并能够减轻基质的微生物负荷,这是由自身免疫系统发挥的作用。Moretta等[28]通过生物信息学方法在黑水虻幼虫及成虫的转录组中鉴定了大约57种活性肽,其中包含防御素、天蚕素、附加素和溶菌酶等,根据抗菌肽数据库(collection of anti-microbial peptides,CAMP)和计算机分析推断出鉴定的活性肽具有抗菌、抗病毒、抗肿瘤或抗真菌活性,并选取4种多肽进行合成,评价其抑制大肠杆菌的能力,结果发现,用3 μmol/L的4种多肽分别处理大肠杆菌100 min后,细胞活力下降了约50%。

2.1 抑菌活性

研究表明,黑水虻抗菌肽对细菌具有抑制作用,表1展示了近年来经体外验证具有抗细菌活性的黑水虻抗菌肽。Laurence等[29]评估了36个人工合成的黑水虻抗菌肽对抗一系列病原微生物的活性,结果发现,不同的菌株对于不同类型的抗菌肽表现出不同的敏感性,金黄色葡萄球菌(革兰氏阳性菌)对于防御素类比天蚕素类更敏感,而大肠杆菌和铜绿假单胞菌(革兰氏阴性菌)对于天蚕素类比防御素类更敏感。抗菌肽对于多种细菌,甚至耐药细菌都具有抑制效果,证明了其具有广谱的抑菌活性。抗菌肽活性的检测方法主要分为抑制区试验法和液体抑菌法。抑制区试验法是通过测定抗菌肽在培养基上形成的抑菌圈大小来评价抑菌活性,而液体抑菌法是将不同浓度的抗菌肽加入菌液中,培养后通过测定菌液光密度(optical density,OD)或菌落总数(colony-forming units,CFU)来确定抗菌肽的最小抑制浓度(minimal inhibit concentration,MIC)[14]
表1 经体外验证具有抗细菌活性的黑水虻抗菌肽

Table 1 AMPs of black soldier fly which have been verified for antibacterial activity in vitro

诱导物
Inducers
抗菌肽
制备方法
Preparation
method
of AMPs
抗菌肽
种类
Types of
AMPs
检测方法
Detection
method
指示菌
Indicator
bacteria
抑菌效果Antibacterial effect 文献来源
Reference
source
抑菌圈直径
Inhibition
zone diameter/
mm
最小抑制
浓度/抑菌率
MIC/
inhibition
ratio
大肠杆菌(LMG2092)、黄色微球菌(DSM19079)
Escherichia coli
(LMG2092), Micrococcus flavus (DSM19079)
黑水虻幼
虫血淋巴
收集法
抑制区试验法
(琼脂扩散法)、
液体抑菌法
大肠杆菌
(LMG
2092)
6.67±
1.20
4.5 μg/200 μL,
42%
[30]
黄色微球菌
(DSM 19079)
6.33±
0.30
4.5 μg/200 μL,
33%
铜离子
Cu2+
黑水虻幼
虫血淋巴
收集法
抑制区试验
法(纸片法)
大肠杆菌
(NCTC12900)
(8.76±0.24)~
(21.97±0.54)

[31]
金黄色葡
萄球菌
(ATCC25923)
(9.15±0.57)~
(27.85±0.74)
白色念珠菌
(ATCC10231)
(9.25±0.48)~
(28.34±0.76)

无No

大肠杆菌
表达抗菌肽

天蚕素类
(Hill_BB_
C10074)

液体
抑菌法
大肠杆
菌K12

[32]
金黄色葡
萄球菌
(NCTC10788)
铜绿假
单胞菌
(PaO1菌株)
无No 毕赤酵母
GS115
表达抗菌肽
防御素类
(C-13326)
抑制区试验
法(牛津杯法)、
液体抑菌法
舒伯特气
单胞菌
(DM210910)
>12.5 125 μg/mL [33]

无No

研磨提取法
(乙酸/甲醇提取)

抑制区试验
法(纸片法)、
液体抑菌法
枯草芽孢
杆菌
(ATCC6051)
(6.80±0.20)~
(14.66±1.53)
25 mg/mL [34]
金黄色
葡萄球菌
(ATCC 25923)
(6.87±0.07)~
(17.00±0.35)
25 mg/mL
铜绿假
单胞菌
(ATCC 27853)
(6.91±0.30)~
(13.96±1.30)
25 mg/mL
大肠杆菌
(ATCC 25922)
(6.84±0.32)~
(13.12±1.10)
25 mg/mL
干酪乳杆菌
(KCCM12413)
Lactobacillus casei
(KCCM12413)
研磨提取法
(乙酸提取)
抑制区试
验法、液体
抑菌法
粪球肠菌
(KACC 11859)
200 μg/100 μL [35]
变形链球菌
(KACC16833)
500 μg/100 μL
白色念珠菌
(KACC30071)
1 000 μg/100 μL
耐甲氧西林
金黄色
葡萄球菌
300 μg/100 μL
多重耐药铜
绿假单胞菌
300 μg/100 μL
黏质沙雷氏菌
(KACC11961)
300 μg/100 μL
托拉斯假
单胞菌
(KACC15293)
300 μg/100 μL
黑水虻抗菌肽的抗真菌能力也不容忽视。张飞骏等[36]在研究黑水虻抗菌肽对黑曲霉抑制效果的过程中发现,2.5 mg/mL的黑水虻抗菌肽与0.025 mg/mL的土霉素的抑制效果相当。黑水虻抗菌肽对植物病原真菌的抗真菌活性尚不清楚。不过有研究表明,黑水虻幼虫来源的抗菌肽能够抑制由稻瘟病菌和尖孢炭疽菌分生孢子引起的真菌病害[37]。抗真菌活性并非是黑水虻抗菌肽的研究热点,但有许多研究展现了黑水虻代谢真菌毒素和抑制其在体内积累的能力,如黄曲霉毒 B 1 [38-39],黑水虻抗菌肽与真菌的关系还需要更多的研究。

2.2 抑癌细胞活性

昆虫抗菌肽抑制和杀灭肿瘤细胞的机制与其杀菌机制相似,分为破坏细胞膜机制和非破坏细胞膜机制。由于细胞癌变后细胞膜表面呈较高的负电荷性,所以给带正电荷的抗菌肽提供了作用位点[40],除了特异性破坏癌细胞膜结构,其还具有诱导癌细胞凋亡和抑制癌细胞增殖的作用[41]。虽然黑水虻抗菌肽的抑癌活性的研究鲜见报道,但其在医药研发方面的潜能不能忽视。田忠等[42]将黑水虻抗菌肽作用于人鼻咽癌CNE2细胞,发现可以增强该细胞的膜通透性使细胞凋亡,并且也抑制了CNE2细胞端粒酶活性。已有研究证实黑水虻幼虫抗菌肽粗提物对结肠癌细胞株、肺腺癌细胞株、宫颈癌细胞株和卵巢癌细胞株的增殖均有一定抑制效果,并且对结肠癌HCT-8细胞凋亡影响尤为明显[43]。高嘉敏等[44]研究发现,黑水虻抗菌肽能通过谷氨酰胺和谷氨酸代谢通路来抑制HCT-8细胞的增殖;在此基础上,冯群等[45]根据试验结果推测,结肠癌细胞凋亡可能是由于黑水虻抗菌肽通过线粒体途径和钙离子信号途径诱导,但具体的作用机制还需进一步研究。

2.3 抗病毒活性

Pienaar等[46]提供了关于黑水虻和病毒之间相互作用的证据,研究发现黑水虻基因组中存在与5个已知感染昆虫的病毒相关的内源性病毒序列,这表明黑水虻过去与这些病毒有联系,并且检测到1组外源性全病毒基因HiTV1,说明HiTV1很可能感染了黑水虻[44]。抗菌肽的抗病毒功能在果蝇和家蚕等昆虫中有所体现,但对昆虫如何识别病毒入侵并启动免疫反应以发挥抗病毒功能的了解有限[47]

2.4 调节免疫反应

黑水虻抗菌肽可作为免疫助剂调节免疫反应,如诱导产生细胞因子、刺激免疫细胞等[48]。来自黑水虻的抗菌肽DLP2和DLP4可以有效抑制耐甲氧西林金黄色葡萄球菌诱发小鼠体内肿瘤坏死因子-α、白细胞介素-6和单核细胞趋化因子-1的产生,并促进小鼠血清中抗炎症细胞因子(白细胞介素-10和粒细胞-巨噬细胞集落刺激因子)的分泌[49]。黑水虻抗菌肽HI-3可以诱导小鼠巨噬细胞(RAW264.7细胞)中促炎因子的适当分泌,但又不会过渡激活免疫系统,而且显著提高了细胞内超氧化物歧化酶活性和总抗氧化能力,增强了其吞噬功能,从而黑水虻抗菌肽起到了免疫调节功能[50]

3 影响黑水虻抗菌肽活性的因素

近年来有许多研究证实,黑水虻抗菌肽对病原菌具有抑制作用,且发现不同处理得到的黑水虻抗菌肽其抑菌活性有很大的差异。
在制备抗菌肽方面,黑水虻在不同微生物的诱导条件下产生的抗菌肽对致病菌的灭活效果存在较大差异。Meng等[51]选择大肠杆菌、金黄色葡萄球菌、枯草芽孢杆菌、沼泽红假单胞菌、酿酒酵母和植物乳杆菌来诱导黑水虻幼虫产生抗菌肽,结果表明,沼泽红假单胞菌诱导得到的抗菌肽的产量和抑制大肠杆菌效果优于其他菌株。还有研究表明,利用藤黄微球菌和大肠杆菌诱导黑水虻幼虫24 h比诱导48 h的抗菌活性要高[52]。不同方式提取的抗菌肽的活性不同。Zhang等[53]分别利用酸法和碱法提取黑水虻幼虫的抗菌肽,酸法和碱法的蛋白质提取率相似,但酸法提取的抗副溶血性弧菌活性相对较高。诱导黑水虻产生抗菌肽的免疫反应是非专一性的,在单一菌株的诱导下也可产生具有广谱活性的抗菌肽,但多因素诱导可增强抗菌肽的表达[54]。不同菌株诱导产生的抗菌肽的活性不同可能与菌株的特性有关,如沼泽红假单胞菌富含丰富的氨基酸,不仅可以给幼虫提供营养,而且还能优化幼虫的肠道菌群,这有利于抗菌肽的产生[51]。抗菌肽属于肽类,在制备过程要注意所用的试剂和条件,避免使其变性失活。
在黑水虻饲养方面,饲养黑水虻的饲料底物也会影响抗菌肽的抑菌能力。金宁等[55]用初始pH不同的餐厨垃圾饲养黑水虻,餐厨垃圾的初始pH偏低对抗菌肽提取率和抑菌能力都有显著的促进效果。也有研究表明,饲料的营养成分对黑水虻幼虫免疫相关基因的表达和抗菌肽的抑菌活性有显著影响,用添加蛋白质或葵花籽油的饲料饲养黑水虻,诱导产生的抗菌肽数量最多且相关免疫基因表达量最高[56]。除此之外,发现添加了乳制品的饲料对预蛹表达天蚕素类和防御素类抗菌肽有积极影响,并且在体外抑菌试验中发现除了用蔬菜、水果、面包、肉类混合饲养获得的血淋巴提取物,其他组别均对大肠杆菌和云南微球菌有抑制作用[57]。温度对黑水虻抗菌肽和病原体相互作用也有影响,在较高的温度下(37 ℃对比18和27 ℃)饲养黑水虻幼虫,抗菌肽对防御假单胞菌的抑制活性最高,但抗菌肽的基因表达并没有增加,推测是温度使蛋白质的活性增加[58]。而且另外的试验表明,黑水虻抗菌肽粗提物在25、37、50 ℃水浴处理后对大肠杆菌的抑制能力差别不大[59]。饲料组成和饲养环境都会对黑水虻的生长性能和营养成分产生影响,黑水虻幼虫营养成分与饲料营养成分呈正相关,黑水虻可充分利用饲料中的蛋白质合成自身蛋白质[60]
总之,这些研究结果表明在黑水虻饲养和抗菌肽的制备过程中的各种因素都有可能影响抗菌肽的结构,如正电荷数、两性分子结构、多肽的二级结构等,而抗菌肽的活性受其结构影响[61]。所以抗菌肽的抗菌活性可以从饮食、诱导手段和环境条件等方面进行调节,可根据此特性来提高黑水虻抗菌肽的产量与质量。

4 黑水虻抗菌肽的优势

黑水虻抗菌肽与抗生素具有协同作用。传统抗生素的作用机制是进入病原菌内干扰核酸的复制和转录、影响蛋白质或细胞壁的合成,然而对抗生素敏感的病原菌通过自身基因突变和修饰,或从外源获得新的遗传物质导致抗生素作用靶点的改变,可表现为外膜上蛋白质的数量减少和类型改变,影响抗生素进入胞内,或病原菌外排系统将胞内抗生素主动外排[62]。抗菌肽的膜损伤机制可使细胞膜通透性增加和屏障功能丧失,促进更多的抗生素进入胞内并攻击靶标,抗菌肽与抗生素的协同作用为解决病原菌耐药性提供了新的思路(图3)[13]。Kalsy等[63]发现昆虫天蚕素抗菌肽(Cec A)与抗生素萘啶酸(NAL)结合使用可抑制尿路致病性大肠杆菌(uropathogenic Escherichia coli,UPEC)的外排泵活性和细胞膜通透性,从而破坏UPEC所形成的的生物膜,协同清除体内感染,并且降低耐药风险。
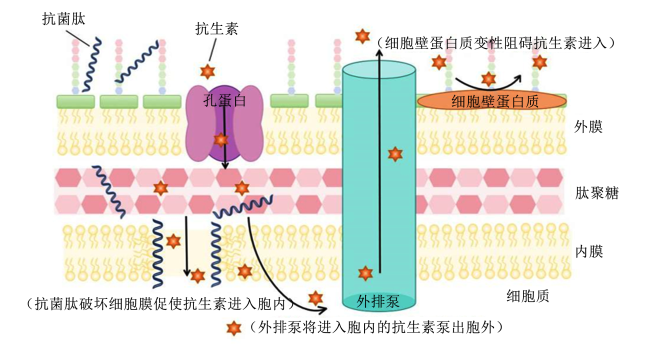
图3 抗菌肽与抗生素联合使用的协同效应

Fig.3 Synergistic effect of combination of antimicrobial peptides and antibiotics[64]

黑水虻抗菌肽产生耐药风险低。黑水虻抗菌肽的作用机制主要以微生物膜为作用靶点,对其产生物理性破坏或阻碍其正常的生长,从而杀死病原微生物,而抗生素的特点是结合于特异性受体,因此细菌对抗菌肽产生耐药性的机率大大降低[65-66]。Li等[49]研究发现,在抗菌肽或抗生素处理下,将耐甲氧西林金黄色葡萄球菌(ATCC43300)经30次连续传代,从黑水虻分离出的防御素抗菌肽DLP2和DLP4对其MIC没有发生显著增加,相比之下,头孢利亚松和环丙沙星对其MIC分别增加了256倍和4倍,这表明抗菌肽处理没有产生对多肽耐药的细菌突变体。
黑水虻抗菌肽的抑菌效果与抗生素相当。Alvarez等[67]从黑水虻血淋巴中鉴定出4种具有抗幽门螺杆菌活性的抗菌肽,其活性与治疗幽门螺杆菌感染的常用抗生素甲硝唑相当。而且Lee等[68]对黑水虻血淋巴提取的抗菌肽HP/F9进行了体内试验,6 μg的抗菌肽HP/F9在体外可完全抑制肺炎克雷伯菌的生长,与对照组(含有青霉素和链霉素的商业抗生素)的结果一致,该抗菌肽可以有效清除小鼠肺部感染的肺炎克雷伯菌,减轻了肺部感染引起的炎症。
黑水虻抗菌肽无溶血活性和细胞毒性。冯群等[43]研究发现,黑水虻抗菌肽粗提物的浓度小于500 mg/L时对红细胞无溶血活性,Peng等[69]检测了一组由大肠杆菌重组表达的天蚕素对人肝细胞的毒性,结果显示,浓度低于128 μg/mL时无细胞毒性,在体外试验中也未出现溶血现象,反映了黑水虻抗菌肽具有较高的安全性。
黑水虻抗菌肽经济效益高。由于在饲养基质方面具有灵活性,生产时间短暂,且可产生大量的抗菌物质,如抗菌肽、几丁质以及月桂酸等,黑水虻被称为最有经济价值的昆虫,是联合国粮食及农业组织(Food and Agriculture Organization of the United Nations,FAO)指定的资源昆虫之一。黑水虻能够将餐厨垃圾和畜禽粪便转化为蛋白质和脂肪等营养物质,减少环境污染的同时,处理后得到的虫粉、虫粪等可作为饲料或肥料,具有极高的经济价值,实现了废弃物资源化利用[70]

5 黑水虻抗菌肽在畜禽业的应用

为保障畜禽业的生产,通过在饲粮中添加抗生素来减少畜禽疫病的发生,但这种行为造成了大量抗生素残留于环境中和畜禽体内,破坏生态平衡,危害公众卫生。黑水虻富含丰富的蛋白质,在畜禽养殖方面主要作为饲粮的蛋白质来源,并且黑水虻含有丰富的抗菌肽,抗菌肽由氨基酸组成,不会对动物肠道产生影响,饲喂抗菌肽还能促进动物肠道健康,增强机体免疫力[71]
在水产养殖方面,Zhang等[72]发现用含有100~150 mg/kg黑水虻抗菌肽粗提物的饲料饲养红爪鳌虾,可提高其抗氧化酶活性、非特异性免疫酶活性以及相关免疫基因的表达,增强红爪鳌虾对嗜水气单胞菌的抗性,存活率也因此得到了改善。杨爱熙[73]在鲤鱼饲料中添加富含抗菌肽的黑水虻幼虫替代10%~30%鱼粉,不仅促进鲤鱼生长,提高其对嗜水气单胞菌的免疫能力,而且降低鱼肠道类大肠杆菌和沙门氏菌数量。
在家禽养殖方面,研究表明在家禽饲粮中添加4%~10%黑水虻幼虫粉对家禽生长有积极影响[74]。饲粮中添加5%黑水虻幼虫可调节肉鸡盲肠菌群,有利于肉鸡肠道对营养物质的吸收和消化[75]。饲粮中添加1%黑水虻幼虫粉可增强四川白鹅对禽流感疫苗的免疫效果[76]
在家畜养殖方面,研究表明在育肥猪饲粮中添加4%的黑水虻幼虫粉可增加猪盲肠食糜中有益微生物的数量和有益代谢物(乙酸和乳酸)含量,降低大肠杆菌数量和氮代谢化合物(生物胺和酚类物质)含量[77]。Jin等[78]在饲粮中添加4%黑水虻幼虫,断奶仔猪肠道内乳酸杆菌数量升高,链球菌数量降低,改善了肠道屏障功能,缓解了产肠毒素大肠杆菌K88攻毒产生的腹泻症状。
综上所述,黑水虻抗菌肽可替代抗生素作为保障畜禽生长的免疫增强剂,也可作为提高畜禽生长性能的营养添加剂。

6 小结与展望

解决耐药性问题,限制抗生素的使用是根本,开发新型抗菌药物添加剂是关键。黑水虻抗菌肽具有广谱的抗菌活性,且耐药风险低,是极具潜力的抗生素的替代品之一。但黑水虻抗菌肽代替抗生素在未来的实践中还存在一些问题:1)抗菌肽活性问题。目前关于黑水虻抗菌肽在抗病毒和抗肿瘤方面的研究还不够深入,其作用效果和机制还不清楚;2)抗菌肽的生产加工问题。抗菌肽作为一种小分子多肽,所受影响因素多,如何保持其活性也需要进一步研究;3)抗菌肽的耐药性问题。虽然抗菌肽的作用机制引起病原微生物产生耐药性的机率低,但病原微生物对抗菌肽产生抗性的风险还是存在的,还需要进行评估,避免“超级细菌”的出现;4)抗菌肽与抗生素的协同作用问题。抗菌肽与抗生素的协同作用还需要进一步验证,这也是解决细菌对传统抗生素产生耐药性问题的新思路。黑水虻抗菌肽未来的探索道路仍然很长,我们期待着黑水虻抗菌肽的治疗策略的开发,以提高临床治疗的安全性和有效性。
[1]
BOMAN H G. Antibacterial peptides:basic facts and emerging concepts[J]. Journal of Internal Medicine, 2003, 254(3):197-215.

[2]
BULET P, STÖCKLIN R, MENIN L. Anti-microbial peptides:from invertebrates to vertebrates[J]. Immunological Reviews, 2004, 198(1):169-184.

[3]
柴志强, 王付彬, 郭明昉, 等. 水虻科昆虫及其资源化利用研究[J]. 广东农业科学, 2012, 39(10):182-185,195.

CAI Z Q, WANG F B, GUO M F, et al. Research of Stratiomyidae and its utilization[J]. Guangdong Agricultural Sciences, 2012, 39(10):182-185,195. (in Chinese)

[4]
MÜLLER A, WOLF D, GUTZEIT H O. The black soldier fly,Hermetia illucens—a promising source for sustainable production of proteins,lipids and bioactive substances[J]. Zeitschrift Fur Naturforschung C:Journal of Biosciences, 2017, 72(9/10):351-363.

[5]
IWAI H, NAKAJIMA Y, NATORI S, et al. Solution conformation of an antibacterial peptide,sarcotoxin IA,as determined by 1H-NMR[J]. European Journal of Biochemistry, 1993, 217(2):639-644.

[6]
OTVOS L J. Antibacterial peptides isolated from insects[J]. Journal of Peptide Science:an Official Publication of the European Peptide Society, 2000, 6(10):497-511.

[7]
SZCZEPANIK K, ŚWIATKIEWICZ M. Hermetia illucens as a source of antimicrobial peptides—a review of in vitro and in vivo studies[J]. Annals of Animal Science, 2024, 24(1):77-88.

[8]
SANG Y M, BLECHA F. Antimicrobial peptides and Bacteriocins:alternatives to traditional antibiotics[J]. Animal Health Research Reviews, 2008, 9(2):227-235.

[9]
包顺才, 卢雪, 侯晓晖. 昆虫先天免疫调控机制的研究进展[J/OL]. 寄生虫与医学昆虫学报, 2024:1-15[2024-06-09]. http://kns.cnki.net/kcms/detail/11.3158.R.20240517.1823.002.html.

BAO S C, LU X, HOU X J. Research progress on innate immune regulatory mechanisms in insects[J/OL]. Acta Parasitologica Et Medica Entomologica Sinica, 2024:1-15[2024-06-09]. http://kns.cnki.net/kcms/detail/11.3158.R.20240517.1823.002.html. (in Chinese)

[10]
LINDSAY S A, WASSERMAN S A. Conventional and non-conventional Drosophila Toll signaling[J]. Developmental and Comparative Immunology, 2014, 42(1):16-24.

[11]
KUMAR D M, KUMAR T B, K J, et al. Insect-pathogen crosstalk and the cellular-molecular mechanisms of insect immunity:uncovering the underlying signaling pathways and immune regulatory function of non-coding RNA[J]. Frontiers in Immunology, 2023,14:1169152.

[12]
XIA J, GE C R, YAO H Y. Antimicrobial peptides from black soldier fly (Hermetia illucens) as potential antimicrobial factors representing an alternative to antibiotics in livestock farming[J]. Animals, 2021, 11(7):1937.

[13]
WU Q H, PATOČKA J, KUČA K. Insect antimicrobial peptides,a mini review[J]. Toxins, 2018, 10(11):461.

[14]
章启慧, 李昆太, 王会, 等. 黑水虻抗菌肽研究进展[J]. 江西农业大学学报, 2022, 44(4):996-1004.

ZHANG Q H, LI K T, WANG H, et al. Research progress of antimicrobial peptides from black soldier fly[J]. Acta Agriculturae Universitatis Jiangxiensis (Natural Sciences Edition), 2022, 44(4):996-1004. (in Chinese)

[15]
BAEK M H, KAMIYA M, KUSHIBIKI T, et al. Lipopolysaccharide-bound structure of the antimicrobial peptide cecropin P1 determined by nuclear magnetic resonance spectroscopy[J]. Journal of Peptide Science:an Official Publication of the European Peptide Society, 2016, 22(4):214-221.

[16]
MALANOVIC N, LOHNER K. Gram-positive bacterial cell envelopes:the impact on the activity of antimicrobial peptides[J]. Biochimica et Biophysica Acta, 2016, 1858(5):936-946.

[17]
CORRÊA J A F, EVANGELISTA A G, NAZARETH T D M, et al. Fundamentals on the molecular mechanism of action of antimicrobial peptides[J]. Materialia, 2019,8:100494.

[18]
OREN Z, SHAI Y. Mode of action of linear amphipathic α-helical antimicrobial peptides[J]. Peptide Science, 1998, 47(6):451-463.

[19]
SHAI Y. Mechanism of the binding,insertion and destabilization of phospholipid bilayer membranes by alpha-helical antimicrobial and cell non-selective membrane-lytic peptides[J]. Biochimica et Biophysica Acta, 1999, 1462(1/2):55-70.

[20]
MCDOALD C, JOVANOVIC G, WALLACE B A, et al. Structure and function of PspA and Vipp1 N-terminal peptides:insights into the membrane stress sensing and mitigation[J]. Biochimica et Biophysica Acta-Biomembranes, 2017, 1859(1):28-39.

[21]
DI SOMMA A, MORETTA A, CANÉ C, et al. Structural and functional characterization of a novel recombinant antimicrobial peptide from Hermetia illucens[J]. Current Issues in Molecular Biology, 2021, 44(1):1-13.

[22]
陈旋, 李莉蓉. 抗菌肽P7抑制大肠杆菌的非膜作用机制[J]. 微生物学报, 2016, 56(11):1737-1745.

CHEN X, LI L R. Non-membrane mechanisms of antimicrobial peptide P7 against Escherichia coli[J]. Acta Microbiologica Sinica, 2016, 56(11):1737-1745.

[23]
MATTIUZZO M, BANDIERA A, GENNARO R, et al. Role of the Eschericha coli SbmA in the antimicrobial activity of proline-rich peptides[J]. Molecular Microbiology, 2007, 66(1):151-163.

[24]
OTVOS L J, O I, ROGERS M E, et al. Interaction between heat shock proteins and antimicrobial peptides[J]. Biochemistry, 2000, 39(46):14150-14159.

PMID

[25]
DHO M, CANDIAN V, TEDESCHI R. Insect antimicrobial peptides:advancements,enhancements and new challenges[J]. Antibiotics, 2023, 12(6):952.

[26]
VAN MOLL L, DE SMET J, PAAS A, et al. in vitro evaluation of antimicrobial peptides from the black soldier fly (Hermetia illucens) against a selection of human pathogens[J]. Microbiology Spectrum, 2022, 10(1):e0166421.

[27]
王路逸, 李泽轩, 易犁, 等. 黑水虻对三种病原菌的杀灭作用研究[J]. 安全与环境工程, 2022, 29(1):199-206.

WANG L Y, LI Z X, YI L, et al. Killing effect on three pathogenic bacteria by black soldier fly larvae[J]. Safety and Environmental Engineering, 2022, 29(1):199-206. (in Chinese)

[28]
MORETTA A, SALVIA R, SCIEUZO C, et al. A bioinformatic study of antimicrobial peptides identified in the black soldier fly (BSF) Hermetia illucens (Diptera:Stratiomyidae)[J]. Scientific Reports, 2020, 10(1):16875.

[29]
LAURENCE M V, MILAN W, JEROEN S D, et al. In-depth biological characterization of two black soldier fly anti-Pseudomonas peptides reveals LPS-binding and immunomodulating effects[J]. mSphere, 2023, 8(5):e00454-23.

[30]
SCIEUZO C, GIGLIO F, RINALDI R, et al. in vitro evaluation of the antibacterial activity of the peptide fractions extracted from the hemolymph of Hermetia illucens (Diptera:Stratiomyidae)[J]. Insects, 2023, 14(5):464.

[31]
王龙, 廖业, 孙虹霞, 等. Cu2+胁迫对黑水虻幼虫抗菌肽组分及抑菌活性的影响[J]. 环境昆虫学报, 2019, 41(6):1348-1354.

WANG L, LIAO Y, SUN H X, et al. Effects of dietary copper on the components and antimicrobial activities of antibacterial peptides from the larvae of Hermetia illucens L.[J]. Journal of Environmental Entomology, 2019, 41(6):1348-1354. (in Chinese)

[32]
FAHMY L, ALI Y M, SEILLY D, et al. An attacin antimicrobial peptide,Hill_BB_C10074,from Hermetia illucens with anti-Pseudomonas aeruginosa activity[J]. BMC Microbiology, 2023, 23(1):378.

[33]
HE H R, HUANG X Z, WEN C Y, et al. A novel defensin-like peptide C-13326 possesses protective effect against multidrug-resistant Aeromonas schubertii in hybrid Snakehead (Channa maculate ♀×Channa argus ♂)[J]. Journal of Fish Diseases, 2024, 47(4):e13922.

[34]
ACHUOTH M P, MUDALUNGU C M, OCHIENG B O, et al. Unlocking the potential of substrate quality for the enhanced antibacterial activity of black soldier fly against pathogens[J]. ACS Omega, 2024, 9(7):8478-8489.

[35]
LEE K S, YUN E Y, GOO T W. Evaluation of the antimicrobial activity of an extract of Lactobacillus casei-infected Hermetia illucens larvae produced using an automatic injection system[J]. Animals, 2020, 10(11):2121.

[36]
张飞骏, 韩新才, 厉莉, 等. 黑水虻抗菌肽对曲霉和沙门氏菌的抑制作用及其营养成分研究[J]. 中国饲料, 2023(9):26-29,37.

ZHANG F J, HAN X C, LI L, et al. Inhibitory effect of antibacterial peptides from black soldier flies on Aspergillus and Salmonella and their nutritional components[J]. China Feed, 2023(9):26-29,37. (in Chinese)

[37]
SUN Q L, ZHANG X, OUYANG Y, et al. Appressoria formation in phytopathogenic fungi suppressed by antimicrobial peptides and hybrid peptides from black soldier flies[J]. Genes, 2023, 14(5):1096.

[38]
HEUEL M, KREUZER M, GANGNAT I D M, et al. Low transfer of cadmium,lead and aflatoxin B1 to eggs and meat of laying hens receiving diets with black soldier fly larvae reared on contaminated substrates[J]. Animal Feed Science and Technology, 2023,304:115733.

[39]
MEIJER N, STOOPEN G, VAN DER FELS-KLERX H J, et al. Aflatoxin B1 conversion by black soldier fly (Hermetia illucens) larval enzyme extracts[J]. Toxins, 2019, 11(9):532.

[40]
宫霞, 施用晖, 乐国伟. 昆虫抗菌肽生物学活性及其应用前景[J]. 中国畜牧杂志, 2004, 40(8):37-40.

GONG X, SHI Y H, YUE G W. Bioactivity and application prospect of insect antibacterial peptides in animal scicence[J]. Chinese Journal of Animal Science, 2004, 40(8):37-40. (in Chinese)

[41]
徐平, 吕丁丁, 郭锡杰. 昆虫抗菌肽对肿瘤细胞的抑制作用研究进展[J]. 基因组学与应用生物学, 2021, 40(2):923-928.

XU P, LV D D, GUO X J. Advances in inhibitory effects of insect antimicrobial peptides on tumor cells[J]. Genomics and Applied Biology, 2021, 40(2):923-928. (in Chinese)

[42]
田忠. 黑水虻抗菌肽分离纯化及活性成分对CNE2细胞影响的研究[D]. 硕士学位论文. 遵义: 遵义医学院, 2017.

TIAN Z. Separation and purification of antibacterial peptide from Hermetia illucens and the effects of active ingredient on the CNE2 cells abstract[D]. Master’s Thesis. Zunyi: Zunyi Medical University, 2017. (in Chinese)

[43]
冯群, 高嘉敏, 夏嫱. 黑水虻幼虫抗菌肽粗提物敏感肿瘤细胞株筛选及溶血作用研究[J]. 医学综述, 2020, 26(6):1214-1218,1223.

FENG Q, GAO J M, XIA Q. Selection of tumor cells sensitive to crude extracts of antibacterial peptides from H.illucens larvae and study on related hemolysis[J]. Medical Recapitulate2020, 26(6):1214-1218,1223. (in Chinese)

[44]
高嘉敏, 许晓燕, 胡紫媛, 等. 黑水虻抗菌肽HI-3对人结肠癌HCT-8细胞谷氨酰胺和谷氨酸代谢通路的影响[J]. 昆虫学报, 2021, 64(9):1041-1049.

GAO J M, XU X Y, HU Z Y, et al. Effects of antimicrobial peptide HI-3 from Hermetia illucens (Diptera:Stratiomyidae) on the glutamine and glutamic acid metabolic pathway of human colon carcinoma HCT-8 cells[J]. Acta Entomologica Sinica, 2021, 64(9):1041-1049. (in Chinese)

[45]
冯群, 徐晨露, 崔会程, 等. 黑水虻幼虫抗菌肽HI-3对结肠癌HCT-8细胞凋亡影响及其机制研究[J]. 环境昆虫学报, 2023, 45(5):1375-1384.

FENG Q, XU C L, CUI H C, et al. Study on the mechanism of apoptosis of colon cancer HCT-8 cells treated by antimicrobial peptides HI-3 from Hermetia illucens larvae[J]. Journal of Environmental Entomology, 2023, 45(5):1375-1384. (in Chinese)

[46]
PIENAAR R D, GILBERT C, BELLIARDO C, et al. First evidence of past and present interactions between viruses and the black soldier fly,Hermetia illucens[J]. Viruses, 2022, 14(6):1274.

[47]
FENG M, FEI S G, XIA J M, et al. Antimicrobial peptides as potential antiviral factors in insect antiviral immune response[J]. Frontiers in Immunology, 2020,11:2030.

[48]
DUTTA P, SAHU R K, DEY T, et al. Beneficial role of insect-derived bioactive components against inflammation and its associated complications (colitis and arthritis) and cancer[J]. Chemico-Biological Interactions, 2019,313:108824.

[49]
LI Z Z, MAO R Y, TENG D, et al. Antibacterial and immunomodulatory activities of insect defensins-DLP2 and DLP4 against multidrug-resistant Staphylococcus aureus[J]. Scientific Reports, 2017, 7(1):12124.

[50]
许晓燕, 孙虹霞, 崔会程, 等. 黑水虻抗菌肽HI-3对RAW264.7细胞免疫调控作用研究[J]. 环境昆虫学报, 2023, 45(2):464-472.

XU X Y, SUN H X, CUI H C, et al. Immunomodulatory effect of antimicrobial peptide HI-3 from Hermetia illucens L.on RAW264.7 cells[J]. Journal of Environmental Entomology, 2023, 45(2):464-472. (in Chinese)

[51]
MENG Y Q, ZHANG X X, ZHANG Z L, et al. Effects of microorganisms on growth performance,body composition,digestive enzyme activity,Intestinal bacteria flora and antimicrobial peptide (AMP) content of black soldier fly larvae (Hermetia illucens)[J]. Animals, 2023, 13(17):2722.

[52]
ZDYBICKA B A, BULAK P, POLAKOWSHI C, et al. Immune response in the larvae of the black soldier fly Hermetia illucens[J]. Invertebrate Survival Journal, 2017, 14(1):9-17.

[53]
ZHANG S Y, XIONG P, MA Y S, et al. Transformation of food waste to source of antimicrobial proteins by black soldier fly larvae for defense against marine Vibrio parahaemolyticus[J]. Science of the Total Environment, 2022,826:154163.

[54]
胡漂琪. 黑水虻抗菌肽的诱导条件优化及分离纯化研究[D]. 硕士学位论文. 武汉: 武汉工程大学, 2023.

HU P Q. Black soldier fly antimicrobial peptides induced conditions optimization and research of isolation and purification[D]. Master’s Thesis. Wuhan: Wuhan Institute of Technology, 2020. (in Chinese)

[55]
金宁, 姜慧敏, 任苗苗, 等. 餐厨垃圾酸碱度对黑水虻灭活致病菌效率影响[J]. 大连理工大学学报, 2023, 63(3):265-273.

JIN N, JIANG H M, REN M M, et al. Food waste pH effect on inactivation efficiency of pathogenic bacteria by black soldier fly larvae[J]. Journal of Dalian University of Technology, 2023, 63(3):265-273. (in Chinese)

[56]
VOGEL H, MÜLLER A, HECKEL D G, et al. Nutritional immunology:diversification and diet-dependent expression of antimicrobial peptides in the black soldier fly Hermetia illucens[J]. Developmental & Comparative Immunology, 2018,78:141-148.

[57]
CANDIAN V, MENEGUZ M, TEDESCHI R. Immune responses of the black soldier fly Hermetia illucens (L.) (Diptera:Stratiomyidae) reared on catering waste[J]. Life, 2023, 13(1):213.

[58]
SHAH P N, RUAN X Y, VAN LOON J J A, et al. Temperature-modulated host-pathogen interactions between Hermetia illucens L.(Diptera:Stratiomyidae) and Pseudomonas protegens Pf-5[J]. Journal of Invertebrate Pathology, 2023,198:107934.

[59]
夏嫱, 赵启凤, 廖业, 等. 黑水虻抗菌肽粗提物生物学稳定性观察[J]. 山东医药, 2013, 53(36):91-92.

XIA Q, ZHAO Q F, LIAO Y, et al. Observation on biological stability of crude extracts of antimicrobial peptides from black soldier fly[J]. Shandong Medical Journal, 2013, 53(36):91-92. (in Chinese)

[60]
鹿震涛, 周瑞, 张云婷, 等. 饲料来源对黑水虻幼虫生长和虫体营养物质成分的影响[J/OL]. 中国饲料.1-7[2024-01-18].https://doi.org/10.15906/j.cnki.cn11-2975/s.2023070036-01.

LU Z T, ZHOU R, ZHANG Y T, et al. Effects of feed sources on the growth and nutritional components of black soldier fly larvae[J/OL]. China Feed.1-7[2024-01-18].https://doi.org/10.15906/j.cnki.cn11-2975/s.2023070036-01. (in Chinese)

[61]
尚田田, 徐彦召, 杭柏林, 等. 抗菌肽的抗菌机理及构效关系研究进展[J]. 黑龙江畜牧兽医, 2013(9):26-28.

SHANG T T, XU Y Z, HANG B L, et al. Research progress on antimicrobial mechanism andstructure-activity relationship of antimicrobial peptides[J]. Heilongjiang Animal Science and Veterinary Medicine, 2013(9):26-28. (in Chinese)

[62]
沙国萌, 陈冠军, 陈彤, 等. 抗生素耐药性的研究进展与控制策略[J]. 微生物学通报, 2020, 47(10):3369-3379.

SHA G M, CHEN G J, CHEN T, et al. Strategies for controlling antibiotic resistance:a review[J]. Microbiology, 2020, 47(10):3369-3379. (in Chinese)

[63]
KALSY M, TONK M, HARDT M, et al. The insect antimicrobial peptide cecropin a disrupts uropathogenic Escherichia coli biofilms[J]. NPJ Biofilms and Microbiomes, 2020, 6(1):6.

[64]
HOLLMANN A, MARTINEZ M, MATURANA P, et al. Antimicrobial peptides:interaction with model and biological membranes and synergism with chemical antibiotics[J]. Frontiers in Chemistry, 2018,6:204.

[65]
李虎良, 张蕾. 抗生素耐药性的分子机制及抑菌策略[J/OL]. 中国生物化学与分子生物学报, 2024:1-15[2024-06-09].https://doi.org/10.13865/j.cnki.cjbmb.2024.01.1365.

LI H L, ZHANG L. Molecular mechanisms and antibacterial strategies of antibiotic resistance[J/OL]. Chinese Journal of Biochemistry and Molecular Biology, 2024:1-15[2024-06-09].https://doi.org/10.13865/j.cnki.cjbmb.2024.01.1365. (in Chinese)

[66]
MWANGI J, HAO X, LAI R, et al. Antimicrobial peptides:new hope in the war against multidrug resistance[J]. Zoological Research, 2019, 40(6):488-505.

[67]
ALVAREZ D, WILKINSON K A, TREILHOU M, et al. Prospecting peptides isolated from black soldier fly (Diptera:Stratiomyidae) with antimicrobial activity against Helicobacter pylori (Campylobacterales:Helicobacteraceae)[J]. Journal of Insect Science, 2019, 19(6):17.

[68]
LEE D H, CHU K B, KANG H J, et al. Peptides in the hemolymph of Hermetia illucens larvae completely inhibit the growth of Klebsiella pneumonia in vitro and in vivo[J]. Journal of Asia-Pacific Entomology, 2020, 23(1):36-43.

[69]
PENG J, LI L, WAN Y, et al. Molecular characterization and antimicrobial activity of cecropin family in Hermetia illucens[J]. Developmental and Comparative Immunology, 2024,152:105111.

[70]
杨航, 袁泉, 吕巍巍, 等. 黑水虻幼虫的营养特性及其在水产饲料中的应用进展[J]. 华中农业大学学报, 2024, 43(2):164-174.

YANG H, YUAN Q, LV W W, et al. Progress on nutritional characteristics of black soldier fly larvae and its application in aquatic feeds[J]. Journal of Huazhong Agricultural University, 2024, 43(2):164-174. (in Chinese)

[71]
ELAHI U, XU C C, WANG J, et al. Insect meal as a feed ingredient for poultry[J]. Animal Bioscience, 2022, 35(2):332-346.

[72]
ZHANG Z L, MENG Y Q, LI J J, et al. Effects of antimicrobial peptides from dietary Hermetia illucens larvae on the growth,immunity,gene expression,intestinal microbiota and resistance to Aeromonas hydrophila of juvenile red claw crayfish (Cherax quadricarinatus)[J]. Fish & Shellfish Immunology, 2024,147:109437.

[73]
杨爱熙. 黑水虻抗菌肽的诱导及其对鲤鱼生长性能、免疫功能影响的研究[D]. 硕士学位论文. 雅安: 四川农业大学, 2023.

YANG A X. Studies on the Induction of Antibacterial peptides from Hermetia illucens and its effects on the growth performance and immune function of carps[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[74]
MAT K, ABDUL KARI Z, RUSLI N D, et al. Effects of the inclusion of black soldier fly larvae (Hermetia illucens) meal on growth performance and blood plasma constituents in broiler chicken (Gallus gallus domesticus) production[J]. Saudi Journal of Biological Sciences, 2022, 29(2):809-815.

[75]
BIASATO I, FERROCINO I, DABBOU S, et al. Black soldier fly and gut health in broiler chickens:insights into the relationship between Cecal microbiota and intestinal mucin composition[J]. Journal of Animal Science and Biotechnology, 2020,11:11.

[76]
桂福星. 黑水虻幼虫粉对四川白鹅禽流感疫苗免疫增强作用的研究[D]. 硕士学位论文. 重庆: 西南大学, 2023.

GUI F X. Study on enhancement of immunity of Sichuan white geese with avian influenza vaccine by Hermetia illucens larvae meal[D]. Master’s Thesis. Chongqing: Southwest University, 2023. (in Chinese)

[77]
余苗, 李贞明, 王刚, 等. 黑水虻幼虫粉对育肥猪盲肠食糜主要微生物数量和代谢产物的影响[J]. 畜牧兽医学报, 2020, 51(2):299-310.

DOI

YU M, LI Z M, WANG G, et al. Effects of Hermetia illucens larvae meal on the number of main microbes and metabolites in the cecal digesta of finishing pigs[J]. Acta Veterinaria et Zootechnica Sinica, 2020, 51(2):299-310. (in Chinese)

[78]
JIN X X, YUAN B Y, LIU M M, et al. Dietary Hermetia illucens larvae replacement alleviates diarrhea and improves intestinal barrier function in weaned piglets challenged with enterotoxigenic Escherichia coli K88[J]. Frontiers in Veterinary Science, 2021,8:746224.

Outlines

/