RESEARCH PAPER

Effects of Dietary Coated Betaine on Nutrient Apparent Digestibility, Rumen Fermentation Characteristics, Rumen and Fecal Microbiota of Pingliang Red Cattle in Late Fattening Stage

  • DI Yapeng , 1 ,
  • FANG Yongru 1, * ,
  • ZHANG Lingyun 2 ,
  • JIAO Ting 3 ,
  • ZHANG Xiaoqiang 4 ,
  • MENG Huaiwang 5 ,
  • ZHAO Shengguo , 1, ** ,
  • CHE Longjie , 6, **
Expand
  • 1 College of Animal Science and Technology, Gansu Agricultural University, Lanzhou 730070, China
  • 2 Gansu Dongniu Science and Technology Innovation Development Center, Jingchuan 744300, China
  • 3 Sino-US Grassland Animal Husbandry Sustainable Development Research Center, Key Laboratory of Grassland Ecosystem, Ministry of Education, College of Pratacultural Science, Gansu Agricultural University, Lanzhou 730070, China
  • 4 Red Cattle Industry Service Center in Jingchuan County, Gansu Province, Jingchuan 744300, China
  • 5 Chongqing Unibio Biological Technology Co., Ltd., Chongqing 400711, China
  • 6 Gansu Provincial Animal Husbandry Technology Extension General Station, Lanzhou 730030, China
** ZHAO Shengguo, professor, E-mail: ;
CHE Longjie, senior engineer, E-mail:

* Contributed equally

Received date: 2024-03-06

  Online published: 2024-11-09

Abstract

This experiment was conducted to investigate the effects of dietary coated betaine (CBet) on nutrient apparent digestibility, rumen fermentation characteristics and rumen and fecal microbiota of Pingliang red cattle in late fattening stage. Eighteen 20-month-old Pingliang red bulls with an average body weight of (470.78±16.10) kg, good condition and consistent body type were randomly divided into 3 groups with 6 replicates per group and 1 bull per replicate. Bulls in the control group were fed a basal diet, and the others in experimental groups Ⅰ and Ⅱ were fed the basal diet supplemented with 3.5 and 7.0 g/d CBet, respectively. The pre-trial period lasted for 7 days and the experimental period lasted for 54 days. The results showed as follows: 1) compared with the control group, the crude protein apparent digestibility in experimental group Ⅰ was significantly increased (P<0.05), and the neutral detergent fiber apparent digestibility in experimental groups Ⅰ and Ⅱ was extremely significantly increased (P<0.01). 2) Compared with the control group, the rumen pH and ammonia nitrogen (NH3-N) content in experimental groups Ⅰ and Ⅱ were extremely significantly decreased (P<0.01), and the rumen contents of acetate, butyrate and valerate in experimental group Ⅰ were significantly or extremely significantly increased (P<0.05 or P<0.01). 3) Compared with the control group, the Shannon index of rumen microbiota in experimental groups was extremely significantly increased (P<0.01), and the relative abundances of dominant phyla (Bacteroidota, Patescibacteria and Fibrobacterota) and dominant genera (Prevotella, Rikenellaceae_RC9_gut_group and Succiniclasticum) in rumen were increased (P>0.05). 4) Compared with the control group, the relative abundances of dominant phylum (Firmicutes) and dominant genera (Rumenococcaceae_UCG-005 and Rikenellaceae_RC9_gut_group) in feces in experimental groups were increased (P>0.05), while the relative abundances of Bacteroidota, Proteobacteria, Verrucomicrobiota and Alistipes in feces were decreased (P>0.05). In conclusion, dietary CBet can improve the nutrient apparent digestibility of Pingliang red cattle in the late fattening stage, increase the relative abundance of specific microbiota in rumen, increase the microbial diversity in rumen, and then change the rumen microbiota and fermentation mode, which can improve the digestibility of fiber and maintain rumen health; meanwhile, dietary CBet also can improve the microbiota balance in the hindgut. The optimum supplemental level of CBet is 3.5 g/d.

Cite this article

DI Yapeng , FANG Yongru , ZHANG Lingyun , JIAO Ting , ZHANG Xiaoqiang , MENG Huaiwang , ZHAO Shengguo , CHE Longjie . Effects of Dietary Coated Betaine on Nutrient Apparent Digestibility, Rumen Fermentation Characteristics, Rumen and Fecal Microbiota of Pingliang Red Cattle in Late Fattening Stage[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 7120 -7133 . DOI: 10.12418/CJAN2024.607

反刍动物育肥后期,由于体型过大与采食量增加,瘤胃负担也相应加重[1]。为了减缓反刍动物育肥后期瘤胃负担,应采取合理搭配饲粮、控制采食量、添加饲料添加剂等措施,这不仅可满足生产需求,还有利于动物机体健康生长。然而,在养殖过程中滥用药物添加剂所导致的抗生素残留和细菌耐药性的问题已经严重影响到养殖行业的健康发展和人类健康[2]。随着我国2020年饲料端全面禁抗的政策落实,这使得绿色安全、无毒的功能性饲料添加剂逐步成为畜牧养殖行业的热点和重点。甜菜碱(betaine,Bet)广泛存在于动植物和微生物中,因首次于甜菜的糖蜜中发现而得名,其作为饲料添加剂在动物饲料中的应用已有50年历史[3]。饲粮添加Bet可刺激食欲,提高采食量和日增重,降低料重比;Bet是高效的甲基供体,能够促进脂肪代谢,调节体内渗透压,缓解应激,提高饲料维生素效价,进而提高动物生产性能[4]
平凉红牛是甘肃陇东地区农耕生产体系的珍贵遗产,属于地方肉牛遗传资源。平凉红牛的经济用途经历了由役用到肉用的发展过程,其不仅具有适应性强、耐粗饲、早熟和易肥等特点,还是国内唯一能够产出高档优质雪花牛肉的品种[5-6]。由于反刍动物复杂的瘤胃发酵环境,直接饲喂Bet会被瘤胃微生物降解成三甲胺,添加效果不理想[7]。因此,反刍动物生产中多采用包被甜菜碱(coated betaine,CBet)的工艺形式进行添加饲喂。CBet又名过瘤胃甜菜碱,是以物理和化学方法在工业条件下将Bet保护起来,使其能顺利通过瘤胃进入真胃和后消化道系统进行消化和吸收,从而提高利用效率[8]。在反刍动物中,Wang等[9]研究表明,饲粮添加Bet可以提高安格斯公牛瘤胃中白色瘤胃球菌(Ruminococcus albus)、产琥珀酸纤维杆菌(Fibrobacter succinogenes)和嗜淀粉瘤胃杆菌(Ruminobacter amylophilus)的数量,并提高纤维素酶和蛋白酶等微生物酶活性,进而促进营养物质在瘤胃中的消化,提高瘤胃总挥发性脂肪酸(TVFA)含量,促进安格斯公牛生长。由此可见,Bet具备多种潜在的营养生理功能,是一种重要的代谢调节物。虽然对Bet的试验研究较多,但Bet与机体代谢关系的研究主要停留在表观指标及相关酶活性和激素水平层次,其作用机理还没有定论。因此,在本课题组前期试验基础上,本试验以育肥后期平凉红牛公牛为研究对象,旨在研究饲粮添加CBet对其营养物质表观消化率、瘤胃发酵特性以及瘤胃和粪便微生物区系的影响,为CBet改善瘤胃和后肠道菌群功能,促进机体健康提供理论依据。

1 材料与方法

1.1 试验时间与地点

本试验于2023年4—6月在甘肃省平凉市泾川县甘肃东牛科技创新发展中心养殖场进行。肉牛育肥最适生长温度为10~15 ℃[10]。泾川县属于温带大陆性气候,具有四季分明、冬长夏短、雨热同季以及冬寒夏热等特点。试验期间,养殖场4—5月份平均气温在13 ℃左右,天气较为凉爽,5—6月份气温逐步升高,平均气温在18 ℃左右。该试验条件基本满足肉牛育肥最适条件。

1.2 试验材料与饲粮设计

本试验所使用的CBet呈暗灰色粉末状,纯度为89.0%,以酵母粉为载体。根据《肉牛饲养标准》(NY/T 815—2004),设计平凉红牛育肥后期阶段最优全价配合饲粮,基础饲粮组成及营养水平见表1。饲粮粗蛋白质(CP)、粗灰分(Ash)、钙(Ca)和磷(P)含量分别参照GB/T 6432—2018、GB/T 6438—2007、GB/T 6436—2018和GB/T 6437—2018方法测定,中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量参照范氏(Van Soest)洗涤纤维法[11]测定。试验动物和基础饲粮均由甘肃东牛科技创新发展中心提供。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

原料Ingredients 含量Content 营养水平Nutrient levels2) 含量Content
青贮玉米Silage corn 60.00 消化能DE/(MJ/kg) 5.77
玉米Corn 21.00 粗蛋白质CP 11.40
小麦秸秆Wheat straw 8.00 中性洗涤纤维NDF 60.97
豆粕Soybean meal 7.40 酸性洗涤纤维ADF 35.97
麦麸Wheat bran 1.60 粗灰分Ash 15.22
氯化钠NaCl 0.32 钙Ca 0.62
磷酸氢钙CaHPO4 0.32 磷P 0.32
预混料Premix1) 1.36
合计Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Cu (as copper sulfate) 10 mg,Fe (as ferrous sulfate) 50 mg,Zn (as zinc sulfate)30 mg,Mn (as manganese sulfate) 40 mg,I (as potassium iodide) 0.5 mg,VA 2 200 IU,VD 275 IU,VE 15 IU。

2)消化能为计算值(参照NY/T 815—2004计算),其余为实测值。DE was a calculated value referred to NY/T 815—2004, while the others were measured values.

1.3 试验设计及饲养管理

选取18头20月龄、平均体重为(470.78±16.10) kg、体况良好、体型一致且处于同一饲养管理条件下的育肥后期平凉红牛公牛,随机分为3组,每组6个重复,每个重复1头牛。对照组饲喂基础饲粮,试验Ⅰ组和试验Ⅱ组分别饲喂在基础饲粮中添加3.5和7.0 g/d CBet的饲粮。预试期7 d,正试期54 d。
试验开始前对圈舍进行彻底消毒,并对试验牛进行驱虫免疫和佩戴耳标。整个试验阶段饲喂全混合日粮,每日08:30和17:30各饲喂1次,将所添加的CBet与100 g精料混合均匀,置于饲粮上1/4处确保全部被采食。试验全程为肉牛提供清洁、充足的饮水;定期清理牛舍,保持一定的剩料量;日常饲养管理、免疫程序和疾病治疗根据该场规定进行。

1.4 样品采集及处理

饲粮和粪便样品采集及处理:正试期第36~38天,连续3 d收集饲粮和粪便样品,将饲粮样品混合均匀后采用四分法收集饲粮;每隔4 h穿戴一次性长臂手套直肠采集粪便1次,将每头牛3 d收集的粪便样品混合后,取400 g样品加入10%的硫酸40 mL,于-20 ℃保存待测;正试期第52天,采集直肠粪便5 g装入5 mL离心管中并编号,迅速投入到液氮罐中,随后转移至-80 ℃保存待测。
瘤胃液采集及处理:采用胃管法[12]采集瘤胃液,每头试验牛采集约300 g瘤胃内容物样品,通过4层纱布过滤后,取15 mL滤液立即测定pH;然后先取10 mL瘤胃液装于10 mL离心管中并编号,迅速投入到液氮罐中,随后转移至-80 ℃超低温冰箱中保存,用于微生物区系分析;最后取10 mL瘤胃液装入10 mL离心管中并编号,放入-20 ℃冰箱保存,用于瘤胃发酵指标测定。

1.5 测定指标及方法

1.5.1 营养物质表观消化率测定

饲粮和粪便样品中干物质(DM)、CP和粗脂肪(EE)含量分别参照GB/T 6435—2014、GB/T 6432—2018和GB/T 6433—2006方法测定,NDF和ADF含量参照范氏(Van Soest)洗涤纤维法[11]测定。各营养物质表观消化率的计算公式如下:
某营养物质表观消化率(%)=100×(食入该营养物质的含量-粪便排出该营养物质的含量)/食入该营养物质的含量。

1.5.2 瘤胃发酵指标测定

瘤胃液pH采用赛多利斯PB-10酸度计测定;参照冯宗慈等[13]采用比色法测定瘤胃氨态氮(NH3-N)含量;瘤胃挥发性脂肪酸(VFA)含量采用气相色谱仪(Agilent,7890B,德国)测定[14]

1.5.3 瘤胃和粪便微生物区系测定

将采集的瘤胃液、新鲜粪便样品经液氮速冻、在干冰条件下送至北京百迈客生物科技有限公司,采用Illumina MiSeq/NovaSeq平台对18头平凉红牛瘤胃液和粪便样本中细菌群落DNA片段进行16S rRNA基因的V3~V4区双端(paired-end)测序。从DNA提取到上机测序步骤如下:1)DNA提取与检测。按照DNA提取试剂盒[天根生化科技(北京)有限公司]说明书步骤提取DNA,提取的DNA采用1.8%琼脂糖凝胶电泳进行质量检测。2)目标片段PCR扩增。使用引物338F(5'-ACTCCTACGGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对16S rDNA可变区(V3+V4)进行PCR扩增。3)扩增产物与磁珠按照1∶1混匀后纯化回收。4)扩增产物荧光定量。5)测序文库制备。6)上机进行高通量测序。7)结果分析。对问题样本进行重测、补测,然后切除序列的引物片段,弃去未匹配引物的序列,并进行质控、去噪、拼接和去嵌合体等步骤。利用VSEARCH软件对序列进行操作分类单元(OTU)聚类,并用QIIME 2软件对OTU进行物种注释及丰度统计,绘制稀释曲线并分析α多样性,使用主成分分析(PCA)或主坐标分析(PCoA)法分析β多样性,然后在门和属分类水平上,统计样品的物种丰度和组成。

1.6 数据统计分析

试验数据采用Excel 2019进行初步整理,然后用SPSS 26.0软件进行单因素方差分析,并采用Duncan氏法进行多重比较,结果采用“平均值±标准误”形式表示,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 CBet对育肥后期平凉红牛营养物质表观消化率的影响

表2可知,与对照组相比,试验Ⅰ组育肥后期平凉红牛CP表观消化率显著提高(P<0.05),试验Ⅱ组CP表观消化率有提高趋势,但差异不显著(P>0.05);试验Ⅰ组和试验Ⅱ组ADF表观消化率极显著提高(P<0.01);试验Ⅰ组和试验Ⅱ组DM、EE和NDF表观消化率均有所提高,但差异均不显著(P>0.05)。
表2 CBet对育肥后期平凉红牛营养物质表观消化率的影响

Table 2 Effects of CBet on nutrient apparent digestibility of Pingliang red cattle in late fattening stage %

项目
Items
对照组
Control group
试验Ⅰ组
Experimental group I
试验Ⅱ组
Experimental group Ⅱ
P
P-value
干物质DM 81.67±0.29 84.48±0.09 83.67±1.39 0.119
粗蛋白质CP 67.44±1.54b 72.61±0.36a 69.58±0.99ab 0.039
粗脂肪EE 60.28±0.48 64.52±2.18 63.68±1.45 0.201
酸性洗涤纤维ADF 36.46±1.08Bb 46.42±0.96Aa 45.11±1.91Aa 0.004
中性洗涤纤维NDF 50.38±1.10 54.70±2.51 52.05±1.41 0.295

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05), and with different capital letter superscripts mean extremely significant difference (P<0.01). The same as below.

2.2 CBet对育肥后期平凉红牛瘤胃发酵特性的影响

表3可知,与对照组相比,试验Ⅰ组和试验Ⅱ组育肥后期平凉红牛瘤胃pH和NH3-N含量极显著降低(P<0.01),pH分别降低了6.88%和7.03%,NH3-N含量分别降低了8.66%和23.56%;试验Ⅰ组瘤胃乙酸、丁酸和戊酸含量显著或极显著提高(P<0.05或P<0.01);试验Ⅱ组瘤胃乙酸和戊酸含量有提高趋势,但差异不显著(P>0.05)。各组间瘤胃TVFA、丙酸、异丁酸、异戊酸含量以及乙酸/丙酸值均无显著差异(P>0.05)。
表3 CBet对育肥后期平凉红牛瘤胃发酵特性的影响

Table 3 Effects of CBet on rumen fermentation characteristics of Pingliang red cattle in late fattening stage

项目
Items
对照组
Control group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
P
P-value
pH 6.54±0.05Aa 6.09±0.09Bb 6.08±0.12Bb 0.004
氨态氮NH3-N/(mg/dL) 12.35±0.13A 11.28±0.43B 9.44±0.11C <0.001
总挥发性脂肪酸TVFA/(mmol/L) 101.28±5.92 122.00±4.77 120.76±13.19 0.253
乙酸Acetate/% 73.19±2.62b 78.90±0.81a 76.60±1.02ab 0.035
丙酸Propionate/% 13.61±0.55 14.21±0.32 14.00±0.54 0.737
丁酸Butyrate/% 9.05±0.35Bb 10.05±0.45Aa 9.33±0.11Bb 0.004
异丁酸Isobutyrate/% 0.63±0.06 0.66±0.05 0.64±0.02 0.922
戊酸Valerate/% 0.59±0.05Bb 0.78±0.01Aa 0.69±0.02ABab 0.002
异戊酸Isovalerate/% 0.89±0.01 0.94±0.02 0.90±0.06 0.629
乙酸/丙酸Acetate/propionate 5.43±0.38 5.58±0.22 5.51±0.30 0.940

2.3 CBet对育肥后期平凉红牛瘤胃微生物区系的影响

2.3.1 瘤胃微生物区系α多样性分析

表4可知,与对照组相比,试验组育肥后期平凉红牛瘤胃微生物区系的OTU数目、Chao1指数以及系统发育多样性(PD)指数均有所提高,但差异均不显著(P>0.05);而试验组瘤胃微生物区系的Shannon指数极显著提高(P<0.01),试验Ⅰ组和试验Ⅱ组分别比对照组提高了3.84%和4.18%。
表4 CBet对育肥后期平凉红牛瘤胃微生物区系α多样性的影响

Table 4 Effects of CBet on α diversity in rumen microbiota of Pingliang red cattle in late fattening stage

项目
Items
对照组
Control group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
P
P-value
OTU数目OTU number 1 181.00±64.45 1 379.00±96.11 1 372.83±114.73 0.270
Chao1指数Chao1 index 1 182.21±64.13 1 380.75±96.24 1 374.72±114.50 0.267
Shannon指数Shannon index 8.85±0.09Bb 9.19±0.09Aa 9.22±0.05Aa 0.008
Simpson指数Simpson index 0.99±0.01 0.99±0.01 0.99±0.01 0.106
系统发育多样性指数PD index 96.72±8.22 106.56±4.18 103.98±7.27 0.600

2.3.2 瘤胃微生物区系β多样性分析

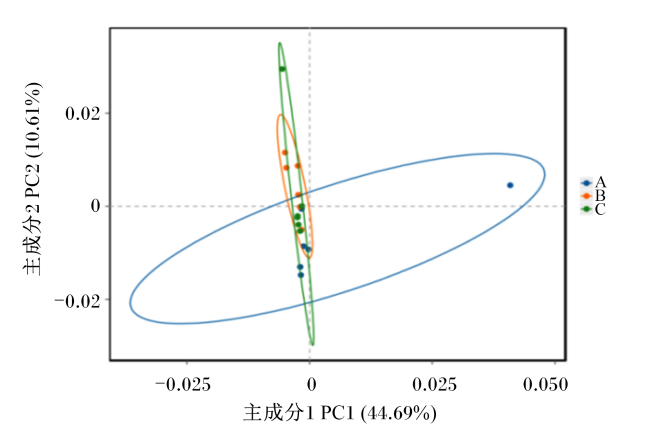
β多样性分析主要用于研究不同组别之间的菌群结构差异,PCA便于观察样本间的变化规律。如图1所示,基于未加权UniFrac距离PCA的主成分1和主成分2分别存在44.69%和10.61%的菌群结构变异量;3组之间不能明显区分,说明3组之间粪便微生物区系不存在差异,但各组具有少数不同菌群。
图1 平凉红牛瘤胃微生物区系主成分分析

A表示对照组瘤胃样本,B表示试验Ⅰ组瘤胃样本,C表示试验Ⅱ组瘤胃样本。图2图3同。

Fig.1 PCA of rumen microbiota of Pingliang red cattle

A represented rumen samples in the control group, B represented rumen samples in the experimental group Ⅰ, and C represented rumen samples in the experimental group Ⅱ. The same as Fig.2 and Fig.3.

2.3.3 瘤胃微生物区系组成分析

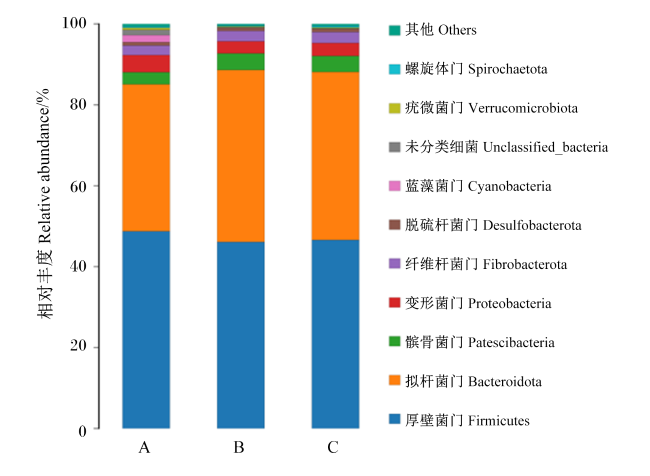
在门水平上,3组育肥后期平凉红牛瘤胃微生物中共检测到19个门,其中17个门共有。对3组瘤胃微生物相对丰度较高的10个菌门进行统计,结果如图2所示,各组相对丰度>1%的菌门依次为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、髌骨菌门(Patescibacteria)、变形菌门(Proteobacteria)和纤维杆菌门(Fibrobacterota),相对丰度平均值分别是47.17%、40.11%、3.68%、3.48%和2.53%。由表5可知,与对照组相比,试验组瘤胃拟杆菌门、髌骨菌门和纤维杆菌门相对丰度有所提高,瘤胃厚壁菌门和变形菌门相对丰度有所降低,但差异均不显著(P>0.05)。
图2 瘤胃微生物区系在门水平上的组成

Fig.2 Rumen microbiota composition at phylum level

表5 CBet对育肥后期平凉红牛瘤胃微生物区系相对丰度的影响

Table 5 Effects of CBet on relative abundance of rumen microbiota of Pingliang red cattle in late fattening stage %

项目
Items
对照组
Control group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
P
P-value
门Phylum
厚壁菌门Firmicutes 48.80±3.42 46.09±4.58 46.57±2.96 0.424
拟杆菌门Bacteroidota 37.00±11.80 42.26±3.94 41.85±3.13 0.415
髌骨菌门Patescibacteria 3.13±1.92 4.07±1.09 3.84±0.91 0.488
变形菌门Proteobacteria 3.82±6.03 3.06±1.47 2.98±1.94 0.913
纤维杆菌门Fibrobacterota 2.46±1.30 2.74±1.18 2.72±1.02 0.898
属Genus
普氏菌属Prevotella 12.76±0.56 14.60±3.62 14.00±1.49 0.750
未培养瘤胃细菌Uncultured_rumen_bacterium 7.23±3.74 8.31±1.14 8.74±0.62 0.514
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 6.02±2.63 8.06±0.95 7.80±1.39 0.137
解琥珀酸菌属Succiniclasticum 5.25±2.64 6.58±0.70 5.50±0.81 0.354
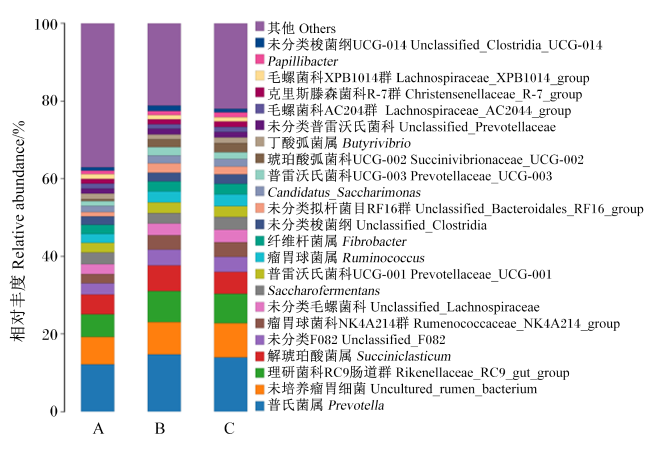
在属水平上,3组育肥后期平凉红牛瘤胃微生物中共检测到252个属,其中165个属共有。对3组瘤胃微生物相对丰度>1%的菌属进行筛选,共筛选出23个属,结果如图3所示,各组相对丰度较高的菌属依次为普氏菌属(Prevotella)、未培养瘤胃细菌(uncultured_rumen_bacterium)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)和解琥珀酸菌属(Succiniclasticum),相对丰度平均值分别是13.62%、8.07%、7.18%和5.73%。
图3 瘤胃微生物区系在属水平上的组成

Fig.3 Rumen microbiota composition at genus level

表5可知,与对照组相比,试验组瘤胃普氏菌属、未培养瘤胃细菌、理研菌科RC9肠道群和解琥珀酸菌属相对丰度均有所提高,但差异均不显著(P>0.05)。

2.4 CBet对育肥后期平凉红牛粪便微生物区系的影响

2.4.1 粪便微生物区系α多样性分析

表6可知,与对照组相比,试验Ⅰ组育肥后期平凉红牛粪便微生物区系的OTU数目、Chao1指数和Shannon指数有所提高,PD指数有所降低,但差异均不显著(P>0.05);而试验Ⅱ组粪便微生物区系的OTU数目、Chao1指数、Shannon指数和PD指数均有所降低(P>0.05)。
表6 CBet对育肥后期平凉红牛粪便微生物区系α多样性的影响

Table 6 Effects of CBet on α diversity in fecal microbiota of Pingliang red cattle in late fattening stage

项目
Items
对照组
Control group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
P
P-value
OTU数目OTU number 980.17±93.12 1 009.83±57.32 963.00±81.23 0.914
Chao1指数Chao1 index 981.36±92.97 1 011.5457.12 964.95±81.13 0.914
Shannon指数Shannon index 8.87±0.13 8.97±0.05 8.77±0.11 0.408
Simpson指数Simpson index 0.99±0.00 0.99±0.00 0.99±0.00 0.434
系统发育多样性指数PD index 59.95±4.63 59.65±2.98 56.74±4.07 0.820

2.4.2 粪便微生物区系β多样性分析

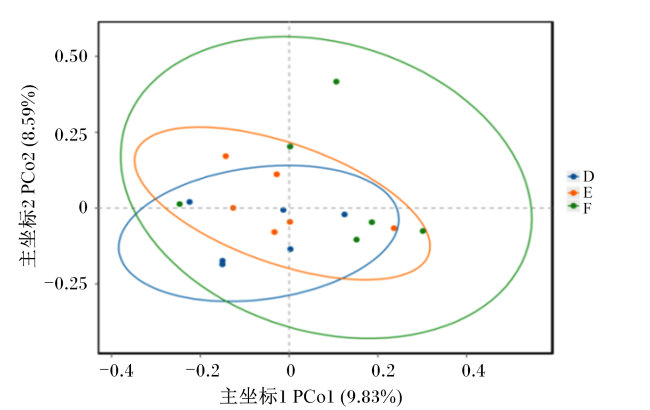
图4所示,基于未加权UniFrac距离PCoA的主坐标1和主坐标2分别存在9.83%和8.59%的菌群结构变异量;3组之间不能够明显区分,说明3组之间粪便微生物区系不存在明显差异。
图4 平凉红牛粪便微生物区系主坐标分析

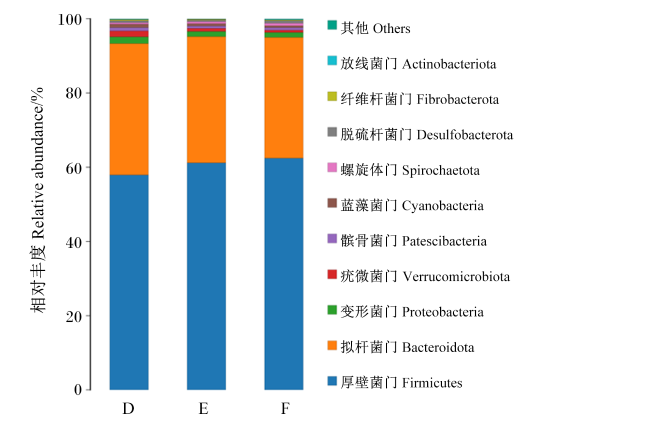
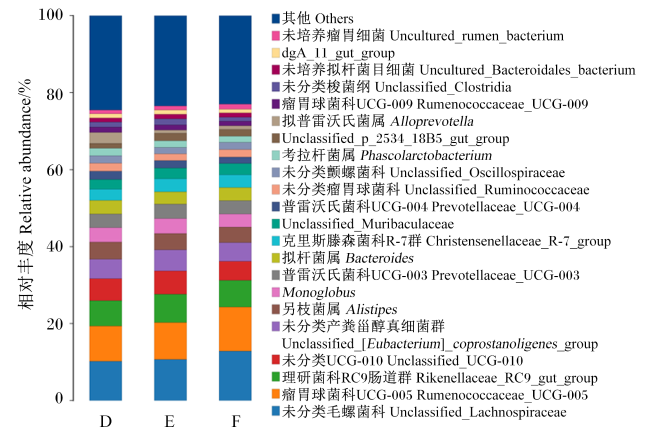
D表示对照组粪便样本,E表示试验Ⅰ组粪便样本,F表示试验Ⅱ组粪便样本。图5图6同。

Fig.4 PCoA of fecal microbiota of Pingliang red cattle

D represented fecal samples in the control group, E represented fecal samples in the experimental group Ⅰ, and F represented rumen samples in the experimental group Ⅱ. The same as Fig.5 and Fig.6.

2.4.3 粪便微生物区系组成分析

在门水平上,3组育肥后期平凉红牛粪便微生物中共检测到12个门,且这12个门共有。对3组粪便微生物相对丰度较高的10个菌门进行统计,结果如图5所示,各组优势菌门均为厚壁菌门、拟杆菌门、变形菌门和疣微菌门(Verrucomicrobiota),相对丰度平均值分别是66.67%、26.95%、3.81%和2.74%。由表7可知,与对照组相比,试验组粪便拟杆菌门、变形菌门和疣微菌门相对丰度有所降低,粪便厚壁菌门相对丰度有所提高,但差异均不显著(P>0.05)。
图5 粪便微生物区系在门水平的组成

Fig.5 Fecal microbiota composition at phylum level

表7 CBet对育肥后期平凉红牛粪便微生物区系相对丰度的影响

Table 7 Effects of CBet on relative abundance of fecal microbiota of Pingliang red cattle in late fattening stage %

项目
Items
对照组
Control group
试验Ⅰ组
Experimental
group Ⅰ
试验Ⅱ组
Experimental
group Ⅱ
P
P-value
门Phylum
厚壁菌门Firmicutes 57.63±4.70 60.93±3.37 62.76±2.62 0.078
拟杆菌门Bacteroidota 35.56±3.67 34.29±3.11 32.34±2.46 0.230
变形菌门Proteobacteria 1.89±1.31 1.34±0.48 1.31±0.70 0.473
疣微菌门Verrucomicrobiota 1.74±1.69 0.81±0.31 0.63±0.44 0.164
属Genus
未分类毛螺菌科Unclassified_Lachnospiraceae 10.09±3.41 10.50±2.25 13.05±3.13 0.208
瘤胃球菌科UCG-005 Rumenococcaceae_UCG-005 9.23±1.44 9.53±1.36 11.76±3.12 0.112
理研菌科RC9肠道群
Rikenellaceae_RC9_gut_group
6.52±0.54 7.42±0.66 6.76±0.88 0.109
未分类UCG-010 Unclassified_UCG-010 5.61±1.41 6.09±1.48 4.96±1.12 0.364
未分类产粪甾醇真细菌群
Unclassified_[Eubacterium]_coprostanoligenes_group
5.06±0.47 5.54±0.62 4.80±1.84 0.547
另枝菌属Alistipes 4.35±0.37 4.22±0.66 3.92±0.35 0.300
在属水平上,3组育肥后期平凉红牛粪便微生物中共检测到193个属,其中165个属共有。对3组粪便微生物相对丰度占比>1%的菌属进行筛选,共筛选出22个属,结果如图6所示,各组相对丰度较高的菌属依次为未分类毛螺菌科(unclassified_Lachnospiraceae)、瘤胃球菌科UCG-005(Rumenococcaceae_UCG-005)、理研菌科RC9肠道群、未分类UCG-010(unclassified_UCG-010)、未分类产粪甾醇真细菌群(unclassified_[Eubacterium]_coprostanoligenes_group)和另枝菌属(Alistipes),其相对丰度平均值分别是11.25%、10.71%、6.97%、5.57%、5.15%和4.18%。由表7可知,与对照组相比,试验组粪便未分类毛螺菌科、瘤胃球菌科UCG-005和理研菌科RC9肠道群相对丰度有所提高,粪便另枝菌属相对丰度有所降低;同时,试验Ⅰ组粪便未分类UCG-010和未分类产粪甾醇真细菌群相对丰度有所提高,但试验Ⅱ组粪便未分类UCG-010和未分类产粪甾醇真细菌群相对丰度有所降低,但上述结果差异均不显著(P>0.05)。
图6 粪便微生物区系在属水平上的组成

Fig.6 Fecal microbiota composition at genus level

3 讨论

3.1 CBet对育肥后期平凉红牛营养物质表观消化率的影响

营养物质表观消化率作为评判饲粮营养价值的一个重要指标,不仅能反映育肥肉牛的消化能力,还与育肥肉牛生长性能、健康状况和胴体品质密切相关[15]。本研究发现,饲粮添加CBet能够提高育肥后期平凉红牛DM、EE和NDF表观消化率,显著提高CP和极显著提高ADF表观消化率,这是因为Bet具有调节渗透压特性,其在细胞内积聚可以增强肠道保水力,促进肠道细胞生长,提高细胞存活率,加强细胞的代谢活动,进而提高动物对营养物质的消化率;此外,CBet可以维持蛋白质的结构和生物学功能,通过提高酶的活性,进而促进营养物质在机体中的消化吸收[16]。Wang等[17]研究表明,在奶牛饲粮中添加不同水平Bet可以显著提高饲粮中DM、CP、NDF和ADF的表观消化率。另外,杨东[18]研究表明,饲粮添加Bet能够显著提高蒙寒杂交羊对CP的表观消化率。本试验结果与以上结果类似,DM、EE、NDF表观消化率没有显著提高可能与试验动物和饲粮相关。育肥后期阶段,育肥动物需要更多的能量来促进生长发育和维持正常生理功能,CP表观消化率提高会促进育肥动物对能量的利用,有利于动物育肥。

3.2 CBet对育肥后期平凉红牛瘤胃发酵特性的影响

饲粮经反刍动物采食后进入瘤胃,瘤胃中的微生物会产生各种消化酶,在消化酶的作用下,饲粮中的碳水化合物经过一系列特殊且复杂的变化过程后,产生VFA,为反刍动物提供主要的能量,是瘤胃发酵特性的重要指标[19]。反刍动物瘤胃中VFA产量与能量转化效率呈正相关,与pH呈负相关[20]。正常微生物生长生理环境pH是5.5~7.5[21]。本试验测定的瘤胃液pH均处于合理范围,保持瘤胃pH的稳定可以促进微生物的多样性和活性,进而有利于机体吸收营养物质,保持机体健康。本试验中,饲粮添加CBet能够提高瘤胃TVFA、丙酸、异丁酸、异戊酸含量以及乙酸/丙酸值,其中饲粮添加3.5 g/d CBet显著或极显著提高瘤胃乙酸、丁酸和戊酸含量,极显著降低瘤胃pH和NH3-N含量,这可能是因为Bet作为良好的甲基供体,其甲基可作为瘤胃微生物的直接底物,增加瘤胃功能性微生物数量,提高酶活性。Cheng等[22]研究指出,饲粮添加Bet可以降低瘤胃pH,从而促进营养物质的吸收。乙酸含量提高反映微生物降解纤维的活性增强。Kisidayová等[23]研究发现,在体外发酵液中添加Bet可以提高纤毛虫的活力,而纤毛虫主要作用是降解粗纤维,这与本研究中饲粮添加CBet显著提高瘤胃乙酸含量结果一致。丙酸是动物机体内糖异生的前体物质,其主要来源于微生物对饲粮中非结构性碳水化合物的降解[24]。异丁酸和异戊酸都属于支链挥发性脂肪酸,其含量提高可以刺激瘤胃纤维分解菌生长,促进饲粮中纤维素物质分解,进而促进反刍动物生长发育[25]。异丁酸和异戊酸为瘤胃微生物合成氨基酸提供碳源,进而促进非结构性碳水化合物降解,此时瘤胃中结构性碳水化合物多于非结构性碳水化合物,导致瘤胃中乙酸/丙酸值提高[26]。Hume[27]研究发现,异戊酸含量提高可以使丙酸含量降低,乙酸/丙酸值提高,使瘤胃发酵变为乙酸型发酵,对饲粮中能量的利用率也相应提高。这与本试验中试验组瘤胃乙酸、丙酸、异丁酸、异戊酸含量以及乙酸/丙酸值升高的结果一致。瘤胃TVFA含量提高表明瘤胃中微生物可能会利用更多的NH3-N合成蛋白质。NH3-N是瘤胃微生物降解饲粮蛋白质的产物,也是合成微生物蛋白的主要前体物质[28]。饲粮中的蛋白质需要经过瘤胃内复杂的氮代谢被瘤胃微生物降解,最终合成微生物蛋白才能被动物体吸收。Shah等[29]研究表明,饲粮添加Bet降低了奶牛瘤胃NH3-N含量。本试验结果与以上结果一致。综上可知,饲粮添加3.5 g/d CBet可以改变育肥后期平凉红牛瘤胃发酵模式,提高其生长性能。

3.3 CBet对育肥后期平凉红牛瘤胃微生物区系的影响

反刍动物瘤胃菌群对饲粮中营养物质消化、瘤胃发酵参数和维持机体健康功能有重要作用,并且瘤胃菌群负责反刍动物高达90%的代谢需求[30]。本试验中,饲粮添加3.5 g/d CBet能够提高育肥后期平凉红牛瘤胃菌群的OTU数目、Chao1指数和PD指数,极显著提高Shannon指数。OTU数目反映微生物的数量,Chao1指数反映微生物的丰富度,PD指数反映微生物的多样性,Shannon指数也反映微生物的多样性。这表明饲粮添加CBet会提高瘤胃菌群物种数量、丰富度及多样性,进而促进瘤胃对饲粮的发酵。厚壁菌门和拟杆菌门是反刍动物瘤胃中最优势的菌群[31]。本研究中,育肥后期平凉红牛瘤胃中最优势菌门为厚壁菌门,其次是拟杆菌门,这与以上研究结果一致。在门水平上,饲粮添加CBet提高了瘤胃拟杆菌门、髌骨菌门和纤维杆菌门相对丰度,但降低了瘤胃厚壁菌门和变形菌门相对丰度。原因可能是在育肥后期平凉红牛采食量加大,瘤胃中的拟杆菌门和纤维杆菌门对降解非纤维和纤维有重要作用,近而提高了拟杆菌门和纤维杆菌门相对丰度。这与Turnbaugh等[32]的研究结果一致,该研究表明,在肥胖病人和小鼠模型中,肠道拟杆菌门和纤维杆菌门相对丰度越高,则表明机体对食物的消化吸收能力越强。髌骨菌门对不利环境有较强的适应能力[33],其相对丰度有所提高,笔者推测可能会增强动物的抗逆能力。变形菌门主要为革兰氏阴性菌,包含多种致病菌,会导致动物腹泻[34]。饲粮添加CBet可以降低瘤胃变形菌门相对丰度,促进动物健康。
本研究中,在属水平上,饲粮添加CBet提高了瘤胃普氏菌属、理研菌科RC9肠道群和解琥珀酸菌属相对丰度。普氏菌属能提高机体对纤维素的分解能力,参与机体微生物代谢,水解蛋白质和淀粉及发酵糖和氨基酸[35]。Flint等[36]研究发现,普氏菌属可利用丙烯酸和琥珀酸途径发酵糖类物质产生丙酸。本试验中,饲粮添加CBet提高了瘤胃丙酸含量,这与上述结果一致。解琥珀酸菌属纤维分解活性很高,能够降解白色瘤胃球菌不能降解的晶体纤维素,进而促进营养物质在瘤胃中的消化率,提高瘤胃TVFA含量,促进机体生长[37]。Wang等[9]研究结果与本研究结果一致。理研菌科RC9肠道群可以有效降解可溶性多糖和不溶性纤维素,对维护肠道健康有重要作用[38],其相对丰度提高可以显著提高饲粮NDF表观消化率[39]。这与本研究结果相似,可能是由于试验动物和生理阶段不同造成的。综上所述,在平凉红牛育肥后期饲粮中添加CBet可以提高瘤胃优势菌种的相对丰度,维持瘤胃内环境稳态,进而通过促进瘤胃对蛋白质和纤维的降解来提高育肥后期平凉红牛的生长性能和维护瘤胃健康。

3.4 CBet对育肥后期平凉红牛粪便微生物区系的影响

粪便中不仅包括饲粮残渣、机体代谢后的产物、消化腺体分泌的黏液以及胃肠道黏膜脱落的上皮细胞,还有一些酶、激素、维生素以及大量微生物等[40]。瘤胃是纤维类物质降解的主要场所,但是Hoover[41]研究表明反刍动物后肠段对纤维物质的降解也具有重要作用。因此,反刍动物肠道微生物群落中的粪便微生物,一定程度上也与宿主动物的营养和健康状况密切相关。本试验中,饲粮添加3.5 g/d CBet提高了粪便菌群OTU数目、Chao1指数和Shannon指数,降低了粪便菌群PD指数,这表明饲粮添加3.5 g/d CBet会提高粪便菌群物种数量和丰富度,但降低了菌群多样性。这可能是因为Bet可以调节渗透压,维持小肠上皮运动,进而减少有害菌和寄生虫引起的腹泻和脱水,从而导致粪便中菌群多样性降低。本试验结果表明,在门水平上,粪便优势菌门分别是厚壁菌门、拟杆菌门、变形菌门和疣微菌门,这与前人的研究结果[42-43]一致。本试验中,饲粮添加CBet提高了粪便厚壁菌门相对丰度,降低了粪便拟杆菌门、变形菌门和疣微菌门相对丰度。笔者猜测这可能是由于育肥后期平凉红牛需要饲喂大量的精料来提高其生长性能,从而使得降解纤维的拟杆菌门相对丰度降低。魏子维等[44]研究发现,饲粮添加精料能提高山羊粪便厚壁菌门相对丰度,降低粪便拟杆菌门相对丰度,这与本研究结果一致。在某些肠道环境下,变形菌门可能成为引发炎症的微生物[45]。推测原因可能是由于CBet在小肠脱去外膜,Bet调节渗透压维持小肠细胞,从而减缓了炎症,降低了变形菌门相对丰度。疣微菌门以肠道蛋白质作为唯一碳源生长,具有多种生物学功能,包括促进肠道屏障完整性、调节免疫反应以及抑制炎症等[46-47]。疣微菌门代谢物丙盐酸可以诱导小鼠脂质代谢、生长发育及免疫反应[48]。该菌相对丰度降低笔者推测是由育肥后期平凉红牛过度肥胖导致。
本研究中,在属水平上,饲粮添加CBet提高了粪便瘤胃球菌科UCG-005和理研菌科RC9肠道群相对丰度,降低了粪便另枝菌属相对丰度。研究表明,瘤胃球菌科可以降解饲粮中不可消化的纤维素类物质,理研菌科RC9肠道群可以有效降低可溶性多糖和不溶性纤维素[49]。这也许是饲粮添加CBet使得育肥后期平凉红牛ADF和NDF表观消化率提高的原因之一。Cox等[50]研究表明,理研菌科菌属对维护肠道健康有重要作用。任腾竹等[51]研究发现,另枝菌属是帕金森病伴抑郁患者特征性肠道菌群。本研究中试验动物栓系饲养,由此猜测是栓系饲养使得另枝菌属相对丰度升高,而饲粮添加CBet降低了育肥后期平凉红牛粪便另枝菌属相对丰度,原因可能是Bet能够通过提供甲基调节细胞渗透压,稳定内环境稳态,以及能通过加快机体内高半胱氨酸向蛋氨酸转化的过程,减少体内高半胱氨酸含量,进而减轻其对谷氨酸脱羧酶活性的抑制,有利于脑内γ-氨基丁酸合成酶的合成,从而缓解了中枢系统的过度兴奋,其作用机制有待进一步研究。本研究中,与对照组相比,2个试验组粪便微生物发生了变化,这些变化的菌群均对促进反刍动物纤维物质消化、维持肠道代谢和健康有一定的积极作用,从而提高其生产性能和机体健康水平。

4 结论

① 饲粮添加CBet可以改善育肥后期平凉红牛营养物质表观消化率,提高瘤胃中氮的利用率、VFA含量及乙酸/丙酸值,改变瘤胃发酵模式。
② 饲粮添加CBet可以在一定程度上改变瘤胃微生物的群落结构,提高瘤胃中特有微生物相对丰度,增加微生物多样性,进而增强对纤维的降解能力和维护瘤胃健康;同时,还能够改善后肠道菌群平衡。
③ 在本试验条件下,育肥后期平凉红牛饲粮中CBet的适宜添加量为3.5 g/d。
[1]
UNDERWOOD W J, BLAUWIEKEL R, DELANO M L, et al. Chapter 15-biology and diseases of ruminants (sheep,goats,and cattle)[M]. Boston: Academic Press,2015:623-694.

[2]
肖龙根, 刘燕. 抗生素对肉牛养殖的影响[J]. 基层农技推广, 2016, 4(6):93-94.

XIAO L G, LIU Y. Effects of antibiotics on beef cattle breeding[J]. Primary Agricultural Technology Extension, 2016, 4(6):93-94. (in Chinese)

[3]
陈娟, 李文立. 甜菜碱的生物学功能及其在畜禽生产中的应用[J]. 饲料广角, 2015(14):43-45.

CHEN J, LI W L. Biological functions of betaine and its application in livestock and poultry production[J]. Feed China, 2015(14):43-45. (in Chinese)

[4]
阳金金. 甜菜碱对脂多糖刺激仔鹅生长性能、免疫及抗氧化功能的影响[D]. 硕士学位论文. 扬州: 扬州大学, 2021.

YANG J J. Effects of betaine on growth performance,immune and antioxidant function of goslings challenged by lipopolysaccharide[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2021. (in Chinese)

[5]
马钧, 张路培, 陈燕, 等. 平凉红牛群体特性研究进展及未来育种研究方向[J]. 中国畜牧杂志, 2022, 58(2):37-41.

MA J, ZHANG L P, CHEN Y, et al. Research progress on population characteristics and future breeding research directions of Pingliang red cattle[J]. Chinese Journal of Animal Science, 2022, 58(2):37-41. (in Chinese)

[6]
李暖昕, 张瑞, 白云鹏, 等. 饲粮中添加牛至精油后平凉红牛肌肉品质、脂肪酸及氨基酸的组成和含量[J]. 草业科学, 2023, 40(4):1058-1068.

LI N X, ZHANG R, BAI Y P, et al. Adding oregano essential oil to diet changed the muscle quality and composition and content of fatty acids and amino acids in Pingliang red cattle[J]. Pratacultural Science, 2023, 40(4):1058-1068. (in Chinese)

[7]
MITCHELL A D, CHAPPELL A, KNOX K L. Metabolism of betaine in the ruminant[J]. Journal of Animal Science, 1979, 49(3):764-774.

PMID

[8]
葛兵, 陈林. 营养物质过瘤胃技术研究进展[J]. 畜牧与饲料科学, 2010, 31(4):135-136, 143.

GE B, CHEN L. Research progress of nutrients pass through the rumen[J]. Animal Husbandry and Feed Science, 2010, 31(4):135-136,143. (in Chinese)

[9]
WANG C, LIU C, ZHANG G W, et al. Effects of rumen-protected folic acid and betaine supplementation on growth performance,nutrient digestion,rumen fermentation and blood metabolites in Angus bulls[J]. British Journal of Nutrition, 2020, 123(10):1109-1116.

[10]
KAVOLELIS B, SATEIKIS I. Effective cowshed insulating and ventilation system parameters[J]. Energy and Buildings, 2004, 36(9):969-973.

[11]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Dcience, 1991, 74(10):3583-3597.

[12]
张小丽, 王祚, 周传社, 等. 反刍动物瘤胃样品采集与保存[M/OL]// Bio-Protocol. 微生物组实验手册.2021:e2003850.[2024-02-10]. https://www.bio-protocol.org/bio101/e2003850.

ZHANG X L, WANG Z, ZHOU C S, et al. Collection and preservation of ruminant microbial samples[M/OL]// Bio-Protocol.Microbiome Protocol eBook.2021:e2003850.[2024-02-10]. https://www.bio-protocol.org/bio101/e2003850. (in Chinese)

[13]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010(6):37.

FENG Z C, GAO M. Improvement of the method for measuring ammonia nitrogen content in rumen fluid by colorimetry[J]. Animal Husbandry and Feed Science, 2010(6):37. (in Chinese)

[14]
胡伟莲, 王佳堃, 吕建敏, 等. 瘤胃体外发酵产物中的甲烷和有机酸含量的快速测定[J]. 浙江大学学报(农业与生命科学版), 2006, 32(2):217-221.

HU W L, WANG J K, LV J M, et al. Rapid gas chromatogram determination of methane,organic acid in in vitro ruminal fermentation products[J]. Journal of Zhejiang University (Agriculture & Life Sciences), 2006, 32(2):217-221. (in Chinese)

[15]
潘锋, 朱彦宾, 王之盛, 等. 酵母培养物和糖蜜对肉牛生长性能、营养物质表观消化率和粪便微生物区系组成的影响[J]. 动物营养学报, 2022, 34(2):1040-1049.

DOI

PAN F, ZHU Y B, WANG Z S, et al. Effects of yeast culture and molasses on growth performance,apparent digestibility of nutrients and fecal microflora composition of beef cattle[J]. Chinese Journal of Animal Nutrition, 2022, 34(2):1040-1049. (in Chinese)

[16]
FU R, WANG Q, KONG C H, et al. Mechanism of action and the uses betaine in pig production[J]. Journal of Animal Physiology and Animal Nutrition, 2022, 106(3):528-536.

[17]
WANG C, LIU Q, YANG W Z, et al. Effects of betaine supplementation on rumen fermentation,lactation performance,feed digestibilities and plasma characteristics in dairy cows[J]. The Journal of Agricultural Science, 2010, 148(4):487-495.

[18]
杨东. 不同添加剂对蒙寒杂交羊生长性能和脂肪沉积的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2018.

YANG D. Effects of differesnt additives on growth performance and fat deposition of mongolian hybrid sheep[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2018. (in Chinese)

[19]
AROWOLO M A, YANG S, WANG M, et al. The effect of forage theoretical cut lengths on chewing activity,rumen fermentation,dissolved gases,and methane emissions in goats[J]. Animal Feed Science and Technology, 2020,263:114454.

[20]
WANG L J, ZHANG G N, LI Y, et al. Effects of high forage/concentrate diet on volatile fatty acid production and the microorganisms involved in VFA production in cow rumen[J]. Animals, 2020, 10(2):223.

[21]
WANAPAT M, VIENNASAY B, MATRA M, et al. Supplementation of fruit peel pellet containing phytonutrients to manipulate rumen pH,fermentation efficiency,nutrient digestibility and microbial protein synthesis[J]. Journal of the Science of Food and Agriculture, 2021, 101(11):4543-4550.

[22]
CHENG K F, WANG C, ZHANG G W, et al. Effects of betaine and rumen-protected folic acid supplementation on lactation performance,nutrient digestion,rumen fermentation and blood metabolites in dairy cows[J]. Animal Feed Science and Technology, 2020,262:114445.

[23]
KISIDAYOVÁ S, VÁRADYOVÁ Z, MICHAŁOWSKI T, et al. Regeneration of cryoresistance of in vitro rumen ciliate cultures[J]. Cryobiology, 2005, 51(1):76-84.

[24]
WU Q C, WANG W K, ZHANG F, et al. Dietary cysteamine supplementation remarkably increased feed efficiency and shifted rumen fermentation toward glucogenic propionate production via enrichment of Prevotella in feedlot lambs[J]. Microorganisms, 2022, 10(6):1105.

[25]
李新. 异丁酸对犊牛胃肠发育、瘤胃发酵和纤维分解菌菌群定量表达的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2013.

LI X. Effects of isobutyrate on gastrointestinal development,ruminal fermentation and quantitative expression of cellulolytic bacteria in Chinese Holstein bull calves[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2013. (in Chinese)

[26]
程冠文. 日粮碳水化合物类型调控瘤胃发酵乙/丙比的机制研究[D]. 硕士学位论文. 泰安: 山东农业大学, 2019.

CHENG G W. Study on the mechanism of dietary carbohydrate types regulating C2/C3 ratio in rumen fermentation[D]. Master’s Thesis. Tai’an: Shandong Agricultural University, 2019. (in Chinese)

[27]
HUME I D. Synthesis of microbial protein in the rumen.Ⅱ.A response to higher volatile fatty acids[J]. Australian Journal of Agricultural Research, 1970, 21(2):297-304.

[28]
ZHU X Y, LIU B S, XIAO J N, et al. Effects of different roughage diets on fattening performance,meat quality,fatty acid composition,and rumen microbe in steers[J]. Frontiers in Nutrition, 2022,9:885069.

[29]
SHAH A M, MA J, WANG Z S, et al. Betaine supplementation improves the production performance,rumen fermentation,and antioxidant profile of dairy cows in heat stress[J]. Animals, 2020, 10(4):634.

[30]
任文义, 冶文兴, 田梅, 等. 稻草替代部分全株玉米青贮对奶牛瘤胃菌群结构的影响及差异表达基因功能分析[J]. 动物营养学报, 2022, 34(11):7177-7189.

DOI

REN W Y, YE W X, TIAN M, et al. Effects of partial replacement of whole corn silage by rice straw on rumen microflora structure and functional analysis of differentially expressed genes in dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):7177-7189. (in Chinese)

DOI

[31]
DE OLIVEIRA M N V, JEWELL K A, FREITAS F S, et al. Characterizing the microbiota across the gastrointestinal tract of a Brazilian Nelore steer[J]. Veterinary Microbiology, 2013, 164(3/4):307-314.

[32]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

[33]
TIAN R M, NING D L, HE Z L, et al. Small and mighty:adaptation of superphylum Patescibacteria to groundwater environment drives their genome simplicity[J]. Microbiome, 2020, 8(1):51.

[34]
JAMI E, ISRAEL A, KOTSER A, et al. Exploring the bovine rumen bacterial community from birth to adulthood[J]. The ISME Journal, 2013, 7(6):1069-1079.

[35]
张洁, 张力莉, 徐晓锋. 反刍动物瘤胃内普雷沃氏菌的研究进展[J]. 中国饲料, 2020(7):17-21.

ZHANG J, ZHANG L L, XU X F. Research progress of Prevotella in the rumen of ruminants[J]. China Feed, 2020(7):17-21. (in Chinese)

[36]
FLINT H J, BAYER E A, RINCON M T, et al. Polysaccharide utilization by gut bacteria:potential for new insights from genomic analysis[J]. Nature Reviews:Microbiology, 2008, 6(2):121-131.

[37]
李娜, 张洁, 郭婷婷, 等. 基于内转录间隔区测序分析不同饲养方式对滩羊羔羊瘤胃真菌组成及多样性的影响[J]. 动物营养学报, 2020, 32(2):784-794.

DOI

LI N, ZHANG J, GUO T T, et al. Effects of different feeding methods on composition and diversity of rumen fungi in Tan sheep based on interstitial region sequencing[J]. Chinese Journal of Animal Nutrition, 2020, 32(2):784-794. (in Chinese)

[38]
ZHU Y X, WANG Z S, HU R, et al. Comparative study of the bacterial communities throughout the gastrointestinal tract in two beef cattle breeds[J]. Applied Microbiology and Biotechnology, 2021, 105(1):313-325.

DOI PMID

[39]
ZHAO X H, CHEN Z D, ZHOU S, et al. Effects of daidzein on performance,serum metabolites,nutrient digestibility,and fecal bacterial community in bull calves[J]. Animal Feed Science and Technology, 2017,225:87-96.

[40]
赵晓静, 高婕. 粪便分析技术在奶牛营养中的应用[J]. 饲料博览, 2022(2):51-55.

ZHAO X J, GAO J. Application of analysis technology to feces in dairy cows[J]. Feed Review, 2022(2):51-55. (in Chinese)

[41]
HOOVER W H. Digestion and absorption in the hindgut of ruminants[J]. Journal of Animal Science, 1978, 46(6):1789-1799.

PMID

[42]
OIKONOMOU G, TEIXEIRA A G V, FODITSCH C, et al. Fecal microbial diversity in pre-weaned dairy calves as described by pyrosequencing of metagenomic 16S rDNA.Associations of Faecalibacterium species with health and growth[J]. PLoS One, 2013, 8(4):e63157.

[43]
HUO W J, ZHU W Y, MAO S Y. Impact of subacute ruminal acidosis on the diversity of liquid and solid-associated bacteria in the rumen of goats[J]. World Journal of Microbiology and Biotechnology, 2014, 30(2):669-680.

[44]
魏子维, 池宙, 邓铭, 等. 饲粮精料和丙酸铬水平对雷州山羊生长性能、粪便发酵参数和微生物区系的影响[J]. 动物营养学报, 2021, 33(10):5781-5793.

DOI

WEI Z W, CHI Z, DENG M, et al. Effects of dietary concentrate and chromium propionate levels on growth performance,fecal fermentation parameters and microflora of Leizhou goats[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5781-5793. (in Chinese)

[45]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

[46]
DERRIEN M, VAUGHAN E E, PLUGGE C M, et al. Akkermansia muciniphila gen.nov.,sp.nov.,a human intestinal mucin-degrading bacterium[J]. International Journal of Systematic and Evolutionary Microbiology, 2004, 54(Pt 5):1469-1476.

[47]
DERRIEN M, BELZER C, DE VOS W M. Akkermansia muciniphila and its role in regulating host functions[J]. Microbial Pathogenesis, 2017,106:171-181.

[48]
刘军, 张楠, 张雨笑, 等. 基于16S rRNA基因测序比较分析不同抗生素干预对小鼠肠道菌群动态变化的影响[J]. 微生物学免疫学进展, 2021, 49(2):20-27.

LIU J, ZHANG N, ZHANG Y X, et al. Use of 16S rRNA high-throughput sequencing for comparative analysis of dynamic changes of gut microbiome in mice after intervention with different antibiotics[J]. Progress in Microbiology and Immunology, 2021, 49(2):20-27. (in Chinese)

[49]
BIDDLE A, STEWART L, BLANCHARD J, et al. Untangling the genetic basis of fibrolytic specialization by Lachnospiraceae and Ruminococcaceae in diverse gut communities[J]. Diversity, 2013, 5(3):627-640.

[50]
COX L M, YAMANISHI S, SOHN J, et al. Altering the intestinal microbiota during a critical developmental window has lasting metabolic consequences[J]. Cell, 2014, 158(4):705-721.

DOI PMID

[51]
任腾竹, 李桂花, 梁肖玉, 等. 帕金森病伴抑郁患者肠道菌群变化及其代谢功能分析[J]. 中国临床新医学, 2023, 16(4):353-359.

REN T Z, LI G H, LIANG X Y, et al. Changes of gut microbiota and its metabolic function analysis in patients with Parkinson’s disease and depression[J]. Chinese Journal of New Clinical Medicine, 2023, 16(4):353-359. (in Chinese)

Outlines

/