RESEARCH PAPER

Effects of Photo Period Change on Serum Hormone Indexes, Hair Follicle Morphology and Skin Tissue Gene Expression of Cashmere Goats

  • MAO Chenyu ,
  • GAO Li ,
  • WANG Chu ,
  • YIN Xuelei
Expand
  • Baotou Teachers College, Baotou 014030, China

MAO Chenyu, lecturer, E-mail:

Received date: 2024-04-22

  Online published: 2024-11-09

Abstract

This experiment was to investigated the effects of photo period change on serum hormone indexes, hair follicle morphology and skin tissue gene expression of cashmere goats. Eighteen Albas cashmere goats were selected and randomly divided into three groups with six goats in each group. The control group (CG group) adopted a natural photo period, the short-day photo period group (SDPP group) adopted a photo period of 8 h/d light and 16 h/d darkness, and the shortening photo period group (SPP group) adopted a photo period which the photo period gradually reduced from 16 h/d to 8 h/d. The experiment lasted for 60 days. The results showed as follows: 1) during days 26 to 60 of the experiment, the serum melatonin (MLT) concentration of SDPP group was significantly higher than that of CG group (P<0.05); during days 52 to 60 of the experiment, the serum MLT concentration of SPP group was significantly higher than that of CG group (P<0.05). During days 46 to 60 of the experiment, the serum prolactin (PRL) concentration of SDPP group was significantly lower than that of CG group (P<0.05); during days 56 to 60 of the experiment, the serum PRL concentration of SPP group was significantly lower than that of CG group (P<0.05). During days 54 to 60 of the experiment, the serum insulin-like growth factor-1 (IGF-1) concentration of SDPP and SPP groups was significantly higher than that of CG group (P<0.05). During days 56 to 60 of the experiment, the serum epidermal growth factor (EGF) concentration of SDPP and SPP groups was significantly higher than that of CG group (P<0.05). During days 48 to 60 of the experiment, the serum triiodothyronine (T3) concentration of SDPP group was significantly higher than that of CG group (P<0.05); during days 52 to 60 of the experiment, the serum T3 concentration of SPP group was significantly higher than that of CG group (P<0.05). 2) On day 60 of the experiment, the secondary hair follicle depth and primary hairball width of SPP group were significantly higher than those of CG group (P<0.05), and the secondary hairball width was significantly higher than that of CG and SDPP groups (P<0.05). The hair follicle β-catenin mRNA relative expression level of SDPP and SPP groups was significantly higher than that of CG group (P<0.05), and the hair follicle platelet-derived growth factor A (PDGFA) mRNA relative expression level of SPP group was significantly higher than that of CG and SDPP groups (P<0.05). 3) On day 30 of the experiment, the skin tissue total superoxide dismutase (T-SOD) activity of SDPP group was significantly higher than that of CG and SPP groups (P<0.05); on day 60 of the experiment, the activities of catalase (CAT) and glutathione peroxidase (GPx) in skin tissue of SDPP and SPP groups were significantly higher than those of CG group (P<0.05), and the skin tissue malondialdehyde (MDA) content was significantly lower than that of CG group (P<0.05). On day 60 of the experiment, the mRNA relative expression levels of SOD1, GPx4 and CAT in skin tissue of SDPP and SPP groups were significantly higher than those of CG group (P<0.05). In conclusion, short-day photo and shortening photo periods can influence the follicle activity by affecting the secretion of hormones related to follicle development and mediating the expression of key genes, leading to an increase in secondary follicle depth and follicle bulb width under natural conditions. Additionally, shortening the photo period enhances the skin tissue antioxidant capacity of cashmere goats, creating favorable conditions for cashmere growth.

Cite this article

MAO Chenyu , GAO Li , WANG Chu , YIN Xuelei . Effects of Photo Period Change on Serum Hormone Indexes, Hair Follicle Morphology and Skin Tissue Gene Expression of Cashmere Goats[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 7145 -7160 . DOI: 10.12418/CJAN2024.609

羊绒脱换过程较为复杂,受环境、营养和遗传等诸多因素影响。近年来,对羊绒生长的研究热点集中在自然条件上。研究表明,辽宁绒山羊的山羊绒生长具有明显的季节性,羊绒在光照逐渐缩短的夏至后生长,冬至后逐渐停止并脱落[1]。随着研究的深入,研究人员发现在长绒期和非长绒期,绒山羊体内的激素浓度大不相同,这些激素包括褪黑素(melatonin,MLT)、催乳素(prolactin,PRL)、胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)和表皮生长因子(epidermal growth factor,EGF)等,其中MLT显示出主导地位,其他激素分泌情况的变化明显晚于MLT,且变化趋势与MLT浓度变化呈现强烈的相关性,这一现象存在于包括绒山羊在内的很多被毛动物中[2]。对安哥拉兔的研究发现,在注射MLT合成酶抑制剂后,不仅MLT的合成受阻,其他激素的合成也受到了影响,并最终影响换毛周期[3]
MLT不仅可以作为激素调节毛囊生长和发育,还可以作为活性分子改变毛囊状态。目前的研究表明,MLT可以调节包括毛囊干细胞和淋巴细胞在内的多种细胞的增殖和凋亡[4-5]。此外,MLT浓度的变化还可以显著影响哺乳动物的免疫系统和自由基清除能力,其作用可能是通过受体信号传递以及抗氧化和增强抗炎因子活化机制介导的[6-8]。MLT在缓解氧化应激方面效果显著,研究显示,外源MLT可以提高小鼠肝脏组织中谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)、总超氧化物歧化酶(total superoxide dismutase,T-SOD)的基因表达水平和活性[9];切除松果体(pineal gland,PG)后,小鼠肠道组织中GPx活性显著下降[10]。然而,光照控制能否通过改变MLT分泌进而增加皮肤的抗氧化能力,从而使羊绒健康稳定地生长,还不得而知。随着自然光照时间发生变化,绒毛生长相关的基因和信号通路被激活,目前已知可以调节绒毛生长的信号通路主要以Wnt信号通路、Notch信号通路和丝裂原活化蛋白激酶(MAPK)信号通路为主[11]。研究显示,在埋置MLT后,Wnt信号通路上关键基因β-连环蛋白(β-catenin)表达上调[12],其信号通路下游的骨形态发生蛋白(bone morphogenetic protein,BMP)表达也受到影响[13]。此外,血小板衍生生长因子A(platelet-derived growth factor A,PDGFA)虽然不属于该信号通路,但埋置MLT也会上调该基因表达[14]。这表明MLT浓度升高可以激活信号转导通路,完成对羊绒生长的调节。但大部分试验采用外源MLT埋置的方法,关于人工控制光照时间影响MLT分泌进而影响毛囊形态的研究较少。因此,本试验采用人工控制光照时间的方法,研究不同光照周期对绒山羊毛囊发育相关激素浓度变化、信号通路转导和皮肤抗氧化状态的影响。若能通过人工控制光照时间调节激素分泌,进一步改变绒山羊毛囊活动的季节性,使其由季节性产绒变为全年产绒,不仅具有理论意义,对以后的环境试验产生指导作用,还可以为绒山羊的养殖带来更多的实践意义和经济效益,为提高羊绒产量和品质提供新的思路。

1 材料与方法

1.1 试验设计

试验于2023年4月18日至2023年6月16日在内蒙古农业大学试验农场进行,在此期间每天自然光照时间逐渐延长。试验采用单因素试验设计,选取18只阿尔巴斯绒山羊,随机分为3组,每组6头。对照组(control group,CG组)采用自然光照周期,短光照周期组(short-day photo period group,SDPP组)采用光照8 h/d、黑暗16 h/d的光照周期,渐减光照周期组(shortening photo period group,SPP组)采用光照时间从16 h/d逐渐缩短到8 h/d的光照周期。试验期为60 d。动物试验均按照国家标准《动物福利伦理审查指南》(GB/T 35892—2018)进行。

1.2 饲养管理

所有试验羊均单栏饲养,分别饲养在3种光照处理舍内,各羊舍南北墙上均设有可以挡光的自然通风窗口,可以控制舍内自然光照时间,并可有效降低舍内有害气体浓度。同时舍内设有LED灯作为人工光源,光照强度为500~600 lx,可以在自然光照消失后提供稳定光照。试验开始后,CG组试验羊接受自然光照,从试验第1天光照9 h/d、黑暗15 h/d到试验第60天光照16 h/d、黑暗8 h/d,在此期间严格控制避免人工光源照射;SDPP组试验羊每天从10:00点到18:00自然光照8 h/d、黑暗16 h/d;SPP组试验羊由光照16 h/d、黑暗8 h/d开始,每经过1周,每天光照时间缩短1 h,直至试验结束时达到光照8 h/d、黑暗16 h/d,试验前期自然光照消失后由LED灯补充光照。试验期内每周记录2次各项环境指标,在整个试验期,各羊舍温度在18~31 ℃,相对湿度在38%~62%,风速在0.05~0.11 m/s;有害气体浓度均未超过《畜禽养殖业污染物排放标准》(GB 18596—2001)。各组试验羊分别在10:00和17:00各饲喂1次。饲粮营养水平符合NRC(2007)标准,其组成及营养水平见表1
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
苜蓿干草Alfalfa hay 15.00
玉米秸秆Maize straw 20.00
燕麦草Oat grass 15.00
玉米Com 30.80
豆粕Soybean meal 9.50
干酒糟及其可溶物DDGS 4.00
亚麻饼Linseed cake 3.50
预混料Premix1) 0.50
碳酸钙CaCO3 0.20
磷酸氢钙CaHPO4 0.20
氧化钠NaCl 0.50
碳酸氢钠NaHCO3 0.80
合计Total 100.00
营养水平Nutrient levels2)
消化能DE/(MJ/kg) 11.47
粗蛋白质CP 14.52
粗脂肪EE 2.58
中性洗涤纤维NDF 39.99
酸性洗涤纤维ADF 21.62
钙Ca 0.93
磷P 0.40

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 9 000 IU,VD3 3 000 IU,VE 26 mg,VK3 1.20 mg,VB1 3.00 mg,VB2 8.00 mg,VB6 4.40 mg,VB12 0.012 mg,烟酸 niacin 45 mg,叶酸 folic acid 0.75 mg,生物素 biotin 0.20 mg,胆碱 choline 1 100 mg,泛酸钙 calcium pantothenate 15 mg,Fe 100 mg,Cu 10 mg,Zn 108 mg,Mn 120 mg,I 1.5 mg,Se 0.35 mg。

2)消化能为计算值,其余为实测值,计算和测定方法参考Guo等[15]。DE was a calculated value, while the others were measured values, the calculated and measured methods refer to Guo et al[15].

1.3 样品采集

试验分前期和后期,各30 d。各组在试验第1天从18:00开始,每隔2 h采血1次,直到试验期第2天18:00,以确定最佳采血时间;在确定最佳采血时间后,试验前期每隔1周采血1次;试验后期每隔1 d采血1次。血样静止凝固后经3 000×g离心15 min后收集上层血清,置于-20 ℃冰箱保存备用。绒山羊的羊绒生长虽有很强的季节性,但光照周期的改变还需较长时间去适应。基于此,在试验第1~30天每周采血1次,观察激素分泌的变化;随着试验的进行,绒山羊受到光照周期改变的影响,血液激素指标发生变化,然而激素分泌的变化是呈波浪式,若还保持1周采血1次,很容易错过激素分泌的旺盛期,因此,在试验第31~60天进行每隔1 d采血1次。在试验第30和60天进行皮肤毛囊样品采集,用弯头止血钳夹起各组所有试验羊体侧部肩胛骨附近皮肤组织,尽可能避免夹起皮下脂肪,之后用剪刀将皮肤剪下,共采样1.5 cm2皮肤样品。将其分为2部分,其中一部分立刻放入福尔马林中固定备用,另一部分立即投入液氮罐,后置于-80 ℃超低温冰箱保存备用。

1.4 指标测定

1.4.1 血清激素指标

采用酶联免疫吸附测定(ELISA)试剂盒(贵州瑞星生物科技有限公司)测定绒山羊血清MLT、PRL、IGF-1、EGF、三碘甲状腺原氨酸(T3)和甲状腺素(T4)浓度。

1.4.2 毛囊形态

将采集的皮肤组织修正后,放入福尔马林中保存;流水冲洗24 h之后进行乙醇脱水,完成以上步骤后用二甲苯透明,随后浸蜡处理,最后用硬蜡包埋。随后用石蜡切片机切片,调整切片厚度为5~7 μm,在不同部位连续切片。将可用的切片进行染色,步骤分为脱蜡、染色和脱水封片,干燥后进行观察。
观察统计10个视野下的初级毛囊深度(纵深,即初级毛囊垂直于表皮的深度)、初级毛球宽度、次级毛囊深度(纵深,即次级毛囊垂直于表皮的深度)和次级毛球宽度。

1.4.3 抗氧化指标

皮肤组织经仔细修剪尽量去掉所有绒毛后,按1∶9(质量体积比)比例用生理盐水进行组织匀浆,之后离心,保留上清液进行抗氧化指标测定。总抗氧化能力(total antioxidant capacity,T-AOC)和T-SOD、过氧化氢酶(catalase,CAT)、GPx活性及丙二醛(malondialdehyde,MDA)含量均采用试剂盒(南京建成生物工程研究所)测定。

1.4.4 基因表达

按照制造商提供的说明书,使用Trizol试剂(大连TaKaRa公司)分离提取皮肤毛囊中总mRNA,之后通过凝胶电泳检查mRNA完整性,并使用酶标仪(Epoch2,BioTek Instrument, Inc.,美国)在吸光度(OD)260/280检测RNA的浓度和纯度。随后将提取好的mRNA使用PrimeScriptTM RT试剂盒(RR047,大连TaKaRa公司)进行cDNA合成。根据美国国家生物信息技术信息中心(National Center of Biotechnology Information,NCBI)GenBank中相关的绒山羊的基因序列,用Prime 5.0软件进行引物设计,之后由上海生工生物工程有限公司进行合成。实时荧光定量PCR反应按照试剂盒TB Premix Dimer EraserTM(RR820,大连TaKaRa公司)进行操作,扩增条件:第一步95 ℃,30 s,共1个循环;第二步95 ℃,5 s;60 ℃,30 s,共40个循环;第三步95 ℃,15 s;60 ℃,30 s;95 ℃,30 s,共1个循环。测定目的基因β-catenin、BMP2、BMP4、成纤维生长因子5(fibroblast growth factor 5,FGF5)、PDGFA、超氧化物歧化酶1(superoxide dismutase 1,SOD1)、超氧化物歧化酶2(superoxide dismutase 2,SOD2)、GPx1、GPx4和CAT的基因表达,内参基因为β-肌动蛋白(β-actin)、β2-微球蛋白(B2M)和酪氨酸3/色氨酸5-单加氧酶激活蛋白(YWHAZ),引物序列见表2,目的基因mRNA相对表达量用2-△△Ct法计算。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequence (5'—3')
GenBank登录号
GenBank accession
number
产物大小
Product
size/bp
β-连环蛋白
β-catenin
F:GCTGATTTGATGGAGCTGGA
R:TCATACAGGACTTGGGTGGT
XM_018066894.1 100
骨形态发生蛋白2
BMP2
F:AAGAGGCATGTGCGGATTAG
R:TTGCCGCTTTTCTCTTCTGT
NM_001287564.1 179
骨形态发生蛋白4
BMP4
F:GCTCTACGTGGACTTCAGTG
R:TGGTTGGTTGAGTTGAGGTG
NM_001285646.1 124
成纤维生长因子5
FGF5
F:GGCACTTGCATGGAGTTTTCC
R:AGTGGGCATCGGTTTCCATC
NM_001291973.1 112
血小板衍生生长因子A
PDGFA
F:CAGTCAGATCCACAGCATCC
R:CAGACTGGTTTCCAAAGGCT
XM_018040679.1 116
超氧化物歧化酶1
SOD1
F:ATCCACTTCGAGGCAAAGGG
GCACTGGTACAGCCTTGTGTA
NM_001285550.1 104
超氧化物歧化酶2
SOD2
F:TCAATAAGGAGCAGGGACGC
R:AGCAGGGGGATAAGACCTGT
XM_005684984.1 85
谷胱甘肽过氧化物酶1
GPx1
F:ACATTGAAACCCTGCTGTCC
R:TCATGAGGAGCTGTGGTCTG
XM_005695962.2 216
谷胱甘肽过氧化物酶4
GPx4
F:TTCCCTTGCAACCAGTTTGG
R:TCATCCATTTCCACAGAGGGT
NC_030814.1 105
过氧化氢酶
CAT
F:CACTCAGGTYCGGGATTTCT
R:ATYCGGGAGCCATATTCAGG
GQ_204786.1 159
β-肌动蛋白
β-actin
F:ACTGGGACGACATGGAGAAGA
R:YCGTACAGGGACAGCACAG
U39357 199
β2-微球蛋白
B2M
F:GGTGCTGCTTAGAGGTCTCG
R:ACGCTGAGTTCACTCCCAAC
NM_001009284 109
酪氨酸3/色氨酸5-单加氧酶激活蛋白
YWHAZ
F:TGTAGGAGCCCGTAGGTCATCT
R:TTCTCTCTGTATTCTCGAGCCATCT
AY970970 102

1.5 数据分析

试验数据经Excel 2010整理后,采用SAS 9.4软件进行单因素方差分析,并进行Duncan氏法多重比较,P>0.05表示差异不显著,P<0.05表示差异显著。试验数据表示为平均值±标准差。

2 结果与分析

2.1 最佳采血时间的确定

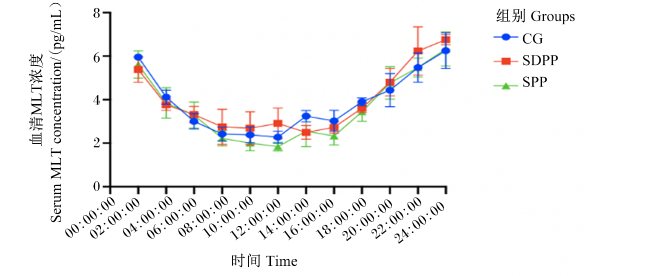
图1所示,在17:00—18:00血清MLT浓度开始增多,到00:00达到顶峰并且维持到02:00—03:00。在04:00—05:00血清MLT浓度开始降低。12:00—16:00是全天中血清MLT浓度最低的时间。因此,本试验采血时间选择在03:00,这时血清MLT浓度可以近似反映出绒山羊机体分泌MLT的峰值。所有试验用羊均在03:00采血,确保了最小试验误差。
图1 血清MLT浓度的日变化

CG:对照组;SDPP:短光照周期组;SPP:渐减光照周期组。下图同。

Fig.1 Daily change of serum MLT concentration

CG: control group; SDPP: short-day photo period group; SPP: shortening-day photo period group. The same as below.

2.2 光照周期变化对影响绒山羊毛囊发育的血清激素指标的影响

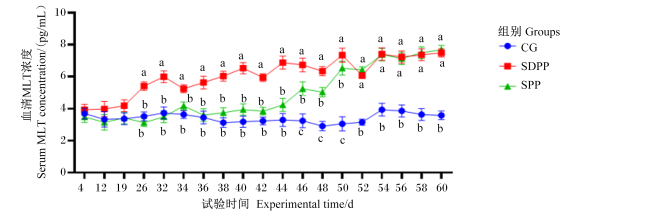
图2所示,试验第26~44天,SDPP组的血清MLT浓度显著高于CG和SPP组(P<0.05);试验第46~50天,SDPP组的血清MLT浓度显著高于SPP组(P<0.05),SPP组的血清MLT浓度显著高于CG组(P<0.05);试验第52~60天,SDPP和SPP组的血清MLT浓度显著高于CG组(P<0.05)。
图2 光照周期变化对绒山羊MLT分泌的影响

数据标相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.2 Effects of photo period change on MLT secretion of cashmere goats

Values with the same small letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

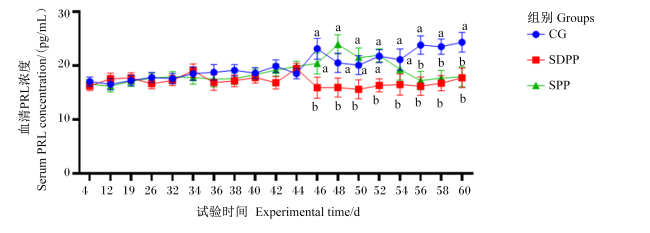
图3所示,试验第46~60天,SDPP组的血清PRL浓度显著低于CG组(P<0.05)。试验第4~54天,SPP组的血清PRL浓度与CG组无差异(P>0.05);试验第56~60天,SPP组血清PRL浓度显著低于CG组(P<0.05)。
图3 光照周期变化对绒山羊PRL分泌的影响

Fig.3 Effects of photo period change on PRL secretion of cashmere goats

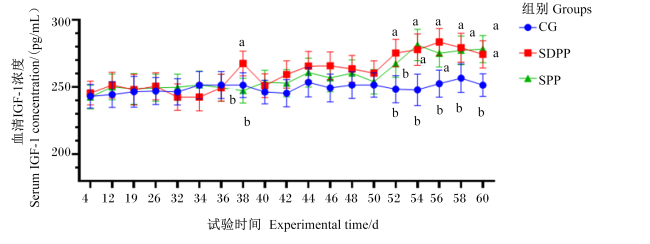
图4所示,试验第38和52天,SDPP组的血清IGF-1浓度显著高于CG和SPP组(P<0.05);试验第54~60天,SDPP和SPP组的血清IGF-1浓度显著高于CG组(P<0.05)。
图4 光照周期变化对绒山羊IGF-1分泌的影响

Fig.4 Effects of photo period change on IGF-1 secretion of cashmere goats

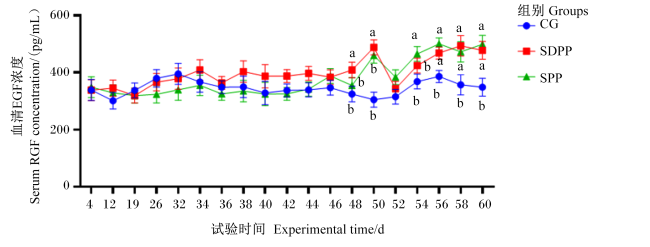
图5所示,试验第4~46天,各组之间血清EGF浓度无显著差异(P>0.05)。试验第48、50、54天,SDPP组的血清EGF浓度显著高于CG和SPP组(P<0.05);试验第56~60天,SDPP和SPP组的血清EGF浓度显著高于CG组(P<0.05)。
图5 光照周期变化对绒山羊EGF分泌的影响

Fig.5 Effects of photo period change on EGF secretion of cashmere goats

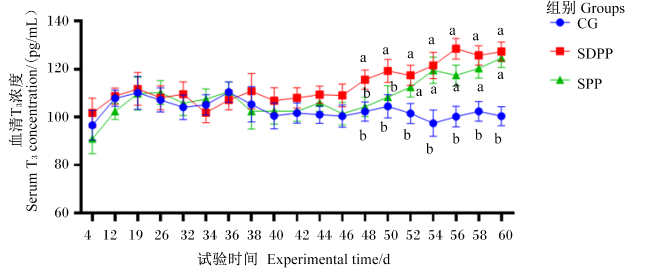
图6所示,试验第4~46天,各组之间血清T3浓度无显著差异(P>0.05)。试验第48~60天,SDPP组的血清T3浓度显著高于CG组(P<0.05);试验第52~60天,SPP组的血清T3浓度显著高于CG组(P<0.05)。
图6 光照周期变化对绒山羊T3分泌的影响

Fig.6 Effects of photo period change on T3 secretion of cashmere goats

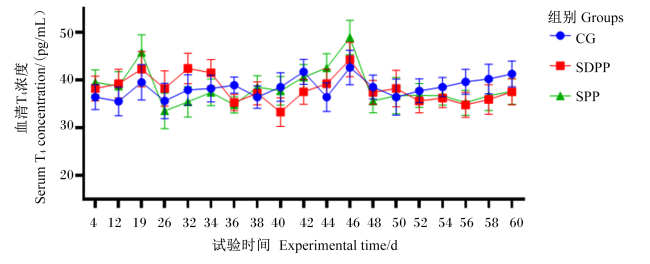
图7所示,试验第4~60天,各组之间血清T4浓度无显著差异(P>0.05)。
图7 光照周期变化对经产绒山羊T4分泌的影响

Fig.7 Effects of photo period change on T4 secretion of cashmere goats

2.3 光照周期变化对绒山羊毛囊形态的影响

表3所示,试验第30天,各组之间初级毛囊深度、次级毛囊深度、初级毛球宽度和次级毛球宽度均无显著差异(P>0.05)。试验第60天,各组之间初级毛囊深度无显著差异(P>0.05),但SPP组的次级毛囊深度和初级毛球宽度显著高于CG组(P<0.05),次级毛球宽度显著高于CG和SDPP组(P<0.05)。
表3 光照周期变化对绒山羊毛囊形态的影响

Table 3 Effects of photo periodic change on hair follicle morphology of cashmere goats μm

项目
Items
组别Groups P
P-value
CG SDPP SPP
第30天Day 30
初级毛囊深度Primary hair follicle depth 942.26±74.21 990.53±41.51 994.28±65.09 0.333
次级毛囊深度Secondary hair follicle depth 527.84±53.54 519.85±56.52 535.04±18.27 0.878
初级毛球宽度Primary hairball width 160.81±4.41 163.47±6.24 167.15±8.27 0.368
次级毛球宽度Secondary hairball width 47.43±8.27 44.48±4.41 46.80±6.24 0.464
第60天Day 60
初级毛囊深度Primary hair follicle depth 951.24±67.91 934.46±93.36 1 031.95±93.71 0.402
次级毛囊深度Secondary hair follicle depth 555.48±61.95b 613.07±32.85ab 724.26±67.84a 0.037
初级毛球宽度Primary hairball width 163.73±8.27b 169.63±4.41ab 175.57±6.24a 0.039
次级毛球宽度Secondary hairball width 54.61±6.71b 60.87±7.25b 64.67±2.56a 0.038

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.4 光照周期变化对绒山羊毛囊发育相关基因表达的影响

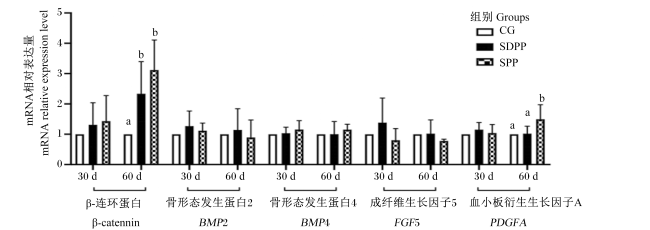
图8所示,试验第30天,各组之间毛囊发育相关基因mRNA相对表达量均无显著差异(P>0.05)。试验第60天,SDPPSPP组的毛囊中β-catenin的mRNA相对表达量显著高于CG组(P<0.05),SPP组的毛囊中PDGFA的mRNA相对表达量显著高于CG和SDPP组(P<0.05)。
图8 光照周期变化对绒山羊毛囊发育相关基因表达的影响

Fig.8 Effects of photo period change on expression of hair follicle development related genes of cashmere goats

2.5 光照周期变化对绒山羊皮肤组织抗氧化指标及相关基因表达的影响

表4所示,试验第30天,SDPP组的皮肤组织T-SOD活性显著高于CG和SPP组(P<0.05),各组之间皮肤组织CAT、GPx活性和MDA含量及T-AOC均无显著差异(P>0.05)。试验第60天,SDPP和SPP组的皮肤组织CAT、GPx活性显著高于CG组(P<0.05),皮肤组织MDA含量显著低于CG组(P<0.05),各组之间皮肤组织T-SOD活性和T-AOC均无显著差异(P>0.05)。
表4 光照周期变化对绒山羊皮肤组织抗氧化指标的影响

Table 4 Effects of photo period change on skin tissue antioxidant indexes of cashmere goats

项目
Items
组别Groups P
P-value
CG SDPP SPP
第30天Day 30
总超氧化物歧化酶T-SOD/(U/mg prot) 48.16±5.64b 61.68±6.42a 45.61±6.28b 0.049
过氧化氢酶CAT/(U/mg prot) 20.47±2.42 20.22±3.42 19.91±2.07 0.958
丙二醛MDA/(nmol/mg prot) 10.76±1.61 10.29±1.64 10.28±1.77 0.898
谷胱甘肽过氧化物酶GPx/(U/mg prot) 109.5±14.5 104.3±9.5 101.5±17.2 0.683
总抗氧化能力T-AOC/(U/mg prot) 1.72±0.35 1.71±0.24 1.61±0.14 0.622
第60天Day 60
总超氧化物歧化酶T-SOD/(U/mg prot) 51.29±9.11 62.32±9.14 62.36±8.46 0.085
过氧化氢酶CAT/(U/mg prot) 21.13±2.69b 27.41±2.78a 25.81±1.41a 0.011
丙二醛MDA/(nmol/mg prot) 9.60±1.79b 5.26±1.01a 5.36±0.78a 0.004
谷胱甘肽过氧化物酶GPx/(U/mg prot) 104.7±10.1b 134.9±10.5a 127.5±12.6a 0.049
总抗氧化能力T-AOC/(U/mg prot) 1.74±0.14 1.93±0.26 1.93±0.25 0.133
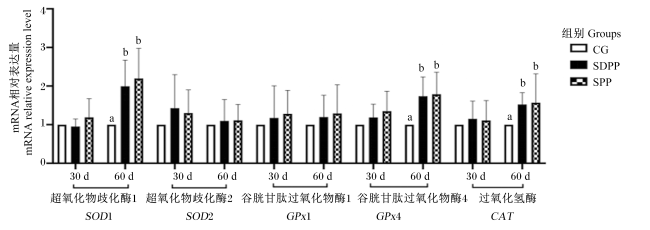
图9所示,试验第30天,各组之间皮肤组织中抗氧化相关基因mRNA相对表达量均无显著差异(P>0.05)。试验第60天,SDPP和SPP组的皮肤组织中SOD1、GPx4和CAT的mRNA相对表达量显著高于CG组(P<0.05)。
图9 光照周期变化对绒山羊皮肤组织中抗氧化相关基因表达的影响

Fig.9 Effects of photo period change on expression of antioxidant relative genes in skin tissue of cashmere goats

3 讨论

3.1 光照周期变化对绒山羊毛囊发育激素指标的影响

随着季节更替,光照周期在视网膜上被转换成电信号,然后电信号被传输到PG。这导致去甲肾上腺素从神经节后交感神经末梢释放到PG,继而通过β1肾上腺素能受体维持MLT状态[16]。诸多研究表明,光照周期可以直接影响MLT分泌,并使其显示出显著的昼夜节律变化,夜间MLT的浓度是白天的5~10倍,且在02:00~03:00达到峰值[17]。此外,MLT浓度全年也有波动,与夏季相比,冬季夜间MLT分泌增多且分泌时间更长。因此,MLT在夜间处于高水平的持续时间代表了夜晚的长度,这可以发出季节变化的信号并调节季节活动[18]。研究证实,MLT可以被利用到提高被毛动物绒毛生长上。早在20世纪80年代,研究人员就利用注射外源MLT的方法提高水貂毛密度和产量[19]。在对兔毛的研究中,Lanszki等[3]研究发现,注射外源MLT可以防止家兔夏天毛产量降低,提高毛囊数量,增加绒毛纤维长度。在对绒山羊的研究中,吴丽媛等[20]通过遮光饲养、皮下注射MLT等技术,使绒山羊由常年秋季长绒变为全年长绒,个体年均产绒量可提高70%。
在对辽宁白绒山羊的研究中,研究人员也发现了类似的现象。在冬至后,埋置MLT的辽宁白绒山羊羊绒产量明显高于对照组,其原因是冬至后,日照时间逐渐延长,对照组中MLT浓度逐渐降低,而试验组有外源MLT的加持,可以减缓羊绒停止生长的速率[21]。绒山羊季节性产绒现象同样出现在西班牙山羊上,研究显示,相比于自然光照,绒山羊埋置MLT可以使羊绒生长周期变长,提高春季山羊绒产量和全年剪毛重[22]。以上研究都建立在埋置MLT上,单纯的改变光照周期试验并不多见。在本试验中,缩短光照周期可以使血清MLT浓度上升,持续的、高浓度的MLT可以改变原有信号通路的信息传导,使机体产生相应反应。
PRL主要由垂体前叶分泌,可以促进哺乳动物个体的乳腺发育。然而对于毛囊细胞的发育,高浓度的PRL会抑制处于活动状态的次级毛囊。PRL的分泌受到自然光照的影响,血液中PRL浓度与光照长短有平行关系,并且在春季和秋季也显示出明显的浓度高低变化[23]。本试验结果验证了这一理论,在CG组中,绒山羊血清PRL浓度上升,原因可能是试验在春夏交接之际进行,自然光照时间逐渐变长。在SDPP组中,血清PRL浓度显示出一个较低浓度的现象,并且在试验中后期有降低的趋势。同样,在SPP组中也有类似的现象,这可能与短光照周期引起的MLT浓度升高有关。大量的试验证明,MLT可以影响动物的PRL分泌。błaszczyk等[24]研究表明,血液中MLT浓度与PRL分泌存在着负相关,即MLT浓度高会抑制PRL的分泌,同样,外源注射MLT可以使绒山羊5~7月份血液中PRL浓度降低[25]。在另一个外源注射MLT的试验中,Foldes等[26]研究发现,绵羊经过长期注射MLT会使血液中PRL浓度降低。在对陕北绒山羊的研究中,试验人员发现埋植MLT会抑制日间血液中PRL浓度的峰值,且全天血液中PRL浓度降低[27]
渐减光照组中绒山羊血液PRL浓度变化有一个先上升在下降的现象,PRL虽然是光敏性激素,光照变化会很快反映在其浓度上,但绒山羊属于非光敏性动物,它对光照的改变需要一定时间去适应,一旦适应光照的变化,PRL浓度也会产生相应的变化[28]。因此在本试验中,SPP组中绒山羊血清PRL浓度在中期有所上升,之后便开始下降,这也与MLT浓度增多有关。在陕北绒山羊的试验中,试验人员发现渐减光照处理会显著影响血液中PRL浓度[29],这是因为渐减光照会影响山羊血液中MLT浓度,进而会调控PRL的分泌,与本试验结果一致。
IGF-1主要由动物肝脏产生,具有刺激细胞分化增殖、抑制蛋白质分解等作用。研究证实,IGF-1的分泌受到光照时间变化的影响,勿都巴拉乌亚罕等[30]将绒山羊分为2组,分别为自然光照组和光控试验组,其中自然光照组接受自然光照,光控组先接受渐减光照,后接受短光照;试验结果表明,在接受光控条件后,光控试验组无论在毛囊发育的休止期还是在生长期,血液IGF-1的浓度都显著高于对照组。这与本试验结果大致相同,在本试验中,SDPP和SPP组血清IGF-1浓度在试验后期显著高于CG组。在对小鼠的研究中,试验人员发现,长光照会使血清中IGF-1浓度上升,且皮肤毛囊中IGF-1蛋白表达上升,但结束长光照处理,这两者的含量都显著下降[23]。以上结果虽然所选物种不同和研究方法各异,但是可以肯定的是,IGF-1受到光照周期的调控且对毛囊发育具有重要作用。此作用的机制可能是通过IGF-1受体间的细胞信号途径来刺激毛囊细胞增殖的。Bai等[31]研究发现,IGF-1的mRNA相对表达量在毛囊生长期达到最高,此时,绒山羊的毛乳头、真皮鞘、内根鞘和外根鞘中的IGF-1受体与IGF-1在毛囊的生发细胞和角质形成细胞中的结合位点最多。
EGF是毛囊发育过程中重要的信号分子。研究显示,EGF对处在不同发育阶段的毛囊细胞的影响可能不同。杨淑霞等[32]研究发现,在毛囊生长早期,EGF会抑制其发育,然而,在毛囊发育的其他时期,EGF可以促进毛囊细胞的生长,使毛囊发育加速,提前进入下一个发育期,而且在体外毛囊细胞培养中,EGF能有效促进其生长。在MLT与EGF的试验中,初文生等[33]研究发现,短光照协同外源MLT处理会显著提高EGF浓度。在啮齿动物的研究中,研究人员发现MLT注射会显著提高EGF浓度[34]。本试验的结果也可以用该机理解释,即短光照和渐减光照周期处理在试验后期促进了MLT分泌,高浓度的MLT可以刺激EGF的分泌,所以在试验后期,血清EGF浓度升高。
甲状腺素是甲状腺分泌的具有多种生理功能的激素,作用包括影响动物体的组织分化和物质代谢,研究证明,甲状腺素显著受到光照周期变化的影响,并对毛囊发育产生作用,但很多研究结果并不一致。Souza等[35]在对澳洲绵羊的试验中发现,在长光照时期,血液中T3和T4浓度升高,但随着光照时间缩短,血液中2种激素的浓度会下降。此外,Abecia等[36]将绒山羊分为4组,分别接受不同时期的自然光照,试验组伴随着连续皮下注射MLT,试验结果表明,各试验组在6月份血液中T4浓度升高,但在6月份血液中T4浓度显著高于对照组,且绒毛产量和毛囊密度上升。然而在对内蒙古白绒山羊羯羊的研究中,试验人员发现血液中T4浓度与季节变化无关,而T3浓度虽然在埋植MLT组有升高趋势,但与对照组无显著差异[22]。在本试验中,短光照和渐减光照周期处理在试验后期促进了MLT的分泌,因此血清T3浓度在试验后期都有所提高,这说明MLT对T3分泌的影响也会根据试验对象的年龄和性别的不同而产生不同结果。
段春辉[37]对MLT调控内蒙古绒山羊绒毛生长模式的研究中发现,在自然状态下,血液中MLT与T4浓度存在着显著的正相关,但T3浓度无论在自然状态下还是在皮下埋植MLT状态下,均无显著变化。在本试验中,血清T4浓度在各组之间全期均无显著差异,这与先前的试验结果存在很大分歧。人工改变光照周期对机体甲状腺素分泌的影响很难解释,原因一方面可能是血液中甲状腺素和皮肤毛囊中甲状腺素浓度存在差异,另一方面可能是MLT参与调控的碘甲腺原氨酸脱碘酶(DIO)2/DIO3的比值会根据毛囊是否处在活动期而产生不一样的结果,而DIO2和DIO3正是T3和T4相互转化最关键的酶[38]。无论是哪一种原因,都需要进一步的试验去探索和证明。

3.2 光照周期变化对绒山羊毛囊形态的影响

在自然条件下,毛囊的活动具有一定的周期性:初级毛囊和次级毛囊在4月份绒纤维脱落前复苏,初级毛囊在7月份经历高峰后开始下降,次级毛囊活动在秋冬季到达顶峰后下降[23]。本试验中,在第30天,各组间初级、次级毛囊深度和毛球宽度都没有显著差异,原因可能是在自然条件下,各组绒山羊毛囊活动刚开始,且还未适应光照时间的改变。绒山羊因为品种、性别和年龄的差异,次级毛囊活动时间也不尽相同,但一般规律是春季活动较低,随后开始上升,在光照时间最长的夏季开始下降,之后在秋季再次上升,在光照时间最短的初冬达到顶峰后开始下降,随后进入停止期并在第2年春季恢复活性。而Wuliji等[22]的研究显示,绒毛的最适生长期并非在最寒冷的月份,低温并非能促进羊绒的生长,因此这充分说明毛囊活动主要受到光照时间的影响。此外,范一星[39]对长毛型绒山羊相同个体不同月份皮肤毛囊纵切的试验显示,在光照逐渐缩短的秋季,次级毛囊深度增加,说明次级毛囊深度会随着光照时间的缩短而增加,在本试验中也取得了相同的结论。光照改变引起的激素变化也可以解释毛囊深度和毛球宽度的变化:一方面,试验前中期高浓度的PRL会使休止期的次级毛囊进入活动状态,进而改变毛囊深度与毛球宽度。另一方面,高浓度的MLT也会使毛囊活动产生变化。研究显示,当年春季埋置MLT可以在秋季成功诱导绒山羊二次产绒,但对第2年的产绒量没有影响,根本原因可能是MLT加深了次级毛囊的毛囊深度和加宽了毛球宽度[40]。值得注意的是,在对绒山羊皮肤的研究中发现,褪黑素很可能通过结合核受体维甲酸相关孤核受体α(RORα)的方式促进绒毛生长[41]。在本试验中,由于短光照周期处理促进了MLT的分泌,进而使育成绒山羊次级毛囊活动发生改变,增加了次级毛球的宽度。资料显示,绒山羊初级毛囊的活动周期可能并非1年[39],因此,光照变化不会对其活动产生影响。在本试验中,各组间初级毛囊深度并无差异,这说明光照时间会根据绒山羊的年龄显示出不同的结果,但可以肯定的是,光照时间是影响成年绒山羊毛囊活动的重要因素。

3.3 光照周期变化对绒山羊毛囊发育相关基因表达的影响

光照周期改变激活了毛囊生长的信号通路,使通路中关键的基因表达发生了改变。目前研究表明,MLT可以参与毛囊发育信号通路的激活并最终改变毛囊形态。在MLT参与信号通路中,Wnt信号通路是己知最早的、与毛囊生长密切相关的信号通路,对毛囊生长、发育及分化有极其关键的作用,其中,起到关键作用的家族成员是Wnt10b和β-catenin,被誉为毛囊再生的激活剂[12]。穆卿[42]研究显示,埋置外源MLT可以周期性的调节Wnt10b和β-catenin的基因表达,在毛囊从退行期到休止期周期性转变中起到重要作用。自然光照改变同样可以影响Wnt10b和β-catenin的基因表达。王兴涛[14]将试验绒山羊分为2组,对照组接受自然光照,试验组接受短光照,结果显示短光照可以显著上调5~7月份β-catenin的基因表达,在8~9月份有上调Wnt10b的基因表达的趋势。在埋植MLT的试验中发现,在5~6月份埋植MLT可以上调Wnt10b和β-catenin的基因表达[41]。在本试验中,MLT可能通过激活Wnt通路进而影响毛囊发育。试验前期,MLT分泌水平较低,β-catenin基因表达并没有受到影响,因此毛囊深度和毛球宽度没有产生变化;随着试验的进行,在试验后期,试验组山羊MLT分泌水平提高,作用时间延长,试验组β-catenin的mRNA相对表达量上升,因此,毛囊深度加深。
PDGFA是刺激毛囊发育重要的信号因子。Ponten等[43]研究显示,敲除了PDGFA基因的小鼠在出生后毛囊无法正常发育成熟,小鼠很快死亡。近些年的研究显示,光照周期改变可以调节PDGFA的基因表达,丽春等[44]研究指出,在自然条件下,5—9月份PDGFA的mRNA相对表达量上升,随后开始下降,而5—9月份恰好是羊绒生长的初期。此外,王兴涛[14]在对陕北绒山羊的研究中发现,短光照会增加MLT浓度,进而上调毛囊中PDGFA的基因表达,从而在非长绒期促进羊绒生长。这与本试验结果相似,在试验前期,虽然SDPP组绒山羊血清MLT浓度增加,但作用时间稍短,因此各试验组PDGFA的mRNA相对表达量无显著差异;在试验后期,短光照和渐减光照周期处理都上调了MLT的分泌水平,且作用时间延长,因此,试验后期PDGFA的mRNA相对表达量升高。BMP2和BMP4都是BMP家族成员,研究显示,在自然条件下,BMP2的mRNA相对表达量会随着光照和MLT分泌水平的变化而变化,随着光照的缩短,逐渐升高的MLT会使BMP2的mRNA相对表达量在毛囊发育兴盛期的9月份升高,之后光照时间继续缩短,BMP2的mRNA相对表达量会逐渐下降,并在1月份达到最低,而此时为毛囊发育的休止期[45]。因此,渐减光照会上调BMP2的基因表达,并在毛囊发育全期显示出高-低-高的现象。这也与本试验结果相似,在本试验中,随着MLT浓度的增高,渐减光照周期处理在试验后期上调了BMP2的基因表达,而短光照周期处理对BMP2的基因表达无影响。BMP4基因表达在全期都无显著变化。

3.4 光照周期变化对皮肤组织抗氧化指标及相关基因表达的影响

目前,光照影响皮肤抗氧化功能的研究较少,大多试验是与MLT相结合进行研究的。Yang等[46]研究表明,皮下注射MLT组会增强皮肤组织的抗氧化能力,这可能是因为MLT可以直接清除自由基和增强抗氧化酶的活性。这与本试验结果一致。在本试验中,由于光照周期处理改变了MLT的分泌水平,因此皮肤组织中抗氧化酶的活性和基因表达也发生了改变,如短光照周期处理提高了T-SOD、CAT和GPx的活性,上调了SOD1、GPx4和CAT的基因表达。同样,先前的体外试验表明,MLT会增强皮肤细胞的抗氧化能力,具体表现在增强抗氧化酶活性,并降低了脂质过氧化产物MDA含量[47]。这在本试验中也有所体现,即SDPP和SPP组绒山羊在试验后期皮肤组织中MDA含量都得到了降低。MLT的代谢产物2-羟基褪黑素、4-羟基褪黑素和N1-乙酰基-N2-甲酰基-5-甲氧基犬尿胺(AFMK)同样具有极强的抗氧化能力,尤其是AFMK,它能与皮肤细胞中相应受体相结合增强皮肤组织的抗氧化能力[48]。同样,MLT可以改变皮肤细胞中细胞凋亡和增殖的平衡,有研究指出,MLT在皮肤毛囊间充质干细胞中具有抗凋亡特性,具体体现在可以上调抗凋亡基因B细胞淋巴瘤-2(Bcl-2)的基因表达,且下调促凋亡基因B细胞淋巴瘤-2相关X蛋白(Bax)和胱天蛋白酶-3的基因表达[49]。机体在发生氧化应激后,可以通过线粒体途径使细胞凋亡,而抗氧化反应元件(ARE)可以缓解此现象[50]。本试验中,SOD1等基因均属ARE下游基因,在光照周期缩短后,基因表达被上调,表明机体抗氧化能力被增强,这很有可能对毛囊细胞的凋亡产生抑制作用。此外,Wang等[51]试验指出,MLT能以剂量依赖性的方式减弱过氧化氢(H2O2)诱导的皮肤毛囊间充质干细胞凋亡、抑制细胞内活性氧(ROS)的产生和提高Bax/Bcl-2的比率。这可能从侧面解释了为什么试验后期次级毛囊的毛囊深度和毛球宽度有所增加。在之前的研究中,Yang等[46]发现MLT对次级毛囊的有益作用终身维持,具体体现在MLT通过改善抗氧化状态和抑制细胞凋亡增加了次级毛囊数量;无独有偶,MLT可以介导长链非编码RNA(lncRNA)使次级毛囊的羊绒伸长,并且可以激活核因子-κB(NF-κB)通路促进成纤维细胞增殖,最终影响次级毛囊发育和羊绒生长[52]

4 结论

光照周期缩短会影响毛囊发育相关激素指标的分泌,同时可以使在自然条件下处于休止期的次级毛囊深度变深,毛球宽度变宽,并改变绒毛发育相关基因表达。此外,光照周期缩短还可以提高绒山羊皮肤组织的抗氧化能力,为羊绒生长创造有利条件。
[1]
李丰田, 王红光, 郑旭, 等. 不同光照时间对辽宁绒山羊羊绒生长、增重和繁殖性能的影响[J]. 现代畜牧兽医, 2012(8):53-56.

LI F T, WANG H G, ZHENG X, et al. The effect of different lighting times on the growth,weight gain,and reproductive performance of Liaoning cashmere goats[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2012(8):53-56. (in Chinese)

[2]
王菁. 不同LED光对长毛兔毛囊结构及皮毛品质的影响及其机制初探[D]. 硕士学位论文. 南京: 南京农业大学,2017:23-24.

WANG J. Preliminary exploration the mechanism of the effect of different LED light on the hair follicle structure and fur quality[D]. Master’s Thesis. Nanjing: Nanjing Agricultural University,2017:23-24. (in Chinese)

[3]
LANSZKI J, THEBAULT R G, ALLAIN D, et al. The effects of melatonin treatment on wool production and hair follicle cycle in angora rabbits[J]. Animal Research, 2018, 50(1):79-89.

[4]
TOCHARUS C, PURIBORIBOON Y, JUNMANEE T, et al. Melatonin enhances adult rat hippocampal progenitor cell proliferation via ERK signaling pathway through melatonin receptor[J]. Neuroscience, 2014,275:314-321.

[5]
BAŞ E, NAZIROĞLU M. Treatment with melatonin and selenium attenuates docetaxel-induced apoptosis and oxidative injury in kidney and testes of mice[J]. Andrologia, 2019,51(8):e13320.

[6]
HE Y M, DENG H H, SHI M H, et al. Melatonin modulates the functions of porcine granulosa cells via its membrane receptor MT2 in vitro[J]. Animal Reproduction Science, 2016,172:164-172.

[7]
TAN D X, MANCHESTER L C, LIU X Y, et al. Mitochondria and chloroplasts as the original sites of melatonin synthesis:a hypothesis related to melatonin’s primary function and evolution in eukaryotes[J]. Journal of Pineal Research, 2013, 54(2):127-138.

[8]
REITER R J. Oxidative processes and antioxidative defense mechanisms in the aging brain[J]. The FASEB Journal, 1995, 9(7):526-533.

[9]
LIU F, NG T B. Effect of pineal indoles on activities of the antioxidant defense enzymes superoxide dismutase,catalase,and glutathione reductase,and levels of reduced and oxidized glutathione in rat tissues[J]. Biochemistry and Cell Biology, 2000, 78(4):447-453.

[10]
BAYDAS G, GURSU M F, YILMAZ S, et al. Daily rhythm of glutathione peroxidase activity,lipid peroxidation and glutathione levels in tissues of pinealectomized rats[J]. Neuroscience Letters, 2002, 323(3):195-198.

[11]
AHMED M I, ALAM M, EMELIANOV V U, et al. MicroRNA-214 controls skin and hair follicle development by modulating the activity of the Wnt pathway[J]. Journal of Cell Biology, 2014, 207(4):549-567.

DOI PMID

[12]
LIU C, SELLO C T, SUI Y, et al. Characterization of embryonic skin transcriptome in Anser cygnoides at three feather follicles developmental stages[J]. G3-Genes Genomes Genetics, 2019, 10(2):443-454.

[13]
SUZUKI K, YAMAGUCHI Y J, VILLACORTE M, et al. Embryonic hair follicle fate change by augmented beta-catenin through Shh and Bmp signaling[J]. Development, 2009, 136(3):367-372.

DOI PMID

[14]
王兴涛. 陕北白绒山羊光控增绒及其分子机制探究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2017.

WANG X T. Study on molecular mechanism of increasing cashmere by light-controlling[D]. Master’s Thesis. Yangling: Northwest A&F University, 2017. (in Chinese)

[15]
GUO S W, MA J X, et al. Artemisia annua L. aqueous extract promotes intestine immunity and antioxidant function in broilers[J]. Frontiers in Veterinary Science, 2022,9:934021

[16]
MARONDE E, STEHLE J H. The mammalian pineal gland:known facts,unknown facets[J]. Trends in Endocrinology and Metabolism, 2007, 18(4):142-149.

[17]
SWEENEY T, DONOVAN A, ROCHE J F, et al. Variation in the ability of a long day followed by a short day photoperiod signal to initiate reproductive activity in ewes at different times of the year[J]. Journal of Reproduction and Fertility, 1997, 109(1):121-127.

[18]
YELLON S M, FOSTER D L. Alternate photoperiods time puberty in the female lamb[J]. Endocrinology, 1985, 116(5):2090-2097.

PMID

[19]
ROSE J, STORMSHAK F, OLDFIELD J, et al. Induction of winter fur growth in mink (Mustela vison) with melatonin[J]. Journal of Animal Science, 1984, 58(1):57-61.

PMID

[20]
吴丽媛, 刘斌, 辛雷勇, 等. 内蒙古阿尔巴斯型绒山羊光控增绒效果分析[J]. 中国畜牧兽医, 2018, 45(7):1972-1977.

DOI

WU L Y, LIU B, XIN L Y, et al. Analysis of the effect of light controlled velvet increase in inner Mongolia albas cashmere goat[J]. China Animal Husbandry & Veterinary Medicine, 2018, 45(7):1972-1977. (in Chinese)

[21]
CONG Y Y, DENG H W, FENG Y L, et al. Melatonin implantation from winter solstice could extend the cashmere growth phase effectively[J]. Small Ruminant Research, 2011, 99(1):48-53.

[22]
WULIJI T, LITHERLAND A, GOETSCH A L, et al. Evaluation of melatonin and bromocryptine administration in Spanish goats:Ⅰ. Effects on the out of season breeding performance in spring,kidding rate and fleece weight of does[J]. Small Ruminant Research, 2003, 49(1):31-40.

[23]
CRAVEN A J, ORMANDY C J, ROBERTSON F G, et al. Prolactin signaling influences the timing mechanism of the hair follicle:analysis of hair growth cycles in prolactin receptor knockout mice[J]. Endocrinology, 2001, 142(6):2533-2539.

[24]
BŁASZCZYK B, UDAŁA J, GACZARZEWICZ D. Changes in estradiol,progesterone,melatonin,prolactin and thyroxine concentrations in blood plasma of goats following induced estrus in and outside the natural breeding season[J]. Small Ruminant Research, 2004, 51(3):209-219.

[25]
SKIPOR J, MISZTAL T, KACZMAREK M M. Independent changes of thyroid hormones in blood plasma and cerebrospinal fluid after melatonin treatment in ewes[J]. Theriogenology, 2010, 74(2):236-245.

DOI PMID

[26]
FOLDES A, MAXWELL C A. Effect of pinealectomy and plane of nutrition on wool growth in merino sheep[J]. Journal of Pineal Research, 1993, 15(1):27-34.

PMID

[27]
王林枫, 杨改青, 杨耀胜, 等. 光照和褪黑激素对非生绒期绒山羊激素分泌和绒毛生长的影响[J]. 中国畜牧兽医, 2008, 35(12):29-32.

WANG L F, YANG G Q, YANG Y S, et al. Effects of photoperiod and melatonin on endocrine and cashmere growth in cashmere goats in telogen[J]. China Animal Husbandry & Veterinary Medicine, 2008, 35(12):29-32. (in Chinese)

[28]
SANTIAGO-MORENO J, LÓPEZ-SEBASTIÁN A, DEL CAMPO A, et al. Effect of constant-release melatonin implants and prolonged exposure to a long day photoperiod on prolactin secretion and hair growth in mouflon(Ovis gmelini musimon)[J]. Domestic Animal Endocrinology, 2004, 26(4):303-314.

[29]
许鑫. 光照控制对陕北白绒山羊绒毛生长的影响研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2015.

XU X. Study on the effect of light control on cashmere growth of Shanbei white cashmere goat[D]. Master’s Thesis. Yangling: Northwest A&F University, 2015. (in Chinese)

[30]
勿都巴拉乌亚罕, 李玉荣, 高娃, 等. 短光照对绒山羊绒毛生长相关激素的影响[J]. 华中农业大学学报, 2018, 37(1):75-81.

WUDUBALA W Y H, LI Y R, GAO W, et al. The effect of short light on growth related hormones in cashmere and wool[J]. Journal of Huazhong Agricultural University, 2018, 37(1):75-81. (in Chinese)

[31]
BAI W L, YIN R H, YIN R L, et al. IGF 1 mRNA splicing variants in Liaoning cashmere goat:identification,characterization,and transcriptional patterns in skin and visceral organs[J]. Animal Biotechnology, 2013, 24(2):81-93.

[32]
杨淑霞, 钟志红, 秦俭. 表皮生长因子对游离毛囊生长的影响[J]. 中华皮肤科杂志, 2000, 33(2):99.

YANG S X, ZHONG Z H, QIN J. The effect of epidermal growth factor on the growth of free hair follicles[J]. Chinese Journal of Dermatology, 2000, 33(2):99. (in Chinese)

[33]
初文生, 李丰田, 赵凤立, 等. 埋植和饲喂褪黑激素对常年长绒型辽宁绒山羊生产性能的影响[J]. 中国畜牧杂志, 2015, 51(1):70-72.

CHU W S, LI F T, ZHAO F L, et al. Effect of melatonin implantation or feeding on productive performance in cashmere-perennial-type Liaoning cashmere goats[J]. Chinese Journal of Animal Science, 2015, 51(1):70-72. (in Chinese)

[34]
PASTORE S, MASCIA F, MARIANI V, et al. The epidermal growth factor receptor system in skin repair and inflammation[J]. Journal of Investigative Dermatology, 2008, 128(6):1365-1374.

DOI PMID

[35]
SOUZA M I L, BICUDO S D, URIBE-VELÁSQUEZ L F, et al. Circadian and circannual rhythms of T3 and T4 secretions in Polwarth-ideal rams[J]. Small Ruminant Research, 2002, 46(1):1-5.

[36]
ABECIA J A, VALARES J A, FORCADA F. The effect of melatonin treatment on wool growth and thyroxine secretion in sheep[J]. Small Ruminant Research, 2005, 56(1/2/3):265-270.

[37]
段春辉. 褪黑激素调控山羊绒生长的模式及机理初探[D]. 博士学位论文. 北京: 中国农业大学, 2016.

DUAN C H. The research on patterns and mechanisms of cashmere growth induced by melatonin[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2016. (in Chinese)

[38]
YUE C, DU L, ZHU X, et al. Skin deiodinase profiles after melatonin manipulated in Chinese Inner Mongolia cashmere goats[J]. Asian-Australasian Journal of Animal Sciences, 2007, 20(10):1496-1502.

[39]
范一星. 不同毛被类型内蒙古绒山羊皮肤毛囊周期性生长及相关分子机理研究[D]. 博士学位论文, 呼和浩特: 内蒙古农业大学, 2019.

FAN Y X. Study on different hair types of inner Mongolia cashmere goat in periodic changes of skin and hair follicles and related molecular mechanisms[D]. Ph.D.Thesis. Hohhot: Inner Mongolia Agricultural University, 2019. (in Chinese)

[40]
柳建昌, 尹协镇, 方天祺. 褪黑素对中国绒山羊在非生绒期促绒生长与绒产量的影响[J]. 动物学杂志, 1998(3):8-12.

LIU J C, YIN X Z, FANG T Q. Effect of melatonin on the cashmere growth and production of Chinese white goats[J]. Chinese Journal of Zoology, 1998(3):8-12. (in Chinese)

[41]
BLANPAIN C, FUCHS E. Epidermal stem cells of the skin[J]. Annual Review of Cell and Developmental Biology, 2006,22:339-373.

[42]
穆卿. 褪黑激素对内蒙古绒山羊毛囊生长周期及Wnt10b、β-catenin 基因表达的影响[D]. 硕士学位论文. 呼和浩特: 内蒙古农业大学, 2018.

MU Q. Melatonin on the growth cycle of hair follicles in inner Mongolia cashmere goats and on Wnt10b、β-catenin effect of gene expression[D]. Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2018. (in Chinese)

[43]
PONTEN F, REN Z, NISTER M, et al. Epithelial-stromal interactions in basal cell cancer:the PDGF system[J]. Journal of Investigative Dermatology, 1994, 102(3):304-309.

[44]
丽春, 张文广, 杨文柱, 等. 褪黑激素对PDGFA基因在绒山羊皮肤毛囊中表达模式的影响[J]. 中国农业科学, 2012, 45(10):2031-2039.

DOI

LI C, ZHANG W G, YANG W Z, et al. Influence of melatonin implanting on PDGFA gene expression in skin hair follicle[J]. Scientia Agricultura Sinica, 2012, 45(10):2031-2039. (in Chinese)

[45]
苏蕊, 丽春, 杨钟, 等. 外源褪黑激素(MT)对内蒙古绒山羊皮肤中BMP2基因表达的影响[J]. 畜牧与饲料科学, 2013, 34(12):5-8.

SU R, LI C, YANG Z, et al. The effect of exogenous melatonin (MT) on the expression of BMP2 gene in the skin of Inner Mongolia cashmere goats[J]. Animal Husbandry and Feed Science, 2013, 34(12):5-8. (in Chinese)

[46]
YANG C H, XU J H, REN Q C, et al. Melatonin promotes secondary hair follicle development of early postnatal cashmere goat and improves cashmere quantity and quality by enhancing antioxidant capacity and suppressing apoptosis[J]. Journal of Pineal Research, 2019, 67(1):e12569.

[47]
KILAŃCZYK E, BRYSZEWSKA M. The effect of melatonin on antioxidant enzymes in human diabetic skin fibroblasts[J]. Cellular & Molecular Biology Letters, 2003, 8(2):333-336.

[48]
SLOMINSKI A T, SEMAK I, FISCHER T W, et al. Metabolism of melatonin in the skin:why is it important?[J]. Experimental Dermatology, 2017, 26(7):563-568.

[49]
SOTIROPOULOU P A, CANDI A, MASCRÉ G, et al. Bcl-2 and accelerated DNA repair mediates resistance of hair follicle bulge stem cells to DNA-damage-induced cell death[J]. Nature Cell Biology, 2010, 12(6):572-582.

DOI PMID

[50]
LEE D Y, SONG M Y, KIM E H. Role of oxidative stress and Nrf2/KEAP1 signaling in colorectal cancer:mechanisms and therapeutic perspectives with phytochemicals[J]. Antioxidants, 2021, 10(5):743.

[51]
WANG F W, WANG Z, ZHANG Y M, et al. Protective effect of melatonin on bone marrow mesenchymal stem cells against hydrogen peroxide-induced apoptosis in vitro[J]. Journal of Cellular Biochemistry, 2013, 114(10):2346-2355.

[52]
JIN M, CAO M, CAO Q, et al. Long noncoding RNA and gene expression analysis of melatonin-exposed Liaoning cashmere goat fibroblasts indicating cashmere growth[J]. Naturwissenschaften, 2018, 105(9/10):60.

Outlines

/