RESEARCH PAPER

Isolation and Characterization of Two Strains of Goose-Derived Probiotics and Their Effect on Goslings

  • ZHAO Yu , 1, 2 ,
  • WANG Qiuju , 1, 2, * ,
  • MENG Lingying 1, 2 ,
  • WEI Xiao 1, 2 ,
  • YU Wenlong 1, 2 ,
  • LENG Xinyang 1, 2
Expand
  • 1 College of Animal Science and Technology, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Key Laboratory of Exploration and Innovative Utilization of White Goose Germplasm Resources in the Cold Region of Heilongjiang Province, Daqing 163319, China
* professor, E-mail:

Received date: 2024-03-30

  Online published: 2024-11-09

Abstract

The purpose of this study was to isolate and identify two goose probiotics, Lacticaseibacillus paracasei and Bacillus amyloliquefaciens, and to study their effects on uric acid metabolism in goslings. In this experiment, 30 healthy adult seed geese were randomly selected, feces were collected, and probiotics were isolated, identified and screened by microbial culture method. The screened Lacticaseibacillus paracasei WX2011-R and Bacillus amyloliquefaciens WX2104-S were expanded and cultured for subsequent experiments. Forty-eight one-day-old goslings were randomly divided into 8 groups with 3 replicates per group and 2 goslings per replicate. Two kinds of probiotics were prepared into lyophilized powder, then mixed into 1 mL distilled water according to the concentration and administered daily, divided into the following groups: control group (NC group), model group (MC group), Lacticaseibacillus paracasei/Bacillus amyloliquefaciens low-dose group (RLD group /SLD group), the lyophilized powder dose was 0.01 g/mL; in the medium dose group (RMD group/SMD group), the freeze-dried powder dose was 0.10 g/mL; high dose group (RHD group/SHD group) was given 1.00 g/mL freeze-dried powder, and control group and model group were given 1 mL distilled water. Piglets in the control group were fed a basal diet, and those in the model group and experimental group were fed a high protein diet. The experiment lasted for 14 days. The results showed as follows: 1) the contents of uric acid, creatinine, urea nitrogen and xanthine oxidase activity of goslings were all affected by administration of two kinds of lyophilized probiotics powder. Compared with the model group, the four indexes of Lacticaseibacillus paracasei medium dose group were significantly decreased (P<0.05), and the four indexes of Bacillus amyloliquefaciens high dose group were significantly decreased compared with the model group (P<0.05). 2) In the detection of the expression of transporters related to uric acid metabolism, the expression levels of uric acid transporter 1 (URAT1) and glucose transporter 9 (GLUT9) in Lacticaseibacillus paracasei dose group were significantly decreased compared with the model group (P<0.05). The protein expression levels of organic anion transporter 1 (OAT1) and ATP-binding box subfamily G member 2 (ABCG2) were significantly increased (P<0.05). Compared with model group, GLUT9 protein expression in high-dose Bacillus amyloliquefaciens group was significantly decreased (P<0.05), and OAT1 and ABCG2 protein expressions were significantly increased (P<0.05). 3) In real-time fluorescence quantitative PCR test, compared with model group, the relative expression levels of URAT1 and GLUT9 genes in dose group were significantly decreased (P<0.05), and the relative expression levels of OAT1 and ABCG2 genes were significantly increased (P<0.05). Compared with model group, the relative expression level of GLUT9 gene in high-dose Bacillus amyloliquefaciens group was significantly decreased (P<0.05), and the relative expression levels of OAT1 and ABCG2 genes were significantly increased (P<0.05). In conclusion, medium doses of Lacticaseibacillus paracasei (0.10 g/mL) and high doses of Bacillus amyloliquefaciens (1.00 g/mL) can positively affect the uric acid metabolism of goslings and prevent gout in goslings.

Cite this article

ZHAO Yu , WANG Qiuju , MENG Lingying , WEI Xiao , YU Wenlong , LENG Xinyang . Isolation and Characterization of Two Strains of Goose-Derived Probiotics and Their Effect on Goslings[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 7409 -7421 . DOI: 10.12418/CJAN2024.630

我国养鹅业在这些年迅速发展,逐渐成为农民增收、农业增效的重要支柱产业之一。然而,由于雏鹅缺乏氧化尿酸的能力,对高蛋白质饲粮的代谢能力严重不足,这导致3周龄以下的雏鹅极易发生痛风[1],造成雏鹅的大量死亡,进而引发严重的经济损失[2]。目前关于痛风发病机制的共识认为,嘌呤代谢紊乱导致尿酸产生过多和肾脏内尿酸的重吸收和排泄受损是痛风发病的主要原因[3]
益生菌通常被认为是提高生产性能的优良饲料添加剂之一[4-6]。而芽孢杆菌和乳酸菌是畜牧业中广泛使用的益生菌种[7-8]。芽孢杆菌是一种革兰氏阳性细菌,能产生芽孢并耐受极端环境[9-10],其中一些用于畜牧养殖,可以改善家禽的生长性能,增加肠绒毛的长度和隐窝的深度,改善动物的肠道健康[11-12]。乳酸菌也是一种革兰氏阳性菌,微需氧,通过发酵碳水化合物产生乳酸[13]。它们被应用于畜禽饲养,以调节动物的生长性能、肠道形态和肠道屏障功能[14]
近年来,利用益生菌调控尿酸代谢的作用受到了关注。21世纪初,日本明治乳业报导的1篇关于尿酸代谢调控的研究发现,当与酸奶等食物一起食用时,加氏乳杆菌PA-3可以降解血液中的肌苷和鸟苷,同时会使肠道中嘌呤的吸收减少[15]。后续研究证实,加氏乳杆菌PA-3降低了高尿酸血症大鼠肠道对次黄嘌呤核苷酸、肌苷和次黄嘌呤的吸收,这表明加氏乳杆菌PA-3减少了食物中嘌呤在肠道中的吸收,有助于减少饮食中嘌呤的过量摄入[16]。另有报道称,鼠李糖乳杆菌1155成功地降低了高嘌呤饮食诱导的高尿酸血症大鼠模型中的尿酸水平[17]。这些研究基本都指向了乳杆菌属似乎可以作为调节尿酸代谢的候选菌。同时,最新的研究将能够降解嘌呤的细菌扩大到了乳杆菌属以外,并发现了一些基因的保守性,它们和肠道中嘌呤的丰度呈负相关[18]
目前对于雏鹅蛋白质代谢障碍引起的痛风无特别有效措施。多数用于治疗痛风的药物,如秋水仙碱或非布司他等,都伴有各种副作用。现有的兽药或饲料添加剂改善尿酸代谢的效果也很有限。预防与调控雏鹅蛋白质代谢障碍的天然非化学合成物的研发,成为近年鹅养殖业中解决雏鹅痛风的研究热点。因此,本研究拟通过鹅粪便菌的分离和筛选,开发具有预防以及调控雏鹅痛风的益生菌。通过分析2种鹅源益生菌对饲喂高蛋白质饲粮雏鹅尿酸转运蛋白表达水平变化的影响,探究益生菌对尿酸代谢的调控作用,为应用益生菌预防雏鹅痛风提供科学依据。

1 材料与方法

本试验由黑龙江八一农垦大学科学技术伦理委员会审查通过,批准编号为DWKJXY2024019。

1.1 鹅源益生菌的分离、筛选和鉴定

1.1.1 培养基制备

硝酸盐培养基配比为10 g/L琥珀酸钠、1 g/L硝酸钠、1 g/L磷酸二氢钾、0.5 g/L七水硝酸镁、0.2 g/L氯化钾。蛋白培养基配比为10 g/L蛋白胨、1 g/L酵母膏、20 g/L琼脂。淀粉培养基配比为20 g/L可溶性淀粉、5 g/L蛋白胨、5 g/L氯化钠、20 g/L琼脂,pH=7。MRS培养基、甘露醇卵黄多黏菌素琼脂基础(MYP)、LB肉汤根据说明书配比,总体积配制100~200 mL,置于250 mL广口锥形瓶中,放入水浴锅中加热5~10 min,期间用玻璃棒搅拌加速溶解,溶解后将培养基放入高压蒸汽灭菌锅中在121 ℃的温度下灭菌15 min。肉汤培养基冷却后即可使用,固体培养基冷却到50 ℃左右,在超净工作台中进行倒板,厚度约为玻璃平皿的1/3,冷却凝固后使用。

1.1.2 样品采集

随机选取30只健康成年籽鹅,采食30 min后,将取粪盒悬挂于鹅的泄殖腔外收集新鲜无污染的直肠粪便,将收集好的粪便放入装有冰袋的保温盒中带回实验室。在无菌超净台内称取1 g新鲜粪便,置于提前准备好的9 mL生理盐水中,漩涡振荡以混合均匀,作为细菌分离原液于4 ℃保存。

1.1.3 细菌的分离和纯化

各取100 μL细菌分离原液接种到配好的特异性培养基MRS和甘露醇卵黄多黏菌素培养基中培养,在37 ℃的恒温培养箱内培养48 h。乳酸菌挑选奶白色光滑菌落,芽孢杆菌选择黄色菌落,反复进行平板划线培养,直至平皿中菌落生长形态完全一致,即获得纯化完全的菌株。分别挑取单个菌落进行涂片并进行革兰氏染色,光学显微镜下观察细菌形态和染色特性。

1.1.4 菌种鉴定

采用煮沸法对筛选后的细菌进行DNA的提取,后进行PCR扩增,使用引物为27F(5'-AGAGTTTGATCCTGGCTCAG-3')和1492R(5'-TACGGYTACCTTGTTACGACTT-3')。将得到的PCR产物进行1%琼脂糖凝胶电泳试验测定DNA的大小以及浓度,使用DL2000 Marker作为电泳参照。确定DNA的大小和浓度在预期范围后,将剩余的PCR扩增产物进行测序。获得DNA序列后,与NCBI数据库进行比对。

1.1.5 生物学特性的检测

生长曲线的测定,取100 μL目标菌的菌液接到装有5 mL LB液体培养基的试管中,置于37 ℃,150 r/min摇床中培养,分别在0、2、4、6、8、10、12、14、16、18、20、22、24、36、48 h时取培养液测量600 nm处吸光度(OD)值,以未接种细菌的LB培养基为对照,以时间为横坐标,培养液的OD600 nm值为纵坐标绘制曲线。
耐酸能力的检测,同生长曲线,取目标菌的菌液接种至pH=7的LB液体培养基中为耐酸试验的空白对照,耐酸检测分别将菌接种在pH为2.0、2.5、3.0、3.5、4.0的培养基中,在37 ℃,150 r/min摇床中培养,测定600 nm处OD值,以pH为横坐标,培养液的OD600 nm值为纵坐标绘制曲线。
耐胆盐能力的检测,同生长曲线,将菌液接种至无胆盐的LB液体培养基中为耐胆盐试验的空白对照,耐胆盐检测分别将菌接种在0.3%、0.6%、0.9%、1.2%、1.5%、1.8%胆盐浓度的培养基中,在37 ℃,150 r/min摇床中培养,测定600 nm处OD值。以胆盐浓度为横坐标,培养液的OD600 nm值为纵坐标绘制曲线。

1.2 益生菌灌服试验

1.2.1 益生菌制剂制备和饲粮组成

将副干酪乳杆菌和解淀粉芽孢杆菌制备为冻干粉进行灌服,根据平板计数公式所得冻干粉制剂活菌含量在5×10⁹ CFU/g,2周后复水平板计数所得冻干粉活菌含量在4.67×109 CFU/g,即在试验周期内冻干粉制剂的有效活菌保证值在4.67×109 ~5.00×10⁹ CFU/g。试验所使用的2种饲粮如表1所示,根据NRC(1994)鹅营养需要和奚雨萌等[19]报道的高蛋白质饲粮研究以及试验需要进行配制,2种饲粮能量水平一致。
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis) %

项目
Items
基础饲粮
Basal diet
高蛋白质饲粮
High
protein diet
原料Ingredients
玉米Corn 50.0 50.0
豆粕Soybean meal 20.0 22.0
鱼粉Fish meal 10.0
麸皮Bran 9.0 11.4
米糠Rice bran 14.9
稻壳粉Rice hulls 2.0 4.0
石粉Limestone 1.5 1.1
磷酸氢钙CaHPO4 1.3 0.2
食盐NaCl 0.3 0.3
预混料Premix1) 1.0 1.0
合计Total 100.0 100.0
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 11.0 11.0
粗蛋白质CP 16.0 24.0
粗纤维CF 4.6 4.6
钙Ca 1.0 1.0
非植酸磷NPP 0.3 0.3
赖氨酸Lys 0.8 1.2
蛋氨酸Met 0.4 0.4
蛋氨酸+半胱氨酸Met+Cys 0.6 0.8

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 1 400 IU,VD 3 600 IU,VE100 IU,VK 328 mg,VB1 12 mg,VB2 62 mg,VB6 18 mg,VB12 0.12 mg,泛酸 pantothenic acid 20 mg,烟酸 nicotinic acid 318 mg,叶酸 folic acid 11.6 mg,生物素 biotin 1.6 mg,胆碱 choline 500 mg,Mn (as manganese sulfate) 90 mg,Zn (as zinc sulfate) 100 mg,Fe (as ferrous sulfate) 90 mg,Cu (as copper sulfate) 25 mg,Se (as sodium selenite) 4.5 mg,I (as potassium iodide) 7 mg,赖氨酸 Lys 2 500 mg。

2)代谢能和非植酸磷为计算值,其余为实测值。ME and NPP were calculated values, while the others were measured values.

采用凯氏定氮法测定粗蛋白质含量(GB/T 6432—2018),采用滤袋法测定粗纤维含量(GB/T 6434—2022),采用高锰酸钾法测定钙含量(GB/T 6436—2018),采用离子交换色谱法测定氨基酸含量(GB/T 15399—2018)。代谢能和非植酸磷含量参照《中国饲料成分及营养价值表(2022年第33版)》计算。

1.2.2 试验设计与饲养管理

本试验在黑龙江八一农垦大学动物医院进行。随机选取体重为(110±5) g的1日龄籽鹅雏鹅48只,随机分为8组,每组3个重复,每个重复2只。将2种益生菌制备成冻干粉后按浓度兑入1 mL蒸馏水中,每日灌服,分组情况如下:对照组(NC组)、模型组(MC组)、副干酪乳杆菌/解淀粉芽孢杆菌低剂量组(RLD组/SLD组),冻干粉剂量为0.01 g/mL;副干酪乳杆菌/解淀粉芽孢杆菌中剂量组(RMD组/SMD组),冻干粉剂量为0.10 g/mL;副干酪乳杆菌/解淀粉芽孢杆菌高剂量组(RHD组/SHD组),冻干粉剂量为1.00 g/mL,对照组和模型组灌服1 mL蒸馏水。对照组饲喂基础饲粮,模型组及试验组饲喂高蛋白质饲粮,试验期为14 d,雏鹅自由采食饮水,每日回称饲粮消耗。

1.2.3 样品采集

在试验第14天时,测定体重后将全部雏鹅禁食8 h后心脏采血,室温下静置 1 h,5 012.78×g离心10 min后分离血清,-80 ℃保存,用于测定血清生化指标。随后心脏注射戊巴比妥钠处死雏鹅,并剖开腹腔采集双侧肾脏,-80 ℃保存,用于实时荧光定量PCR(RT-qPCR)和Western blot测定。

1.2.4 血清生化指标测定

血清尿酸(UA)、尿素氮(UN)和肌酐(CRE)含量使用全自动生化分析仪(BS-220,迈瑞医疗,中国)测定,血清黄嘌呤氧化酶(XOD)活性使用XOD测定试剂盒(南京建成生物工程研究所,中国)测定。

1.2.5 Western blot测定

从肾脏中提取蛋白质,使用二喹啉甲酸(BCA)蛋白检测试剂盒(上海碧云天生物技术股份有限公司,中国)测定蛋白质的浓度,测定OD值后确定上样量。将十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)缓冲液加入蛋白质样品中,使用12.5% PAGE凝胶制备试剂盒(上海碧云天生物技术股份有限公司,中国)制备凝胶,进行蛋白质电泳。免疫复合物使用ECL试剂盒(上海碧云天生物技术股份有限公司,中国)进行显示,使用AI600型多功能成像仪(美国通用电气公司,美国)进行成像,最后使用Image J对条带进行灰度分析。

1.2.6 RT-qPCR

使用Primer Premier 5.0进行RT-qPCR引物的设计,引物信息如表2所示。使用Trizol试剂盒提取肾脏组织总RNA,完成后使用琼脂糖凝胶电泳和分光光度计评估其质量和数量。随后使用反转录试剂盒(TaKaRa,日本)将RNA转录为cDNA。使用qTower实时荧光定量PCR仪器(德国耶拿分析仪器股份公司,德国)进行RT-qPCR,本试验以甘油醛-3-磷酸脱氢酶(GAPDH)为参照基因,反应体系为:SYBR染料10 μL,上游引物1 μL,下游引物1 μL,DEPC水6 μL,模板cDNA 2 μL。反应程序为:95 ℃,3 min;95 ℃,10 s、5 ℃,30 s、72 ℃,45 s,40个循环。
表2 引物序列

Table 2 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank accession number
尿酸转运蛋白1
URAT1
F:TCACCACCCAGAACATGCTG
R:GGAGACGGCCAGAAGAACAT
NM_009203
葡萄糖转运体9
GLUT9
F:TCCTACTGCTTCCTCGTCT
R:TGGGTTCTGTTCTTGGTCT
XM_006503687
有机阴离子转运体1
OAT1
F:TGTGCCTTTTTTCGTTG
R:TAGCCCCCTCTTCTTGT
NM_008766
ATP结合盒亚家族G成员2
ABCG2
F:ACTGAAGAAGACGGTGGATGCT
R:GTTGTCCGTTACATTGAATCCTGG
XM_006506150
甘油醛-3-磷酸脱氢酶
GAPDH
F:GTGGCAAAGTGGAGATTGTTG
R:CGTTGAATTTGCCGTGAGTG
NM_008084

1.3 数据统计分析

本试验中所有试验处理均设置3个重复,数据的分析与处理使用Excel 2020、SPSS 26.0、Image J软件完成,作图使用GraphPad Prism 9.0、MEGA 11、Adobe Illustrator CC 2018等软件,数据结果以平均值和标准误差的形式表示,采用单因素方差分析(one-way ANOVA)和Duncan氏多重比较法统计分析各组之间的差异显著性,P<0.05表示差异显著。

2 结果与分析

2.1 细菌的分离、筛选和鉴定

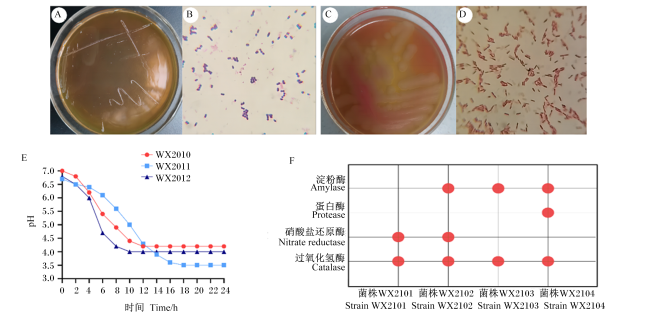
通过特异性培养,共筛选出3株符合乳酸菌菌落特征的细菌,分别命名为WX2010、WX2011、WX2012,在MRS培养基上呈白色光滑的菌落(图1-A),革兰氏染色在显微镜下菌体呈短杆状,单个、成对或链状排列的革兰氏阳性菌(图1-B)。将初筛的细菌进行产酸特性检测,结果如图1-E所示,随着时间的增加,细菌不断生长,培养液的pH逐渐降低,当细菌生长达到稳定期后,培养液的pH也不再变化,说明3株菌均具有产酸特性。WX2010、WX2011、WX2012菌株分别在12、10和18 h达到稳定期,且最终培养液的pH分别为4.2、3.5和4.0,说明编号为WX2011的细菌产酸能力更强,选其进行后续测序鉴定。
图1 细菌的分离和筛选

A:乳酸菌在MRS培养基上生长形态 the growth morphology of lactic acid bacteria on MRS medium;B:乳酸菌革兰氏染色 lactic acid bacteria Gram staining;C:芽孢杆菌在甘露醇多黏菌素培养基上生长形态 Bacillus grew on mannitol polymyxin medium;D:芽孢杆菌革兰氏染色 Bacillus Gram staining;E:乳酸菌产酸特性曲线 acid production characteristic curve of lactic acid bacteria;F:芽孢杆菌生化特性反应,红色代表反应阳性 biochemical characteristics of the bacillus reaction, red represents a positive reaction。

Fig.1 Isolation and screening of bacteria

在甘露醇多黏菌素培养基上共筛选4株符合芽孢杆菌菌落形态的细菌,分别命名为WX2101、WX2102、WX2103、WX2101,4株菌可使培养基变色(图1-C),革兰氏染色在显微镜下菌体呈长杆状,产芽孢(图1-D)。通过生化特性检测试验进一步筛选,结果如图1-F所示(红点代表反应呈阳性),WX2101菌株不产淀粉酶,WX2102和WX2103菌株只产淀粉酶,WX2104菌株同时产蛋白酶和淀粉酶,因此,选取编号为WX2104的细菌测序鉴定。
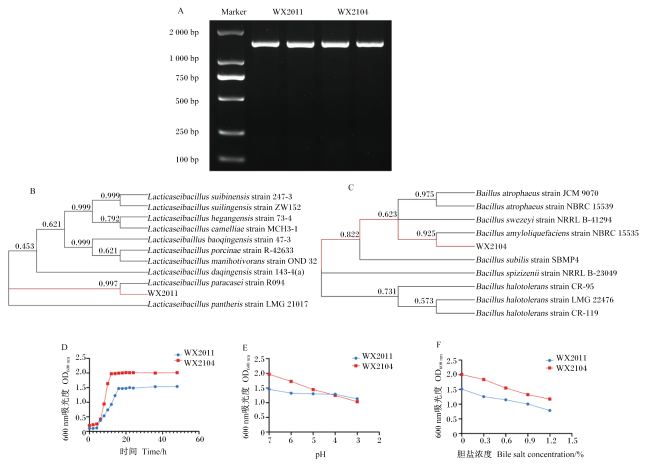
对筛选得到的2株优势菌株提取DNA,进行琼脂糖凝胶电泳试验。如图2-A所示,DNA大小及浓度均符合预期结果。测序的序列与NCBI数据库比对,结果如图2-B图2-C所示,编号WX2011的菌株鉴定为副干酪乳杆菌(Lacticaseibacillus paracasei),命名为副干酪乳杆菌WX2011-R;编号WX2104的菌株鉴定为解淀粉芽孢杆菌(Bacillus amyloliquefaciens),命名为解淀粉芽孢杆菌WX2104-S。
图2 细菌的鉴定和生物学特性

A:琼脂糖凝胶电泳 agarose gel electrophoresis;B:系统发育树(WX2011) phylogenetic tree (WX2011);C:系统发育树(WX2104) phylogenetic tree (WX2104);D:生长曲线 growth curve;E:产酸特性曲线 acid production characteristic curve;F:胆盐耐受曲线 bile salt tolerance curve。

Lacticaseibacillus paracasei strain R094:副干酪乳杆菌R094株;Bacillus amyloliquefaciens strain NBRC 15535:解淀粉芽孢杆菌NBRC 15535株。

Fig.2 Identification and biological characterization of bacteria

生物学特性结果如图2D~图2F所示,通过生长曲线(图2-D)发现,副干酪乳杆菌WX2011-R对数生长期在4~16 h,解淀粉芽孢杆菌WX2104-S的对数生长期为4~12 h。通过耐酸能力检测结果(图2-E)发现,pH=7.0时,WX2011-R和WX2104-S的OD600 nm值分别为1.489和1.977;pH=3.5时,WX2011-R和WX2104-S的OD600 nm值分别为1.151和1.032,结果证明在强酸环境下2株菌的存活率都超过半数。同理,耐胆盐能力检测结果(图2-F)发现,在无胆盐的培养基中WX2011-R和WX2104-S生长所测得的OD600 nm值分别为1.520和2.040,1.2%胆碱浓度的环境中WX2011-R和WX2104-S生长所测得的OD600 nm值分别为0.853和1.332,存活率同样超过半数,也具有良好的胆盐耐受力。

2.2 益生菌对雏鹅生长性能的影响

表3所示,在试验第14天,灌服副干酪乳杆菌WX2011-R的RMD组体重显著高于MC组(P<0.05),RHD组体重显著高于MC组(P<0.05),但显著低于RMD组(P<0.05)。在平均日采食量上,RMD组显著高于MC组(P<0.05),并且与NC组相比无显著差异(P>0.05)。
表3 益生菌对雏鹅生长性能的影响

Table 3 Effects of probiotics on growth performance of goslings g

项目
Items
组别Groups SEM P
P-value
NC MC RLD RMD RHD
副干酪乳杆菌Lacticaseibacillus paracasei WX2011
体重BW 547.36a 472.67c 480.60c 538.86a 508.95b 6.40 <0.001
平均日采食量ADFI 45.38a 38.03c 39.67c 43.53a 38.97c 0.76 0.002
解淀粉芽孢杆菌Bacillus amyloliquefaciens WX2104
体重BW 547.36a 472.67b 479.73b 482.56b 535.68a 6.69 <0.001
平均日采食量ADFI 45.38a 38.03b 37.85b 39.42b 44.81a 1.31 <0.001

同行数据肩标不同小写字母表示差异显著(P<0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05).

灌服解淀粉芽孢杆菌WX2104-S的SHD组体重显著高于MC组(P<0.05),其他剂量和MC组相比无显著差异(P>0.05)。SHD组的平均日采食量同样显著高于MC组(P<0.05),其他剂量组与MC组相比无显著差异(P>0.05)。

2.3 益生菌对雏鹅血清生化指标的影响

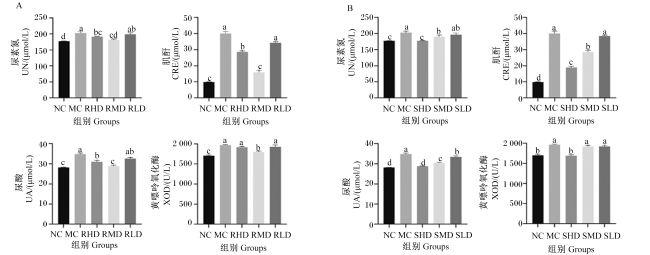
图3-A所示,在中剂量下,除XOD活性外,RMD组的血清UA、UN、CRE含量与NC组无显著差异(P>0.05)。这表明RMD和健康雏鹅的血清生化指标最接近。在低剂量时,血清UA、UN、CRE含量和XOD活性均较NC组显著升高(P<0.05),血清CRE含量与MC组无显著差异(P>0.05)。在高剂量下,血清UA、UN、CRE含量和XOD活性同样均较NC组显著升高(P<0.05),且血清XOD活性与MC组水平一致,差异不显著(P>0.05)。
图3 益生菌对雏鹅血清生化指标的影响

不同小写字母代表差异显著(P<0.05)。下图同。Different small letters represent significant difference (P<0.05). The same as below.

A:不同剂量的副干酪乳杆菌WX2011-R对血清UN、CRE、UA含量和XOD活性的影响 effects of different doses of Lacticaseibacillus paracasei WX2011-R on UN, CRE, UA contents and XOD activity in serum;B:不同剂量的解淀粉芽孢杆菌WX2104-S对血清UN、CRE、UA含量和XOD活性的影响 effects of different doses of Bacillus amyloliquefaciens WX2104-S on UN, CRE, UA contents and XOD activity in serum。

Fig.3 Effects of probiotics on serum biochemical indices of goslings

图3-B所示,在高剂量时,只有血清CRE含量显著高于NC组(P<0.05),其余各项指标SHD组相比NC组均无显著差异(P>0.05)。这表明SHD和健康雏鹅的血清指数水平最接近。低剂量时,SLD组的血清UA、UN、CRE含量和XOD活性相对于NC组均显著升高(P<0.05)。在中等剂量时,血清UA、UN、CRE含量和XOD活性相较于NC组均显著升高(P<0.05)。这表明高剂量解淀粉杆菌摄入可降低痛风相关血清指标,接近NC组,具有痛风预防作用。
从上述试验结果中,初步确定了副干酪乳杆菌WX2011-R中剂量组(RMD,0.10 g/mL)和解淀粉芽孢杆菌 WX2104-S高剂量组(SHD,1.00 g/mL)为预防痛风的有效剂量。

2.4 益生菌对雏鹅尿酸代谢相关转运蛋白表达的影响

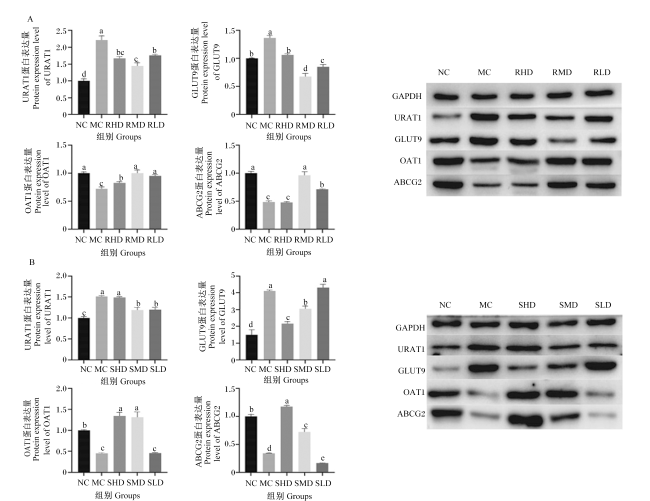
为了进一步验证2种益生菌对痛风雏鹅的干预作用,检测了雏鹅肾脏组织中转运蛋白的表达,结果如图4所示。
图4 益生菌对雏鹅尿酸代谢相关转运蛋白表达的影响

A:不同剂量的副干酪乳杆菌WX2011-R对URAT1、GLUT9、OAT1和ABCG2蛋白表达的影响 effects of different doses of Lacticaseibacillus paracasei WX2011-R on protein expression of URAT1, GLUT9, OAT1 and ABCG2;B:不同剂量的解淀粉芽孢杆菌WX2104-S对URAT1、GLUT9、OAT1和ABCG2蛋白表达的影响 effects of different doses of Bacillus amyloliquefaciens WX2104-S on protein expression of URAT1, GLUT9, OAT1 and ABCG2。URAT1:尿酸转运蛋白1 uric acid transporter 1; GLUT9:葡萄糖转运蛋白9 glucose transporter 9;OAT1:有机阴离子转运体1 organic anion transporter 1; ABCG2:ATP结合盒亚家族G成员2; ATP binding box subfamily G member 2。

Fig.4 Effects of probiotics on expression of transporter proteins related to uric acid metabolism in goslings

副干酪乳杆菌WX2011-R对尿酸转运蛋白1(URAT1)、葡萄糖转运蛋白9(GLUT9)、有机阴离子转运体1(OAT1)和ATP结合盒亚家族G成员2(ABCG2)4种蛋白表达量的影响如图4-A所示。在尿酸重吸收蛋白URAT1和GLUT9的蛋白表达上,RHD组较MC组显著下降(P<0.05),相对NC组则显著升高(P<0.05)。RMD组相对MC组表达量显著降低(P<0.05),相对于RHD组表达量也显著降低(P<0.05)。在尿酸排泄蛋白OAT1和ABCG2的蛋白表达上,与RMD组相比,RHD中只有OAT1的蛋白表达量相对MC组显著升高(P<0.05)。相比之下,RMD组对OAT1和ABCG2的正向调控非常有效,相对于MC组,不仅2个蛋白的表达量显著升高(P<0.05),而且在ABCG2的蛋白表达量上与NC组无显著差异(P>0.05)。
解淀粉芽孢杆菌WX2104-S对URAT1、GLUT9、OAT1和ABCG2 4种蛋白表达量的影响如图4-B所示。在尿酸重吸收蛋白URAT1和GLUT9的蛋白表达中,SHD组中URAT1的蛋白表达量与MC组相比无显著差异(P>0.05),但对GLUT9的蛋白表达调控非常有效,较MC组显著降低(P<0.05)。在SMD组,2个蛋白的表达量相对于MC组也显著下降(P<0.05),对URAT1和GLUT9的调节作用与SHD接近。SLD组的剂量水平则对2个蛋白的表达调控几乎没有任何效果,和MC组相比,表达量无显著差异(P<0.05)。在尿酸排泄蛋白OAT1和ABCG2的蛋白表达中,SHD组相对于MC组显著增加(P<0.05),OAT1的蛋白表达量甚至显著高于NC组(P<0.05)。OAT1在SMD组中的蛋白表达量与SHD组相比无显著差异(P<0.05),但ABCG2的蛋白表达量显著低于SHD(P<0.05)。SLD组OAT1的蛋白表达量和MC组相比无显著差异(P<0.05),ABCG2的蛋白表达量显著低于MC组(P<0.05)。

2.5 益生菌对雏鹅尿酸代谢相关基因表达的影响

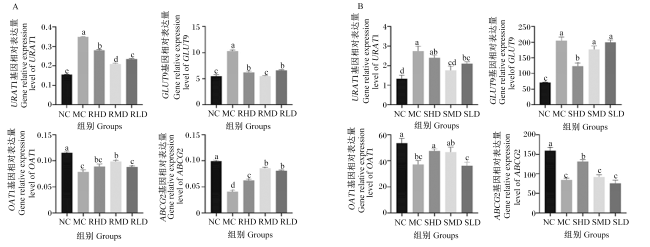
副干酪乳杆菌WX2011-R对URAT1、GLUT9、OAT1和ABCG2 4个基因相对表达量的影响如图5-A所示。在URAT1和GLUT9基因相对表达量中,RHD组较MC组显著降低(P<0.05)。RMD组URAT1和GLUT9基因相对表达量相对于MC组和RHD组均显著下调(P<0.05)。RLD组也表现出一定的调控作用,但不如RMD组有效。在OAT1和ABCG2基因相对表达量中,RHD组中仅显示ABCG2的基因相对表达量相对于MC组显著升高(P<0.05)。上述结果与Western blot的结果一致,其中中剂量的效果最好。
图5 益生菌对雏鹅尿酸代谢相关基因表达的影响

A:不同剂量的副干酪乳杆菌WX2011-R对URAT1、GLUT9、OAT1和ABCG2的影响 effects of different doses of Lacticaseibacillus paracasei WX2011-R on URAT1, GLUT9, OAT1 and ABCG2;B:不同剂量的解淀粉芽孢杆菌WX2104-S对URAT1、GLUT9、OAT1和ABCG2的影响 effects of different doses of Bacillus amyloliquefaciens WX2104-S on URAT1, GLUT9, OAT1 and ABCG2。URAT1:尿酸转运蛋白1 uric acid transporter 1; GLUT9:葡萄糖转运蛋白9 glucose transporter 9;OAT1:有机阴离子转运体1 organic anion transporter 1; ABCG2:ATP结合盒亚家族G成员2 ATP binding box subfamily G member 2。

Fig.5 Effects of probiotics on expression of genes related to uric acid metabolism in goslings

解淀粉芽孢杆菌WX2104-S对URAT1、GLUT9、OAT1、ABCG2 4个基因相对表达量的影响如图5-B所示。在URAT1和GLUT9基因相对表达量中,SHD组的URAT1基因相对表达量相对于MC组无显著差异(P>0.05),但GLUT9的基因相对表达量大幅显著下调(P<0.05)。SMD组的URAT1和GLUT9基因相对表达量相对于MC组均显著下调(P<0.05)。SLD组中,只有URAT1的基因相对表达量相对MC组显著下调(P<0.05)。在OAT1和ABCG2基因相对表达量中,与MC组相比,SHD组中OAT1和ABCG2基因相对表达量均显著上调(P<0.05)。SMD组中OAT1的基因相对表达量与SHD组无显著差异(P>0.05),ABCG2的基因相对表达量与MC组相比无显著差异(P>0.05),与NC组相比显著下调(P<0.05)。SLD组中OAT1和ABCG2基因相对表达量与MC组相比无显著差异(P>0.05)。

3 讨论

3.1 副干酪乳杆菌和解淀粉芽孢杆菌的分离

益生菌若要到达肠道并发挥其益生作用,必须能够耐受有机体的防御机制,如口腔中的酶、胃液中的低pH环境和小肠中的胆汁酸等。在这些因素中,胃酸对益生菌的威胁最大,其次是胆汁酸,因此在体外能够耐受一定浓度的酸和胆盐是益生菌筛选的主要技术指标[20]。本试验最终从鹅粪便中分离得到2株优势菌,经鉴定为副干酪乳杆菌和解淀粉芽孢杆菌。通过生长特性得知2株菌均从4 h开始进入生长对数期,结束时分别为16和12 h,结果表明2株菌用于后续试验培养时间至少在16和12 h以上。在pH=3.5时,副干酪乳杆菌WX2011-R和解淀粉芽孢杆菌WX2104-S的存活率分别为77.3%和52.2%,在1.2%胆盐浓度的环境中,2株菌的存活率分别为56.1%和66.3%,均超过半数。试验证明这2株菌均具有较好的耐酸耐胆盐能力,能够在肠道中定植发挥作用,这与熊涛等[21]、夏超笃等[22]的研究结果一致,符合益生菌的基本特征,值得进一步研究。

3.2 益生菌对雏鹅尿酸代谢的影响

尿酸是由嘌呤核苷在嘌呤核苷磷酸化酶、XOD等作用下产生的代谢产物,大多可通过肝脏尿素酶作用降解为尿囊素随尿液排出。一般来说,体内尿酸的产生和排泄基本处于动态平衡,但如果血液尿酸水平处于产生过多或排泄太少的状态时,都会导致高尿酸血症[23]。在本试验中发现,RMD组和SHD组的血清UA、UN、CRE含量和XOD活性显著低于MC组,表明副干酪乳杆菌WX2011-R和解淀粉芽孢杆菌WX2104-S可预防痛风的发生,其有效剂量分别是中剂量和高剂量。在先前报道中,一些乳酸菌具有嘌呤回收酶,如次黄嘌呤-鸟嘌呤磷酸核糖转移酶(HGPRT),它能将次黄嘌呤转化为次黄嘌呤核苷酸(IMP)[24]。这些能够利用嘌呤作为碳源的细菌在肠道中承担着调节尿酸平衡的重要作用。
进一步来看,摄入高嘌呤食物固然是痛风发展的重要原因之一,但肾脏对尿酸排泄功能的重要性是不能忽视的。所有的尿酸都通过肾小球过滤,90%的尿酸被尿酸转运体重新吸收回血液中。长期大量摄入嘌呤对肾脏功能的损坏会导致尿酸代谢平衡被永久性破坏。因此,与尿酸重吸收相关的尿酸转运体在导致生物体内尿酸排泄异常和影响尿酸水平方面起着决定性作用[25]。URAT1和GLUT9协调尿酸从尿液回到血液中的重吸收过程,在整个过程中起着重要的作用。特别是URAT1被认为是尿酸再吸收和尿排泄机制中最重要的因素[26]。在本试验中,副干酪乳杆菌和解淀粉芽孢杆菌显著下调了尿酸重吸收蛋白URAT1和GLUT9的基因相对表达量和蛋白表达量,这和Cao等[27]分离出的副干酪乳杆菌X11对小鼠尿酸调控的研究结果一致。这表明2株菌株均能降低肾脏中的尿酸重吸收。同时,副干酪乳杆菌和解淀粉芽孢杆菌均显著上调OAT1和ABCG2的基因相对表达量和蛋白量水平,Zou等[28]对植物乳杆菌干预尿酸代谢的研究结果与本研究结果相似,表明2株菌株均能促进肾脏尿酸的排泄。

4 结论

① 本试验成功分离到产酸的副干酪乳杆菌和产蛋白酶、淀粉酶的解淀粉芽孢杆菌。
② 灌服0.10 g/mL的副干酪乳杆菌和1.00 g/mL的解淀粉芽孢杆菌冻干粉对高蛋白质导致的雏鹅痛风有预防作用,这是通过抑制尿酸在肾脏的重吸收、促进尿酸的分泌来实现的。
[1]
GUO X, HUANG K, TANG J. Clinicopathology of gout in growing layers induced by high calcium and high protein diets[J]. British Poultry Science, 2005, 46(5):641-646.

PMID

[2]
JIN M L, WANG X Y, NING K, et al. Genetic characterization of a new astrovirus in goslings suffering from gout[J]. Archives of Virology, 2018, 163(10):2865-2869.

DOI PMID

[3]
PILLINGER M H, ROSENTHAL P, ABELES A M. Hyperuricemia and gout:new insights into pathogenesis and treatment[J]. Bulletin of the NYU Hospital for Joint Diseases, 2007, 65(3):215-221.

[4]
LIN B S, YAN J B, ZHONG Z L, et al. A study on the preparation of microbial and nonstarch polysaccharide enzyme synergistic fermented maize cob feed and its feeding efficiency in finishing pigs[J]. BioMed Research International, 2020,2020:8839148.

[5]
MINGMONGKOLCHAI S, PANBANGRED W. Bacillus probiotics:an alternative to antibiotics for livestock production[J]. Journal of Applied Microbiology, 2018, 124(6):1334-1346.

[6]
VILLENA J, KITAZAWA H. Editorial:immunobiotics-interactions of beneficial microbes with the immune system[J]. Frontiers in Immunology, 2017,8:1580.

[7]
SHIN D, CHANG S Y, BOGERE P, et al. Beneficial roles of probiotics on the modulation of gut microbiota and immune response in pigs[J]. PLoS One, 2019, 14(8):e0220843.

[8]
WANG B, WU Q, YU S Z, et al. Host-derived Bacillus spp.as probiotic additives for improved growth performance in broilers[J]. Poultry Science, 2023, 102(1):102240.

[9]
JEŻEWSKA-FRACKOWIAK J, SEROCZYŃSKA K, BANASZCZYK J, et al. The promises and risks of probiotic Bacillus species[J]. Acta Biochimica Polonica, 2018, 65(4):509-519.

[10]
REIS M P, FASSANI E J, JÚNIOR A A P G, et al. Effect of Bacillus subtilis (DSM 17299) on performance,digestibility,intestine morphology,and pH in broiler chickens[J]. Journal of Applied Poultry Research, 2017, 26(4):573-583.

[11]
JACQUIER V, NELSON A, JLALI M, et al. Bacillus subtilis 29784 induces a shift in broiler gut microbiome toward butyrate-producing bacteria and improves intestinal histomorphology and animal performance[J]. Poultry Science, 2019, 98(6):2548-2554.

[12]
JAYARAMAN S, THANGAVEL G, KURIAN H, et al. Bacillus subtilis PB6 improves intestinal health of broiler chickens challenged with Clostridium perfringens-induced necrotic enteritis[J]. Poultry Science, 2013, 92(2):370-374.

[13]
GOLDSTEIN E J C, TYRRELL K L, CITRON D M. Lactobacillus species:taxonomic complexity and controversial susceptibilities[J]. Clinical Infectious Diseases:an Official Publication of the Infectious Diseases Society of America, 2015,60 (Suppl.2):S98-107.

[14]
YI H B, WANG L, XIONG Y X, et al. Effects of Lactobacillus reuteri LR1 on the growth performance,intestinal morphology,and intestinal barrier function in weaned pigs[J]. Journal of Animal Science, 2018, 96(6):2342-2351.

[15]
YAMADA N, IWAMOTO C, KANO H, et al. Evaluation of purine utilization by Lactobacillus gasseri strains with potential to decrease the absorption of food-derived purines in the human intestine[J]. Nucleosides, Nucleotides & Nucleic Acids, 2016, 35(10/11/12):670-676.

[16]
YAMADA N, SAITO-IWAMOTO C, NAKAMURA M, et al. Lactobacillus gasseri PA-3 uses the purines IMP,inosine and hypoxanthine and reduces their absorption in rats[J]. Microorganisms, 2017, 5(1):10.

[17]
LI Y J, ZHU J, LIN G D, et al. Probiotic effects of Lacticaseibacillus rhamnosus 1155 and Limosilactobacillus fermentum 2644 on hyperuricemic rats[J]. Frontiers in Nutrition, 2022,9:993951.

[18]
KASAHARA K, KERBY R L, ZHANG Q J, et al. Gut bacterial metabolism contributes to host global purine homeostasis[J]. Cell Host & Microbe, 2023, 31(6):1038-1053.e8.

[19]
奚雨萌, 闫俊书, 应诗家, 等. 高蛋白质高钙饲粮对雏鹅内脏型痛风发生、肾脏功能及肠道微生物区系的影响[J]. 动物营养学报, 2019, 31(2):612-621.

XI Y M, YAN J S, YING S J, et al. Effects of high protein and calcium diets on visceral gout development,kidney function and intestinal microbial community of goslings[J]. Chinese Journal of Animal Nutrition, 2019, 31(2):612-621. (in Chinese)

[20]
BERTAZZONI MINELLI E, BENINI A, MARZOTTO M, et al. Assessment of novel probiotic Lactobacillus casei strains for the production of functional dairy foods[J]. International Dairy Journal, 2004, 14(8):723-736.

[21]
熊涛, 刘妍妍, 黄涛, 等. 副干酪乳杆菌NCU622耐酸耐胆盐及其黏附性能[J]. 食品科学, 2015, 36(5):93-98.

DOI

XIONG T, LIU Y Y, HUANG T, et al. Acid,bile tolerance and adhesion properties of Lactobacillus paracasei NCU622[J]. Food Science, 2015, 36(5):93-98. (in Chinese)

DOI

[22]
夏超笃, 湛穗璋, 艾琴, 等. 一株解淀粉芽孢杆菌的益生特性及抑菌性研究[J]. 中国畜牧兽医, 2020, 47(2):425-432.

DOI

XIA C D, ZHAN S Z, AI Q, et al. Study on the probiotic characteristics and antibacterial activity of a strain of Bacillus amyloliquefaciens[J]. China Animal Husbandry & Veterinary Medicine, 2020, 47(2):425-432. (in Chinese)

[23]
JOHNSON R J, KANG D H, FEIG D, et al. Is there a pathogenetic role for uric acid in hypertension and cardiovascular and renal disease?[J]. Hypertension, 2003, 41(6):1183-1190.

DOI PMID

[24]
BOLOTIN A, WINCKER P, MAUGER S, et al. The complete genome sequence of the lactic acid bacterium Lactococcus lactis ssp.lactis IL1403[J]. Genome Research, 2001, 11(5):731-753.

[25]
XU L Q, SHI Y F, ZHUANG S G, et al. Recent advances on uric acid transporters[J]. Oncotarget, 2017, 8(59):100852-100862.

[26]
VÁZQUEZ-MELLADO J, JIMÉNEZ-VACA A L, CUEVAS-COVARRUBIAS S, et al. Molecular analysis of the SLC22A12 (URAT1) gene in patients with primary gout[J]. Rheumatology (Oxford), 2007, 46(2):215-219.

[27]
CAO J Y, LIU Q Q, HAO H N, et al. Lactobacillus paracasei X11 ameliorates hyperuricemia and modulates gut microbiota in mice[J]. Frontiers in Immunology, 2022,13:940228.

[28]
ZOU Y, RO K S, JIANG C T, et al. The anti-hyperuricemic and gut microbiota regulatory effects of a novel purine assimilatory strain,Lactiplantibacillus plantarum X7022[J]. European Journal of Nutrition, 2024,63:697-711.

Outlines

/