RESEARCH PAPER

Immunological Mechanism of Oral Vitamin E against Nephropathogenic Infectious Bronchitis Virus Infection in Specific Pathogen Free Chickens

  • WANG Bing , 1, 2 ,
  • HOU Yutong 1, 2, * ,
  • ZHANG Lili 1, 2 ,
  • ZHANG Xiaona 1, 2 ,
  • HAN Zongxi 2 ,
  • LI Huixin 2 ,
  • MA Deying , 1, **
Expand
  • 1 College of Animal Science and Technology, Northeast Agricultural University, Harbin 150030, China
  • 2 State Key Laboratory for Animal Disease Control and Prevention, Harbin Veterinary Research Institute, Chinese Academy of Agricultural Sciences, Harbin 150001, China
** professor, E-mail:

* Contributed equally

Received date: 2024-03-29

  Online published: 2024-11-09

Abstract

This experiment was conducted to study the immunological mechanism of oral vitamin E (VE) against nephropathogenic infectious bronchitis virus (IBV) infection in specific pathogen free (SPF) chickens. Forty 1-day-old SPF white leghorn chickens were randomly divided into 2 groups with 20 birds per group. During 1 to 21 days of age, chickens in the experimental group were orally administered 100 IU/kg VE (dissolved in 10 μL soybean oil), and chickens in the control group were orally administered equivalent soybean oil without vitamin VE. Stop oral administration at 21 days of age, all the chicken were inoculated with 0.1 mL/bird nephropathogenic virulent IBV strain via combined intraocular and intranasal routes. The experiment lasted for 24 days. The results showed as follows: 1) oral VE had no significant effect on growth performance of SPF chickens (P>0.05). 2) After inoculated IBV, the SPF chickens in 2 groups demonstrated typical clinical symptoms, on 2 dpi (days post infection), the viral load in spleen and bursa of Fabricius of the experimental group was significantly lower than that of the control group (P<0.05). 3) Compared with the control group, the mRNA relative expression level of myeloid differentiation factor 88 (MyD88) in lungs, spleen and cecal tonsil (2 dpi) of the experimental group was significantly decreased (P<0.05), the mRNA relative expression level of MyD88 in lungs and spleen (5 dpi) was significantly increased (P<0.05), and the mRNA relative expression level of P65 protein (P65) in cecal tonsil (5 dpi) was significantly decreased (P<0.05). 4) Oral VE showed multiple regulation on mRNA relative expression levels of avian beta-defensins genes in tissues of SPF chicken infected with IBV, and little regularity was found. 5) Compared with the control group, the mRNA relative expression level of CD8 positive cells (CD8+) in spleen (2 dpi) and cecal tonsil (5 dpi) of the experimental group was significantly decreased (P<0.05). In summary, oral VE has no significant effect on the growth performance of SPF chickens. In contrast, oral VE can inhibit the IBV replication in some tissue, regulate the gene expression of immune-related factor in tissues, and plays a positive role in the infection effect of chickens against IBV.

Cite this article

WANG Bing , HOU Yutong , ZHANG Lili , ZHANG Xiaona , HAN Zongxi , LI Huixin , MA Deying . Immunological Mechanism of Oral Vitamin E against Nephropathogenic Infectious Bronchitis Virus Infection in Specific Pathogen Free Chickens[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 7467 -7480 . DOI: 10.12418/CJAN2024.635

多年来,病毒感染是全球养禽业面临的最主要威胁之一。许多病毒感染不仅会导致鸡呼吸道、胃肠道、神经和生殖系统等多种组织和器官受损,且由病毒引发的传染性疾病可通过唾液和粪便在鸡群之间传播,导致鸡群继发感染死亡[1]。由于药物治疗的成本过高,生产实践中更倾向于早期预防[2]。天然免疫系统在机体抗病毒感染中发挥着重要作用。病原入侵机体后被宿主细胞通过模式识别受体(PRRs)激活转录因子,进而诱导先天免疫分子大量表达,抵御外来病原体入侵。近年来发现,饲粮中添加饲料添加剂可以提高动物的先天免疫力。其中,维生素对维持免疫系统正常的关键作用已得到广泛研究和深入了解。维生素缺乏不仅引起动物的生长速度下降[3],还会引起免疫系统功能失调。其中,维生素E(VE)作为对免疫系统功能影响最大的维生素之一,是一种天然的、机体无法合成的脂溶性维生素,因其色醇环上甲基位置和数量的异构分为生育酚(α、β、γ、δ-生育酚)和生育三烯醇(α、β、γ、δ-生育三烯醇),养殖业中常用生物活性最高的α-生育酚[4-5]。VE可通过给脂质过氧自由基(LOO·)提供氢离子(H-)防止细胞膜发生脂质过氧化[6-7],保护细胞膜的稳定性和正常的生理功能。此外,VE的抗炎活性也得到了广泛认可。许多动物研究表明VE对免疫系统具有有益作用[8],通过减少过氧亚硝酸盐的合成抑制环氧化酶-2(COX-2)活性,进而减少花生四烯酸转化为前列腺素E2(PGE2),间接保护自然杀伤(natural killer,NK)细胞的溶解效率及对靶细胞的杀伤能力[9-10],保障NK细胞正常产生干扰素-λ(interferon-λ,IFN-λ)[11]。VE也可预防和缓解慢性疾病如动脉粥样硬化[12]和癌症[13]等退行性疾病,此外还可参与呼吸道感染、哮喘、流感[14]等疾病的机体免疫调节。
传染性支气管炎(infectious bronchitis,IB)是一种由禽传染性支气管炎病毒(infectious bronchitis virus,IBV)感染引发的一种急性、高致死率的病毒性传染病。感染影响因素包括毒株类型、病毒毒力、毒株致病性、鸡的免疫状态和日龄等[15]。IBV具有泛嗜性,不同分型毒株可以在气管、肾脏、生殖器官等组织细胞中复制增殖。目前集约化养禽管理中IB难以控制,主要是因为IBV存在众多血清型且少有交叉保护作用[16],且野毒株和疫苗毒株发生病毒重组形成新毒株导致疫苗免疫失败[17],对养殖业造成了很大的威胁。因此,科学的养殖管理是IB的防控根本。营养作为保障家禽健康与生长、维持免疫功能正常的物质基础,通过营养性措施改善家禽健康和免疫功能至关重要。由于VE在机体免疫系统中发挥关键作用,本试验旨在研究口服VE对无特定病原体(SPF)鸡抗肾型IBV感染作用的免疫学机制,探讨通过补充VE等营养调控措施改善鸡群的健康状况及增强其抗病毒作用的可行性。

1 材料与方法

1.1 试验材料与饲粮

40只1日龄SPF白来航雏鸡购于中国农业科学院哈尔滨兽医研究所动物试验中心。肾型鸡源IBV强毒株106.5鸡胚半数感染量(egg infectious dose 50%,EID50)ck/CH/LDL/091022(GenBank登录号:HM194671)保存于中国农业科学院哈尔滨兽医研究所禽呼吸道团队。基础饲粮为SPF鸡全价配合饲料,购于中国农业科学院哈尔滨兽医研究所动物试验中心,基础饲粮组成及营养水平见表1。动物护理及试验程序通过黑龙江省动物伦理和动物福利委员会批准(批准文号:201125-02)。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料
Ingredients
含量
Content
营养水平
Nutrient levels3)
含量
Content
脱皮豆粕Peeled soybean meal 21.00 代谢能ME/(MJ/kg) 11.92
膨化大豆Expanded soybean 5.00 粗蛋白质CP 16.73
玉米Corn 59.20 粗脂肪EE 4.15
玉米蛋白粉Corn gluten meal 6.00 蛋氨酸Met 0.46
次粉Wheat middlings 5.00 蛋氨酸+胱氨酸Met+Cys 0.80
石粉Limestone 1.50 赖氨酸Lys 0.80
磷酸氢钙CaHPO4 1.20 色氨酸Trp 0.22
食盐NaCl 0.30 苏氨酸Thr 0.75
黏合剂Adhesive 0.30 钙Ca 1.25
赖氨酸Lys 0.15 总磷TP 0.62
蛋氨酸Met 0.10 有效磷AP 0.45
胆碱Choline 0.10 氯化钠NaCl 0.30
维生素预混料Vitamin premix1) 0.05 水分Moisture 7.85
矿物元素预混料Mineral premix2) 0.10 粗灰分Ash 6.30
合计Total 100.00 粗纤维CF 4.06

1)维生素预混料为每千克饲粮提供 The vitamin premix provided the following per kg of the diet: VA 8 000 IU,VE 10 IU,VD3 2 200 IU,VK3 1.6 mg,VB1 1.6 mg,VB2 4.4 mg,VB6 1.6 mg,VB12 0.088 mg,生物素 biotin 0.055 mg,烟酰胺 nicotinamide 27.5 mg,D-泛酸钙 D-calcium pantothenate 6.6 mg,叶酸 folic acid 0.055 mg。

2)矿物元素预混料为每千克饲粮提供 The mineral premix provided the following per kg of the diet: Fe (as ferrous sulfate) 44 mg,Cu (as copper sulfate pentahydrate) 4.4 mg,Mn (as manganese sulfate) 68 mg,I (as potassium iodide) 0.9 mg,Zn (as zinc sulfate) 66 mg,Se (as sodium selenite) 0.3 mg。

3)粗蛋白质、粗脂肪、钙、总磷、氯化钠、水分、粗灰分和粗纤维为实测值,其他为计算值。CP, EE, Ca, TP, NaCl, moisture, Ash and CF were measured values, while others were calculated values.

1.2 试验试剂

RNAiso Plus、One Step SYBR® PrimeScriptTM RT-PCR Kit Ⅱ试剂盒、PrimeScriptTM One-Step RT-PCR试剂盒、250 Marker购自TaKaRa公司;凝胶回收试剂盒购自Omega公司;酶联免疫吸附测定(ELISA)试剂盒购自BioChek公司;其余化学试剂D-α-生育酚醋酸酯(纯度96%,购自阿拉丁公司)、三氯甲烷、冰乙酸、异丙醇等均为分析纯。

1.3 试验设计

将40只1日龄SPF鸡随机分成2组(试验组和对照组),每组20个重复,每个重复1只。根据《中华人民共和国兽药典(2015年版)第3部》[18]规定,进行鸡IBV相关的动物感染试验及疫苗开发工作时,实施办法为单次试验设定10只鸡。由于样品采集等因素,本试验设置试验组和对照组各20只鸡进行动物感染试验。
试验分为2个阶段。第1阶段为饲养阶段,试验期为21 d。所有鸡只每天自由采食基础饲粮。根据本团队前期的预试验结果,1~21日龄,试验组SPF鸡在饲喂基础饲粮的基础上额外灌喂100 IU/kg VE(溶解于10 μL的豆油),VE水平参照Aviagen公司2021年修订的罗斯308鸡的营养建议;对照组灌服等量不添加VE的豆油。21日龄后停止灌喂。第2阶段为人工感染病毒阶段,试验期为24 d。于21日龄,试验组和对照组所有鸡以滴鼻点眼的方式接种0.1 mL/只的106.5 ck/CH/LDL/091022种毒。2组各标记10只鸡观察临床症状。每天进行2次临床症状观察及发病打分。

1.4 测定指标及方法

1.4.1 饲粮营养成分

粗蛋白质含量参照GB/T 6432—2018测定,粗脂肪含量参照GB/T 6433—2006测定,钙含量参照GB/T 6433—2006测定,总磷含量参照GB/T 6433—2006测定,氯化钠含量参照ISO 6495—1:2015测定,水分含量参照GB/T 6435—2014测定,粗灰分含量参照GB/T 6438—2007测定,粗纤维含量参照GB/T 6434—2006测定。其他营养成分参考《中国饲料成分及营养价值表(2022年第33版)》计算得出。

1.4.2 生长性能

在试验的第1天和第21天晨饲前进行空腹称重,记录每天的投料量和余料量,计算平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。

1.4.3 病毒感染试验

在攻毒后2和5 dpi(感染后天数,days post infection)时,每组随机选中5只鸡进行心脏采血处死,采集其肾脏、肺脏、气管、盲肠扁桃体、脾脏和法氏囊,做好分组标记以便后续进行RNA的提取。

1.4.4 临床症状及剖检症状

人工感染IBV后,持续观察临床症状24 d,对处死SPF鸡进行剖检,观察病变。

1.4.5 组织总RNA提取

将采集的组织样品各称取0.1 g于2 mL无菌EP管中,采用Trizol法[19]提取各组织样品总RNA,用100 μL焦碳酸二乙酯(diethyl pyrocarbonate,DEPC)处理水吹吸混匀,-70 ℃保存。

1.4.6 实时荧光定量PCR(RT-qPCR)引物设计

设计特异性引物的内参基因为GenBank中已有的鸡18S rRNA基因序列(登录号:MG967540),IBV、髓样分化因子88(myeloid differentiation factor 88,MyD88)、P65蛋白(P65)、禽β-防御素(avian β-defensins,AvBDs)、CD4阳性细胞(CD4+)、CD8阳性细胞(CD8+)等部分引物序列参考刘亮亮[20],引物信息见表2
表2 引物信息

Table 2 Primer information

基因
Genes
GenBank登录号
GenBank accession No.
正义引物
Sense primer
反义引物
Antisense primer
产物长度
Product size/bp
禽传染性支气管炎病毒
IBV
HM194671 5'-CTATCGCCAGGGA
AATGTC-3'
5'-GCGTCCTAGTGCT
GTACCC-3'
174
18S核糖体RNA
18S rRNA
MG967540 5'-TCAGATACCGTCG
TAGTTCC-3'
5'-TTCCGTCAATTCCT
TTAAGTT-3'
154
禽β-防御素1
AvBD1
NM_204993 5'-GATCCTCCCAGGC
TCTAGGAAG-3'
5'-GCCCCATATTCTTT
TGC-3'
137
禽β-防御素2
AvBD2
NM_204992 5'-GGTTGTCTTCGC
CCCGGCGGGA-3'
5'-TTATGCATTCCA
AGGCCATTTG-3'
137
禽β-防御素3
AvBD3
NM_ 204650 5'-GAACTGCCACTC
AGTGCAGAAT-3'
5'-ATGGGGGTTGTT
TCCAGGAGC-3'
137
禽β-防御素4
AvBD4
NM_001001610 5'-TCATCGTGCTCC
TCTTTGTG-3'
5'-AATACTTGGGAC
GGCATAGC-3'
137
禽β-防御素5
AvBD5
NM_001001608 5'-GCTGTCCCTTGC
TCGAGGATT-3'
5'-GGAATACCATCG
GCTCCGGC-3'
182
禽β-防御素6
AvBD6
NM_001001193 5'-CTGCTGCTGTCT
GTCCTC-3'
5'-ACTGCCACATGA
TCCAACC-3'
153
禽β-防御素7
AvBD7
NM_001001194 5'-TACCTGCTGCTG
TCTGTC-3'
5'-GCAAGAGCCTAT
TCCATTGT-3'
139
禽β-防御素8
AvBD8
NM_001001781 5'-CGTTCTCCTCAC
TGTGCT-3'
5'-TATCCCTCCTGC
CTGCTC-3'
143
禽β-防御素9
AvBD9
NM_001001611 5'-CTGTTCTCTTCT
TCCTCT-3'
5'-CAGCTTCCCACC
ACGGCA-3'
145
禽β-防御素10
AvBD10
NM_001001609 5'-GGCTCAGCAGAC
CCACTTTTCC-3'
5'-CTGCGCCGGAAT
CTTGGCAC-3'
146
禽β-防御素11
AvBD11
NM_001001779 5'-GGTCTCGGCTTG
CCCAGAGAC-3'
5'-ATGGAAGTCTGA
TGTAGTGTC-3'
150
禽β-防御素12
AvBD12
NM_001001607 5'-TTCGTGTTCATC
TTCATC-3'
5'-GTACTTAGCCAG
GTATTC-3'
155
禽β-防御素13
AvBD13
NM_001001780 5'-GATCCTCCAGCT
GCTCTTTG-3'
5'-AGTGGCCATGGT
TGTTCCT-3'
104
禽β-防御素14
AvBD14
NM_001348511 5'-CATATTCCTCCT
GTTTCT-3'
5'-GCCAGTCCATTG
TAGCAG-3'
120
CD4阳性细胞
CD4+
NM_204649.2 5'-GGAGGAAGCTCAT
GTTTGGA-3'
5'-CTGCCACCTCATAC
CAGTGA-3'
112
CD8阳性细胞
CD8+
NM_205235.1 5'-AGCTCAGAGCCAG
GAACAAG-3'
5'-GTCTTTTGGCAGAG
CACGAT-3'
134
髓样分化因子88
MyD88
NM_001030962 5'-TTACGAAGGAAGC
AGCAG-3'
5'-TGACAGTAGCAGA
TGAAGG-3'
155
P65蛋白
P65
NM_001396038 5'-ATTTGGGCATTCA
GTGTGTG-3'
5'-CGCTCAGGTCGT
ATTCGG-3'
123

1.4.7 标准品的制备及RT-qPCR

根据Woods等[21]的方法进行标准品的制备,按照10倍梯度稀释到8个梯度,分别绘制标准曲线和标准动力学曲线。以上述提取的各组织的总RNA为模板,根据表2中特异性引物(浓度为2.5 μmol/L)进行RT-qPCR,检测病毒载量及各免疫相关基因mRNA相对表达量。每个样品设置3个重复,取平均值。RT-qPCR反应体系共25 μL:One Step SYBR RT-PCR Buffer 12.5 μL,上、下游引物(5 μmol/L)各1 μL,RNase Free dH2O 7.5 μL,PrimeScript 1 Step Enzyme Mix 2 1 μL,RNA 2 μL。RT-qPCR反应程序:42 ℃反转录5 min;95 ℃预变性10 s;95 ℃变性5 s,60 ℃退火30 s,进行40个循环;40 ℃延伸30 s。

1.5 数据处理

试验数据用平均值±标准误表示。通过SPSS 19.0软件对试验数据进行方差分析,应用t检验方法分析显著性,P<0.05表示存在显著差异。

2 结果与分析

2.1 口服VE对SPF鸡生长性能的影响

表3可知,试验组的ADG、ADFI和F/G均高于对照组,但不存在显著差异(P>0.05),说明口服VE对SPF鸡生长性能无显著影响。
表3 口服VE对SPF鸡生长性能的影响

Table 3 Effects of oral VE on growth performance of SPF chickens

项目
Items
试验组
Experimental group
对照组
Control group
P
P-value
平均日增重ADG/(g/d) 9.741±1.824 9.362±2.739 0.839
平均日采食量ADFI/(g/d) 16.874±3.562 16.495±3.413 0.532
料重比F/G 1.812±0.928 1.781±0.496 0.694

2.2 口服VE对IBV感染后SPF鸡临床症状及剖检症状的影响

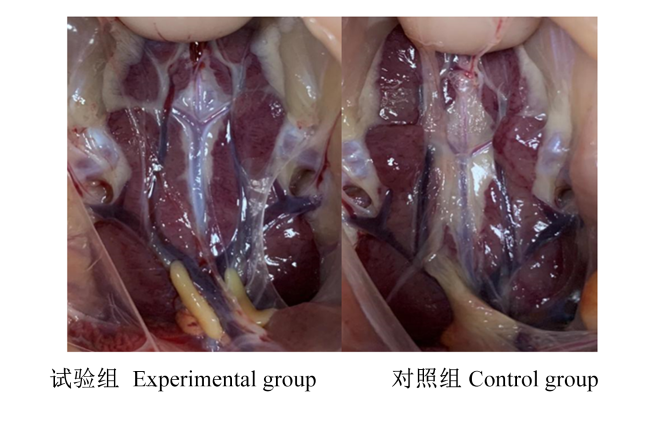
图1可知,剖检发现除肾脏轻微苍白肿大外,2组之间无明显差异。2组中全部鸡在3 dpi时均出现精神低靡、甩头和闭眼等典型IB临床症状,部分鸡在6 dpi时症状减轻,试验组全部鸡在11 dpi时症状消失,恢复正常,发病率为40%;对照组在10 dpi时症状消失,发病率为45%,2组鸡死亡率均为0。以上结果说明,口服VE对IBV感染后SPF鸡临床症状及剖检症状无显著影响。
图1 SPF鸡感染肾型IBV后肾脏剖检图

Fig.1 Dissection diagram of kidney in SPF chickens after nephropathogenic IBV infection

2.3 口服VE对IBV感染后SPF鸡各组织病毒载量的影响

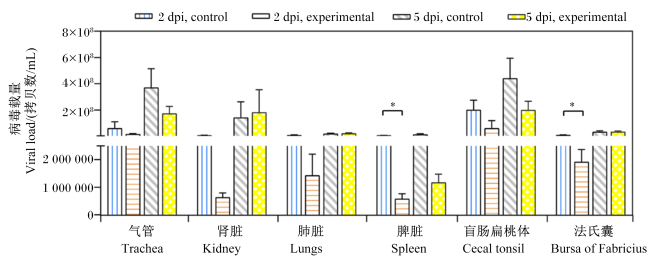
图2可知,气管、肾脏、肺脏、脾脏、盲肠扁桃体和法氏囊中均能检测到病毒,且病毒载量均随着感染时间增加而升高,气管、肾脏和盲肠扁桃体中病毒载量升高明显,说明IBV感染动物试验成功。在2 dpi时,试验组的各组织中病毒载量均低于对照组,其中,脾脏和法氏囊中病毒载量显著低于对照组(P<0.05);在5 dpi时,试验组的气管、肺脏、脾脏、盲肠扁桃体和法氏囊中病毒载量均呈下调趋势,只有肾脏中病毒载量较对照组有所升高,但是2组之间差异均不显著(P>0.05)。以上结果表明,口服VE能抑制IBV感染后SPF鸡脾脏和法氏囊中病毒的复制。
图2 口服VE对IBV感染后SPF鸡组织中病毒载量的影响

control:对照组;experimental:试验组。*表示差异显著(P<0.05)。下图同。

Fig.2 Effects of oral VE on tissue viral load in SPF chickens after IBV infection (n=5)

control: control group; experimental: experimental group. * indicated significant difference (P<0.05). The same as below.

2.4 口服VE对IBV感染后SPF鸡各组织中信号转导因子基因表达的影响

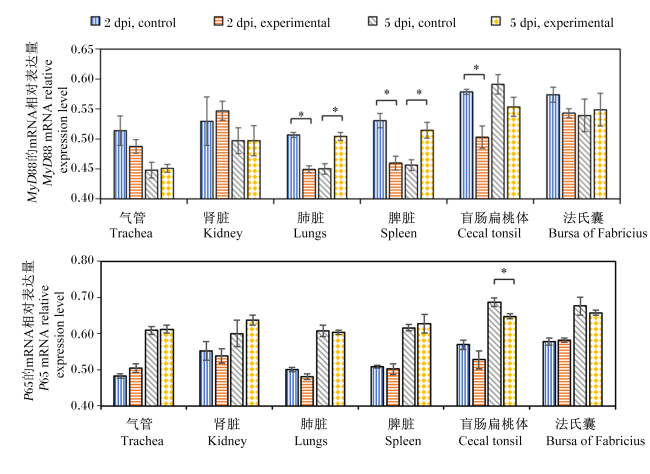
图3可知,MyD88和P65 2种信号转导因子在各个组织中均有表达。病毒感染后,气管、肾脏、肺脏、脾脏和法氏囊中MyD88的mRNA相对表达量均随着感染时间的增加而降低,盲肠扁桃体中MyD88的mRNA相对表达量则有升高趋势。在2 dpi时,与对照组相比,口服VE降低除肾脏外其他5个组织中MyD88的mRNA相对表达量,其中,试验组的肺脏、脾脏和盲肠扁桃体中MyD88的mRNA相对表达量显著降低(P<0.05);在5 dpi时,与对照组相比,试验组的肺脏和脾脏中MyD88的mRNA相对表达量显著提高(P<0.05)。病毒感染后,气管、肾脏、肺脏、脾脏、盲肠扁桃体和法氏囊中P65的mRNA相对表达量均随着感染时间的增加呈上升趋势。在5 dpi时,口服VE后抑制了肺脏、盲肠扁桃体和法氏囊中P65的mRNA相对表达量的上升趋势,其中,与对照组相比,试验组的盲肠扁桃体中P65的mRNA相对表达量显著降低(P<0.05)。
图3 口服VE对IBV感染后SPF鸡组织中MyD88、P65基因表达的影响

Fig.3 Effects of oral VE on tissue MyD88 and P65 gene expression in SPF chickens after IBV infection (n=5)

2.5 口服VE对IBV感染后SPF鸡组织中AvBDs基因表达的影响

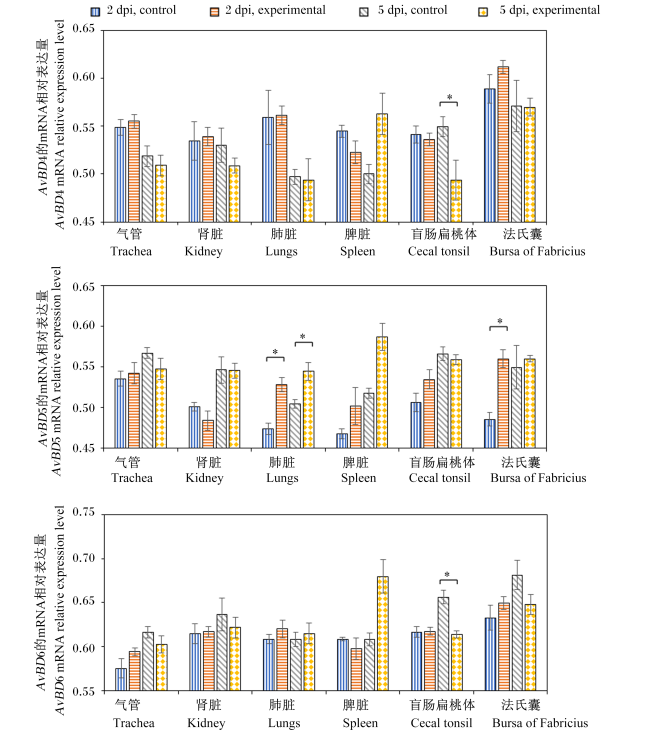
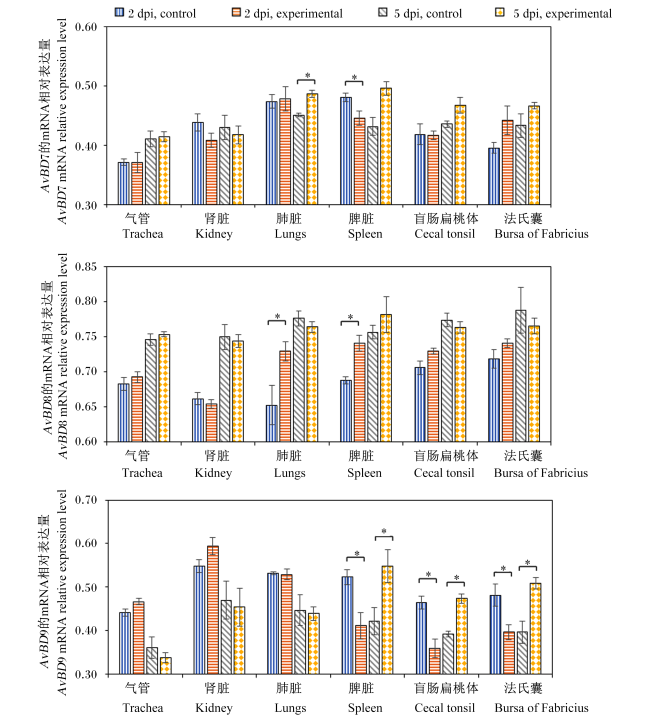
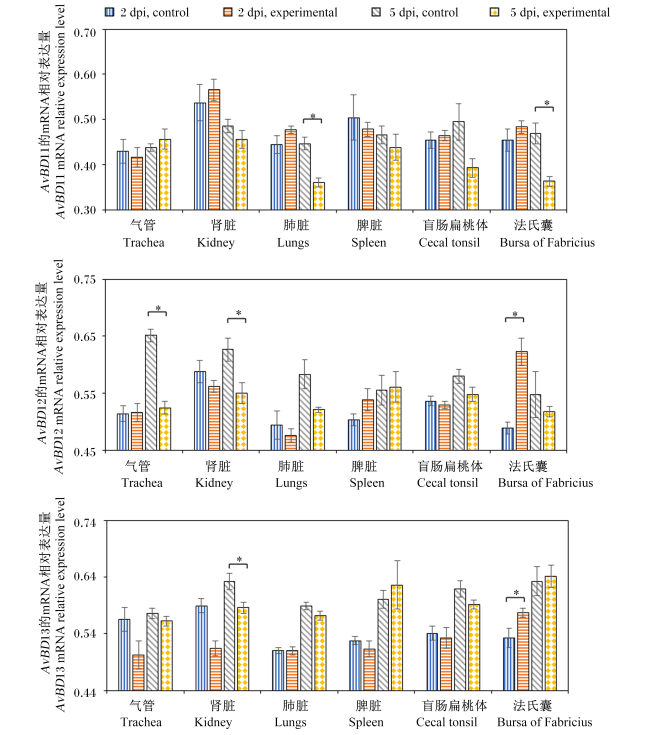
AvBD1在气管、肾脏、肺脏、脾脏、盲肠扁桃体和法氏囊中均未检测到表达外,AvBD2~AvBD14在各组织中均有表达。与对照组相比,试验组的气管、肾脏、肺脏、脾脏、盲肠扁桃体和法氏囊中AvBD2、AvBD3、AvBD10和AvBD14的mRNA相对表达量无显著差异(P>0.05),因此未在图中展示。由图4图5图6可知,与对照组相比,口服VE显著上调了感染IBV后鸡肺脏中AvBD5(2、5 dpi)、AvBD7(5 dpi)、AvBD8(2 dpi),脾脏中AvBD8(2 dpi)、AvBD9(5 dpi),盲肠扁桃体中AvBD9(5 dpi),法氏囊中AvBD5(2 dpi)、AvBD9(5 dpi)、AvBD12(2 dpi)和AvBD13(2 dpi)的mRNA相对表达量(P<0.05);显著下调了感染IBV后鸡气管中AvBD12(5 dpi),肾脏中AvBD12(5 dpi)、AvBD13(5 dpi),肺脏中AvBD11(5 dpi),脾脏中AvBD7(2 dpi)、AvBD9(2 dpi),盲肠扁桃体中AvBD4(5 dpi)、AvBD6(5 dpi)、AvBD9(2 dpi),法氏囊中AvBD9(2 dpi)和AvBD11(5 dpi)的mRNA相对表达量(P<0.05)。补充VE后AvBD9的mRNA相对表达量在脾脏、盲肠扁桃体和法氏囊中呈相同的变化趋势,均是在2 dpi时试验组显著低于对照组(P<0.05);随着感染时间的增加到5 dpi时,AvBD9的mRNA相对表达量变为试验组显著高于对照组(P<0.05)。
图4 口服VE对IBV感染后SPF鸡组织中AvBD4、5和6基因表达的影响

Fig.4 Effects of oral VE on tissue AvBD4, 5 and 6 gene expression in SPF chickens after IBV infection (n=5)

图5 口服VE对IBV感染后SPF鸡组织中AvBD7、8和9基因表达的影响

Fig.5 Effects of oral VE on tissue AvBD7, 8 and 9 gene expression in SPF chickens after IBV infection (n=5)

图6 口服VE对IBV感染后SPF鸡组织中AvBD11、12和13基因表达的影响

Fig.6 Effects of oral VE on tissue AvBD11, 12 and 13 gene expression in SPF chickens after IBV infection (n=5)

2.6 口服VE对IBV感染后SPF鸡组织中适应性免疫分子CD4+CD8+基因表达的影响

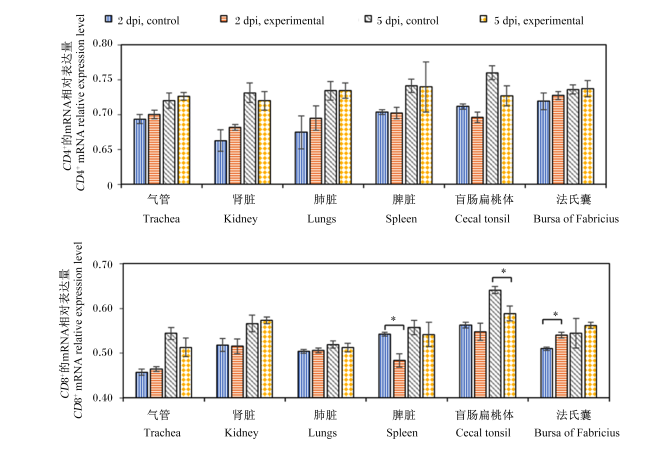
图7可知,随着感染时间的增加,气管、肾脏、肺脏、脾脏、盲肠扁桃体和法氏囊中CD4+CD8+的mRNA相对表达量均上升。与对照组相比,口服VE对气管、肺脏和法氏囊中CD4+的mRNA相对表达量有上调趋势,但抑制盲肠扁桃体和5 dpi时肾脏中CD4+的mRNA相对表达量;对2 dpi时脾脏及5 dpi时盲肠扁桃体中CD8+的mRNA相对表达量存在显著抑制作用(P<0.05),而对2 dpi时法氏囊中CD8+的mRNA相对表达量存在显著上调作用(P<0.05),同时对5 dpi时肾脏和法氏囊中CD8+的mRNA相对表达量有上调趋势。
图7 口服VE对IBV感染后SPF鸡组织中CD4+CD8+基因表达的影响

Fig.7 Effects of oral VE on tissue CD4+ and CD8+ gene expression in SPF chickens after IBV infection (n=5)

3 讨论

3.1 口服VE对SPF鸡生长性能的影响

维生素缺乏会使生长受阻。本试验中,口服VE对1~21日龄SPF鸡的生长性能无显著影响,表明基础饲粮中按照NRC(1994)[22]规定的家禽最低营养需求,10 IU/kg VE足以满足SPF鸡在无病条件下的正常生长。而刘敏燕等[23]试验结果表明,额外补饲不同水平的VE(50、100、150 mg/kg)显著提高了广西三黄鸡的ADG和ADFI;张亚茹等[24]通过在陈玉米饲粮中添加120 mg/kg VE,显著提高了肉鸭ADG和ADFI。这可能与试验动物品种和饲养环境等不同及VE的添加水平不同有关。蒋守群等[25]通过在饲粮中添加不同水平的VE,发现添加20和40 mg/kg的VE可以较好地改善肉鸡的生长性能,此基础上增加VE添加水平效果出现回落,表明过高的VE添加水平对肉鸡的生长性能影响并不显著。

3.2 口服VE对IBV感染后SPF鸡组织中病毒载量的影响

病毒入侵机体后炎症爆发导致活性氧大量产生,使细胞膜上发生脂质过氧化,导致小细管、小动脉和毛细血管的细胞膜受到严重损害[26]。研究发现,补充VE可以降低感染流感病毒小鼠肺部[27]和感染新城疫病毒鸡肠道内[28]的病毒滴度,推测VE的疏水端聚集在脂膜中与LOO迅速反应,中和掉大量的活性氧,保护了组织细胞膜完整及正常的生理功能,降低病毒对淋巴器官的损伤。也有试验结果显示,鸡感染肾型IBV后肾脏中的病毒滴度相对较高[29]。而本试验结果显示,对照组肾脏中的病毒滴度在检测的2个时间点均低于盲肠扁桃体和气管,推测可能是肾型IBV感染初期最先引起呼吸道症状[30],且肾型IBV引起的慢性非活动性肾炎显示IBV在肾脏中复制后随即被清除[31],同时极易感染盲肠扁桃体等组织的消化上皮细胞,并持续性存在于盲肠扁桃体中[32]

3.3 口服VE对IBV感染后SPF鸡各组织中信号转导因子基因表达的影响

外来病原体侵入机体后,宿主通过Toll样受体(TLR)等模式识别受体识别病原体相关分子模式(PAMPs),启动信号传导。主要的途径包括依赖性MyD88信号通路和非依赖性MyD88信号通路[33],与很多疾病有关并且在炎症反应中占有非常重要的地位。研究发现,IBV强毒株可以诱导MyD88和P65在组织内高水平表达,参与强烈的天然免疫抗病毒过程,加重炎症反应[34];而LPS诱导小鼠急性肝损伤试验中,敲除TLR4基因导致MyD88活化显著降低,从而降低了TLR4/MyD88/核因子-κB(NF-κB)信号通路的激活,抑制了炎症反应[35]。这说明MyD88作为转导通路中重要的接头蛋白分子,可以控制抗炎免疫调节。本试验中,口服VE显著降低了鸡肺脏、脾脏和盲肠扁桃体中MyD88(2 dpi)的mRNA相对表达量,说明VE可以抑制感染早期MyD88表达,减少转导通路激活,从而抑制IBV引发的炎症反应,但对于感染后期抗炎效果不大。这与李茜[36]在试验中得出的结论一致:VE可以抑制结肠癌小鼠中MyD88的mRNA相对表达量,调节机体免疫功能。P65作为转导途径的下游效应蛋白,激活后进入细胞核,促进巨噬细胞释放促炎性细胞因子,诱发过量的炎症反应,损害机体健康[37]。Khanduja等[38]通过在小鼠饲粮中添加VE,发现VE可以抑制NF-κB的活化,进而抑制巨噬细胞分泌促炎细胞因子,从而发挥抗炎作用。本试验中,试验组口服VE后盲肠扁桃体中P65(5 dpi)的mRNA相对表达量显著低于对照组,也充分验证了这一观点。综上所述,VE在先天免疫过程中主要通过病毒感染早期的抗炎作用促进SPF鸡的健康生长。

3.4 口服VE对IBV感染后SPF鸡组织中AvBDs基因表达的影响

AvBDs具有广谱抗病毒、抗菌活性及独特的抗病机制,并且具有免疫促进作用,可以诱发炎症反应引发机体适应性免疫。谢晶晶等[39]研究发现,鸡在感染IBV强毒后诱导产生了多种AvBDs,但检测发现肾脏中AvBD9~13(36 dpi)的mRNA相对表达量显著降低,表明AvBDs在病毒感染先天性免疫反应中呈差异性调控。本试验发现,口服VE后降低了感染IBV鸡部分组织中AvBD4、6、7、9、11、12和13的mRNA相对表达量。Kaiser等[40]研究发现,口服VE可有效控制脂多糖诱导的鸡脾脏中促炎细胞因子的基因表达,从而降低了AvBDs的基因表达。结合本试验结果,说明口服VE可以通过抑制部分AvBDs的基因表达,有效防止过度炎症反应的发生。口服VE后也提高了IBV感染2 dpi时鸡部分组织中AvBD5、8、12、13和5 dpi时AvBD5、7、9的mRNA相对表达量。Ma等[41]研究发现,感染鸭肝炎病毒后,鸭肝脏中的AvBD4和7的mRNA相对表达量显著上调;Xu等[42]研究发现,在鸡感染IBV强毒株后,组织中AvBDs的mRNA相对表达量显著上调,表明AvBDs在抗病毒感染的防御中发挥着重要作用。同时发现在感染后不同时间点检测到VE对AvBDs基因表达的影响存在差异,尤其是AvBD9,在多组织中呈先抑制后促进的趋势,说明VE对AvBDs基因表达存在时间差异性。这些差异性表达可能是不同AvBDs通过不同信号通路释放进而对免疫反应进行调控,揭示VE可以通过影响多种信号通路调节AvBDs基因表达,同时发挥抗炎和促炎作用,保护免疫稳态。

3.5 口服VE对IBV感染后SPF鸡组织中适应性免疫分子基因表达的影响

T淋巴细胞是细胞免疫的枢纽,CD4+作为辅助性T淋巴细胞能够促进B淋巴细胞产生抗体,完成体液免疫[43];CD8+对靶细胞具有较强的杀伤作用,可以进行免疫监控、修复受损细胞,为低龄动物提供免疫保护[44]。本试验发现,口服VE提高了法氏囊中CD4+CD8+的mRNA相对表达量,说明VE可以激活T淋巴细胞,通过诱导T淋巴细胞分泌炎性因子,提高机体的免疫能力。研究表明,IBV感染后会引起机体产生大量的CD4+和CD 8 + [45]。本试验结果显示,口服VE后降低了脾脏和盲肠扁桃体中CD8+的mRNA相对表达量,说明VE可以通过抑制CD8+T淋巴细胞细胞的产生,避免过度炎症反应造成机体和组织损伤。综上所述,VE可以促进适应性免疫因子参与细胞免疫抵抗病毒入侵,但功能机制还需进一步研究。

4 结论

口服VE对SPF鸡生长性能无影响,可通过降低脾脏和法氏囊中的病毒载量、调节免疫相关因子在组织中表达的方式增强IBV毒株感染后SPF鸡的天然免疫功能,缓解IBV病毒诱导的鸡炎症反应。
[1]
SUAREZ D L, MILLER P J, KOCH G, et al. Newcastle disease,other avian paramyxoviruses,and avian metapneumovirus infections[M]//SWAYNE D E,BOULIANNE M,LOGUE C M,et al. Diseases of poultry. 14th ed. Hoboken: John Wiley & Sons,Inc.2020:109-166.

[2]
RHEINBERGER C M, HERRERA-ARAUJO D, HAMMITT J K. The value of disease prevention vs treatment[J]. Journal of Health Economics, 2016,50:247-255.

[3]
KOUTSOS E A, GARCÍA LÓPEZ J C, KLASING K C. Carotenoids from in ovo or dietary sources blunt systemic indices of the inflammatory response in growing chicks (Gallus gallus domesticus)[J]. The Journal of Nutrition, 2006, 136(4):1027-1031.

[4]
DALIA A M, LOH T C, SAZILI A Q, et al. Effects of vitamin E,inorganic selenium,bacterial organic selenium,and their combinations on immunity response in broiler chickens[J]. BMC Veterinary Research, 2018, 14(1):249.

[5]
VIOLI F, NOCELLA C, LOFFREDO L, et al. Interventional study with vitamin E in cardiovascular disease and Meta-analysis[J]. Free Radical Biology & Medicine, 2022,178:26-41.

[6]
ZINGG J M. Vitamin E:regulatory role on signal transduction[J]. IUBMB Life, 2019, 71(4):456-478.

[7]
YAMAUCHI R, KATO K, UENO Y. Formation of trimers of α-tocopherol and its model compound,2,2,5,7,8-pentamethylchroman-6-ol,in autoxidizing methyl linoleate[J]. Lipids, 1988, 23(8):779-783.

[8]
MEYDANI S N, MEYDANI M, BLUMBERG J B, et al. Vitamin E supplementation and in vivo immune response in healthy elderly subjects.A randomized controlled trial[J]. JAMA, 1997, 277(17):1380-1386.

[9]
LINNEMEYER P A, POLLACK S B. Prostaglandin E2-induced changes in the phenotype,morphology,and lytic activity of IL-2-activated natural killer cells[J]. Journal of Immunology, 1993, 150(9):3747-3754.

[10]
HOLT D, MA X R, KUNDU N, et al. Prostaglandin E(2) (PGE (2)) suppresses natural killer cell function primarily through the PGE(2) receptor EP4[J]. Cancer Immunology, Immunotherapy:CII, 2011, 60(11):1577-1586.

[11]
KNUDSEN N H, MANGUSO R T. Tumor-derived PGE2 gives NK cells a headache[J]. Immunity, 2020, 53(6):1131-1132.

DOI PMID

[12]
WALLERT M, BÖRMEL L, LORKOWSKI S. Inflammatory diseases and vitamin E-what do we know and where do we go?[J]. Molecular Nutrition & Food Research, 2021, 65(1):e2000097.

[13]
ABRAHAM A, KATTOOR A J, SALDEEN T, et al. Vitamin E and its anticancer effects[J]. Critical Reviews in Food Science and Nutrition, 2019, 59(17):2831-2838.

DOI PMID

[14]
TASEER M, ASLAM A, CHAUDHARY Z I, et al. The effect of omega 3 and vitamin E against avian influenza in broiler chickens[J]. Journal of the Hellenic Veterinary Medical Society, 2017, 68(3):363-368.

[15]
BHUIYAN M S A, AMIN Z, BAKAR A M S A, et al. Factor influences for diagnosis and vaccination of avian infectious bronchitis virus (Gammacoronavirus) in chickens[J]. Veterinary Sciences, 2021, 8(3):47.

[16]
李慧昕, 韩宗玺, 刘胜旺. 中国传染性支气管炎病毒的流行和疫苗[J]. 中国科学:生命科学, 2023, 53(12):1733-1744.

LI H X, HAN Z X, LIU S W. Epidemic and vaccine of avian infectious bronchitis virus in China[J]. Scientia Sinica Vitae, 2023, 53(12):1733-1744. (in Chinese)

[17]
XU L W, REN M T, SHENG J, et al. Genetic and biological characteristics of four novel recombinant avian infectious bronchitis viruses isolated in China[J]. Virus Research, 2019,263:87-97.

[18]
中国兽药典委员会. 中华人民共和国兽药典(2015年版)第3部[M]. 北京: 中国农业出版社, 2015.

China Veterinary Pharmacopoeia Committee. Pharmacopoeia of the People’s Republic of China (2015 edition) Part 3[M]. Beijing: China Agriculture Press, 2015. (in Chinese)

[19]
陈雪梅, 李聪, 丁雨, 等. 改良Trizol法提取血浆游离RNA[J]. 生物技术, 2020, 30(1):64-68.

CHEN X M, LI C, DING Y, et al. Extracting free RNA from plasma by modified Trizol methods[J]. Biotechnology, 2020, 30(1):64-68. (in Chinese)

[20]
刘亮亮. 禽腺病毒血清8b型感染对鸡脂肪代谢和免疫相关基因的影响[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2018.

LIU L L. Effects of fowl adenovirus serotype 8b on the expression of lipid metabolism and immune-relates genes in chickens[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2018. (in Chinese)

[21]
WOODS R D, WESLEY R D. Seroconversion of pigs in contact with dogs exposed to canine coronavirus[J]. Canadian Journal of Veterinary Research, 1992, 56(1):78-80.

[22]
NRC,Board on Agriculture,Subcommittee on Poultry Nutrition. Nutrient requirements of poultry[S]. 9th ed.Washington,D.C.:The National Academies Press,1994.

[23]
刘敏燕, 甘书灏, 宋明杰, 等. 日粮维生素E水平对三黄鸡生长性能、抗氧化功能及PPARs基因表达的影响[J]. 中国家禽, 2017, 39(17):31-34.

LIU M Y, GAN S H, SONG M J, et al. Effects of dietary vitamin E level on growth performance,antioxidant function and PPARs expression of Guangxi Sanhuang chicken[J]. China Poultry, 2017, 39(17):31-34. (in Chinese)

[24]
张亚茹, 王忠, 蔡少敏, 等. 陈玉米饲粮中添加茶多酚、维生素E和二丁基羟基甲苯对肉鸭生长性能和抗氧化功能的影响[J]. 动物营养学报, 2015, 27(4):1184-1190.

ZHANG Y R, WANG Z, CAI S M, et al. Effects of aging corn diet supplemented with tea polyphenol,vitamin E and butylated hydroxytoluene on growth performance and antioxidant function of meat ducks[J]. Chinese Journal of Animal Nutrition, 2015, 27(4):1184-1190. (in Chinese)

[25]
蒋守群, 林映才, 周桂莲, 等. 饲粮维生素E水平对1-21日龄黄羽肉鸡生长性能、免疫功能和抗氧化状况的影响[C]// 中国家禽科学研究进展——第十四次全国家禽科学学术讨论会论文集. 哈尔滨: 中国畜牧兽医学会家禽学分会,2009:1033-1039.

JIANG S Q, LIN Y C, ZHOU G L, et al. Effects of dietary vitamin E level on growth performance, immune function and antioxidant status of yellow-feathered broilers aged 1 to 21 days[C]// Advance on poultry science research in China:proceedings of the 14th national symposium on poultry science.Harbin:Poultry Science Branch of the Chinese Society of Animal Husbandry and Veterinary Medicine,2009:1033-1039. (in Chinese)

[26]
MILEVA M, GALABOV A S. Vitamin E and influenza virus infection[M]//MORALES-GONZALEZ J A.Vitamin E in health and disease. Rijeka:IntechOpen,2018:67-82.

[27]
HAN S N, WU D, HA W K, et al. Vitamin E supplementation increases T helper 1 cytokine production in old mice infected with influenza virus[J]. Immunology, 2000, 100(4):487-493.

DOI PMID

[28]
REHMAN Z U, CHE L P, REN S H, et al. Supplementation of vitamin E protects chickens from new castle disease virus-mediated exacerbation of intestinal oxidative stress and tissue damage[J]. Cellular Physiology and Biochemistry, 2018, 47(4):1655-1666.

[29]
ALVARADO I R, VILLEGAS P, EL-ATTRACHE J, et al. Detection of massachusetts and arkansas serotypes of infectious bronchitis virus in broilers[J]. Avian Diseases, 2006, 50(2):292-297.

PMID

[30]
RAJ G D, JONES R C. Infectious bronchitis virus:immunopathogenesis of infection in the chicken[J]. Avian Pathology, 1997, 26(4):677-706.

[31]
HOERR F J. The pathology of infectious bronchitis[J]. Avian Diseases, 2021, 65(4):600-611.

DOI PMID

[32]
DE WIT J J. Detection of infectious bronchitis virus[J]. Avian Pathology:Journal of the W. V.P.A, 2000, 29(2):71-93.

[33]
史文倩, 黄花荣. Toll样受体4信号传导通路与支气管哮喘的关系[J]. 新医学, 2020, 51(9):647-652.

DOI

SHI W Q, HUANG H R. Relationship between the Toll-like receptor 4 signaling pathway and bronchial asthma[J]. New Medicine, 2020, 51(9):647-652. (in Chinese)

[34]
马占邦, 许丽文, 王芳芳, 等. 不同来源传染性支气管炎病毒诱导SPF鸡发病的免疫机制研究[J]. 中国畜牧兽医, 2021, 48(12):4628-4640.

DOI

MA Z B, XU L W, WANG F F, et al. Effects of different origins of infectious bronchitis virus on immune function in SPF chicken[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(12):4628-4640. (in Chinese)

[35]
CHEN S N, TAN Y, XIAO X C, et al. Deletion of TLR4 attenuates lipopolysaccharide-induced acute liver injury by inhibiting inflammation and apoptosis[J]. Acta Pharmacologica Sinica, 2021, 42(10):1610-1619.

[36]
李茜. 生育三烯酚对炎症相关性结肠癌小鼠免疫细胞及细胞因子调节作用研究[D]. 硕士学位论文. 天津: 天津医科大学, 2017.

LI Q. Regulations of tocotrienol on immune cell and cytokines in mice with colitis-associated cancer[D].Master’s Thesis. Tianjin: Tianjin Medical University, 2017. (in Chinese)

[37]
LI N, HUANG C, CHEN W, et al. Nephropathogenic infectious bronchitis virus mediates kidney injury in chickens via the TLR7/NF-κB signaling axis[J]. Frontiers in Cellular and Infection Microbiology, 2022,12:865283.

[38]
KHANDUJA K L, AVTI P K, KUMAR S, et al. Inhibitory effect of vitamin E on proinflammatory cytokines-and endotoxin-induced nitric oxide release in alveolar macrophages[J]. Life Sciences, 2005, 76(23):2669-2680.

PMID

[39]
谢晶晶, 任梦婷, 范佳慧, 等. 传染性支气管炎病毒对鸡免疫反应及重组禽β-防御素11和12抗病毒作用的研究[J]. 中国畜牧兽医, 2023, 50(1):246-259.

DOI

XIE J J, REN M T, FAN J H, et al. Study on immune response of infectious bronchitis virus to chickens and antiviral effect of recombinant avian beta-defensins 11 and 12[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(1):246-259. (in Chinese)

[40]
KAISER M G, BLOCK S S, CIRACI C, et al. Effects of dietary vitamin E type and level on lipopolysaccharide-induced cytokine mRNA expression in broiler chicks[J]. Poultry Science, 2012, 91(8):1893-1898.

DOI PMID

[41]
MA D Y, LIN L J, ZHANG K X, et al. Three novel Anas platyrhynchos avian β-defensins,upregulated by duck hepatitis virus,with antibacterial and antiviral activities[J]. Molecular Immunology, 2011, 49(1/2):84-96.

[42]
XU Y, ZHANG T T, XU Q Q, et al. Differential modulation of avian β-defensin and Toll-like receptor expression in chickens infected with infectious bronchitis virus[J]. Applied Microbiology and Biotechnology, 2015, 99(21):9011-9024.

DOI PMID

[43]
GOGOI D, CHIPLUNKAR S V. Targeting gamma delta T cells for cancer immunotherapy:bench to bedside[J]. The Indian Journal of Medical Research, 2013, 138(5):755-761.

[44]
张英楠, 徐晶, 栾维民, 等. 不同日龄鸡肺脏中CD4+、CD8+T淋巴细胞分布规律[J]. 中国畜牧兽医, 2019, 46(10):3052-3057.

DOI

ZHANG Y N, XU J, LUAN W M, et al. The localization changes of CD4+ and CD8+T lymphocytes in chicken lung at different ages[J]. China Animal Husbandry & Veterinary Medicine, 2019, 46(10):3052-3057. (in Chinese)

[45]
SEO S H, COLLISSON E W. Cytotoxic T lymphocyte responses to infectious bronchitis virus infection[J]. Advances in Experimental Medicine and Biology, 1998,440:455-460.

Outlines

/