REVIEW

Physiological Functions of Glutathione and Its Application in Livestock and Poultry Production

  • TIAN Zhimei , 1, 2 ,
  • MA Xianyong 2 ,
  • YU Miao 2 ,
  • QU Mingren , 1, *
Expand
  • 1 Engineering Research Center of Nutritional Feed Development, Jiangxi Provincial Key Laboratory of Animal Nutrition, College of Animal Science and Technology, Jiangxi Agricultural University, Nangchang 330045, China
  • 2 Guangdong Engineering and Technology Research Center for Quality and Safety Control and Evaluation of Livestock and Poultry Meat, Guangdong Key Laboratory of Livestock and Poultry Breeding and Nutrition, South China Key Laboratory of Animal Nutrition and Feed, Ministry of Agriculture, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
*professor, E-mail:

Received date: 2024-05-30

  Online published: 2024-12-12

Abstract

Reduced glutathione (GSH), as the most abundance endogenous antioxidant molecule in organism, its metabolic process played an important role in maintaining cellular redox homeostasis and stress defense mechanisms, involved in organism metabolism and influence on animal physiological and pathological progress. The paper reviews on the function mechanism of GSH on metabolism, antioxidant, immune, detoxication, nutrient metabolism and microbial regulation, as well as its research and application progress on livestock and poultry breeding, aims to further explore regulatory mechanism and provide the reference for development and application of GSH in livestock and poultry production.

Cite this article

TIAN Zhimei , MA Xianyong , YU Miao , QU Mingren . Physiological Functions of Glutathione and Its Application in Livestock and Poultry Production[J]. Chinese Journal of Animal Nutrition, 2024 , 36(12) : 7481 -7492 . DOI: 10.12418/CJAN2024.636

谷胱甘肽(glutathione,GSH)常指还原型谷胱甘肽,其在自然界中主要存在于酵母和动物肝脏、肌肉、血细胞以及鱼、虾等组织中,一些植物(番茄、菠菜、黄瓜、胡萝卜、西兰花、牛油果、樱桃、大蒜等)、种子及胚芽等也含有较高的GSH。目前,工业上生产GSH包括萃取、化学合成、生物发酵及酶合成等方法,即通过富含GSH的动植物组织及酵母中直接萃取,应用GSH前体物质谷氨酸(glutamic acid,Glu)、半胱氨酸(cysteine,Cys)和甘氨酸(glycine,Gly)化学合成或酶合成,以及利用酵母、大肠杆菌(Escherichia coli)及乳酸链球菌(Streptococcus)等重组菌发酵转化碳水化合物等方式生产GSH[1]。GSH在动物不同器官中的合成速度存在差异,肝脏、脾脏、肾脏、小肠及肺脏的合成速率较高[2],而衰老、心脑血管疾病、癌症、艾滋病、结核、肺病、肾病、糖尿病等疾病会导致细胞GSH含量降低[3-7]。因此,GSH已被广泛应用于医药及保健品等行业,然而,其在畜牧业中应用相对较少。
GSH作为机体最丰富的内源性抗氧化物质,在抗氧化防御、有害物质脱毒及代谢、细胞循环进程及凋亡、免疫等功能发挥重要的作用,愈发受到畜牧业的关注。本文通过总结GSH的代谢、生物学功能及其在畜禽生产中的应用进展,旨在深入了解其对动物健康调控的机制,以期为其在畜禽生产中的开发应用提供参考。

1 GSH及其衍生物

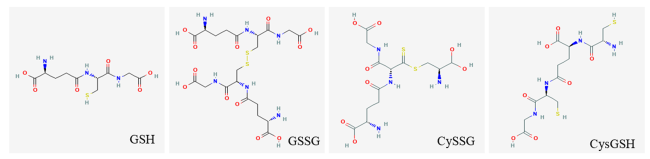
细胞内GSH含量在1~10 mmol/L,其中约85%在细胞质,10%~15%在线粒体,约5%在细胞核及内质网[8-9],存在还原型GSH及氧化型GSH(GSSG),形成GSH/GSSG氧化还原电位[10]。GSH循环的氧化衍生物为半胱氨酸-氧化型谷胱甘肽(CySSG),在细胞内外通过与胱氨酸发生硫醇交换形成,可通过GSSG与Cys作用自发生成CySSG,也可通过硫醇转移酶γ-谷氨酰基转移酶(γ-glutamyl transpeptidase,GGT)催化GSSG形成CySSG及Cys;此外,Cys通过共价键结合到GSH的半胱氨酰基的β-碳上偶联形成半胱氨酰基谷胱甘肽(cysteinyl glutathione,CysGSH)[11-12]。GSH及其衍生物形成GSH/GSSG、Cys/胱氨酸(cystine,CySS)、CysGSH/CySSG的氧化还原对(图1),影响细胞氧化还原平衡[12]。由此可见,GSH及其衍生物在细胞氧化还原系统稳态中发挥重要的作用。
图1 GSH及其衍生物结构图

GSH:谷胱甘肽 glutathione;GSSG:氧化型谷胱甘肽 glutathione disulfide;CySSG:半胱氨酸-氧化型谷胱甘肽 cysteine-glutathione disulfide;CysGSH:半胱氨酰基谷胱甘肽 cysteinyl glutathione。

Fig.1 Structure diagrams of glutathione and its derivatives

2 GSH代谢

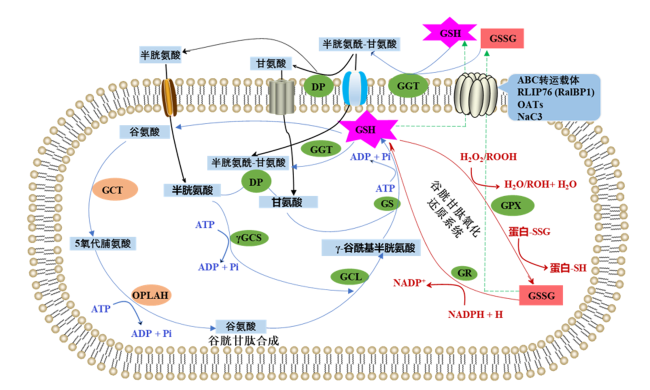
GSH代谢主要由合成、分解、转运及GSH氧化还原系统组成(图2),其影响细胞GSH含量及氧化还原稳态。GSH在GGT作用下脱谷氨酰基生成半胱氨酰甘氨酸,通过转运载体直接转入细胞,或被细胞膜二肽酶(dipeptidase,DP)分解为Gly及Cys后进入细胞,在γ-谷氨酰基转移酶(γ-glutamyl cyclotransferase,GCT)、谷胱甘肽合成酶(glutathione synthetase,GS)、γ-谷氨酰半胱氨酸合成酶(γ-glutamylcysteine synthetase,γ-GCS)、5-羟脯氨酸酶(5-oxoprolinase,OPLAH)、谷氨酰半胱氨酸连接酶(glutamate cysteine ligase,GCL)等酶催化下在细胞质从头合成GSH[10]。细胞质膜上的ABC转运载体(adenosine triphosphate binding cassette transporter)如多药耐药相关蛋白(multidrug resistance-associated proteins,MRPs)、囊性纤维化跨膜传导调节因子、ABC转运载体G2,非ABC依赖ATP的多药输出载体如Ral-相互作用蛋白76(Ral-interacting protein 76,RLIP76/RalBP1),不依赖/依赖钠离子(Na+)的主要协助转运蛋白超家族如有机阴离子转运载体(organic anion transporters,OATs)及钠依赖二羧酸转运蛋白3(sodium-dicarboxylate carrier 3,NaC3)等转运蛋白调节GSH的吸收,影响细胞内GSH稳态[13-14]。此外,GSH还原活性氧(reactive oxygen,ROS)自由基,并在谷胱甘肽过氧化物酶(glutathione peroxidase,GPX)催化下还原蛋白二硫键生成巯基;GSSG在还原型烟酰胺腺苷二核苷酸磷酸(reduced nicotinamide adenine dinucleotide phosphate,NADPH)依赖的谷胱甘肽还原酶(glutathione reductase,GR)催化生成GSH,形成细胞GSH氧化还原系统[10]
图2 细胞GSH代谢

GSH:谷胱甘肽 glutathione;GSSG:氧化型谷胱甘肽 glutathione disulfide;GCT:γ-谷氨酰基转移酶 γ-glutamyl cyclotransferase;GGT:γ-谷氨酰基转移酶 γ-glutamyl transpeptidase;DP:二肽酶 dipeptidase;γ-GCS:γ-谷氨酰半胱氨酸合成酶 γ-glutamylcysteine synthetase;GCL:谷氨酰半胱氨酸连接酶 glutamate cysteine ligase;GS:谷胱甘肽合成酶 glutathione synthetase;GR:谷胱甘肽还原酶 glutathione reductase;GPX:谷胱甘肽过氧化物酶 glutathione peroxidase;OPLAH:5-羟脯氨酸酶 5-oxoprolinase;RLIP76(RalBP1):Ral-相互作用蛋白76 Ral-interacting protein 76;OATs:有机阴离子转运载体 organic anion transporters;NaC3:钠依赖二羧酸转运蛋白3 sodium-dicarboxylate carrier 3;ROOH:羟基过氧化物 hydroxy peroxide;ROH:羟基化物 hydroxylate;NADP:烟酰胺腺苷二核苷酸磷酸 nicotinamide adenine dinucleotide phosphate。

Fig.2 Glutathione metabolism in cells[10,13-14]

3 GSH的生物学功能

3.1 GSH的抗氧化功能

GSH在维持氧化还原稳态及建立细胞氧化应激防御机制方面具有重要作用。一方面,GSH直接与超氧阴离子( O 2 -)或其他ROS分子结合清除自由基,或通过恢复抗氧化剂活性间接清除机体ROS;另一方面,GSH的合成、利用、再循环及细胞输出等影响细胞内GSH稳态,而GSH循环与其他重要的抗氧化剂、氧化还原酶等协同调控机体氧化还原稳态[15]。GSH通过GPX偶联反应催化过氧化氢(H2O2)等自由基还原,且可在NADPH和GPX存在的情况下还原二硫键,缓解氧化应激损伤;通过与谷胱甘肽S-转移酶(glutathione S-transferase,GST)家族结合缓解细菌脂多糖及氧化应激诱导的细胞损伤[10,13,15-16];此外,GSH通过还原蛋白二硫键或降低二硫键的合成,发挥细胞内巯基状态调节器的作用,从而参与保持蛋白质的完整性[16]
正常生理条件下,上皮细胞内衬液具有高含量的GSH,保持细胞内氧化还原状态的高度还原[17]。应激条件下,产生的过量ROS消耗细胞内GSH、NADPH并破坏氧化还原平衡,通过调节核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)调控Kelch样ECH相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)、抗氧化响应元件(antioxidant response element,ARE)、NAD(P)H/醌氧化还原酶(NAD(P)H quinone oxidoreductase 1,NQO1)与金属硫蛋白(metallothionein,MT)等靶标响应应激,并调控细胞氧化还原稳态[18-21]。应激条件下,细胞内GSH含量的降低增加蛋白巯基氧化从而破坏细胞的完整性以及生理活性系统的功能完整性;增加细胞对GSH的需求,补充细胞内GSH的储存能力,调节氧化应激防御[22]。研究发现,不同细胞保持细胞GSH稳态及氧化还原稳态的调控机制有所不同(表1)。
表1 不同细胞中GSH的分布及氧化还原稳态调控机制

Table 1 GSH distribution and regulatory mechanism of redox homeostasis in different cells

细胞类型
Cell types
细胞质中GSH含量
Content of GSH in
cytoplasm/(mmol/L)
GSH稳态调控
GSH homeostasis regulation
抗氧化调控机制
Regulatory mechanism of
antioxidant function
参考文献
References
星形胶质细胞
Astrocytes
8.00~10.00 GSH合成及GSH氧化还原系统调控;
通过MRPs将GSH共轭化合物输出细胞
通过GSH代谢相关酶调控细胞内氧化还原系统;通过IL-6
通路调控GSH利用及转运,促进细胞抗氧化
防御保护细胞免于ROS及外源有害物质的损伤
[13,23]
神经细胞
Neurons
0.20~2.00 通过CySS/Glu交换转运载体促进
CySS吸收,从而促进GSH合成
调节微兴奋性突触后点位,促进细胞Glu神经递质
生理活性,并通过Nrf2调控NQO1与MT表达及其与
NQO1结合,介导抗氧化防御及脱毒作用
[19-20]
肝细胞
Hepatocytes
5.00~10.00 GSH合成及GSH氧化还原系统调控;
细胞质GSH向线粒体的转运
通过GSH代谢调控细胞内氧化还原系统;通过
IL-6、TNF-α通路提高肝脏免疫功能,
缓解氧化应激及炎症
[23-24]
红细胞
Erythrocytes
2.30~5.23 调控GSH从头合成,输出GSSG及GSH
共轭化合物;GSH氧化还原系统调控
通过GSSG和GSH共轭化合物负反馈调节GSH合成,
影响GSH稳态;通过影响Band 3氧化磷酸化调节
一磷酸己糖途径通路及NADPH生成,从而影响
GSH合成及氧化损伤防御功能
[2,25-27]
肺细胞
Pneumocyte
0.40~0.50 GSH/GSSG、Cys/CySS氧化还原电位,
通过GSH前体物质调控GSH稳态
通过NADPH氧化酶4-Nrf2通路及TGF-β通路调控
细胞GSH合成代谢及内质网氧化应激,缓解氧化损伤
[28-29]
肾细胞
Renal cell
3.13 通过GSH/GPX通路促进GSH
及线粒体ATP合成
通过激活Nrf2-ARE通路及戊糖磷酸途径促进
GSH的从头合成,提高NADPH、GSH/GSSG及
抗氧化蛋白水平,抑制脂类β-氧化,从而抑制铁坏死
[2,30-31]
心肌细胞
Cardiomyocyte
2.00 细胞GSH合成及代谢;通过影响DIC及
OGC,调节GSH向线粒体的转运
通过胰岛素信号调控PI3K及p38 MAPK通路,
级联激活GPX4活性并调控细胞GSH循环,
影响细胞抗氧化功能
[32-33]
胰岛细胞
Pancreatic islets
通过糖代谢促进胰岛GSH合成;通过
N-乙酰半胱氨酸影响细胞GSH代谢
通过丙酮酸羧化酶-糖代谢途径及N-乙酰半胱氨酸
影响GSH合成、代谢,降低一氧化氮及ROS的生成,
增强细胞抗氧化能力,从而抵抗炎症及亚硝酸盐等应激
[34-35]

GSH:谷胱甘肽 glutathione;MRPs:多药耐药相关蛋白 multidrug resistance-associated proteins;IL-6:白细胞介素-6 interleukin-6;ROS:活性氧 reactive oxygen;CySS:胱氨酸 cystine;Glu:谷氨酸 glutamic acid;Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;NQO1:NAD(P)H/醌氧化还原酶 NAD(P)H quinone oxidoreductase-1;MT:金属硫蛋白 metallothionein;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;GSSG:氧化型谷胱甘肽 glutathione disulfide;NADPH:还原型烟酰胺腺苷二核苷酸磷酸(reduced nicotinamide adenine dinucleotide phosphate;Cys:半胱氨酸 cysteine;GPX:谷胱甘肽过氧化物酶 glutathione peroxidase;TGF-β:转化生长因子-β transforming growth factor-β;ARE:抗氧化响应元件 antioxidant response element;DIC:二羧酸转运载体 dicarboxylate carrier;OGC:氧化戊二酸载体 oxidized glutaric acid carrier;PI3K:磷脂酰肌醇3-激酶 phosphoinositide 3-kinase;p38 MAPK:p38丝裂原活化蛋白激酶 p38 mitogen-activated protein kinase。

3.2 GSH的免疫调节功能

GSH是细胞保持免疫系统功能的基础,GSH含量降低抑制T细胞增殖及免疫响应[36],外源添加GSH促进淋巴细胞增殖,增强自然杀伤(NK)细胞毒性,提高机体免疫功能[37];且免疫系统刺激促进机体GSH合成[2]。细胞缺乏GSH通过抑制Nrf2通路降低一碳代谢并影响效应T细胞应答;通过激活哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)抑制下游母源抗Dpp小同源物(small mothers against decapentaplegic homolog,Smad)3-叉头样转录因子P3通路调节T细胞的增殖及免疫响应[38]。细胞内GSH含量降低导致氧化还原稳态失衡并激活核苷酸结合寡聚化结构域样受体蛋白3通路,从而促进炎症小体的形成,而外源添加GSH可有效抑制炎症小体形成以及白细胞介素(interleukin,IL)-1β分泌,缓解炎症发生[39]
研究发现,口服GSH降低二型糖尿病患者外周血单个核细胞肉芽肿IL-6、IL-10含量,增加细胞内Th1相关细胞因子、干扰素-γ(interferon-γ,IFN-γ)、肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)及IL-2含量,从而提高细胞免疫功能[40]。Bjørklund等[41]指出,GSH通过核因子-κB、激活蛋白1及其下游信号通路调控促炎症因子TNF-αIL-1β及环氧合酶、脂肪氧合酶、一氧化氮合成酶等表达,缓解神经炎症。由此可见,GSH通过影响效应细胞免疫应答、炎症因子分泌及炎症小体形成等调控机体免疫及抗炎功能。

3.3 GSH的解毒功能

GSH作为多种谷氧还蛋白的辅因子及底物,通过与GPX偶联反应完成H2O2的脱毒过程,或在NADPH和GPX存在的情况下,其催化二硫键的还原,降低蛋白质氧化聚集引起的细胞毒性;GST家族通过与GSH结合后催化GSH与疏水或亲电子复合物结合形成亲水性物质,参与毒素、氧化应激产物等亲电子反应化合物的脱毒[15]。研究发现,GSH的巯基在GST催化下与镉、锌、砷、铝、汞等结合,而且GSH以2分子为单元结合为循环八肽形成的空腔和极性结构有利于增强重金属捕获,形成的复合物通过粪尿等形式排出体外,从而缓解重金属毒性[42-43]。Tualeka等[44]也指出,摄入富含GSH的食物可促进机体铬的排出。体外添加GSH可缓解砷诱导的鼠牙髓干细胞毒性以及农药诱导的海马体非胆碱能毒性,而通过静脉注射GSH提高早产豚鼠肺脏GSH含量及肺泡化指数,降低GSSG含量、氧化还原电位及天冬氨酸特异性半胱氨酸蛋白酶-3(cysteinyl aspartate-specific proteinase-3,Caspase-3)蛋白表达,保护肺脏免于抗坏血酸过氧化物的毒性作用[45-47]。GSH与醛类结合通过酶催化后转化为无毒酸类物质,与甲醛结合在乙醇脱氢酶3及水解酶的作用下生成甲酸,与丙酮醛结合在醛酮变位酶的作用下生成D-乳酸,完成甲醛及丙酮醛的脱毒[48]。GSH合成受损增加无触酶血症小鼠肝脏转化生长因子-β(transforming growth factor-β,TGF-β)表达,提高对乙酰氨基酚药物诱导的肝脏中毒的敏感性[49]。此外,GSH通过生物转化增加肝脏血窦GSH和Cys的局部含量,并改变纳米材料的表面化学特性,从而降低其与血清蛋白质亲和力及纳米材料在血液中的截流与清除,降低纳米药物引起的肝脏细胞毒性[50]

3.4 GSH参与营养物质代谢调控

细胞GSH代谢过程伴随ATP及NADPH等能量代谢过程;同时,ATP刺激也能通过危险相关模式分子诱导细胞内嘌呤能受体P2X7降低细胞内GSH含量并引起细胞ROS应激,影响细胞线粒体能量代谢;而外源添加GSH可有效缓解ATP诱发的巨噬细胞中GSH含量,显著降低及线粒体能量代谢紊乱[10,13,16,39]。Shi等[51]研究发现,线粒体GSH转运及细胞GSH平衡与溶质载体家族25成员39(solute carrier family 25 member 39,SLC25A39)互作调控铁硫簇蛋白及血红素的合成,影响细胞二价铁离子(Fe2+)吸收;而GSH平衡及Fe2+吸收互作调控线粒体氧化磷酸化途径,进而影响能量代谢。GSH还可通过激活并结合G蛋白偶联受体C家族钙敏感受体调控脑、胃肠道等钙离子(Ca2+)的吸收以及甲状旁腺激素的释放[52]
GSH代谢影响其前体物质Glu、Cys及Gly的代谢,而外源添加氨基酸可提高GSH合成速率[53-54]。细胞GSH缺陷通过调控Nrf2基因抑制丝氨酸向细胞输入及合成,进而影响丝氨酸的促增殖及提高免疫功能;同时,丝氨酸也可促进T细胞GSH合成[38]。Chen等[55]指出,GSH缺乏诱导肝脏氨基酸、脂肪酸、葡萄糖及脂肪等代谢重编程,一方面通过转录调控促进丙酮酸、脂肪酸氧化及降低脂肪从头合成来增加乙酰辅酶A活性,从而影响脂肪代谢,同时也可通过转录调控增加谷氨酸盐的产生;另一方面通过转录后调控增加氨基酸、己糖胺的N-乙酰化,诱导葡萄糖醛酸酯途径及核酸生物合成。研究发现,高糖通过腺苷酸激活蛋白激酶-靶向线粒体伴侣蛋白1-谷氨酰胺酶通路降低细胞内GSH/GSSG,一方面引起线粒体应激及功能障碍,诱导B淋巴细胞瘤(B-cell lymphoma,Bcl)-2/Bcl-xl表达及β细胞凋亡;另一方面通过因子内质网应激激活CCAAT/增强子结合蛋白同源蛋白(CHOP)通路引起β细胞凋亡[56]。而外源添加GSH通过阻断ROS-TGF-β-Smad通路抑制胰腺星状细胞成纤维细胞转变、增殖及迁移,从而保护高糖诱导的胰腺纤维化,改善胰腺功能[57]。由此可见,GSH及其代谢调控细胞能量及营养物质代谢。

3.5 GSH与肠道微生物互作

GSH与肠道微生物及代谢密切相关,外源添加GSH可降低虹鳟肠道变形菌门(Proteobacteria)丰度,增加拟杆菌门(Bacteroidetes)、厚壁菌门(Firmicutes)、酸杆菌门(Acideobacteria)及放线菌门(Actinobacteria)丰度,进而调控肠道健康[58]。口服GSH降低二型糖尿病患者肉芽肿结核分支杆菌(Mycobacterium tuberculosis)及牛分枝杆菌(Mycobacterium bovis)BCG负荷,从而降低炎症因子及免疫功能[40]。研究发现,抗生素导致机体GSH消耗,引起ROS含量增加,影响鲍曼不动杆菌(Acinetobacter baumannii)等微生物对抗生素的敏感性[59]。肠道微生物也作为环境因子影响宿主GSH及代谢,微生物可通过抢夺宿主GSH用于自身生长及宿主先天免疫逃逸[60]。Mardinoglu等[61]报道,微生物菌群移植到无菌小鼠,通过增加小肠GR活性,及降低GC活性,抑制小肠GSH合成。Yuan等[62]发现,厚壁菌门与拟杆菌门比值是宿主GSH含量的特异指标,宿主GSH含量与肠道厚壁菌门丰度呈正相关,与拟杆菌门丰度呈负相关;外源添加唾液乳杆菌(Lactobacillus salivarius)LI01通过提高骨髓巨噬细胞GCL的催化亚基C及修饰亚基M活性增强GSH的从头合成,从而抑制线粒体合成及ROS聚集。肠道微生物的代谢产物也可通过激活瞬时感受器电位香草素受体-1促进GPX4表达,影响细胞内GSH平衡,从而抑制肠道铁坏死性损伤[63]。由此可见,GSH及其代谢与肠道微生物交互调控动物健康。

4 GSH在畜禽生产中的应用

4.1 GSH对畜禽繁殖能力的影响

研究发现,精子洗涤培养基中添加1 mmol/L的GSH可提高日本和牛冻融精子的功能、受精能力,从而提高卵母细胞受精率、囊胚的繁殖能力及ATP含量,促进早期胚胎发育[64];而外源添加4 μmol/L的GSH可提高绵羊精子活力、速度、质膜完整率、顶替完整率、DNA完整率、线粒体活性及总抗氧化能力(total antioxidant capacity,T-AOC),提高绵羊精液低温保存效果[65]。Estrada等[66]报道,精液冻存液中添加2 mmol/L的GSH可缓解低温保存导致的精液顶体蛋白活性、精液功能及活精子数量的降低,从而增加体外受精母猪受孕率、产仔率及数量、出生及活仔数。而Zhang等[67]指出,液体储存液中添加1~10 mmol/L的GSH可有效提高低温储存猪精子运动活力,有效保存期、质膜完整性及T-AOC,降低精子丙二醛(malondialdehyde,MDA)及H2O2含量,缓解精子长期保存导致的氧化应激及质量下降,且1 mmol/L添加剂量效果最佳。由此可见,GSH可有效提高低温储存的精子活力,其对精子的低温长期保存的抗氧化保护作用存在剂量依赖性。
GSH与母畜的生殖细胞活力及繁殖性能密切相关,添加GSH可增加牛受精卵及卵裂胚胎GGTGS表达,促进γ-谷氨酰循环,增加GSH转运及细胞内GSH含量,调控细胞氧化还原稳态并清除ROS,从而促进早期胚胎发育[68];红细胞的高GSH含量可提高母羊产仔数及产乳性能[69]。高龄奶牛体外受精后卵母细胞卵泡液中GSH含量降低,增加细胞内ROS含量,导致其繁殖性能下降;通过添加GSH乙酯增加高龄奶牛卵母细胞内GSH含量,从而提高均匀分布皮质颗粒的卵母细胞数量,促进减数分裂、卵母细胞成熟以及体外受精后囊胚期细胞发育[70]。因此,适量添加GSH通过氧化平衡调控缓解高龄诱导动物卵母细胞、受精卵的氧化损伤,提高产仔率、活仔数及泌乳性能,改善动物繁殖性能。

4.2 GSH对畜禽生长性能的影响

饲粮中添加500~1 000 mg/kg的GSH可促进肉羊瘤胃发酵,提高肉羊抗氧化能力及生长激素分泌;饲粮中添加500 mg/kg的GSH可提高肉羊锰、镁等利用率以及平均日增重(ADG),降低料重比(F/G),促进肉羊生长[71]。姜宁等[72]研究发现,饲粮中添加500~800 mg/kg的GSH可显著降低育肥羊血清MDA含量,提高血清T-AOC及过氧化氢酶、GPX活性,从而增强育肥羊抗氧化能力,促进其生长。因此,饲粮中添加适量GSH通过调控瘤胃发酵及抗氧化能力提高肉羊饲料利用率及生长。断奶常引起仔猪GSH氧化还原系统失衡,导致肠道屏障功能氧化损伤[73]。研究发现,外源添加GSH可缓解仔猪小肠上皮细胞(IPEC-J2细胞)氧化应激,改善线粒体功能,并缓解仔猪肠上皮细胞氧化损伤[74];而饲粮中添加GSH可增加断奶蓝塘仔猪血清及小肠黏膜GSH含量,降低小肠黏膜MDA含量,提高养分利用率并缓解仔猪断奶应激,从而促进仔猪生长[75]。在育肥猪饲粮中添加20 mg/kg的GSH可提高平均日增重、饲料转化率及胴体瘦肉率,促进育肥猪生长并提高其胴体性状[76]。饲粮中添加GSH可促进肉鸡生长。韦建福等[77]研究发现,饲粮中添加80、160 mg/kg的GSH提高了黄羽肉鸡体重和ADG。吴觉文[78]也指出,饲粮中添加80~160 mg/kg的GSH通过调节肉鸡血清GPX活性、T-AOC及生长激素、三碘甲状腺原氨酸(T3)、四碘甲状腺原氨酸(T4)水平,促进肉鸡生长。饲粮中添加GSH可通过Keap1-Nrf2通路调控下游靶标血红素加氧酶-1(HO-1)、GPX1、超氧化物歧化酶(SOD)缓解黄曲霉毒素1诱导的小鸭肝脏氧化损伤及生长抑制[79];也可通过雄烷受体调控其下游靶标基因维甲酸X受体a、热休克蛋白90、蛋白磷酸酶2A催化亚基(protein phosphatase 2A catalytic subunit,PP2Ac)、细胞色素P450等提高抗氧化能力及免疫能力,缓解百草枯诱导的断奶仔猪腹泻及生长抑制[80]。由此可见,外源添加GSH通过调控抗氧化、营养物质代谢及内分泌等功能缓解应激损伤,提高动物饲料转化率,促进动物生长。

4.3 GSH对畜禽肉品质的影响

GSH是肉类风味物质的重要前体物质,其谷氨酰基形成丙酮醛和丙酮醇的碳水化合物模块,通过参与脂肪降解产物与GSH-葡萄糖美拉德反应系统形成芳香味物质[81]。研究表明,饲粮中添加500 mg/kg的GSH可降低羊肉剪切力,提高羊肉pH、系水力及熟肉率,改善羊肉品质[71]。因此,饲粮中添加GSH可能通过提高肉中GSH代谢促进芳香味物质的合成,从而改善肉的风味。冷藏过程通过增加细胞内L-Glu、花生四烯酸、GSSG、γ-谷氨酰半胱氨酸含量并降低L-Cys、GSH含量影响GSH代谢,增加了肌细胞ROS含量及促进凋亡水平,影响牛肉系水力。Liu等[82]指出,GSH代谢抑制通过铁坏死降低冷藏牛肉的系水力。因此,GSH可作为牛肉保鲜的重要手段。Ma等[83]报道,GSH可显著降低猪肉氧化型肌原纤维蛋白大小,增加其溶解度、凝胶化作用以及网络结构的密集度及均匀度,有利于加工更好的氧化稳定性、纹理特性等高品质的肉类蛋白凝胶产品。由此可见,GSH可作为饲料添加剂及食品保鲜剂应用于动物生产及肉产品加工,从而改善肉品质。

5 小结

GSH具有抗氧化、抗炎、免疫调节、抗凋亡、微生物调控、解毒等调控机体生理的功能,是多种疾病的生物标志物,因此常见于医药、保健品,用于调控人的健康及疾病治疗。然而,我国大部分GSH仍需进口,我国行业上采取的萃取、化学合成、酶合成及微生物发酵合成等方法生产GSH仍存在产量低、成本高问题,限制其在畜禽养殖中的研究及应用。因此,未来可通过创新优化GSH的生产工艺降低生产、应用成本,扩大其在畜禽养殖中的应用是重要的研究方向。目前,GSH在动物生产上的研究主要聚焦在生长性能、抗氧化功能等指标,其作用机理及调控机制方面研究较少。随着畜牧业对GSH关注热度的增加,后续有待进一步明确GSH在畜禽生产应用中适宜的添加剂量,深入系统地解析不同动物、不同生长阶段、不同生理状况下其调控动物抗氧化、抗炎、免疫调节、抗凋亡、肠道微生物、解毒等生理的作用效果、信号通路及关键靶标,以期为GSH作为畜禽饲料添加剂的开发应用提供科学依据及实践参考,对推动新型功能性添加剂的开发及其畜禽生产绿色高效发展具有重要的意义。
[1]
陈玉娟, 邱泽钞, 沈铭, 等. 谷胱甘肽的生物学功能及其在养猪生产中的应用研究进展[J]. 中国畜牧杂志, 2022, 58(12):60-65.

CHEN Y J, QIU Z C, SHEN M, et al. Advance in biological function of glutathione and its application in pig production[J]. Chinese Journal of Animal Science, 2022, 58(12):60-65. (in Chinese)

[2]
RAKHSHANDEH A, DE LANGE C F M, HTOO J K, et al. Immune system stimulation increases the plasma cysteine flux and whole-body glutathione synthesis rate in starter pigs[J]. Journal of Animal Science, 2019, 97(9):3871-3881.

[3]
ALHAMDANI M S. Impairment of glutathione biosynthetic pathway in uraemia and dialysis[J]. Nephrology Dialysis Transplantation, 2005, 20(1):124-128.

[4]
LIU H L, WANG H, SHENVI S, et al. Glutathione metabolism during aging and in Alzheimer disease[J]. Annals of the New York Academy of Sciences, 2004, 1019:346-349.

PMID

[5]
WALTERS D M, CHO H Y, KLEEBERGER S R. Oxidative stress and antioxidants in the pathogenesis of pulmonary fibrosis:a potential role for Nrf2[J]. Antioxidants & Redox Signaling, 2008, 10(2):321-332.

[6]
SAING T, LAGMAN M, CASTRILLON J, et al. Analysis of glutathione levels in the brain tissue samples from HIV-1-positive individuals and subject with Alzheimer’s disease and its implication in the pathophysiology of the disease process[J]. BBA Clinical, 2016, 6:38-44.

[7]
VENKETARAMAN V, RODGERS T, LINARES R, et al. Glutathione and growth inhibition of Mycobacterium tuberculosis in healthy and HIV infected subjects[J]. AIDS Research and Therapy, 2006, 3:5.

[8]
MEREDITH M J, REED D J. Status of the mitochondrial pool of glutathione in the isolated hepatocyte[J]. Journal of Biological Chemistry, 1982, 257(7):3747-3753.

[9]
HWANG C, SINSKEY A J, LODISH H F. Oxidized redox state of glutathione in the endoplasmic reticulum[J]. Science, 1992, 257(5076):1496-1502.

DOI PMID

[10]
MOINE L, RIVOIRA M, DÍAZ DE BARBOZA G, et al. Glutathione depleting drugs,antioxidants and intestinal calcium absorption[J]. World Journal of Gastroenterology, 2018, 24(44):4979-4988.

[11]
JOCELYN P C. The standard redox potential of cysteine-cystine from the thiol-disulphide exchange reaction with glutathione and lipoic acid[J]. European Journal of Biochemistry, 1967, 2(3):327-331.

PMID

[12]
JONES D P, MODY V C,Jr, CARLSON J L, et al. Redox analysis of human plasma allows separation of pro-oxidant events of aging from decline in antioxidant defenses[J]. Free Radical Biology & Medicine, 2002, 33(9):1290-1300.

[13]
VÁZQUEZ-MEZA H, VILCHIS-LANDEROS M M, VÁZQUEZ-CARRADA M, et al. Cellular compartmentalization,glutathione transport and its relevance in some pathologies[J]. Antioxidants (Basel,Switzerland), 2023, 12(4):834.

[14]
OESTREICHER J, MORGAN B. Glutathione:subcellular distribution and membrane transport[J]. Biochemistry and Cell Biology, 2019, 97(3):270-289.

[15]
ESPINOSA-DIEZ C, MIGUEL V, MENNERICH D, et al. Antioxidant responses and cellular adjustments to oxidative stress[J]. Redox Biology, 2015, 6:183-197.

[16]
HADDAD J J, HARB H L. L-gamma-glutamyl-L-cysteinyl-glycine (glutathione;GSH) and GSH-related enzymes in the regulation of pro- and anti-inflammatory cytokines:a signaling transcriptional scenario for redox(y) immunologic sensor(s)?[J]. Molecular Immunology, 2005, 42(9):987-1014.

[17]
CANTIN A M, HUBBARD R C, CRYSTAL R G. Glutathione deficiency in the epithelial lining fluid of the lower respiratory tract in idiopathic pulmonary fibrosis[J]. The American Review of Respiratory Disease, 1989, 139(2):370-372.

[18]
KASAI S, SHIMIZU S, TATARA Y, et al. Regulation of Nrf2 by mitochondrial reactive oxygen species in physiology and pathology[J]. Biomolecules, 2020, 10(2):320.

[19]
SEDLAK T W, PAUL B D, PARKER G M, et al. The glutathione cycle shapes synaptic glutamate activity[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(7):2701-2706.

DOI PMID

[20]
ASANUMA M, MIYAZAKI I. Glutathione and related molecules in parkinsonism[J]. International Journal of Molecular Sciences, 2021, 22(16):8689.

[21]
SHIH A Y, JOHNSON D A, WONG G, et al. Coordinate regulation of glutathione biosynthesis and release by Nrf2-expressing glia potently protects neurons from oxidative stress[J]. Journal of Neuroscience, 2003, 23(8):3394-3406.

PMID

[22]
HADDAD J J. Redox regulation of pro-inflammatory cytokines and kappa B-alpha/NF-kappa B nuclear translocation and activation[J]. Biochemical and Biophysical Research Communications, 2002, 296(4):847-856.

[23]
LÓPEZ-BLANCH R, SALVADOR-PALMER R, ESTRELA J M, et al. An intercellular flow of glutathione regulated by interleukin 6 links astrocytes and the liver in the pathophysiology of amyotrophic lateral sclerosis[J]. Antioxidants (Basel,Switzerland), 2021, 10(12):2007.

[24]
CHEN Y, DONG H, THOMPSON D C, et al. Glutathione defense mechanism in liver injury:insights from animal models[J]. Food and Chemical Toxicology, 2013, 60:38-44.

[25]
GIUSTARINI D, MILZANI A, DALLE-DONNE I, et al. Red blood cells as a physiological source of glutathione for extracellular fluids[J]. Blood Cells,Molecules & Diseases, 2008, 40(2):174-179.

[26]
SWIETEK K, JUSZCZYK J. Reduced glutathione concentration in erythrocytes of patients with acute and chronic viral hepatitis[J]. Journal of Viral Hepatitis, 1997, 4(2):139-141.

PMID

[27]
WANG Y M, ZHAO N N, XIONG Y L, et al. Downregulated recycling process but not de novo synthesis of glutathione limits antioxidant capacity of erythrocytes in hypoxia[J]. Oxidative Medicine and Cellular Longevity, 2020, 2020:7834252.

[28]
JANSSEN-HEININGER Y, REYNAERT N L, VAN DER VLIET A, et al. Endoplasmic reticulum stress and glutathione therapeutics in chronic lung diseases[J]. Redox Biology, 2020, 33:101516.

[29]
CANTIN A M, NORTH S L, HUBBARD R C, et al. Normal alveolar epithelial lining fluid contains high levels of glutathione[J]. Journal of Applied Physiology (Bethesda,Md.:1985), 1987, 63(1):152-157.

[30]
MIESS H, DANKWORTH B, GOUW A M, et al. The glutathione redox system is essential to prevent ferroptosis caused by impaired lipid metabolism in clear cell renal cell carcinoma[J]. Oncogene, 2018, 37(40):5435-5450.

DOI PMID

[31]
XIAO Y, MEIERHOFER D. Glutathione metabolism in renal cell carcinoma progression and implications for therapies[J]. International Journal of Molecular Sciences, 2019, 20(15):3672.

[32]
LI S M, LI X, ROZANSKI G J. Regulation of glutathione in cardiac myocytes[J]. Journal of Molecular and Cellular Cardiology, 2003, 35(9):1145-1152.

PMID

[33]
JANG S, CHAPA-DUBOCQ X R, TYURINA Y Y, et al. Elucidating the contribution of mitochondrial glutathione to ferroptosis in cardiomyocytes[J]. Redox Biology, 2021, 45:102021.

[34]
FU A, VAN ROOYEN L, EVANS L, et al. Glucose metabolism and pyruvate carboxylase enhance glutathione synthesis and restrict oxidative stress in pancreatic islets[J]. Cell Reports, 2021, 37(8):110037.

[35]
ALNAHDI A, JOHN A, RAZA H. N-acetyl cysteine attenuates oxidative stress and glutathione-dependent redox imbalance caused by high glucose/high palmitic acid treatment in pancreatic Rin-5F cells[J]. PLoS One, 2019, 14(12):e0226696.

[36]
LABARRERE C A, KASSAB G S. Glutathione deficiency in the pathogenesis of SARS-CoV-2 infection and its effects upon the host immune response in severe COVID-19 disease[J]. Frontiers in Microbiology, 2022, 13:979719.

[37]
SINHA R, SINHA I, CALCAGNOTTO A, et al. Oral supplementation with liposomal glutathione elevates body stores of glutathione and markers of immune function[J]. European Journal of Clinical Nutrition, 2018, 72(1):105-111.

DOI PMID

[38]
KURNIAWAN H, FRANCHINA D G, GUERRA L, et al. Glutathione restricts serine metabolism to preserve regulatory T cell function[J]. Cell Metabolism, 2020, 31(5):920-936.e7.

DOI PMID

[39]
ZHANG T L, TSUTSUKI H, ISLAM W, et al. ATP exposure stimulates glutathione efflux as a necessary switch for NLRP3 inflammasome activation[J]. Redox Biology, 2021, 41:101930.

[40]
TO K, CAO R Q, YEGIAZARYAN A, et al. Effects of oral liposomal glutathione in altering the immune responses against Mycobacterium tuberculosis and the mycobacterium bovis BCG strain in individuals with type 2 diabetes[J]. Frontiers in Cellular and Infection Microbiology, 2021, 11:657775.

[41]
BJØRKLUND G, TINKOV A A, HOSNEDLOVÁ B, et al. The role of glutathione redox imbalance in autism spectrum disorder:a review[J]. Free Radical Biology & Medicine, 2020, 160:149-162.

[42]
GASMI A, NOOR S, PISCOPO S, et al. Toxic metal -mediated neurodegradation:a focus on glutathione and GST gene variants[J]. Archives of Razi Institute, 2022, 77(2):525-536.

[43]
SAUSER L, KALVODA T, KAVAS A, et al. Cyclic octapeptides composed of two glutathione units outperform the monomer in lead detoxification[J]. ChemMedChem, 2022, 17(15):e202200152.

[44]
TUALEKA A R, RAHMAWATI P, AHSAN A, et al. The cost prediction for chromium detox using foods intake containing glutathione at the leather tanning industry in magetan,indonesia[J]. Open Access Macedonian Journal of Medical Sciences, 2019, 7(21):3698-3703.

[45]
NASSAR M, DARGHAM A, HIRAISHI N, et al. In vitro mitigation of arsenic-induced toxicity by reduced glutathione in rat pulp cells[J]. European Endodontic Journal, 2020, 5(3):277-281.

[46]
NAIME A A, LOPES M W, COLLE D, et al. Glutathione in chlorpyrifos-and chlorpyrifos-oxon-induced yoxicity:a comparative study focused on non-cholinergic toxicity in HT22 cells[J]. Neurotoxicity Research, 2020, 38(3):603-610.

[47]
ELREMALY W, MOHAMED I, ROULEAU T, et al. Adding glutathione to parenteral nutrition prevents alveolar loss in newborn guinea pig[J]. Free Radical Biology & Medicine, 2015, 87:274-281.

[48]
DRINGEN R, BRANDMANN M, HOHNHOLT M C, et al. Glutathione-dependent detoxification processes in astrocytes[J]. Neurochemical Research, 2015, 40(12):2570-2582.

DOI PMID

[49]
OGINO N, NAGAOKA K, TOMIZUKA K, et al. Compromised glutathione synthesis results in high susceptibility to acetaminophen hepatotoxicity in acatalasemic mice[J]. Food and Chemical Toxicology, 2021, 156:112509.

DOI PMID

[50]
JIANG X Y, DU B J, ZHENG J. Glutathione-mediated biotransformation in the liver modulates nanoparticle transport[J]. Nature Nanotechnology, 2019, 14(9):874-882.

DOI PMID

[51]
SHI X J, REINSTADLER B, SHAH H, et al. Combinatorial GxGxE CRISPR screen identifies SLC25A39 in mitochondrial glutathione transport linking iron homeostasis to OXPHOS[J]. Nature Communications, 2022, 13(1):2483.

DOI PMID

[52]
WANG M H, YAO Y, KUANG D H, et al. Activation of family C G-protein-coupled receptors by the tripeptide glutathione[J]. Journal of Biological Chemistry, 2006, 281(13):8864-8870.

DOI PMID

[53]
LYONS J, RAUH-PFEIFFER A, YU Y M, et al. Blood glutathione synthesis rates in healthy adults receiving a sulfur amino acid-free diet[J]. Proceedings of the National Academy of Sciences of the United States of America, 2000, 97(10):5071-5076.

DOI PMID

[54]
TE BRAAKE F W J, SCHIERBEEK H, DE GROOF K, et al. Glutathione synthesis rates after amino acid administration directly after birth in preterm infants[J]. American Journal of Clinical Nutrition, 2008, 88(2):333-339.

DOI PMID

[55]
CHEN Y, MANNA S K, GOLLA S, et al. Glutathione deficiency-elicited reprogramming of hepatic metabolism protects against alcohol-induced steatosis[J]. Free Radical Biology & Medicine, 2019, 143:127-139.

[56]
KARUNAKARAN U, ELUMALAI S M, MOON J S, et al. Pioglitazone-induced AMPK-glutaminase-1 prevents high glucose-induced pancreatic β-cell dysfunction by glutathione antioxidant system[J]. Redox Biology, 2021, 45:102029.

[57]
ZHANG J T, BAI J, ZHOU Q, et al. Glutathione prevents high glucose-induced pancreatic fibrosis by suppressing pancreatic stellate cell activation via the ROS/TGFβ/SMAD pathway[J]. Cell Death & Disease, 2022, 13(5):440.

[58]
WANG C A, SU B H, LU S X, et al. Effects of glutathione on growth,intestinal antioxidant capacity,histology,gene expression,and microbiota of juvenile triploid Oncorhynchus mykiss[J]. Frontiers in Physiology, 2021, 12:784852.

[59]
AJIBOYE T O. Contributions of reactive oxygen species,oxidative DNA damage and glutathione depletion to the sensitivity of Acinetobacter baumannii to 2-(2-nitrovinyl) furan[J]. Microbial Pathogenesis, 2019, 128:342-346.

[60]
BROUWER S, JESPERSEN M G, ONG C L Y, et al. Streptococcus pyogenes hijacks host glutathione for growth and innate immune evasion[J]. mBio, 2022, 13(3):e0067622.

[61]
MARDINOGLU A, SHOAIE S, BERGENTALL M, et al. The gut microbiota modulates host amino acid and glutathione metabolism in mice[J]. Molecular Systems Biology, 2015, 11(10):834.

DOI PMID

[62]
YUAN Y, YANG J, ZHUGE A X, et al. Gut microbiota modulates osteoclast glutathione synthesis and mitochondrial biogenesis in mice subjected to ovariectomy[J]. Cell Proliferation, 2022, 55(3):e13194.

[63]
DENG F, ZHAO B C, YANG X, et al. The gut microbiota metabolite capsiate promotes Gpx4 expression by activating TRPV1 to inhibit intestinal ischemia reperfusion-induced ferroptosis[J]. Gut Microbes, 2021, 13(1):1-21.

[64]
ITAHASHI T, OIKAWA T, NUMABE T. Effects of glutathione treatments during sperm washing and in vitro fertilization on the in vitro early development of embryos of Japanese black cattle[J]. Journal of Reproduction and Development, 2022, 68(1):74-78.

[65]
刘锦钰, 张杨, 马旭梅, 等. 谷胱甘肽对绵羊精液低温保存效果的影响[J]. 中国畜牧兽医, 2023, 50(6):2388-2394.

DOI

LIU J Y, ZHANG Y, MA X M, et al. Effects of glutathione on cryopreservation of sheep semen[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(6):2388-2394. (in Chinese)

[66]
ESTRADA E, RODRÍGUEZ-GIL J E, RIVERA DEL ÁLAMO M M, et al. Effects of reduced glutathione on acrosin activity in frozen-thawed boar spermatozoa[J]. Reproduction,Fertility and Development, 2017, 29(2):283-293.

[67]
ZHANG X G, LIU Q, WANG L Q, et al. Effects of glutathione on sperm quality during liquid storage in boars[J]. Animal Science Journal, 2016, 87(10):1195-1201.

[68]
LI F, CUI L X, YU D W, et al. Exogenous glutathione improves intracellular glutathione synthesis via the γ-glutamyl cycle in bovine zygotes and cleavage embryos[J]. Journal of Cellular Physiology, 2019, 234(5):7384-7394.

DOI PMID

[69]
李凯伦. 谷胱甘肽-芬兰羊乳产量的标志[J]. 河北畜牧兽医, 1986(2):41-42.

LI K L. Glutathion—a mark of milk production in finland goat[J]. Veterinary Surgeon of Hebei Pastoralism, 1986(2):41-42. (in Chinese)

[70]
MAGATA F, IDETA A, MATSUDA F, et al. Glutathione ethyl ester improved the age-induced decline in the developmental competence of bovine oocytes[J]. Theriogenology, 2021, 167:37-43.

DOI PMID

[71]
宋增廷. 谷胱甘肽对肉羊瘤胃发酵、生长及肉质调控作用的研究[D].硕士学位论文. 大庆: 黑龙江八一农垦大学, 2008.

SONG Z T. Studies on manipulation of rumen fermentation,growth and meat quality in fattening lambs by adding glutathione[D].Master's Thesis. Daqing: Heilongjiang Bayi Agricultural University, 2008. (in Chinese)

[72]
姜宁, 杨坤, 张爱忠, 等. 谷胱甘肽对育肥羊机体抗氧化能力的影响[J]. 饲料工业, 2015, 36(23):45-48.

JIANG N, YANG K, ZHANG A Z, et al. Effect of glutathione on antioxidant ability in fattening sheep[J]. Feed Industry, 2015, 36(23):45-48. (in Chinese)

[73]
DEGROOTE J, VERGAUWEN H, WANG W, et al. Changes of the glutathione redox system during the weaning transition in piglets,in relation to small intestinal morphology and barrier function[J]. Journal of Animal Science and Biotechnology, 2020, 11:45.

[74]
CHEN Q Y, YU M, TIAN Z M, et al. Exogenous glutathione protects IPEC-J2 cells against oxidative stress through a mitochondrial mechanism[J]. Molecules, 2022, 27(8):2416.

[75]
刘平祥. 谷胱甘肽对断奶仔猪的促生长作用及其机制[D].博士学位论文. 广州: 华南农业大学, 2002.

LIU P X. Function and mechanism of glutathione on promoting growth[D].Ph.D.Thesis. Guangzhou: South China Agricultural University, 2002. (in Chinese)

[76]
郑梦奇, 应志豪, 蔡志军. 育肥猪日粮中添加谷胱甘肽的使用效果试验[J]. 畜牧与兽医, 2009, 41(8):46-47.

ZHENG M Q, YING Z H, CAI Z J. Applied effects experiment of pigs fed diets with glutathione[J]. Animal Husbandry & Veterinary Medicine, 2009, 41(8):46-47. (in Chinese)

[77]
韦建福, 刘丽, 傅伟龙, 等.肌肽、 GSH对黄羽肉鸡生产性能及血液FT3、FT4、IGF-1含量的影响[C]// 动物生理生化学分会第八次学术会议暨全国反刍动物营养生理生化第三次学术研讨会论文摘要汇编. 长春: 中国畜牧兽医学会动物生理化学分会,2004:92-93.

WEI J F, LIU L, FU W L, et al. Effects of carnosine and glutathione on growth performance and the content of FT3,FT4,and IGF-1 in yellow feather broilers[C]// Proceedings of the eighth academic conference and the third symposium on the National Ruminants Nutrition Physiology and Biochemistry. Changchun: Animal Physiology and Chemistry Branch of the Chinese Society of Animal Husbandry and Veterinary Medicine,2004:92-93. (in Chinese)

[78]
吴觉文. 谷胱甘肽对黄羽肉鸡生长及其内分泌的影响[D].硕士学位论文. 广州: 华南农业大学, 2003.

WU J W. Effects of glutathione on growth and endocrine in yellow feather broilers[D].Master's Thesis. Guangzhou: South China Agricultural University, 2003. (in Chinese)

[79]
WANG Y A, WU J Y, WANG L F, et al. Epigallocatechin gallate and glutathione attenuate Aflatoxin B(1)-induced acute liver injury in ducklings via mitochondria-mediated apoptosis and the Nrf2 signalling pathway[J]. Toxins, 2022, 14(12):876.

[80]
XIANG X, WANG H F, ZHOU W T, et al. Glutathione protects against paraquat-induced oxidative stress by regulating intestinal barrier,antioxidant capacity,and CAR signaling pathway in weaned piglets[J]. Nutrients, 2022, 15(1):198.

[81]
ZHAO J, WANG T Z, XIE J C, et al. Formation mechanism of aroma compounds in a glutathione-glucose reaction with fat or oxidized fat[J]. Food Chemistry, 2019, 270:436-444.

DOI PMID

[82]
LIU J, HU Z Y, LIU D H, et al. Glutathione metabolism-mediated ferroptosis reduces water-holding capacity in beef during cold storage[J]. Food Chemistry, 2023, 398:133903.

[83]
MA W H, YANG Q, FAN X, et al. Modification of myofibrillar protein gelation under oxidative stress using combined inulin and glutathione[J]. Food Chemistry:X, 2022, 14:100318.

Outlines

/